ヒト腫瘍異種移植片は、血管新生およびインビボでの増殖期の間に、マウス起源の細胞によって浸潤されています。下流の分析の間に、これらの混入細胞によって引き起こされるバイアスを回避するために、我々は、磁気細胞選別により、すべてのマウス細胞の包括的枯渇を可能にする方法を開発しました。
この記事について
サマリー
要約
癌研究のためのin vitroの細胞株モデルの使用は有用なツールとなっています。しかし、これらのモデルは、確実に異なるアッセイ1で患者の腫瘍を模倣することができないことが示されています。ヒト腫瘍異種移植片は、腫瘍生物学、薬物発見、および転移の研究2-4に対して、金本位制を表します。腫瘍異種移植片は、腫瘍細胞株のような材料の異なる種類の、一次患者腫瘍4または連続移植腫瘍からの腫瘍組織に由来することができます。 生体内で伝播すると、異種移植された組織は、マウス由来の細胞によって浸潤及び血管が新生されています。そのような腫瘍エンティティのような複数の要因が、移植の異種移植材料、成長速度と領域の起源は、組成物及び腫瘍異種移植片中に存在するマウス細胞の量に影響を与えます。しかし、これらの要因が一定に保たれている場合でも、マウス細胞混入の程度は非常に可変です。
共同ntaminatingマウス細胞は有意にヒト腫瘍異種移植片の下流分析を損ないます。マウス線維芽細胞は、高いめっき効力および増殖速度を示すように、それらは、特に、ゆっくりと亜集団の増殖、ヒト腫瘍細胞の培養物を過成長する傾向があります。マウス細胞は、DNA、mRNAを誘導し、タンパク質成分ができバイアス下流の遺伝子発現解析、次世代シークエンシング、ならびにプロテオーム解析5。これらの制限を克服するために、我々は、異種移植腫瘍組織から手付かずのヒト腫瘍細胞を単離するための迅速かつ簡単な方法を開発しました。この手順は、ベンチトップ型組織の解離および磁気細胞選別で自動化された組織解離を組み合わせることにより、マウス由来の細胞の総合的な枯渇に基づいています。ここでは、ヒト標的細胞は、腫瘍の種類未満の20分の独立した内の96%よりも高い純度で得ることができることができることを示しています。
概要
ヒト固形腫瘍は、複数の生理的なだけでなく、腫瘍細胞の種類で構成されています。彼らは、複雑な生物学的構造を持つ異種の組織を形成します。腫瘍形成のような生物学的プロセスは、治療に向かって進行し、応答がまだ完全には理解されていない。 インビトロ細胞培養モデルにおいて腫瘍生物学を研究し、理解するための有用なツールを表します。しかし、それらは部分的にしか腫瘍組織に見られる構造とプロセスをミラーリングすることができます。信頼性の高い安定した前臨床のヒト腫瘍モデルは、抗腫瘍薬および治療4,6の開発のため、ならびに腫瘍生物学と腫瘍細胞とその環境との相互作用を理解するための前提条件です。
主要な患者の腫瘍由来のヒト腫瘍異種移植片モデルは、組織のアーキテクチャに関する起源の組織への高い関係、微小環境の構造との相互作用、転移の可能性および薬物7への応答を示します。腫瘍異種移植片は、従って、インビトロ細胞培養モデルと比較して、ほとんどのアッセイでより高い有効性を示し、培養細胞またはそれらがより密接に模倣する細胞株患者 の腫瘍に由来する場合であっても。これらの機能は、それらの前臨床モデル4のゴールドスタンダードにします。癌研究への応用に加えて、マウスへのヒト細胞の異種移植はまた、しばしば、標的集団8の幹細胞性および分化の可能性を決定するために、幹細胞研究で使用されています。
ヒト微小血管およびヒト免疫細胞がヒト腫瘍2,9のインビボ増殖の際に置き換えられていることが示されています。このような移植の腫瘍サブタイプ、成長率、および地域などの要因が主要な浸潤のグローバルレベルでの影響だけでなく、見つかったマウスの細胞型の組成を有します。しかし、これらの要因が一定に保たれている場合でも、マウス細胞の量と組成は非常に可変です。
異種移植された組織の下流の分析は、多くの場合、マウス起源の細胞によって挑戦されています。異種移植片由来のヒト腫瘍細胞の初代培養物は、しばしば、線維芽細胞による過成長されます。 インビトロでの腫瘍細胞株の生成を妨げる他に、このような薬剤の細胞毒性試験または薬物動態などの下流のアッセイは、マウス細胞を汚染することはほとんどの場合不可能であるから発信効果をインシリコ補正にのでバイアスされます。それを超えると、マウス線維芽細胞とヒト腫瘍細胞との間に部分的にしか解明クロストークが研究10の実験の結果に直接影響を与えます。さらに、マウス細胞浸潤の最も広く予測不可能な変化は、正確な分子下流の分析を悪化させます。 NGSまたはプロテオームに直接シーケンシング感度を低下させるヒト腫瘍信号の代わりに測定された各マウス由来の信号を解析します。また、マイクロアレイベースの発現解析は、マウスNUCによって挑戦されています人間のプローブへの可能性のクロスハイブリダイズleic酸。
異種移植片モデルからヒト腫瘍細胞の下流の分析に異なるアプローチをマウス細胞を汚染する障害を回避するために提案されています。多くの研究では、下流分析のための所望の標的細胞は、もっぱらヒト腫瘍細胞上に発現されるマーカーまたはマーカーの組合せを利用することによって単離されます。しかしながら、ヒト腫瘍細胞の正の同定のための信頼できるマーカーの欠如はしばしば大きな障害を表します。例えば、ヒト癌細胞上のEpCAMなどでも広く発現されるマーカーは、しばしば腫瘍固有発現差11を示しています。これは、上皮-間葉転換を受け、低発現する亜集団、 例えば、腫瘍細胞は、単離の間に失われるリスクを増大させます。加えて、標的細胞への選択剤の直接結合は、その後の分析の結果に影響を与えるかもしれません。によってマウス細胞を枯渇させる試みマウスCD45およびMHCクラスIエピトープに特異的な抗体の組み合わせを使用してもまた12なされています。しかし、このマーカーの組合せは、マウス細胞のサブセットを検出します。別のアプローチは、ソフトウェアによって分析プロセスを強化することです。それにもかかわらず、すべてのこれらのアプローチのいずれか実験の任意の種類のまたは任意の腫瘍エンティティ及び移植方法には適していません。
本研究では、総合的にマウス系統と起源の組織の独立した異種移植された組織からマウス細胞を枯渇させるための新規かつ迅速な方法を提示します。 (皮膚、肺、脳、腎臓および骨格筋を含む)の異種移植片の移植のための複数の標的器官および組織のスクリーニングでは、包括的に、マウスの細胞の検出を可能にする抗体の組み合わせを同定することができました。これらの抗体は、超常磁性粒子に結合された滴定し、磁気細胞ソーティングを用いて枯渇のために最適化しました。マウスのみの特定として、抗体は、ヒト標的細胞を「そのまま」まま、使用され、この方法は、異種移植腫瘍組織に限定されるものではありません。我々は、包括的に異種移植腫瘍試料からマウス細胞を除去して標準化し、ヒト腫瘍細胞の培養を促進することを示しています。さらに、我々は次世代配列決定によりヒト腫瘍異種移植片の分析が大幅に改善されることを示します。ヒト配列特異的選択はexome濃縮中に行われたが、この効果が観察されたように、全ゲノムおよび全トランスクリプトーム配列決定への影響はより一層顕著であると予想されます。まとめると、この新規な方法を使用して、マウス細胞の除去は、ヒト腫瘍細胞の培養を容易にし、有意にヒト腫瘍異種移植片の下流の分析を改善します。
プロトコル
全ての動物実験はRegierungspräsidiumフライブルクReferat 35の地域の倫理と法律上のガイドラインに従って行われました。
1.試薬の調製
注:この実験を開始する前に、解離キットから以下の試薬を準備します。
- 酵素Hを調製するためには、RPMI1640ロズウェルパーク記念研究所1640(RPMI1640培地)またはダルベッコ改変イーグル培地(DMEM)3mlに凍結乾燥粉末の各バイアルを溶かします。 6ヶ月まで、20℃ -適切なアリコート( 例えば 、200μl)を準備し凍結融解の繰り返しを避け、でそれらを格納するために。
- 酵素Rを調製するためには、RPMIまたはDMEM培地2.7 ml中に凍結乾燥粉末のバイアルを溶解します。 6ヶ月まで、20℃ -適切なアリコート( 例えば、100μl)を準備し凍結融解の繰り返しを避け、でそれらを格納するために。
- Vを溶解酵素Aを調製するために緩衝液A 1ml中の凍結乾燥粉末のIALはボルテックスなしキットに付属しました。適切なアリコート( 例えば 、25μl)を準備し凍結融解の繰り返しを避け、でそれらを格納するために- 20°Cは、最大6ヶ月間。徹底的に必要な反応容積を引き抜く直前にこの懸濁液を混合することを確認します。
- 細胞分離手順および抗体染色のために250ミリリットルのバッファ(1×PBS、0.5%BSAを含む)を準備します。
注:マウス細胞を除去した後の培養細胞は、0.22μmのフィルターを通して、すべてのバッファおよび酵素溶液をフィルタリングします。
2.腫瘍解離プロトコル
注:この研究では、非小細胞肺癌(NSCLC)、腎臓癌および膀胱の患者由来の異種移植片を用いました。先に説明したように13 6週齢の雌NMRIのnu / nuマウス-腫瘍を4に、非小細胞肺癌(NSCLC)、腎臓癌、および膀胱の異種移植片を移植することによって生成されましたアップ。
注意:このプロトコルは、腫瘍型の完全に独立しているように、それは、プロトコルを変更することなく、患者または細胞株由来の腫瘍ならびにヒト異種移植組織の他のタイプの任意の種類のために使用することができます。
- (新たな細胞解離チューブにRPMI 1640またはDMEMの4.7ミリリットル、酵素H200μlの、酵素R100μlの、および酵素Aを25μlを添加することにより、(1グラムまで)組織サンプルあたりの消化ミックスの5ミリリットルを準備Cチューブ)。徹底的に必要なボリュームを引き出す前に、酵素Rサスペンションを混合することを確認します。
- 麻酔下で頸椎脱臼により動物を生け贄に捧げます。 80%(v / v)のエタノールの少量を噴霧することにより、マウスを消毒します。
- 組織培養フードに鉗子とハサミを用いてマウスの側腹部から皮下腫瘍を収穫。ハサミを用いて腫瘍の代わりに開いた皮膚をカットした後、ピンセットやハサミを使用して、隣接する健康な組織から腫瘍を分離します。
注:の目的の応じて実験は、無菌条件下でこれと次の手順を実行します。この研究では、全てのステップは、細胞を培養することができることにために無菌条件下で細胞培養フード内で行いました。 - ピンセットやメスを使用してそれを離れて切断することにより(これは減少した生存能力になりますように)と壊死領域(これはサンプルのフロートを作るように)脂肪を除去することにより、消化のために腫瘍サンプルを準備します。メスや鉗子を使用して、4ミリメートル - 2の片に組織をミンチ。
- 消化混合物を含むCチューブに組織片を転送します。
- Cチューブを閉じて、それがしっかりと閉じていることを確認してください。卓上組織解離のスリーブ上に逆さまにそれを取り付け、組織片は、ロータ/ステータのエリアに位置していることを確認してください。
- モードが表示され、その後、「開始」ボタンを押すまで、「上」または「下」ボタンを押してモード」h_tumor_01 "を選択します。
- もしあなたが卓上組織解離の加熱機能を歌い、また、ヒーターを取り付けてください。そして、フォルダ「ミルテニー」が表示されるまでタッチスクリーン上のフォルダシンボルをクリックすることで、モード37C_h_TDK_1(ソフト腫瘍用)、37C_h_TDK_2(中の腫瘍の場合)または37C_h_TDK_3を(ハード腫瘍のため)を実行します。
- モードを選択するには、37C_h_TDK_2が強調表示される解離モードまで上または下の矢印をクリックします。卓上組織解離のスリーブは、デバイスのディスプレイ上の位置として示されています。サンプルは、タッチスクリーン上でそれらをクリックすることにより、上で実行されている位置を選択してください。押してモードを実行し、ステップ2.16を続行するには「開始」。
注:別の解離プログラムが適切であるかもしれない腫瘍の種類に応じて(ステップ2.7.1を参照してください)。
- 画面上の「プログラムの終了」を示すウィンドウを観察します。プログラムの終了後、ベンチトップ型組織解離からCチューブを外します。
- 37で30分間サンプルをインキュベートチューブローテーターを用いて、 例えば連続的な回転下でCが°。
- インキュベーション後卓上組織解離のスリーブの上に逆さまにCチューブを取り付けます。再度、サンプル材料は、ロータ/ステータのエリアに位置していることを確認してください。
- ステップ2.7.1で説明したように解離プログラム(ソフトとミディアムの腫瘍用)h_tumor_02または(ハード腫瘍用)h_tumor_01を実行します。
- プログラムの終了後、ベンチトップ型組織解離からCチューブを外します。
- 連続回転下、37℃で30分間サンプルをインキュベートします。
- インキュベーション後の卓上組織解離のスリーブの上に逆さまにCチューブを取り付けます。再度、サンプル材料は、ロータ/ステータのエリアに位置していることを確認してください。
- ステップ2.7で説明したように(ハード腫瘍の)解離プログラム(中腫瘍用)(ソフト腫瘍について)h_tumor_03、h_tumor_02またはh_tumor_01を実行します。
- チューブの底にサンプル材料を収集するには、笙を行います(10秒間100×gで)室温遠心分離工程。
- 細胞を再懸濁し、50 mlチューブ上に配置された70μmの寒さに敏感なサイズのセルストレーナーに適用されます。 RPMI 1640またはDMEM 20mlでセルストレーナーを洗浄します。
- 7分間300×gで遠心し細胞懸濁液。完全に上清を吸引。
- カウント用の緩衝液5mlで細胞を再懸濁し。磁気細胞分離(セクション3)によるマウス細胞枯渇を続行します。
磁気細胞分離技術によって3.マウス細胞枯渇
注:下記の磁気標識のためのボリュームは最大2×10 6個の腫瘍細胞や赤血球を含む10 7全細胞のためのものです。腫瘍の大きさに応じてより低いまたはより高い細胞数が得られます。示されるように、少数の細胞の場合、同じボリュームを使用します。高い細胞数を使用する場合は、4×10 6腫瘍細胞又は2×10応じてすべての試薬 ボリュームと総体積( 例えば、スケールアップ 7全細胞は、すべての示された試薬容量と総容量)の2倍量を使用します。
- カウント用の顕微鏡および適切なチャンバーを用いて、ステップ2.21での細胞懸濁液からのアリコートの細胞数を決定します。
注:この時点で、細胞懸濁液は、赤血球を含むヒト腫瘍細胞ならびにマウス間質および血液細胞の不均一混合物からなります。細胞の組成物は、強く移植のための腫瘍の種類や地域によって異なります。 - マウス細胞を除去した後、フローサイトメトリー分析を行う際に、フローサイトメトリー分析のために染色されていない二つの単色コントロール染色のために適当なチューブに100μlのアリコートを引き出します。さらに染色工程(セクション4)まで8℃ - 2で冷蔵庫に保管してください。
- 10分間、300×gで遠心し細胞懸濁液。上清を捨てます。
- 2×10 6個の腫瘍細胞または10 7あたりバッファ80μlの再懸濁細胞ペレット全細胞は、マウス細胞の磁気標識試薬20μlのを追加します。
- よく混ぜ、冷蔵庫で15分間インキュベートする(2から8℃)。磁気標識の間に、適切な磁石の磁場に置くことで、磁気分離のための大規模なカラム(LSカラム)を調製製造業者のプロトコルに従って(材料および機器の表を参照してください)。バッファーの3ミリリットルでカラムを洗浄します。
- 最大2×10 6個の腫瘍細胞または最大10 7全細胞のためのバッファを使用して500μlにサンプル音量を調整します。 (7腫瘍細胞または最大5×10、1×10までの合計7細胞は、より多くの細胞での作業は、複数のLSカラムにサンプルを分割するとき。1 LSカラム上で処理することができます)。
- フローサイトメトリー解析、分子解析を行うか、培養物中の画分を比較すると、ソートされていない試料と50μlのアリコートを引き出します。さらに処理するまで8℃ - 2で冷蔵庫に保管してください。
- 先に調製したカラムに細胞懸濁液を500μlを適用します。濃縮されたヒト腫瘍細胞を表し、非標識標的細胞を含有するフロースルーを集めます。
注:3.5つの列に適用することができるステップに従って調製した細胞懸濁液2.5 mlまでのより高い細胞数を扱います。 - バッファの2×1mlでカラムを洗浄。通過した細胞を収集し、ステップ3.6からのフロースルーと組み合わせます。すぐに列リザーバが空になるように1ミリリットルのバッファのアリコートを添加することにより、洗浄工程を実行します。
注:フロースルーは、精製されたヒト腫瘍細胞が含まれています。 - また、カラムに保持マウス細胞を収集するには、分離器から列を削除し、適切なチューブの上に置きます。ピペットバッファーの3ミリリットルカラムに、すぐにはしっかりと列にそれを押してマウス細胞を洗い流すためにプランジャーを使用しています。
- 10分間、300×gでの分画およびコントロールサンプルをスピンダウン。吸引しsupe希望の下流の用途に応じて、完全にrnatantおよび緩衝液、培養培地中に再懸濁細胞または液体窒素中でペレットを凍結します。
4.ダウンストリーム分析
- フローサイトメトリー分析のために染色
メモがさらなる下流の分析を行う前に、マウス細胞の枯渇手順から得られた細胞の一部を解析することができるフローサイトメトリー( 例えば 、純度および収率を評価します)。- フローサイトメトリーのために、10分間、300×gでステップ3.2および3.5からの負と正の磁気細胞分離手順(セクション3)から得られた画分と同様に対照サンプルのスピン少なくとも10%を分析します。
- 上清を捨てます。バッファの90μlのステップ3.2から染色対照試料の細胞ペレットを再懸濁します。バッファー80μlの磁気細胞分離手順から得られた画分を再懸濁します。
- すべてにマウスのFcRブロッキング試薬10μlのを追加サンプル。よく混ぜると2で5分間インキュベート - 冷蔵庫で8℃。
- (1の抗体希釈に等しい:4)(1:10の抗体希釈に等しい)、抗ヒトEpCAMを-PEの10μlを添加して、抗マウスAPCカクテルの25μlのサンプルに部3からの抗10μlのを追加します。 - ヒトのEpCAM-PE 1単色コントロールサンプル(1:10の抗体希釈に等しい)と抗ヒトEpCAMを-APC10μlのに他に(1:10の抗体希釈に等しいです)。すべてのサンプルを混合し、2で10分間インキュベート - 冷蔵庫で8℃。
注:EpCAMの任意の腫瘍型の腫瘍細胞マーカーとして適していません。この研究のEpCAM発現に使用される腫瘍のために知られていました。 - サンプルを洗浄するために、5分間、300×gで各スピンをバッファの1ミリリットルを追加します。
- 上清を捨て、フローサイトメトリー分析のための濃度に細胞ペレットを再懸濁します。死細胞を排除するには、ヨウ化プロピジウム(1μg/ ml)を追加します。
- 適切なFを用いたフローサイトメトリー分析を実行製造業者のプロトコルに従ってローサイトメーター。
- ヒト腫瘍細胞の培養
注:フローサイトメトリーに加えて、分離操作から得られた細胞を培養することができ、in vitroでのさらなるアッセイのために用いられます。- 5×10 5細胞/ mlの濃度になるように培地中の部3からソート画分を再懸濁します。
注:腫瘍タイプのコーティングに応じて、適切な播種密度、および培養条件は異なり得ます。 - 0.1%ゼラチンでコーティングした24ウェルプレートのウェルに細胞懸濁液の500μlのを追加します。
- 37℃、5%の細胞培養インキュベーター中で細胞をインキュベートします。
注:最適な培養条件を用いた腫瘍の種類によって異なります。従って、使用される腫瘍の種類に適した培養条件を適用します。
- 5×10 5細胞/ mlの濃度になるように培地中の部3からソート画分を再懸濁します。
- 培養細胞の免疫蛍光染色
- 10%FCSおよび0.1%を添加することによりブロッキング溶液を調製トリトンX-100 PBSを1倍にします。
- 廃棄培地。細胞を洗浄し、ウェル当たり1×500μlのPBSを追加します。完全に1×PBSを捨てた後、室温(RT)で2分間インキュベートします。
- 4%PFA溶液を300μlを加えることによって、細胞を固定。室温で15分間インキュベートします。
- PFA液を捨てます。ステップ4.3.2に示すように固定された細胞を3回洗浄します。
- ウェルあたりブロッキングを300μlを添加することにより、透過処理し、ブロッキングを実行します。室温で30分間インキュベートします。
- ブロッキング溶液を廃棄します。ステップ4.3.2に示すように細胞を洗浄します。
- 細胞へのブロッキング溶液中に希釈した一次抗体を300μlを追加します。 200:のEpCAM抗体は、1:40希釈した抗ヒト、ビメンチン抗体を1に希釈します。 8°C - 2で一晩インキュベートします。
注:のEpCAM、腫瘍細胞上に発現されないことがあり、及び/又はビメンチンは、腫瘍細胞によって発現されるように使用される抗体は、任意の腫瘍型には適していません。使用した抗体は、異種移植カ月に適していることを確認しますデル。 - 一次抗体溶液を廃棄してください。ステップ4.3.2に示されているように、細胞を3回洗浄します。
- 細胞へのブロッキング溶液中に希釈した二次抗体を300μlを追加します。 400:両抗体、抗ウサギIgG-Alexe594及び抗マウスIgG-Alexa488標識が1に希釈します。室温で暗所で1時間インキュベートします。
- 二次抗体溶液を廃棄してください。ステップ4.3.2に示されるように、細胞を2回洗浄します。
- 各ウェルにDAPI溶液を300μlの(0.1μgの/ ml)を追加します。室温で暗所で10分間インキュベートします。
- DAPI液を捨てます。ステップ4.3.2に示されているように、細胞を3回洗浄します。
- 各ウェルに1×PBS500μlのを追加します。適切な顕微鏡を用いた蛍光顕微鏡を実行します。
- 全体Exomeシーケンシング
- 全体exomeシーケンシング(WES)のために液体窒素中でステップ3.9からペレットを凍結します。ストアとは、-80℃でサンプルを収集します。
- 細胞を回収した後、exomeキャプチャ全体exomeの配列を実行しますそれぞれのキットのメーカーの指示に従ったuencing(材料および機器の表を参照してください)。
結果
別のアプローチは、例えば、異種移植ヒト腫瘍からマウス細胞を同定または枯渇させるしかし、マウス細胞のみ亜集団が提案されている組み合わせは、CD45を検出するのに対し、これらの組み合わせを用いて検出したCD45およびMHCクラスIに対するマウス特異的抗体の組み合わせが提案されていますそしてMHCクラスIは、マウス細胞ならびに移植のために標的組織に見出されるマウス細胞の残りの部分を発現する( 図1)。磁気細胞選別のための抗体のこの新規な組み合わせを利用して、ヒト腫瘍細胞は、腫瘍タイプ( 図2)から独立して単離することができました。
磁気細胞分離手順に基づくマウス細胞を除去から得られた細胞は、ヒト腫瘍細胞( 図4)の純粋培養につながる、培養することができました。加えて、生存マウス細胞を得ることができたとの培養同じサンプル。マウス細胞の除去に加えて、また、デブリは、マウス細胞枯渇(MCD)( 図3)の際に除去されました。
改善された分子の下流の分析を総合的にマウス細胞の枯渇だけでなく、異物除去リード。これは、3つの異なる患者由来の異種移植腫瘍モデル(9 -図5)から、バルク腫瘍片およびマウス細胞枯渇サンプルで行っ全体exome配列(WES)から得られた結果を比較することによって実証されました。我々のデータは、異種移植腫瘍試料でWESを実行する前にマウス細胞を除去するだけでなく、有意に(図5)読み出しの総量を増加させるだけでなく、かなりのホストの数は、ヒト参照ゲノム(図6B)にマッピングされた読み出し由来減少することを示しています。これらの誤ってマッピングされたマウスは頻繁にSNPの呼び出しに干渉する読み取るように、我々は誤って予測の強力な減少を観察しMCD後のSNP(図7から8)。最後に、私たちは、起源の種に明確な配列に基づく割り当てがすべての読み取りのために不可能であったように、マウス由来のインシリコ除去は、完全に実験手順を置き換えることができませんでしたバイオインフォマティクス手法によって読み取ることが示されました。また、シリコ手順における品質向上とインビトロ枯渇のサンプル(図9)の同時高い読み取りカバレッジの正しいできませんでした。
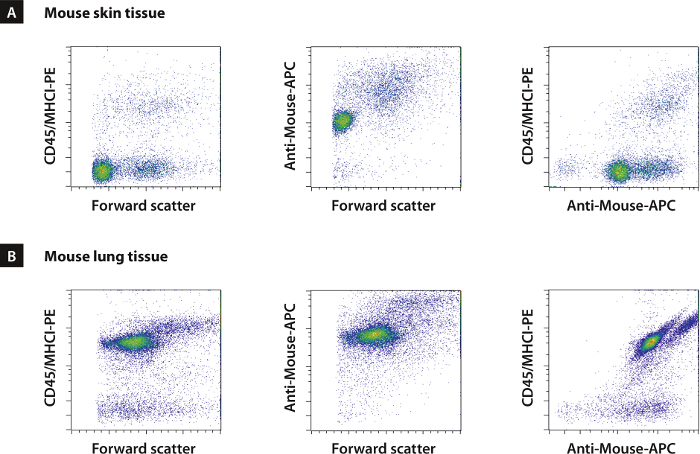
複数臓器14を横切ってすべてのマウス細胞を認識する抗体カクテルを確立 図1。上映皮膚、肺、脳、腎臓および骨格筋を含む複数の器官、で、行われてきました。これらの器官は、異種移植のための主要な標的組織を表します。このような畝を認識しているような組み合わせSE CD45及びMHCクラスIエピトープは、既に異種移植後のマウス細胞を枯渇させるために使用されてきました。しかしながら、これらのマーカーの組合せは、全ての分析した組織におけるマウス細胞のサブセットのみを認識しました。以前のスクリーニングで5抗体の組合せは、マウス由来のすべての細胞の総合的な検出を可能に同定されています。このパネルは赤血球を含み、起源の組織から独立している(A、B、およびデータは示さず)。 14から変更された。 この図の拡大版をご覧になるにはこちらをクリックしてください。
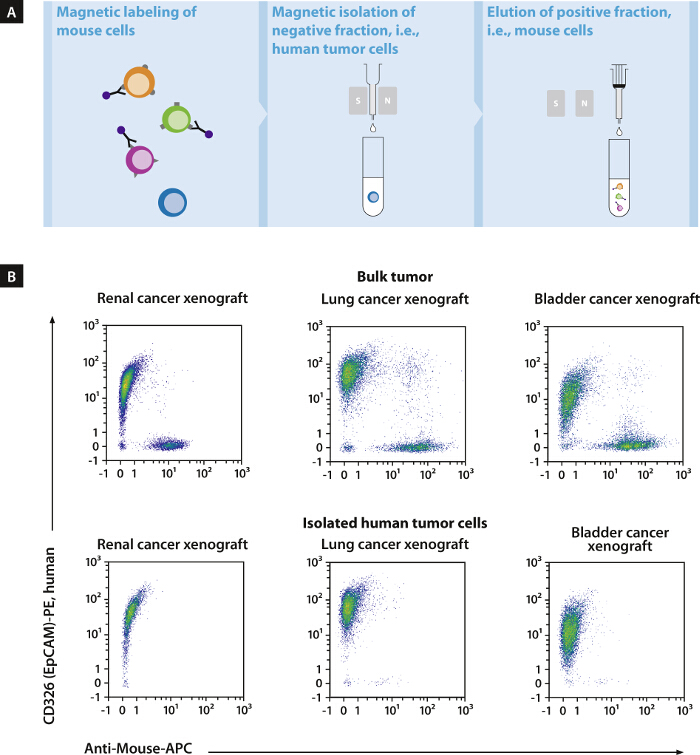
図2. マウス細胞の信頼性と高速枯渇15。超常磁性nの抗体の組み合わせのコンジュゲートanoparticlesは磁気細胞ソーティング(磁気細胞分離)(A)でヒト腫瘍異種移植片からマウス細胞の枯渇のために最適化されたプロトコルを開発するために使用しました。この新規なプロトコルにかかわらず、腫瘍の種類、20分未満でのマウス細胞混入の> 99%の除去を可能にしました。磁気細胞分離手順から得られた細胞画分を、汎マウス抗体カクテル及びCD326(のEpCAM)に対するヒト特異的抗体(B)で標識しました。 15から変更された。 この図の拡大版をご覧になるにはこちらをクリックしてください。
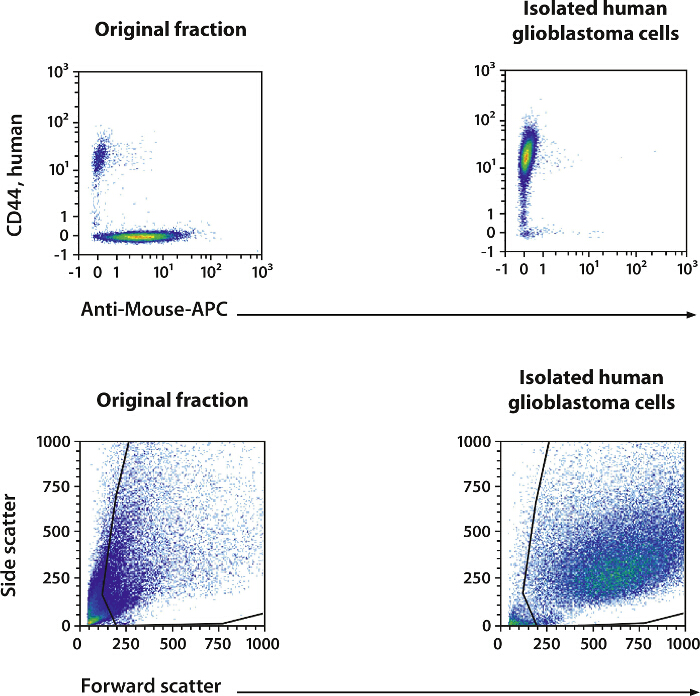
ヒト神経膠芽腫細胞の 図3. 単離マウス細胞枯渇キットは、成人の覚書からのヒト神経膠芽腫細胞を単離するために使用しました電子脳。破片の神経組織に多量の解離時には一般的に生成されます。細胞粒度対セルサイズを示すプロットから見たMCDKを効率的に死細胞および残骸を枯渇させます。この複合体のカクテルで、汚染マウス細胞および破片の> 60%の> 99%を排除することが可能であった。 この図の拡大版をご覧になるにはこちらをクリックしてください。
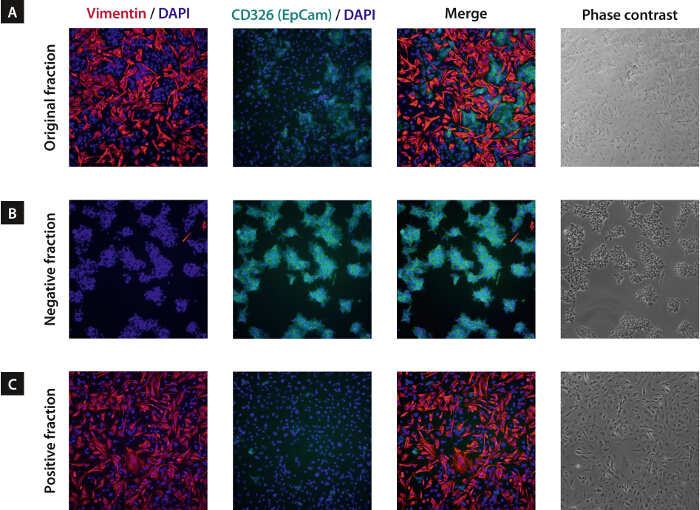
マウス細胞の 図4. 枯渇は、ヒト腫瘍細胞14の下流文化を容易にし ます。マウスの線維芽細胞が頻繁に移植された組織の解離後のヒト腫瘍細胞の培養を阻害または不文化につながります。線維芽細胞は付着し、それによってターゲットcを過剰成長、より効率的に展開します ells。マウス細胞を汚染から生じる影響の数学的補正はほとんどの場合不可能であるので、これは、 インビトロ細胞培養アッセイ( 例えば、薬剤の細胞毒性試験) に摂動します。マウス細胞の枯渇は、マウス特異的線維芽細胞マーカー(ビメンチン)及びヒト特異的腫瘍マーカーCD326(EpCAMの)固定し、染色した3日間培養した負の(B)および陽性画分(C)の後。対照として、未分離細胞(A)を含有する元の画分を培養し、同様に染色しました。ソートされていない画分(A)は 、線維芽細胞によってほぼ過成長であったのに対しても、培養の3日後、ヒト腫瘍細胞のほぼ純粋な集団を、陰性画分(B)で観察されました。標的細胞のわずかな部分は、陽性画分(C)に失われました。 14から変更されました。ge.jpg "ターゲット=" _空白 ">この図の拡大版をご覧になるにはこちらをクリックしてください。
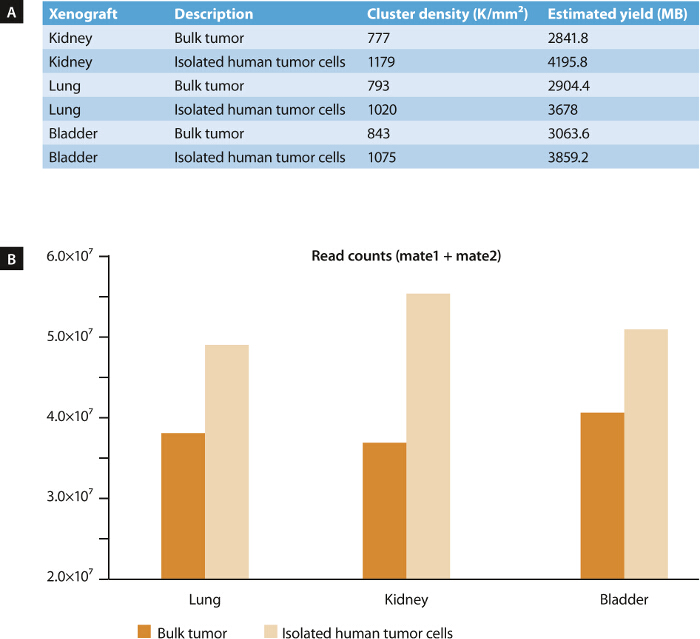
マウス細胞枯渇(MCD)〜15とした後の前腫瘍サンプルの 図5. 全体Exomeシーケンシング(WES)。私たちは、上のMCDの影響を評価するために、ヒト腎臓、肺および膀胱癌由来三つの異なる異種移植モデルにWESを実施しました次世代シークエンシングデータの品質。バルク腫瘍からマウス細胞枯渇後に単離された腫瘍細胞からのDNAは、exomeキャプチャキットを適用exome捕捉シーケンシングライブラリーを作製するために使用されました。デスクトップシーケンサ機器、デスクトップシーケンサ試薬キット150サイクルの配列決定のために、75-bpのペアエンド読み取りを生成するために利用されました。クラスター密度の有意な増加(p <0.05) (A)と同様に、AVE33%(B)のリード数の怒りの増加は、改善されたサンプルの品質を示す、マウス細胞を枯渇サンプルについて観察されました。これに対応して、MCDの際に破片及び死細胞の強力な減少はまた、フローサイトメトリー分析によって実証することができた( 図3参照)。 15から変更された。 この図の拡大版をご覧になるにはこちらをクリックしてください。
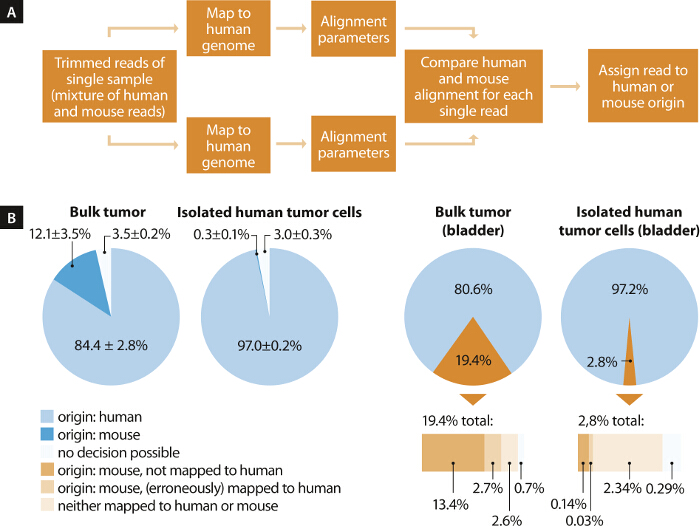
図6. マウス細胞枯渇(MCD)が強く誤ってマップされたマウスの数が全体Exomeシーケンシング(WES)15の後に読み込み軽減し ます。タンパク質コード配列の標的濃縮のために使用される捕捉オリゴヌクレオチドは、ヒトゲノム、初期事前に基づいて設計されたようにヒト起源のFRのDNA断片の濃縮オムマウスおよびヒト細胞の混合物が予想されました。マウスゲノムDNAと交差ハイブリダイズする可能性がある捕捉オリゴヌクレオチドの数を評価するために、我々は、マウスゲノムに対する各単一の迅速な捕獲exomeプローブのBLAST検索を行いました。得られた位置合わせパラメータは、可能なクロスハイブリダイゼーションを決定するために使用しました。 (アライメント長ないミスマッチ、ギャップなしの)選択閾値に応じて、我々は、5の交差反応性の予測 - マウス転写産物と捕捉プローブの10%が(データは示さず)。アダプタクリッピング(trimmomatic v0.32 16)の後、我々は、ヒトおよびマウスのゲノムに対するすべてのサンプル(BWAのv0.7.12 17)の読み取りマッピングされ、それらの推定の起源は、それぞれのアライメントパラメータに基づいて決定(LINUXシェル、コマンドラインのPerl) (A)。バルク腫瘍サンプルに由来する読み取りの12%の平均がマウス細胞に起因しました。この量は、マウス細胞の枯渇前(B 0.3%に低減することができ)。平均15%上のようなマウス由来のバルク腫瘍サンプルを読み込んで、全体の1.9%に相当する、ヒトゲノムに誤ってマップされた読み取り、単離された腫瘍細胞、下流の分析上のマウス細胞枯渇の強い正の影響で0.04%期待することができる。 図6Bは、バルク腫瘍および膀胱癌異種移植片に由来する単離されたヒト腫瘍細胞の詳細な読み出し割り当てを例示します。 15から変更された。 この図の拡大版をご覧になるにはこちらをクリックしてください。
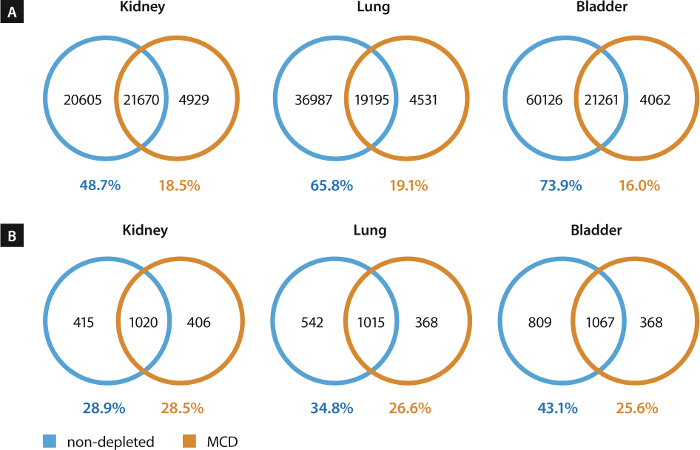
図7. MCDが強く誤って予測するSNP 15の数を減らすことができ ます。マウスの影響を決定するために、ヒトゲノムにマッピングされた読み取り、我々はpredicteの数を決定しました前およびMCD後の異種移植片サンプルのDのSNP。全く健康な組織は、比較のために利用できなかったように、SNPは、配列決定されたサンプルおよび参照ゲノム(hg19)との差として定義しました。重複の除去は読み込み後、SNPおよびINDEL通話が18を行い、exomeキャプチャキットにより、対象地域に限定されていました。すべてのSNPの63±10%のバルク腫瘍サンプルはもはや18±1%は、単離されたヒト腫瘍細胞(A)に特異的であった、マウス細胞の枯渇後に検出されたために予測しました。前者は主に誤ってマップされたマウスによって引き起こされたが、後者は単離されたヒト腫瘍細胞サンプル内のより高い読み取りカウントし、それに応じて高いカバレッジに起因して検出されるように見えた読み込みます。この効果は、予測インデル(B)にも見えました。 15から変更された。 このの拡大版をご覧になるにはこちらをクリックしてください。図。
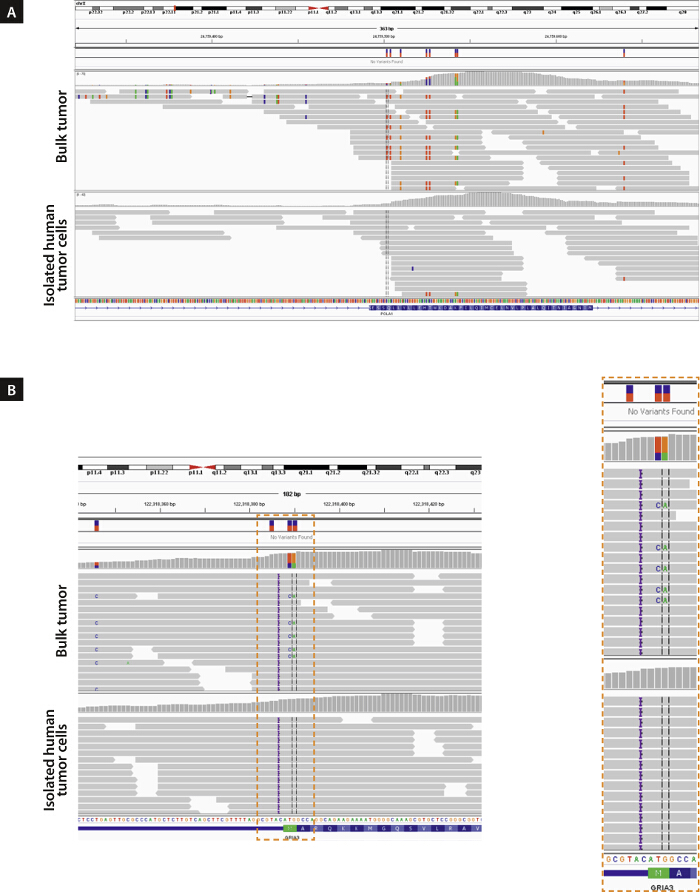
図8. MCDは、耐衝撃性の予測のSNP 15を向上させます 。19が例示されているPOLA1遺伝子のタンパク質コードエクソン内のSNP予測に関するMCDの(A)の影響。誤ってマッピングされたマウスは、バルク腎臓癌異種移植片で誤って予測されたSNPの数を引き起こし読み取りながら、これらのSNPは、MCD後に欠落していました。また、MCDもインパクトのあるSNPの予測を改善しました。例えば、マウスは、バルク腫瘍サンプル中のヒト参照ゲノムにマッピングされた読み取りGRIA3遺伝子(B)の開始コドンの誤って予測された破壊をもたらしました。 15から変更された。 この図の拡大版をご覧になるにはこちらをクリックしてください。
キープtogether.withinページ= "1">:FO S = "jove_content" 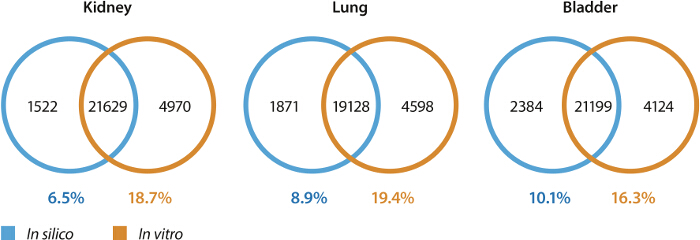
マウス由来の シリコ枯渇 図9は、 完全に私 のnインビトロ MCD 15を 交換することはできません読み込み ザは、計算配列データから削除されたマウス由来のものであると予測読み込み、およびSNPの呼び出しを繰り返しました。このアプローチにより、SNPの数はかなりのSNP( 図8と比較)の総数の8.5%に63%から低下したバルク腫瘍サンプルについて予測しました。しかし、これはシリコアプローチで完全に改善されたサンプルの品質とリードカウントとカバレッジの同時増加が考慮されている場合は特に、 生体外 MCD に置き換えることができませんでした。 15から変更されました。"_blank">この図の拡大版をご覧になるにはこちらをクリックしてください。
ディスカッション
私たちは、異種移植された腫瘍組織からそのままヒト腫瘍細胞を単離するための迅速かつ簡単な方法を開発しました。この手順は、自動化された組織の解離及び磁気細胞選別を組み合わせて、マウス由来の細胞の総合的な枯渇に基づいています。すべてのマウス細胞の枯渇に加えても、死細胞及びデブリの量が有意に標的細胞画分において減少します。まとめると、この方法は、かなり分子下流の分析およびヒト腫瘍細胞の培養を向上させます。
別の方法とは対照的に、腫瘍細胞特異的マーカー、マウス細胞またはアルゴリズムの確立の様々な組成の調整の知識を必要としません。提示された方法は、マウス株および腫瘍タイプとは無関係です。したがって、EpCAMの11のために示されるように、表情が変化してもよい単一のヒト特異的なマーカーに基づいて、ヒト腫瘍亜集団の分離を流れるバイアスは、回避されエド。さらに、それは、腫瘍の材料に限定されず、マウス細胞ではなく、特定のヒト腫瘍亜集団を標的とするように異種移植組織の任意の種類のために使用することができる(データは示さず)。
マウス細胞の総合的な除去は、排他的にマウス起源の細胞上に発現される表面エピトープを標的化することによって促進されます。別にこの研究で提示された腫瘍の解離のためのよく確立された方法から、酵素の種類を使用する多くの手順があります。細胞表面エピトープの保存は、この新規な方法のためだけでなく、ヒト腫瘍細胞集団の正確な分析のための前提条件です。したがって、穏やかな酵素が腫瘍組織の消化のために使用されることが重要です。従って、マウス細胞の枯渇は、明らかに、マウス細胞枯渇手順中に標的エピトープに影響しない酵素消化手順と組み合わせて使用することができます。疑わしい場合には、これは、それぞれの製造業者によって確認することができます。
この方法はまた、ヒトの循環腫瘍細胞(CTCの)で動作します。しかしながら、標的細胞の頻度が通常であるため、<マウス細胞の0.1%の除去がさらに期待できない赤血球溶解および50%以上の純度を必要とします。この場合には、マウス細胞の枯渇は、陽性のマーカーを用いて濃縮、続いてCTCの前濃縮のように使用することができる(データは示さず)。マウス細胞の除去は著しくマウス線維芽細胞の培養の過剰増殖を回避することによって、ヒト腫瘍細胞の培養を向上させます。また、次世代シークエンシングによりヒト腫瘍異種移植片の分析は、有意に改善され、標準化されています。標的ヒト配列特異的選択はexome濃縮中に行われたが、この効果が観察されたように、全ゲノムおよび全トランスクリプトーム配列決定への影響はより一層顕著であると予想されます。
また、提示された方法は、ACCURAを容易に異種移植ヒト腫瘍内の腫瘍亜集団のTE分子的研究。その後、二つの異なる亜集団でヒト腫瘍細胞を選別する最初のステップでそれぞれのサンプルからのマウス細胞の除去とは、人間のバルク腫瘍細胞20への関心の腫瘍亜集団の直接の分子比較を可能にします。それは、マウス由来の分子の交差ハイブリダイゼーションに影響されないように、腫瘍細胞サブタイプの間で異なる遺伝子発現をより確実に評価することができます。
開示事項
David Agorku、Stefan Tomiuk、Stefan Wild、Silvia Rüberg、Lisa Zatrieb、Andreas Bosio、Olaf Hardtは、ドイツのMiltenyi Biotec GmbHの従業員であるか、かつての従業員です。Kerstin Klingner と Julia Schüler は、ドイツの Oncotest GmbH の従業員です。
謝辞
私たちは、Janina Kuhl氏、Nadine Chelius氏、Petra Kussmann氏、Lena Willnow氏、Dorothee Lenhard氏の優れた技術支援に感謝しています。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 腫瘍解離キット、ヒト | Miltenyi Biotec | 130-095-929 | には酵素 H、R および A が含まれています。再構成手順についてはデータシートを参照してください |
| RPMI 1640 | Biowest | L0501-500 | |
| gentleMACS C-Tubes | Miltenyi Biotec | 130-096-334 | |
| gentleMACS Octo Dissociator with | Heaters Miltenyi Biotec | 130-096-427 | |
| MACS SmartStrainer(70 & マイクロ;m) | Miltenyi Biotec | 130-098-462 | |
| ペトリ皿 100 mm | 各種 | ||
| メス | 各種 | ||
| マウス細胞枯渇キット | Miltenyi Biotec | 130-104-694 | |
| PBS | 各種 | 使用 PEBバッファー用 1x PBS | |
| EDTA | Sigma-Aldrich | 3610 | PEBバッファー中の最終濃度2 mMを使用 |
| BSA | Miltenyi Biotec | 130-091-376 | または PEB バッファーに 5 mg/L BSA を使用 |
| MACS LS カラム | Miltenyi Biotec | 130-042-401 | |
| QuadroMACS セパレーター | Miltenyi Biotec | 130-090-976 | |
| MACS MultiStand | Miltenyi Biotec | 130-042-303 | |
| PreSep フィルター (70 & micro;m) | Miltenyi Biotec | 130-095-823 | |
| MACSmix チューブ ローテーター | Miltenyi Biotec | 130-090-753 | |
| CD326-FITC、ヒト | Miltenyi Biotec | 130-080-301 | 免疫蛍光染色に 1:40 を使用 |
| 抗ビメンチン抗体 | abcam | ab92547 | |
| ヤギ-抗マウス IgG-Alexa488 | Life Technologies | A11029 | |
| ヤギ-抗ウサギ IgG-Alexa594 | Life Technologies | A11012 | |
| DAPI | Sigma-Aldrich | D9542 | 0.1 & マイクロの最終濃度に希釈;0.1 M重炭酸ナトリウム中のg / ml |
| インサイドステインキット | Miltenyi Biotec | 130-090-477 | このキットのInsideFixは、免疫蛍光染色中の固定ステップに使用できます |
| FBS | 各種 | ||
| トリトンX-100 | Sigma-Aldrich | 93418 | |
| FcR ブロッキング試薬、マウス | Miltenyi Biotec | 130-092-575 | |
| ゼラチン | Sigma-Aldrich | G2500-100G | |
| Nextera ラピッド キャプチャ エンリッチメント キット | Illumina | FC-140-1000 | |
| MiSeq 試薬キット v3 | Illumina | MS-102-3001 |
参考文献
- Daniel, V. C., et al. A primary xenograft model of small-cell lung cancer reveals irreversible changes in gene expression imposed by culture in vitro. Cancer Res. 69 (8), 3364-3373 (2009).
- Tentler, J. J., et al. Patient-derived tumour xenografts as models for oncology drug development. Nat Rev Clin Oncol. 9 (6), 338-350 (2012).
- DeRose, Y. S., et al. Tumor grafts derived from women with breast cancer authentically reflect tumor pathology, growth, metastasis and disease outcomes. Nat Med. 17 (11), 1514-1520 (2011).
- Siolas, D., Hannon, G. J. Patient-derived tumor xenografts: transforming clinical samples into mouse models. Cancer Res. 73 (17), 5315-5319 (2013).
- Wong, S. Q., et al. Targeted-capture massively-parallel sequencing enables robust detection of clinically informative mutations from formalin-fixed tumours. Sci Rep. 3, 3494(2013).
- Sausville, E. A., Burger, A. M. Contributions of human tumor xenografts to anticancer drug development. Cancer Res. 66 (7), 3351-3354 (2006).
- Rubio-Viqueira, B., Hidalgo, M. Direct in vivo xenograft tumor model for predicting chemotherapeutic drug response in cancer patients. Clin Pharmacol Ther. 85 (2), 217-221 (2009).
- Reubinoff, B. E., Pera, M. F., Fong, C. Y., Trounson, A., Bongso, A. Embryonic stem cell lines from human blastocysts: somatic differentiation in vitro. Nat Biotechnol. 18 (4), 399-404 (2000).
- Merk, J., Rolff, J., Becker, M., Leschber, G., Fichtner, I. Patient-derived xenografts of non-small-cell lung cancer: a pre-clinical model to evaluate adjuvant chemotherapy. Eur J Cardiothorac Surg. 36 (3), 454-459 (2009).
- Baiocchi, M., Biffoni, M., Ricci-Vitiani, L., Pilozzi, E., De Maria, R. New models for cancer research: human cancer stem cell xenografts. Curr Opin Pharmacol. 10 (4), 380-384 (2010).
- Gires, O., Stoecklein, N. H. Dynamic EpCAM expression on circulating and disseminating tumor cells: causes and consequences. Cell Mol Life Sci. 71 (22), 4393-4402 (2014).
- Zhang, C. C., et al. Synergistic effect of the gamma-secretase inhibitor PF-03084014 and docetaxel in breast cancer models. Stem Cells Transl Med. 2 (3), 233-242 (2013).
- Boven, E., et al. Phase II preclinical drug screening in human tumor xenografts: a first European multicenter collaborative study. Cancer Res. 52 (21), 5940-5947 (1992).
- Agorku, D., Hardt, O., Bosio, A. Depletion of mouse cells from human tumor xenografts significantly reduces bias in molecular analysis and improves culture of target cells. Abstract 95. , AACR. (2014).
- Agorku, D., et al. Next-generation sequencing of human tumor xenografts is significantly improved by prior depletion of mouse cells. Abstract 1455. , AACR. (2015).
- Bolger, A. M., Lohse, M., Usadel, B. Trimmomatic: a flexible trimmer for Illumina sequence data. Bioinformatics. 30 (15), 2114-2120 (2014).
- Li, H., Durbin, R. Fast and accurate short read alignment with Burrows-Wheeler transform. Bioinformatics. 25 (14), 1754-1760 (2009).
- Koboldt, D. C., Larson, D. E., Wilson, R. K. Using VarScan 2 for Germline Variant Calling and Somatic Mutation Detection. Curr Protoc Bioinformatics. 44, (2013).
- Robinson, J. T., et al. Integrative genomics viewer. Nat Biotechnol. 29 (1), 24-26 (2011).
- Aloia, A., et al. The sialyl-glycolipid stage-specific embryonic antigen 4 marks a subpopulation of chemotherapy-resistant breast cancer cells with mesenchymal features. Breast Cancer Res. 17 (1), 146(2015).
再版と許可
