本レビューは、CIPNの病因機理における一時受容体電位アンキリン1(TRPA1)のメカニズム的役割を探り、免疫調節および抗炎症介入の治療標的としての潜在能力を評価することを目的としています。
この記事について
サマリー
要約
化学療法誘発性末梢神経障害(CIPN)は、化学療法薬が末梢神経系を損傷することで発症する一般的かつ重篤な臨床状態であり、通常は遠位肢の異常な痛みや冷熱刺激に対する感受性の増加を特徴とします。しかし、CIPNの臨床治療法はほとんど存在しないため、効果的な治療法を特定することが極めて重要です。一時性受容体電位アンキリン1(TRPA1)は損傷受容体であり、CIPNの病因および進行過程において酸化ストレス、炎症性メディエーター、低体温状態によって活性化されることがあります。TRPA1は下流の炎症経路を調節し、炎症因子や神経ペプチドの放出を促進し、免疫調節を異常に起こし、それが神経原性炎症反応と痛みのシグナル伝達を引き起こします。本研究では、TRPA1がCIPNの病因に果たす役割を検証し、TRPA1を標的に神経炎症を抑制してCIPNを治療する可能性を検証し、TRPA1のアンタゴニストや自然ハーブを臨床治療に用いる可能性を探ります。
概要
がんは依然として主要な公衆衛生上の課題の一つです。化学療法はがん生存率の向上に重要な役割を果たしますが、しばしば重篤な副作用を伴うことが多く、CIPNは最も一般的で複雑な合併症の一つです。CIPNは臨床的に、末端における対称的な痛み、感覚異常、冷や熱に対する異常な感受性を特徴とし、一部の患者は微細運動協調の障害も経験することがあります。報告されているCIPNの発生率は大きく異なり、約50%から90%の範囲で、約30%〜40%の症例が慢性神経合併症に進行する可能性があり、患者の生活の質や治療遵守率が著しく低下します。CIPN発症リスクは、投与方法(単回投与、累積用量、治療期間)、併用薬、年齢、貧血、高いBMI、および既存の神経障害2,4,5など複数の要因によって影響を受けます。神経毒性の度合いは異なると報告されている抗腫瘍薬には、プラチナ系化合物、タキサン系、ビンカアルカロイド、プロテアソーム阻害剤(ボルテゾミブなど)、エピジェネティックまたは免疫調節薬(タリドマイドやレナリドマイドなど)、微小管阻害剤(エリブリンなど)などがあります6。
現在、CIPNの管理に関する薬理学的選択肢は限られています。米国臨床腫瘍学会(ASCO)は、CIPN治療に対してエビデンスに基づく唯一の薬理学的介入としてデュロキセチンを推奨しています。臨床研究では、デュロキセチンがCIPN関連の痛みの緩和に効果的であることが示されており、その治療効果は特にプラチナ系化学療法薬、特にオキサリプラチン(OXA)による神経障害で顕著に現れます。一方、タキサン系やビンカアルカロイドなど他の薬剤によるCIPNの有効性は研究間でよりばらつきがあるようです7.鎮痛効果が証明されているにもかかわらず、デュロキセチンの全体的な臨床的利益は中程度であり、主に症状緩和に寄与し、CIPNの予防や基礎的な病理的変化の逆転には寄与しません。さらに、デュロキセチンは一般的に良好に耐えられますが、治療には疲労感、不眠、吐き気などの軽度から中等度の副作用が伴うことがあり、一部の患者では長期的な服用が制限されることがあります。ガバペンチンやプレガバリンなどの他の一般的な薬剤も症状管理に用いられていますが、CIPN 8,9では治療効果が一貫性に欠ける、または満足のいくものではありません。したがって、より効果的な予防戦略の開発とCIPNの新規治療標的の特定が緊急に求められています。
近年、CIPNの病因の理解が深まるにつれて、炎症反応、酸化ストレス、神経可塑性の変化などの複数のメカニズムが徐々に注目を集めています。これらの中でも、酸化ストレスと神経炎症がCIPNにおける神経損傷の開始および進行に中心的な要因と考えられています。重要なのは、TRPA1チャネルは感覚ニューロンで豊富に発現する酸化還元感受性イオンチャネルであり、酸化ストレスと炎症シグナル伝達を神経細胞の過興奮性および痛み過敏症に結びつける重要な分子媒介子として浮上していることです13,14。主に有害な熱を感知するTRPV1や、冷刺激を感知するTRPM8とは異なり、TRPA1は4-ヒドロキシノネナール(4-HNE)15などのさまざまな酸化性および求電子代謝物に対して高い感度を持つことが特徴です。TRPA1の活性化は通常、重要なシステイン残基16の共有結合修飾を伴います。これはTRPA1が化学療法による酸化ストレスおよび脂質過酸化ストレスと痛みの過敏症の発症を結ぶ重要な分子架け橋として位置づける独特のメカニズムです。さらに、複数の動物実験でTRPA1が化学療法誘発性神経障害性疼痛に機能的に関与していることが示されています。特に、OXA誘発性神経障害モデルにおいて、TRPA1の遺伝子アブレーションまたは薬理学的遮断は寒冷および機械的異痛症を著しく緩和し、TRPA1がCIPNの病因に重要な役割を果たしていることを示しています。
具体的には、TRPA1は末梢の侵害受容ニューロンで高発現する酸化還元感受性イオンチャネルです。化学療法薬はしばしばミトコンドリア機能障害、酸化ストレス、神経細胞内の脂質過酸化を引き起こし、活性酸素種(ROS)や4-HNEなどの脂質過酸化生成物の過剰蓄積を引き起こします。これらの反応性分子はTRPA1の主要なシステイン残基を共有結合的に修飾したり、活性化閾値を変化させたりして、チャネル開放、Ca²/への流入、神経細胞の脱分極を引き起こし、痛み伝達と炎症性シグナル伝達を増幅します19,20,21。先行の研究では、TRPA1が冷気に敏感であり、内因性炎症性メディエーターによって活性化されることが示されており、これが寒さ誘発性の痛み過敏症の発症に寄与していることが示されています。さらに、TRPA1は細胞の酸化還元状態によって活性が調節される機械感受性イオンチャネルとして機能し、異常な機械的疼痛や過敏症に関与することが示されています22,23。ニューロン以外にも、TRPA1は複数の免疫細胞タイプでも発現し、その活性化によってサイトカイン放出や炎症カスケードが調節され、末梢神経炎症をさらに増幅します。総じて、TRPA1の冷さ感受性、機械感受性、酸化還元応答性は、化学療法誘発性の酸化ストレスとその後の病理的疼痛過程との明確なメカニズム関連を確立し、CIPNの開始と維持に寄与しています。したがって、TRPA1を標的として酸化ストレスと神経炎症毒性の悪循環を断ち切ることは、化学療法による末梢神経障害性疼痛の管理における有望な治療戦略となり得ます。既存の研究では、TRPA1を標的とした介入戦略が複数のモデルシステムで検証されています。in vitroでは、DRGニューロン培養とカルシウムイメージングを組み合わせてTRPA1活性化が化学療法誘発性の神経興奮性に与える影響を検証するために一般的に用いられています。生体内では、CIPNは通常、OXA、パクリタキセル、ボルテゾミブを用いて齧歯類に誘導され、その後TRPA1の薬理学的または遺伝的阻害、さらに冷や機械的過敏症などの行動評価が行われます17,26,27。治療レベルでは、TRPA1 アンタゴニストは前臨床モデルにおいて神経障害性疼痛の緩和に有効性を示している28,29。これらの発見は総合的に、TRPA1をCIPNの治療戦略として標的としたトランスレーショナル研究の確固たる実験的基盤を提供します。
現在の研究では、TRPA1とCIPNの関連の可能性がすでに明らかになっています。しかし、これらの研究は主にTRPA1が痛み信号伝達に直接与える影響や炎症反応における局所的な役割に焦点を当てています。しかしながら、TRPA1がCIPN全体の病理過程に影響を与える免疫応答を調節するメカニズムについての体系的な研究や詳細な探求は依然として不足しています。したがって、本稿ではCIPNの潜在的なメカニズムを論じ、CIPNの病因におけるTRPA1の役割の探求に焦点を当てます。TRPA1 アンタゴニストおよび天然ハーブに関する現在の研究状況もまとめ、CIPN 治療におけるTRPA1阻害による抗炎症免疫効果の実現可能性を検証しています。本論文の革新は、TRPA1がCIPNの病因に果たす役割を免疫調節の観点から体系的に研究し、従来の神経細胞や局所炎症への影響に限定されていた研究の限界を克服することにあります。さらに、CIPN治療薬の開発に新たな標的と理論的支援を提供し、科学的意義と臨床応用価値も高く評価しています。
レビューと展望
1. CIPNの潜在的なメカニズム
CIPNの病因機構は複雑で、化学療法薬によるミトコンドリア機能障害、酸化ストレス、免疫系異常、イオンチャネル調節障害、背根神経節(DRG)ニューロン損傷、および神経細胞骨格の障害と関連しています。38、39、40、41、42。表1はCIPNに関与する特定の病原性メカニズムの概要を示しています。
- ミトコンドリア機能障害と酸化ストレス
化学療法薬はミトコンドリアの形態変化、生体エネルギーの乱れ、過剰なROS産生を引き起こし、ミトコンドリア構造障害、機能障害、酸化ストレスを引き起こします(12,43)。これらのイベントは免疫細胞を活性化し、炎症性サイトカインレベルを上昇させ、炎症性シグナル伝達経路を刺激し、最終的にCIPNの発症に寄与します。具体的には、プラチナ系化学療法薬はプラチナ-DNA付加物を形成し、DRGに蓄積して核DNA(nDNA)およびミトコンドリアDNA(mtDNA)に結合します。これにより架橋が促進され、核DNAの構造と合成が変化し、DNA/ミトコンドリアの損傷を誘発し、ROS産生を促進し、損傷受容体関連チャネルを活性化し、神経細胞のアポトーシスを誘導します。また、OXAがアストロサイトを活性化し、ミトゲン活性化タンパク質キナーゼ(MAPK)経路における炎症促進シトカインのアップレギュレーションによって神経障害性痛みを誘発するという証拠もあります。
プラチナ系化合物に加え、他の化学療法薬も多様なメカニズムを通じてミトコンドリアの完全性を損なうことがあります。パクリタキセルは軸索輸送およびミトコンドリア輸送の両方に干渉し、ミトコンドリア透過性遷移孔(mPTP)の開放を引き起こします。この出来事はミトコンドリア膜電位の喪失、過剰なROS生成、ATP枯渇、カルシウム排出、ミトコンドリア腫腫を引き起こします。一方、ボルテゾミブはプロテアソーム活性を阻害し、細胞のタンパク質恒常性を乱すことで、ミトコンドリアの構造損傷や機能障害を引き起こします。これらの変化は、ミトコンドリアの腫大と液圧化、カルシウム調節障害、呼吸鎖の抑制、ATP産生の減少、ROSの蓄積として現れます。さらに、ビンクリスチン(VCR)は微小管重合を阻害し、軸索に沿ったミトコンドリア輸送を妨げ、その結果膜電位の低下、カルシウム恒常性の乱、異常な神経反応性を引き起こします。これらの薬剤は、化学療法薬の神経毒性作用におけるミトコンドリア機能障害の中心的役割を強調しています 41,44,45,46,47。
同様に、ミトコンドリア機能障害は炎症促進シグナルの中心的な調節因子として機能し、炎症はミトコンドリア損傷を悪化させ、神経毒性の悪循環を生み出します30,31。特に、この過程で生成されたROSは、酸化還元感受性イオンチャネルTRPA1を直接活性化し、カルシウム流入、神経の過剰興奮性、そして風邪や機械的異痛症などの特徴的なCIPN関連症状を誘発します。したがって、酸化ストレスはミトコンドリア損傷、TRPA1活性化、CIPNの病因を結びつける重要な枢紐として機能します。図1は、ミトコンドリア機能障害と酸化ストレスがCIPNの発生にどのように寄与するかのメカニズムを示しています。 - 免疫系の異常
- 神経免疫相互作用
神経免疫相互作用はCIPNの発症と持続において重要な役割を果たします。増え続ける証拠は、神経系と免疫系間のコミュニケーションがその病因に大きく寄与していることを示唆しています。化学療法薬は細胞ストレスや軸索損傷を誘発し、マクロファージやグリア細胞にToll様受容体4(TLR4)シグナルを活性化する損傷関連分子パターン(DAMP)を放出します。この活性化はM1マクロファージの分極を促進し、CCL2やCXCL10などのケモカインの分泌を促進し、CD4+およびCD8+ Tリンパ球およびB細胞をDRGに誘導し、抗炎症T細胞の数を減少させます(48,49,50,51)です。好中球は化学療法の細胞毒性に非常に敏感であり全身性好中球減少症を引き起こしますが、いくつかの研究では化学療法誘発性神経障害時の末梢神経系およびDRGにおける好中球の活性化と浸潤の増加が報告されています32。肥満細胞(MCs)は免疫細胞を動員し、さまざまな炎症性サイトカインを放出することで炎症促進反応をさらに調節します。さらに、炎症促進サイトカインはナチュラルキラー(NK)細胞の活性を抑制し、神経炎症や酸化ストレスを悪化させ、CIPNの進行を促進する52。
化学療法薬は、感覚ニューロンにおける免疫および神経機能に関連する遺伝子の発現を変化させることもあります。例えば、VCRは活性化転写因子3(Atf3)とニューロテンシン(Nts)の発現をアップレギュレートし、ケモカイン放出を調節し、免疫細胞のDRGへのリクルートを促進し、それが神経炎症反応に影響を与えます。OXAはプロスタグランジン-H2D- 異性化酵素(Ptgds)および小核小体RNA宿主遺伝子1(Snhg1)の発現を調節し、これらは炎症メディエーターの合成や神経可塑性の調節に関与し、神経の興奮性や痛み信号伝達に影響を与えます。対照的に、シスプラチン(CDDP)はリポカリン-2(Lcn2)および亜鉛フィンガーホメオボックス2(Zfhx2)の発現を変化させ、神経の代謝恒常性と転写調節を妨げ、その結果として神経炎症や神経機能障害を促進します53。これらの遺伝子発現プロファイルの化学療法ストレス下での異常な調整は、CIPNの病因発生過程における神経損傷と免疫活性化の複雑な相互作用を明らかにします。
さらに、TRPA1は感覚ニューロンだけでなく、マクロファージやMCなどの免疫細胞でも発現し、炎症促進サイトカインの放出を媒介します。このTRPA1の二重神経および免疫発現は、CIPNの神経免疫のクロストークと炎症を駆動する重要な分子連結として機能する可能性があります。 - 神経炎症の悪化
化学療法薬は、DRGのサテライトグリア細胞(SGC)、脊髄のミクログリアおよびアストロサイト、軸索のシュワン細胞54の活性化および免疫メディエーター分泌を調節します。免疫細胞の活性化は、腫瘍壊死因子α(TNF-α)、インターロイキン1ベータ(IL-1β)、インターロイキン6(IL-6)、インターロイキン8(IL-8)、インターロイキン20(IL-20)などの炎症促進サイトカインのレベルを増加させ、これらは神経炎症と神経の感作を促進します。逆に、インターロイキン10(IL-10)やインターロイキン4(IL-4)などの抗炎症サイトカインの発現は抑制され、炎症の解消を妨げます。並行して、CCL2、CXCL1、CXCL12、CX3CL1、CCL3を含むケモカインは免疫細胞のリクルートおよびグリアル・ニューロン間の相互作用に寄与しています。これらの変化は、MAPKや活性化B細胞の核因子カッパライトチェーン増強体(NF-κB)などの主要な炎症シグナル伝達経路を活性化し、サイトカイン産生と神経の過剰興奮性をさらに強化します。図2は免疫系の調節障害がCIPNを誘発するメカニズムを示しています。
重要なのは、最近の研究でTRPA1がこれらの炎症カスケードの重要な下流効果因子および増幅因子として作用することが示されていることです。炎症促進サイトカインと酸化メディエーターは感覚ニューロンのTRPA1チャネルを感作または直接活性化し、CIPN60,61における神経炎症と神経興奮性の増加および痛み過敏症を結びつけます。
- 神経免疫相互作用
- イオンチャネルの調節不全
- カリウムチャネル
化学療法薬は神経炎症反応を誘発し、Kir4.1チャネルの異常発現を引き起こし、SGCsの活性化、グリア線維酸タンパク質(GFAP)のアップレギュレーション、炎症促進サイトカイン(例:TNF-αやIL-6)の放出を促進します。これによりDRGニューロンの興奮性が悪化し、CIPN33が誘導されます。 - TRPチャンネル
TRPチャネルはCIPNに関連する炎症反応および神経障害性疼痛に関与し、化学療法による酸化ストレスによって活性化されることがあります。その中でも、主に感覚ニューロンに局在するTRPA1チャネルは、カルシトニン遺伝子関連ペプチド(CGRP)や物質P(SP)などの神経ペプチドを放出し、免疫細胞の損傷部位へのリクルートを促進することで神経原性炎症を媒介します。一方、TRPA1はグリア細胞や免疫細胞でも発現し、その活性化によって炎症促進サイトカインやケモカインが放出され、免疫細胞の動員がさらに強化され、炎症反応が増幅されます。TRPA1は神経系と免疫系の間の重要な橋渡し役を果たし、CIPNにおける炎症の強化と神経過敏症の促進に寄与しています。したがって、TRPA1のアンタゴニシストは、CGRPおよびSPの放出を阻害し、神経原性炎症と免疫細胞の動員を減少させ、炎症性サイトカインレベルを低下させることで、二重神経免疫調節を通じて痛みを緩和する可能性があります62。
Singhらは、OXA治療がラットのDRGにおいてTRPA1と共発現した一過性受容体電位バニロイド1(TRPV1)および一過性受容体電位M8(TRPM8)を増加させ、神経障害性疼痛行動の強化につながったと報告しました。特に、TRPA1とTRPV1は化学療法による痛みシグナル伝達において機能的なクロストークを共有しています。しかし、現在の臨床応用は主にTRPV1作動薬カプサイシンに焦点を当てており、これはTRPV1発現の侵害受容器を鈍感化することで神経障害性疼痛を緩和します。これはTRPA1を標的とした鎮痛戦略の今後の開発に向けた洞察を提供します。TRPA1は総合的に酸化ストレス、免疫活性化、痛みシグナル伝達の重要な統合因子として働き、CIPNにおける鎮痛および抗炎症治療の両方の有望な標的となっています。
- カリウムチャネル
- DRG神経損傷
- 直接的な神経損傷
DRGはCIPNの主な影響部位ですが、化学療法薬によって神経損傷のメカニズムは異なります。図3は、さまざまな薬剤によって誘発されるDRG神経損傷に関与する異なる経路を示しています。例えば、PTXはマクロファージのDRGへの浸潤を促進し、その結果、表皮内神経線維(IENF)の数を減少させ、CIPN35の進行を加速させます。プラチナ系の物質はDRGニューロンに蓄積し、ミトコンドリア機能障害、過剰なROS生成、神経細胞のアポトーシスを引き起こします。サリドマイドは直接的にDRG神経障害を引き起こすことがあります。さらに、いくつかの化学療法薬はナトリウム、カリウム、カルシウムイオンチャネルの発現と機能を変化させ、神経細胞の過剰興奮性を引き起こします36,37。DRG内の微小管構造の破壊は軸索輸送をさらに損ない、ウォーラー変性を引き起こし、最終的に神経線維の喪失と神経伝達の障害を引き起こします。 - 間接的な免疫介在損傷
直接的な神経毒性に加え、化学療法薬は自然免疫シグナルの活性化を通じて間接的にDRGニューロンを損傷させることもあります。これらの因子による細胞損傷はDAMPを放出し、これがTLR4や高度な糖化終末産物の受容体(RAGE)などのパターン認識受容体(PRR)を活性化します。これらの受容体の活性化は神経炎症カスケードを引き起こし、神経の興奮性を増幅させ、神経障害性疼痛を悪化させます39。これらの発見は総合的に、化学療法薬が直接的な細胞毒性機構と間接免疫介在経路の両方を通じてDRG損傷を誘発し、CIPNの発症と進行に寄与していることを示唆しています。
- 直接的な神経損傷
- 神経細胞骨格の破壊
過去の研究では、微小管脱重合がニューロンの構造的完全性を直接弱め、軸索伸長能力を損なうことが示されています。細胞骨格の分解は神経表面に不規則性を引き起こし、これらの機械的変化はCIPN40の物理的特徴となることがあります。Chineらによる別の研究では、Hsp27が軸索構造を保護することでCIPNを防げることが初めて示されました。従来の抗炎症機構とは異なり、Hsp27はアポトーシス経路の調節と細胞骨格の安定性維持を通じて神経保護効果を発揮します(46)。
ビンカアルカロイド(ビンクリスチン、VCRなど)はβチューブリン末端に特異的に結合し、紡錘体形成や軸索輸送を阻害し、微小管の脱重合や神経突起の成長に欠陥をもたらします40。これに対し、パクリタキセルは微小管を安定化させ、その脱重合を防ぎ、軸索内の電気信号伝達やミトコンドリア輸送を妨害し、末梢神経線維の脱髄を誘発します。ボルテゾミブは非プロテアソーム経路を通じて過剰な微小管重合を誘導し、神経突の伸長を阻害し、軸索変性を引き起こします。
これらの薬剤は軸索輸送障害、神経細胞アポトーシス、神経伝導の喪失を総合的に引き起こし、CIPNの病理学的基盤を形成しています。さらに、RhoA/ROCK/LIMK/コフィリンシグナル伝達経路の活性化によりアクチンフィラメントのリモデリングが阻まれ、軸索再生がさらに阻害されます63。細胞骨格の乱はミトコンドリア輸送の欠損やカルパンの活性化とも相互作用し、CIPN64の進行を加速させる凶悪な「構造-エネルギー-アポトーシス」サイクルを形成します。
2. TRPA1に関連するCIPNのメカニズム
TRPA1は、通常細胞膜内のホモテトラマーとして存在する非選択的なカチオンチャネルです。この細胞はTRPチャネルに特徴的な6つの膜貫通セグメント(S1-S6)を含みます。その中で、S1-S4は電圧センサー様ドメイン(VSLD)を形成し、S5とS6はイオンが通過する孔を形成します。これらの領域はチャネルの活性化と、痛み、熱刺激、化学刺激の感知に不可欠です。TRPA1の長N末端領域には複数のアンキリンリピートドメイン(ARD)が含まれており、これが他のタンパク質との相互作用を媒介しチャネル制御に寄与します。この領域はまた、痛みのシグナル伝達に関与するキナーゼによる調節の重要な部位でもあります。C末端ではTRP様ドメインが膜貫通領域に接続し、チャネルゲーティングにおいて中心的な役割を果たします。このドメインの移動とS5およびS6の再配列がチャネル開放とCa2+の流入の基盤となり、炎症や痛みに関与する下流のシグナル伝達経路を活性化します68,69。全体として、ARDs、膜貫通ヘリックス(S1-S6)、およびTRP様ドメインがTRPA1の活性化と痛みおよび炎症シグナル伝達における役割を決定する主要な構造的特徴です。図4はTRPA1の化学療法剤による活性化に関連する主要な構造領域を示し、表2はTRPA1に関連するCIPNのメカニズムをまとめています 61,62,70,71,72,73,74,75,76,77,78,79、80、81、82、83。
- CIPNにおけるTRPA1の酸化ストレス介在の活性化
- 酸化ストレスは抗腫瘍効果および化学療法薬の神経毒性の両方に大きく寄与しています。TRPA1は酸化還元および求電子媒介に感受性のあるイオンチャネルとして機能し、化学療法中の酸化ストレスが高まる条件下で活性化されます。酸化されたリン脂質(OxPAPC)やその他の活性酸素種(ROS)由来の求電子剤は、TRPA1のN末端ドメインのシステイン残基を共有結合修飾し、チャネルを活性化しカルシウム流入を促進します。この活性化により、神経ペプチドやCGRPやSPなどの炎症メディエーターが放出され、CIPNの病因における異常な痛み伝達や神経原性炎症を媒介します(61,70)。一方、化学療法薬による末梢炎症は感覚神経節内でROSの過剰生成と蓄積を引き起こし、TRPA1をさらに活性化・アップレギュレーションし、ROS-TRPA1正のフィードバックループを形成して炎症性および機械的過敏症を増幅させます85。
CDDP誘発性CIPNもこのメカニズムに依存しており、CDDPは口腔組織内でROS産生を促進し、TRPA1を活性化して持続的な口腔顔面痛を引き起こす86。同様に、OXAは複数の機構を通じてTRPA1活性を調節します。一方で、OXAはグルタチオン感受性機構を通じてTRPA1を直接活性化し、DRGニューロン71,87の細胞質酸性化を引き起こします。一方、OXAはプロリルヒドロキシラーゼ(PHD)を阻害し、TRPA1のN末端領域におけるプロリン残基のヒドロキシル化を防ぎ、チャネルのROS感受性を高め、冷刺激への応答性を著しく高めます。さらに、OXAはp38 MAPKシグナル伝達経路を活性化し、TRPA1を介した寒冷過敏症88をさらに促進します。
動物実験ではこれらのメカニズムを支持する強力な証拠が示されています。OXA処理済み野生型マウスでは、顕著な機械的アロディニアおよび寒冷過敏症が観察されましたが、TRPA1ノックアウトマウス89ではこれらの反応が有意に減弱されました。CIPNのゼブラフィッシュ幼虫モデルでも一貫した結果が得られ、TRPA1の活性化が酸化ストレスと痛み信号伝達を促進することでROS産生を促進し、痛み応答を維持しました90。これらの発見は総じて、TRPA1がROS感知と痛み増幅を結びつける重要な枢紐として機能し、CIPNにおける神経障害性疼痛を酸化ストレスが媒介する中心経路を形成していることを示しています。
- 酸化ストレスは抗腫瘍効果および化学療法薬の神経毒性の両方に大きく寄与しています。TRPA1は酸化還元および求電子媒介に感受性のあるイオンチャネルとして機能し、化学療法中の酸化ストレスが高まる条件下で活性化されます。酸化されたリン脂質(OxPAPC)やその他の活性酸素種(ROS)由来の求電子剤は、TRPA1のN末端ドメインのシステイン残基を共有結合修飾し、チャネルを活性化しカルシウム流入を促進します。この活性化により、神経ペプチドやCGRPやSPなどの炎症メディエーターが放出され、CIPNの病因における異常な痛み伝達や神経原性炎症を媒介します(61,70)。一方、化学療法薬による末梢炎症は感覚神経節内でROSの過剰生成と蓄積を引き起こし、TRPA1をさらに活性化・アップレギュレーションし、ROS-TRPA1正のフィードバックループを形成して炎症性および機械的過敏症を増幅させます85。
- 免疫調節と炎症性疼痛におけるTRPA1の役割
TRPA1は、末梢感覚神経系およびさまざまな免疫細胞タイプで発現する酸化還元感受性の非選択性陽イオンチャネルです。化学療法薬による酸化性、硝酸性、アルデヒドのストレス、炎症性メディエーターや電気化学刺激によって活性化され、CIPN中の炎症反応や痛み感作において重要な役割を果たします24,91,92.- TRPA1は免疫細胞介在性神経炎症を調節します
末梢神経系において、TRPA1はDRG感覚ニューロンで最もよく特徴づけられ、侵害受容の主要な媒介因子として機能します。化学療法中、ROS、活性窒素種(RNS)、アルデヒド代謝物のレベルが上昇し、主に損傷したニューロンや周囲のシュワン細胞から発生するものが、神経細胞TRPA1を直接活性化し、神経の興奮性や痛み過敏症を引き起こします93。一方、感覚ニューロンではTLR4シグナル伝達がDRGニューロンのTRPA1発現をアップリグルし、痛み過敏症を増加させることが示されています94。
ニューロン以外にも、シュワン細胞はTRPA1を発現し、酸化ストレスによって活性化されます。活性化されたシュワン細胞はROSシグナルを増幅し炎症メディエーターを放出し、「シュワン細胞-ニューロン-TRPA1」フィードバックループを形成し、神経炎症を維持しCIPN72,73の発生に寄与します。動物実験では、坐骨神経に常駐するマクロファージの枯渇がシュワン細胞TRPA1の活性化や酸化ストレスによるがん関連の痛みを著しく軽減し、シュワン細胞と骨髄細胞の相互作用を浮き彫りにしていることが示されています73。
感覚ニューロンに加え、TRPA1はマクロファージ、T細胞、NK細胞、MCsなど複数の免疫細胞集団で機能的に発現しています。化学療法中に生成されるROS、RNS、代謝物はこれらの細胞でTRPA1を活性化し、細胞タイプ91に応じて多様な免疫応答を引き起こします。マクロファージにおいて、TRPA1は炎症促進活性化を抑制し、抗炎症表現型を促進し、マクロファージの浸潤を制限することで抗炎症および組織保護効果を発揮します14,96。リンパ球では、TRPA1の活性化がT細胞の活性化およびエフェクター機能を抑制し、T細胞介在の免疫応答を負の調節します。一方、TRPA1が媒介されるCa2+の流入はNK細胞毒性を高め、神経損傷後の神経炎症反応を調節する可能性があります52,74。肥満細胞では、TRPA1の活性化がストレス誘発性の脱顆粒および炎症促進シグナル伝達に関与し、アレルギー性および神経原性炎症の増幅に寄与していることが示されています24,75。
これらの観察結果から、TRPA1はニューロン、シュワン細胞、免疫細胞をつなぐシグナル伝達ハブとして機能し、各細胞型でTRPA1の活性化が高まることがCIPNの開始と維持に寄与していることが示唆されます。 図5 は、CIPNにおけるTRPA1媒介の神経免疫クロストークおよび痛みシグナル伝達の提案されたメカニズムを示しています。 - 炎症性疼痛およびCIPN関連侵害受容におけるTRPA1
感覚神経系において、TRPA1は主にDRG、三叉神経節(TG)、迷走神経節(VG)の一次感覚ニューロンに局在しています。酸化ストレス産物、炎症性メディエーター、化学療法薬によって誘導されるタンパク質キナーゼシグナル伝達(PKA/PKC)は、TRPA1のリン酸化およびチャネル活性を増加させます26。チャネル活性化は細胞内のCa2+ の流入を増加させ、SP、ニューロキニンA(NK-A)、CRPなどの神経ペプチドの放出を引き起こし、これらは血管拡張、血漿の浸出、免疫細胞の募集を促進し、神経原性炎症と痛み感作を誘発します62。
炎症性状態下では、炎症促進サイトカイン(IL-1ファミリー、TNF-α、IL-6、IL-8)およびケモカイン(CXCL5/CXCR2)の上昇がROS産生とTRPA1活性化をさらに増強し、膜の脱分極とDRGニューロンの過興奮性を引き起こし、最終的に神経障害性疼痛に寄与します。さらに、NGFなどの炎症性メディエーターはTRPA1の発現をアップレギュレーションし、炎症と痛みを維持する正のフィードバックループを形成します。TRPA1は末梢および中枢の感作にも関与し、痛み伝達を増幅します。
さらに、TRPA1は炎症関連経路を調節することで侵害受容シグナル伝達を促進します。上調したTRPA1はCa2+の流入を増加させ、パンネキシン-1(PANX1)経路を活性化してアデノシン三リン酸(ATP)の放出を促進します。神経伝達物質として働く細胞外ATPは、痛みの過敏症にさらに寄与しています102。化学療法薬はまた、肥満細胞内のブラジキニンB2受容体および下流のPLC/PKCεシグナル伝達の活性化を通じてTRPA1を感作し、CIPN関連の痛みを悪化させることができます。逆に、ロペラミドなどのオピオイド化合物はTRPA1および電圧依存性ナトリウムチャネル(VGSC)活性を抑制し、微膠細胞活性化や酸化ストレスを抑制し、その結果CIPN104,105における痛覚過動症を緩和することが示されています。
まとめると、TRPA1はCIPNにおける酸化ストレスと炎症シグナル伝達を結びつける重要な分子標的として機能します。免疫細胞と感覚ニューロン間の双方向相互作用を調整することで、TRPA1は炎症を開始・増幅させるだけでなく、痛みを増幅させ、免疫調節、神経炎症、侵害受容過敏症の間の重要な橋渡し役を果たします。 - TRPA1を媒介するイオンチャネルクロストークとDRG神経細胞感作
TRPA1は損傷した感覚ニューロン、特にDRGで高発現し、CIPNを媒介する重要なイオンチャネルとして機能します。神経の興奮性を調整し、複数のイオンチャネルとの相互作用を通じて侵害受容信号の伝達を促進します。例えば、TRPV1の活性化はTRPA1感度を高めることがあり、両チャネルはしばしば共発現し、冷性アロドン症や機械的痛覚過敏に相乗的に寄与します76,106。さらに、TRPA1は冷気に敏感なチャネルTRPM8と補完的な機能を示します。TRPM8は25〜28°Cの範囲で無害な冷却感覚を媒介し、TRPA1は17°C以下で活性化され、強烈で有害な冷刺激を検出する役割を担います。両チャネルの異常活性化は、CIPN患者でよく見られる寒冷過敏症に関与しているとされています。化学療法による酸化ストレスやCa-2+チャネル活性の増加はTRPA1チャネルをさらに活性化し、電圧依存性Na+チャネルに依存する頻繁な活動電位発火を引き起こす(Nav1.7)78,79。さらに、Zn2+はTRPA1を直接活性化してCGRP80の放出を促進することができる一方、電圧ゲートK+チャネル(Kv7)はこの過程に負の調節効果を及ぼします。TRPA1とTRPV1、TRPM8、Ca2+、Na+、K+、Zn2+チャネルなどの他のイオンチャネルとの協働相互作用が、CIPNにおける神経の興奮性と侵害受容伝達を増幅します。
さらに、細胞内のpH恒常性はTRPA1活性を調節することができます。Na+/H+交換体1(NHE1)は細胞内のpHを調節することでTRPA1感度に影響を与えます。炎症性または化学療法による損傷条件下では、TRPA1とNHE1がDRGニューロン87,107で相互作用し、細胞内酸性化はTRPA1の応答性を高め、活動電位の頻度増加とグルタミン酸やCGRP82,83などの神経伝達物質の放出増加につながります.この過程は炎症性の痛みや冷気過敏症を引き起こし、神経炎症をさらに持続させます。逆に、DRGニューロンにおけるTRPA1の発現や機能の阻害は、侵害受容伝達および神経炎症反応を著しく減弱します108。
まとめると、TRPA1はCIPNにおける酸化ストレスとイオンチャネルシグナル伝達をつなぐ中央分子ハブとして機能します。複数のイオンチャネルと細胞内調節機構との広範なクロストークを通じて、TRPA1は感覚ニューロンの過興奮性と痛みの過敏感作を促進し、CIPN関連疼痛治療における重要な分子標的となっています。 図6 は、TRPA1がさまざまなイオンチャネルとの相互作用を通じて神経の興奮性を調節し、侵害受容シグナル伝達を増強するメカニズムを示しています。
- TRPA1は免疫細胞介在性神経炎症を調節します
3. CIPN治療におけるTRPA1標的の可能性
前節では、TRPA1が神経炎症カスケード反応を引き起こすことでCIPNを緩和する重要な標的であることを明らかにしました。TRPA1の作用機序は二つあります。一つはTRPA1が神経炎症カスケードによって直接調節され、CIPNの病理過程に参加することです。一方、TRPA1は炎症信号と相互作用し、それが神経毒性反応を媒介し、神経障害を悪化させます。したがって、TRPA1の標的阻害は酸化ストレスや神経炎症反応を軽減し、痛みのシグナル伝達を減弱し、最終的にはCIPN関連症状の改善に寄与します。 図7 は、特定のアンタゴニストまたは自然のハーブ薬によるTRPA1の阻害がCIPNに関連する神経障害性痛みを緩和する提案されたメカニズムを示しています。
- TRPA1拮抗薬
TRPA1は外因性物質(例:マスタード油やシナマルデヒド)や内因性物質(例:酸化ストレス産物や炎症性メディエーター)によって活性化され、痛み、かゆみ、炎症を引き起こすことがあります109。このため、TRPA1は痛み管理、炎症性疾患、神経疾患など幅広い応用の可能性を持つ治療標的として認識されています。したがって、TRPA1アンタゴニストの研究と開発が極めて重要です。
複数のTRPA1アンタゴニストは、CIPN109,110,111,112,113,114,115,116,117の緩和において治療的価値が示されています。主なメカニズムはTRPA1介在の酸化ストレス反応、カルシウムの流入、神経炎症シグナル伝達の抑制であり、これによりTRPA1活性に抑制作用を及ぼします。前臨床研究では、選択的TRPA1遮断薬HC-030031がOXAおよびCDDP誘発性の機械的および冷過敏症を有意に緩和しました28。一方、次世代拮抗薬であるGRC-17536およびLY-3526318は、糖尿病性神経障害、慢性咳、変形性関節症関連神経障害性疼痛に対する第II相臨床試験に進み、良好な耐容性と予備的有効性を示しました109,113。
表3は、代表的なTRPA1アンタゴニストの現状および臨床応用の概要を示しています。これらの研究は、神経障害性疼痛治療におけるTRPA1アンタゴニストの翻訳の可能性を支持する臨床的証拠を提供しています。しかし、ほとんどのTRPA1アンタゴニストは依然として低い生体利用能と潜在的なオフターゲット効果(115,118,119)により制限されており、まだCIPN特異的な臨床評価には入っていません。今後の研究は、化合物の選択性と薬剤動態特性の最適化、そしてCIPNを標的とした臨床試験の設計に焦点を当て、TRPA1阻害の治療的関連性を検証すべきです。
直接的なアンタゴニシストに加え、他の分子標的を通じたTRPA1活性の調節もCIPNで有望な見方を示しています。シグマ-1受容体はさまざまなイオンチャネルに調節機能を発揮し、シグマ-1受容体アンタゴニストはTRPA1チャネルの形質膜発現と機能を有意に阻害し、OXA誘導CIPNモデルマウス89における痛み症状の進行を防ぐことが示されています。トレビサンらの研究では、ボルテゾミブによるCIPN過敏症の症状は、TRPA1アンタゴニストHC-030031または抗酸化剤αリポ酸を化学療法120の前後に併用することで効果的に予防・緩和できることが示されました。さらに、化学療法薬による神経毒性の文脈では、TRPA1阻害剤はカルシウム依存性炎症促進シグナル伝達を減少させることで神経学的損傷を軽減することができます。
まとめると、TRPA1タゴニストは、このチャネルの機能を調節し活性を抑制するなど、CIPNの予防と治療において重要な役割を果たし、痛みの過敏症を軽減し神経損傷を緩和します。 - TRPA1活性のモジュレーターがCIPN治療の新たな選択肢として
TRPA1は神経炎症カスケード応答および神経毒性損傷を通じてCIPNの病理過程に関与しており、CIPN治療の新たな標的となる可能性があります。
複数の研究により、特定の天然ハーブおよびその有効成分がTRPA1チャネル活性の調節と密接に関連しており、抗炎症作用や鎮痛作用などの生物学的効果を示すことが示されており、CIPNの予防および治療に向けた潜在的な戦略を提供しています。例えば、リキリチンは顕著な抗炎症作用を持つことが示されています121一方、アリシンは抗酸化および抗炎症特性により鎮痛作用を示します122;両化合物はTRPA1チャネル活性の調節に関与しています。これらの発見に基づき、これらの天然化合物はTRPA1活性の調節を通じてCIPN関連の痛み知覚や神経炎症反応を緩和し、治療効果を発揮する可能性があると推測されています。さらなる研究により、メントールはTRPA1チャネルに対して双方向の調節効果を示し、低濃度ではTRPA1を活性化し、高濃度ではその活性を抑制することが明らかになりました。したがって、適切なメンソール使用はCIPN患者においてTRPA1活性を調整し、鎮痛および抗炎症効果を発揮する可能性があります123.同様に、血行を促進する温熱療法として伝統的に使われてきたシナモンには、主な有効成分としてシナマルデヒドが含まれています。LiらはシナマルデヒドがTRPA1受容体を活性化し、茶色脂肪組織の熱生成を促進し、体温維持や寒さ過敏の軽減に役立つと報告しました124.さらに、シナマルデヒドは核因子赤血球関連因子2(Nrf2)を活性化することで抗酸化反応を強化します125.総じて、メンソールは高濃度でTRPA1を阻害することで、CIPNに特徴的な機械的および冷性のアロディニアを緩和する可能性があり、一方シナマルデヒドはTRPA1活性化およびNrf2介在の抗酸化作用により、化学療法による酸化ストレスに対抗し、CIPN患者の寒さ不耐症を改善する可能性があります。さらに、ベルゲニンモノハイドレート、リグストラジン、サイコサポニン、そしてノトプテリギウム・インシサムの水抽出物は神経障害性疼痛の軽減効果が示されています126,127,128,129.
表4 TRPA1配位の自然なハーブ源と、CIPN緩和における可能なメカニズムをまとめます。これらの発見は、CIPNにおける神経毒性緩和におけるTCM成分の可能性を強調しています。さまざまな天然化合物が治療効果の可能性があるTRPA1調節因子として特定されていますが、その多くは in vitro 動物研究段階と、CIPNにおけるそれらの有効性の証拠は主に前臨床モデルから得られています。対照的に、メンソールのみが限られたヒト実証のエビデンスと継続的な臨床試験を持っています130.これらの結果は、TRPA1標的を定める天然産物がCIPN関連神経毒性の緩和に大きな可能性を示す一方で、その翻訳的可能性と治療効果を検証するためには、さらなる設計された臨床試験が必要であることを示唆しています。
植物抽出物から同定された自然のTRPA1調節因子は、痛み管理に新たな治療的視点を提供するだけでなく、CIPN治療の自然源の可能性も示唆しています。増え続ける証拠は、天然化合物がTRPA1の過剰活性化を抑制したり、チャネルに双方向の調節効果を及ぼしたりすることで、化学療法による神経毒性症状を緩和し、鎮痛と抗炎症の両方の効果を達成できることを示しています。しかし、有望な前臨床的潜在能力があるにもかかわらず、体系的な臨床検証は依然として不十分です。さらに、これらの化合物は通常、多標的および多経路の調節特性を示すため、TRPA1調節が全体的な治療効果にどの程度寄与するかを定義することが困難です。今後の研究は、自然なTRPA1モジュレーターがCIPNに影響を与える分子メカニズムの解明、TRPA1と他のイオンチャネルやシグナル伝達経路との相乗相互作用の探求、そしてその有効性と安全性を確認するためのよく設計された臨床試験の実施に焦点を当てるべきです。このような取り組みは、TRPA1標的をとする自然因子をCIPN管理の実践的な戦略に翻訳するために不可欠です。
4. 議論
国際がん研究機関(IARC)の最新統計によると、2022年には約2,000万件の新規がん症例が発生し、そのうち約50%が最終的にがんまたはその合併症で亡くなる見込みです。IARCの予測によれば、2050年には新規がん症例数が3,500万人を超える見込みです。したがって、がんは世界的に大きな公衆衛生上の懸念事項であり、世界的な疾病負担の主要な要因の一つです。がんに対する新規治療法(例:標的療法や免疫療法)は引き続き研究・開発されていますが、化学療法は依然としてがん治療において中心的な役割を果たしています。CIPNは化学療法の一般的な副作用であり、治療の経過や有効性に影響を与えます。しかし、CIPNの病因は不明ですが、ミトコンドリア機能障害、酸化ストレス、免疫系の異常、イオンチャネルの調節障害、DRGニューロン損傷に関連している可能性があります。現在、ASCOによってCIPN患者の痛み管理に推奨されているのはデュロキセチンのみです。鎮痛効果が証明されているにもかかわらず、デュロキセチンの全体的な臨床的利益は中程度であり、主に症状緩和に効果があり、CIPNの予防や基礎的な病理的変化の逆転にはあまり及ばない8。したがって、CIPNの潜在的な標的を探ることは、薬剤開発と精密治療にとって重要です。
侵害受容シグナル伝達の主要な媒介者であるTRPチャネルは、CIPN療法の開発においてますます注目を集めています。TRPチャネルの中で、TRPA1はさまざまな化学療法薬による痛み過敏症の誘発における重要な要因であると示唆されています(131)。したがって、本研究はCIPNの病因におけるTRPA1の役割に焦点を当て、図8に示されるように神経障害性疼痛を媒介するメカニズムをさらに明らかにします。このチャネルは酸化ストレスによって活性化され、異常な機械的痛みや冷感過敏症を引き起こす61,70,71であり、免疫細胞を調節して神経炎症を媒介することで炎症性の侵害受容に関与します(62,72,73,74,75)。さらに、TRPA1チャネルはTRPV1、TRPM8、そしてCa2+、Nav1.7、Zn2+、Kv7などの電圧ゲートチャネルとも相互作用します。これらの相互作用は神経障害性および炎症性疼痛反応を増幅します(76,77,78,79,80,81)。このような相乗調節は臨床上重要な意味を持ちます。TRPA1、TRPV1、TRPM8は感覚ニューロンで共発現し、互いの活性を相互に調節できるため、二重または多標的阻害剤はTRPA1単独を標的とするものよりも顕著な鎮痛効果を発揮できます。さらに、この相乗効果により、各化合物は低用量でも同等の鎮痛効果を達成できるため、潜在的な副作用を軽減します。同様に、CIPN神経毒性の標的であるDRGもTRPA1の影響を受けます。TRPA1の活性化はDRGニューロンの興奮性を高め、それがDRGからの神経伝達物質の放出を促進し、侵害受容症状に対する過敏症の増加を引き起こします82,83。結論として、TRPA1はCIPN患者の神経炎症性カスケード反応を誘発することで神経障害性疼痛を悪化させる可能性があります。したがって、TRPA1をアンタゴンすることでCIPNの炎症や痛みの症状を効果的に緩和でき、TRPA1アンタゴニストや天然ハーブの適用が重要であることも示唆されています。
TRPA1アタゴニストの有効性は動物モデルで効果的に実証されています。例えば、TRPA1 KOマウスおよびTRPA1 アンタゴニスト(例:HC-030031)の適用により、化学療法薬による神経障害性疼痛症状が有意に軽減されます86,89。しかし、CIPN患者向けの臨床試験がまだ実施されていないため、TRPA1アンタゴニストの適用には依然として限界があり、ヒトにおけるTRPA1アンタゴニストの安全性と有効性はさらなる評価と確認が必要であることが示唆されています。例えば、齧歯類とヒト間でTRPA1の発現パターンや抗毒薬に対する感受性の違いが、前臨床と臨床アウトカムの不一致を引き起こすことがあります。さらに、動物からヒトへの実験用投与量の変換も不確実であり、薬剤開発の複雑さをさらに高めています。
さらに、TRPA1がCIPNにおける治療標的として機能する正確なメカニズムはまだ完全に解明されておらず、その組織特異的役割についてはさらなる研究が必要です。TRPA1は感覚ニューロン、シュワン細胞、免疫細胞で広く発現していることから、その特異的な機能を異なる細胞文脈で明確にするのが依然として困難です。既存の研究の多くは全身性TRPA1アンタゴニストに依存しているため、観察された効果を特定の細胞区画に正確に帰属させることは困難です。感覚ニューロンで発現するTRPA1は直接侵害受容シグナル伝達を媒介するのに対し、シュワン細胞や免疫細胞のTRPA1は主に炎症や微小環境のプロセスを調節し、痛みの感受性を二次的に調節する点を強調しておくべきです。したがって、組織特異的欠失によるTRPA1の欠失は重要な機構的洞察を提供します。TRPA1の神経特異的喪失は、侵害受容体の興奮性や痛み伝達におけるTRPA1の直接的な役割を明らかにする可能性があり、一方でシュワン細胞特異的欠失はTRPA1駆動の酸化ストレスや神経神経細胞間の相互作用が持続的な神経炎症を促進する仕組みを明らかにする可能性があります。重要なのは、免疫細胞特異的TRPA1ノックアウトモデル(例:マクロファージやT細胞におけるもの)が、CIPNにおける神経免疫クロストークおよび炎症調節における免疫TRPA1シグナル伝達の寄与を定義するのに役立つことです。このようなアプローチは、組織および細胞特異的なTRPA1機能の理解を大幅に深め、より精密な治療戦略の開発を促進するでしょう。一方で、CIPN治療におけるTRPA1の多重的側面は今後さらに探求されるべきです。例えば、TRPA1が異なる化学療法薬によって誘導されるCIPNにおいて異なる機能的役割を示すかどうか、またその活性をより正確に調節して最適な治療効果を達成する方法などは、依然として重要な未解決の問題です。
この文脈で、TRPA1アンタゴニストと天然の漢方化合物や伝統中国医学の配合は有望な治療アプローチを示しています。このような併用療法は、薬物関連の毒性を減らすだけでなく、多標的の相乗効果を通じて有効性を高める可能性があります。全体として、TRPA1を抑制することで免疫応答を調節し、神経炎症カスケードを抑制することで神経毒性や神経損傷を効果的に軽減し、CIPNの臨床管理に新たな知見と戦略の可能性をもたらします。
結論
本レビューでは、TRPA1とCIPNの複雑な関係およびTRPA1の抗抗炎効果の可能性を包括的に探ります。前臨床研究では、TRPA1の薬理学的阻害や遺伝的欠失が神経炎症を抑制し、神経の興奮性を減少させ、神経毒性を軽減することで、抗炎症作用や鎮痛効果を生じさせることが示されており、CIPNの症状緩和に役立つ可能性があります。しかし、現在の研究には依然としていくつかの制限があります。今後の研究では、TRPA1がCIPNに関与する具体的な分子メカニズムをさらに探求し、標的戦略を最適化し、TRPA1 アンタゴニストの安全性と有効性を検証するための大規模な臨床試験を実施すべきです。これにより、CIPN患者に対してより正確かつ効果的な治療選択肢が提供されます。
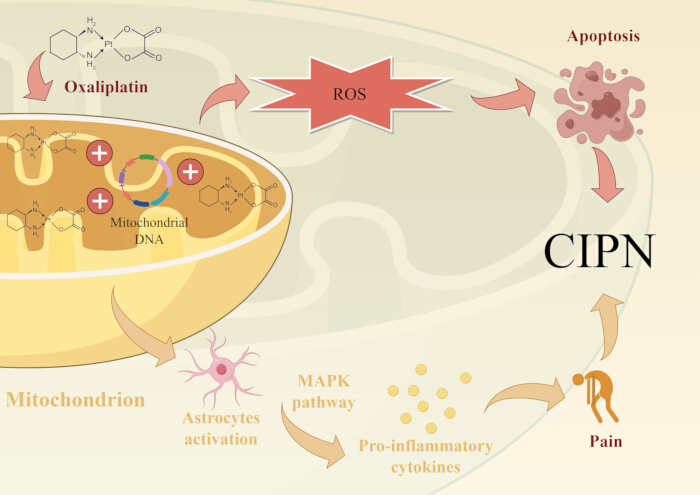
図1:ミトコンドリア機能障害と酸化ストレス誘発CIPNメカニズム。 プラチナ系化学療法薬は、DRGに蓄積されるプラチナ-DNA付加物を形成し、そこでnDNAやmtDNAに結合します。これによりDNAやミトコンドリアの損傷が誘発され、ROSの産生が促進され、神経細胞のアポトーシスが誘発されます。また、OXAがMAPK経路のアストロサイトを活性化し、炎症促進サイトカインを上位調節することで神経障害性疼痛を誘発するという証拠もあります。 この図の拡大版はこちらをクリックしてご覧ください。
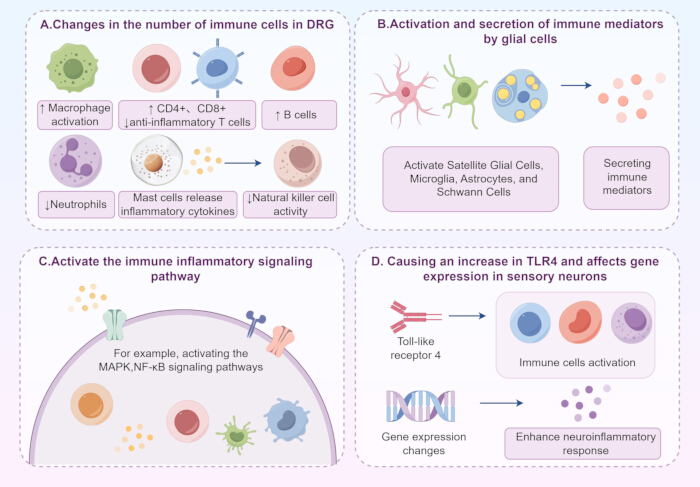
図2:免疫系の異常によるCIPN誘導のメカニズム。 (A) 化学療法薬はマクロファージの活性化、DRG内のTリンパ球(CD4+)、細胞傷害性T細胞(CD8+)、B細胞の数の増加、そして抗炎症性T細胞および好中球の数の減少をもたらします。MCはCIPNの進行に寄与し、免疫細胞を誘導し、CIPN内でさまざまな炎症性サイトカインを放出することで、NK細胞の活動を低下させ、それが神経炎症や酸化ストレスを悪化させます。(B)化学療法薬は、DRGの SGCs 、脊髄のミクログリアおよびアストロサイト、軸索のシュワン細胞からの免疫メディエーター分泌の活性化と分泌を調整し、感覚ニューロンの興奮性を高め、CIPNにおける痛み過敏症を強める。(C)MAPKやNF-κBなどの免疫炎症シグナル伝達経路の活性化も神経炎症反応の悪化に重要な役割を果たします。(D) 化学療法薬は、TLR4を増加させて関連する遺伝子調節障害を引き起こすことで免疫細胞を活性化し、神経炎症反応を活性化させることもあります。 この図の拡大版はこちらをクリックしてご覧ください。
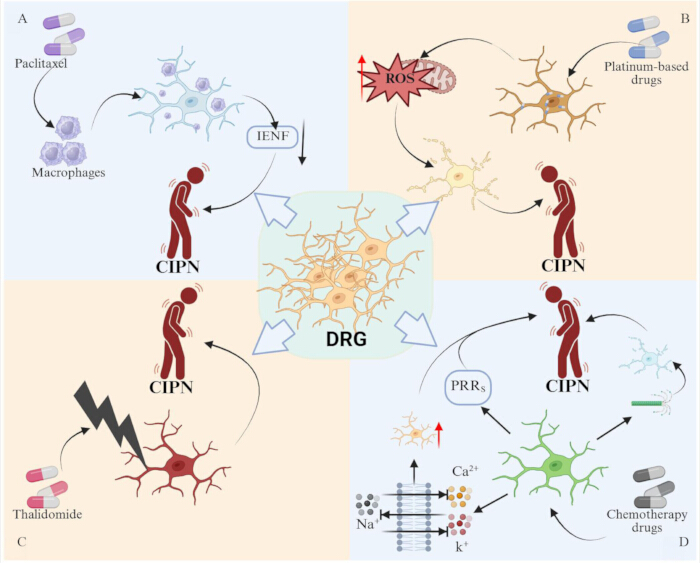
図3:DRGは化学療法薬がCIPNを誘発する主要な標的です。 (A) PTXはマクロファージのDRG浸潤を引き起こし、それがIENFの数の減少を引き起こす可能性があります。(B)プラチナ薬剤がDRGに蓄積し、ミトコンドリア機能障害とROSレベルの増加を引き起こし、それが神経細胞アポトーシスを促進します。(C)サリドマイドはDRGに直接ダメージを与える可能性があります。(D) 化学療法薬は、ナトリウム、カリウム、カルシウムイオンチャネルを変化させ、微小管構造を破壊し、PRRを活性化させることでDRGニューロンを損傷させることもあります。 この図の拡大版はこちらをクリックしてください。
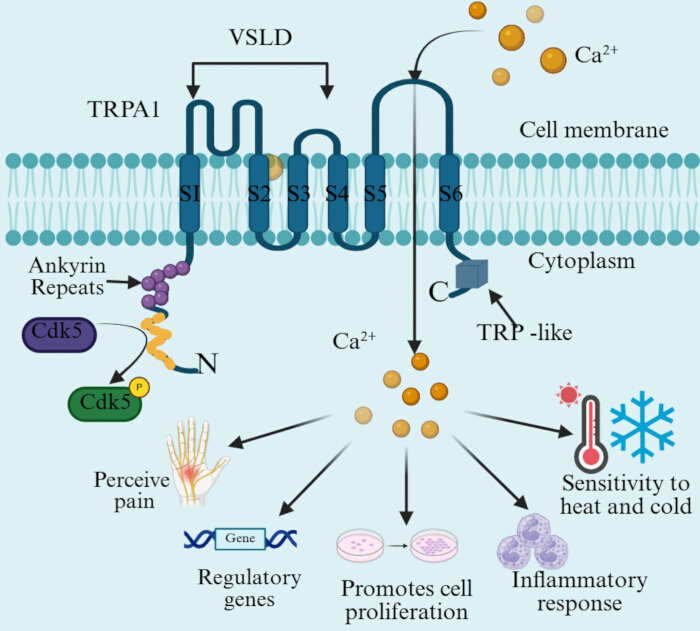
図4:TRPA1の化学療法薬による活性化に関連する主要な構造ドメイン。 TRPA1チャネルには6つの膜貫通αらせん断片(S1-S6)が含まれています。その中でS1-S4はVSLDを構成し、S5とS6は凹孔ループ構造を形成します。TRPA1チャネルのNH2端とCOOH端の両方が細胞質内に位置しています。長いNH2末端の一つにはARDとCdk5部位が含まれ、一方TRPA1のC末端はTRP様ドメインを持ち、膜貫通構造ドメインと連結しています。チャネルの活性化はCa2+ の流入を引き起こし、それが遺伝子発現の調節、細胞増殖促進、炎症反応の誘導など、一連の細胞シグナル伝達経路を誘発します。TRPA1の構造は、痛みや熱・寒さの感受性を感知する機能を決定します。 この図の拡大版はこちらをクリックしてご覧ください。
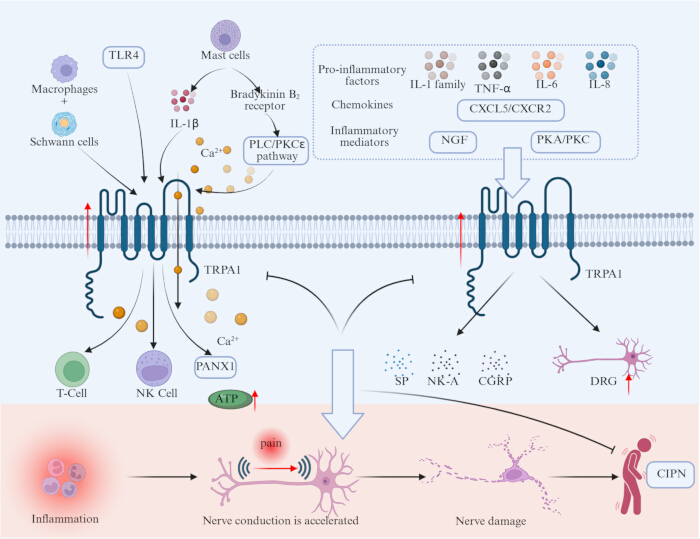
図5:TRPA1は免疫細胞介在の神経炎症性侵害受容を調節する。 免疫細胞(マクロファージ、シュワン細胞、MC)、炎症促進因子(IL-1ファミリー、TNF-α、IL-6、IL-8)、ケモカイン(CXCL5/CXCR2)、炎症メディエーター(NGF、PKA/PKC)、およびTLR4はTRPA1チャネルを活性化します。TRPA1チャネルの活性化は細胞内のCa2+ 濃度を増加させ、SP、NK-A、CGRPの放出を促進し、免疫細胞(T細胞、NK細胞)に影響を与え、炎症関連経路(PANX1経路)を調節することでDRGニューロンの興奮性を高め、神経炎症や持続的な痛みの維持につながります。 この図の拡大版はこちらをクリックしてご覧ください。
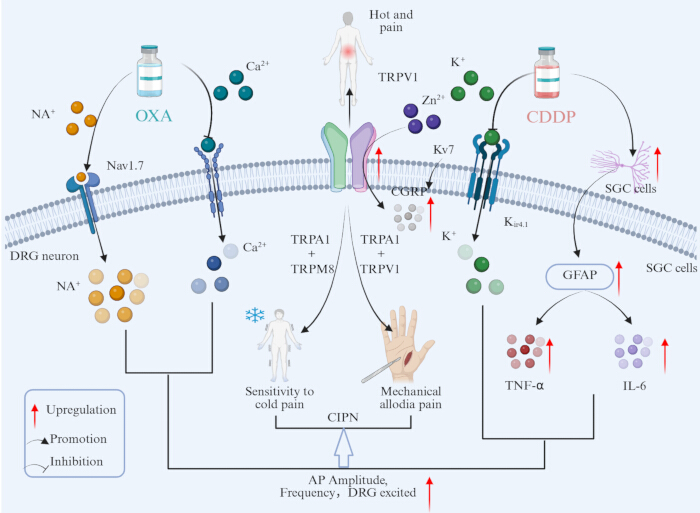
図6:TRPA1は痛みのシグナル伝達を加速するためにイオンチャネルを変調します。 TRPA1とTRPM8は寒冷過敏症に関与し、TRPA1とTRPV1は機械的異痛症に関与します。さらに、電圧依存性Ca2+、Nav1.7、Zn2+、Kv 7、Kir4.1チャネルを持つTRPA1チャネルは、炎症性メディエーター(例:CGRP、GFAP)や炎症促進因子(例:TNF-α、IL-6)の放出を促進し、DRGニューロンの過興奮性を引き起こし、これが神経障害性および炎症性疼痛の悪化に相乗効果を発揮します。 この図の拡大版はこちらをクリックしてご覧ください。
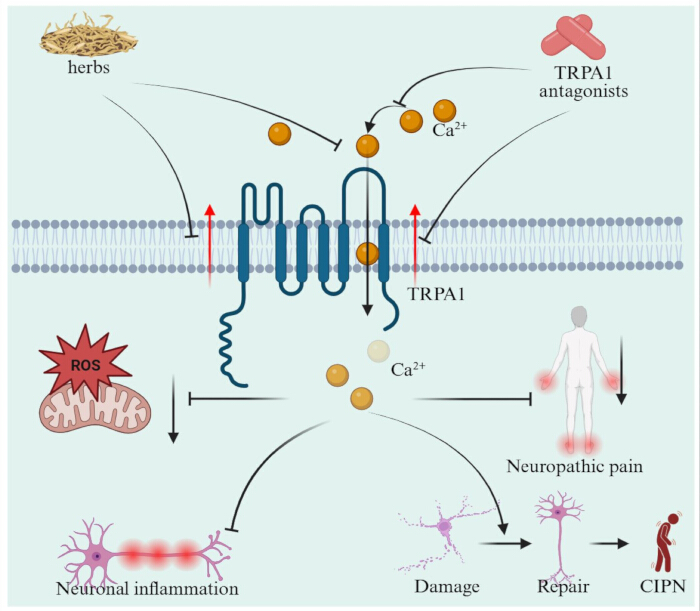
図7:CIPN治療におけるTRPA1標的の可能性。 TRPA1アンタゴニストや天然ハーブの使用はTRPA1チャネルの活性を抑制し、Ca2+ フラックスと酸化ストレスを減少させることで、神経炎症反応を抑制し神経障害性疼痛を軽減し、最終的に神経損傷を軽減しCIPN関連症状を改善します。 この図の拡大版はこちらをクリックしてご覧ください。
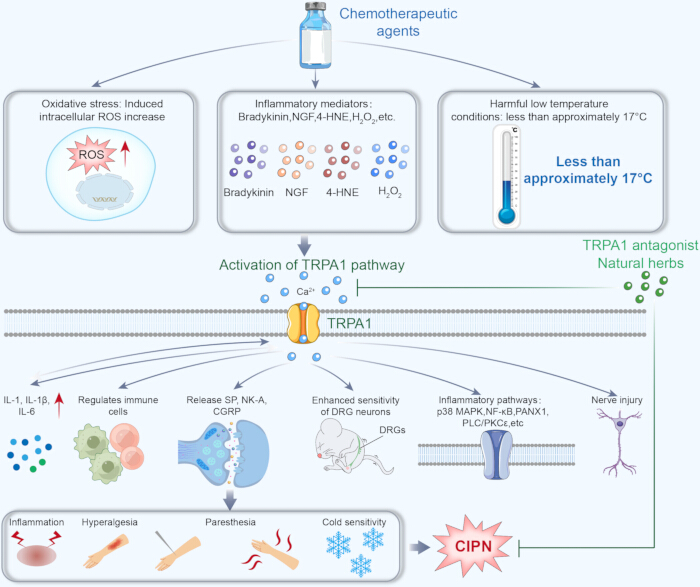
図8:TRPA1の阻害。 CIPNのための治療戦略。TRPA1の活性化はCIPNにおける炎症と過敏を促します。その抑制は、神経原性炎症、侵害受容感受性、CIPN症状の軽減につながる可能性があります。 この図の拡大版はこちらをクリックしてご覧ください。
表1:CIPNの潜在的メカニズム。化学療法薬は、ミトコンドリア機能障害や酸化ストレス、免疫系異常、イオンチャネルの調節障害、DRG神経障害、神経細胞骨格の破壊など、複数の病理経路を通じてCIPNに寄与します。これらのメカニズムが総合的に神経炎症、神経毒性、神経障害性疼痛を引き起こします。 この表をダウンロードするには、こちらをクリックしてください。
表2:TRPA1に関連するCIPNのメカニズム。TRPA1は酸化ストレス誘発の活性化、免疫調節と炎症、イオンチャネル相互作用、DRG神経障害など複数の病理学的過程を通じてCIPNに寄与します。これらのメカニズムは神経の興奮性を高め、神経障害性疼痛や過敏症を促進します。 この表をダウンロードするには、こちらをクリックしてください。
表3:代表的なTRPA1受容薬の現状および臨床適応。この表は、前臨床および臨床試験で調査された主要なTRPA1アンタゴニストの要約であり、その作用機序、治療適応、薬剤開発段階を含みます。これらの薬剤はTRPA1チャネルの活性を阻害し、CIPNやその他の病理的状態に関連する酸化ストレス、炎症、神経障害性疼痛を軽減します。 この表をダウンロードするには、こちらをクリックしてください。
表4:TRPA1配位体の自然なハーブ源およびCIPN緩和における潜在的なメカニズム。この表は、TRPA1活性を調節する代表的な天然化合物およびハーブ抽出物を、その供給源、化学的種類、実験条件、分子標的を含めてまとめたものです。これらの自然因子はTRPA1および関連するシグナル伝達経路を調節することで神経保護および抗炎症効果を発揮し、CIPNに関連する酸化ストレス、神経炎症、神経の過剰興奮性を緩和します。 この表をダウンロードするには、こちらをクリックしてください。
開示事項
開示すべき金銭的利益相反はありません。
謝辞
著者たちは、李明珠のグループの全メンバーのご支援とご協力に感謝の意を表します。本稿は中国国家自然科学基金(82104838)、中国振興基金スパークプログラム(XH-D001)、遼寧省重点研究開発プログラム(2024JH2/102500062)の支援を受けており、感謝いたします。 図1 と 図2 はFigDrawで描かれました。
参考文献
- Bray, F., et al. Global cancer statistics 2022: Globocan estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 74 (3), 229-263 (2024).
- Chinese expert consensus on the diagnosis and treatment of chemotherapy-induced peripheral neuropathy (2022 edition). Zhonghua Zhong Liu Za Zhi. 44 (9), 928-934 (2022).
- Preti, K., Davis, M. E. Chemotherapy-induced peripheral neuropathy: Assessment and treatment strategies for advanced practice providers. Clin J Oncol Nurs. 28 (4), 351-357 (2024).
- Bae, E. H., Greenwald, M. K., Schwartz, A. G. Chemotherapy-induced peripheral neuropathy: Mechanisms and therapeutic avenues. Neurotherapeutics. 18 (4), 2384-2396 (2021).
- Lemanska, A., et al. The association of clinical and patient factors with chemotherapy-induced peripheral neuropathy (CIPN) in colorectal cancer: Secondary analysis of the Scot trial. ESMO Open. 8 (6), 102063(2023).
- Loprinzi, C. L., et al. Prevention and management of chemotherapy-induced peripheral neuropathy in survivors of adult cancers: ASCO guideline update. J Clin Oncol. 38 (28), 3325-3348 (2020).
- Smith, E. M., et al. Effect of duloxetine on pain, function, and quality of life among patients with chemotherapy-induced painful peripheral neuropathy: A randomized clinical trial. Jama. 309 (13), 1359-1367 (2013).
- Jordan, B., et al. Systemic anticancer therapy-induced peripheral and central neurotoxicity: ESMO-EONS-eano clinical practice guidelines for diagnosis, prevention, treatment and follow-up. Ann Oncol. 31 (10), 1306-1319 (2020).
- Hu, S., Huang, K. M., Adams, E. J., Loprinzi, C. L., Lustberg, M. B. Recent developments of novel pharmacologic therapeutics for prevention of chemotherapy-induced peripheral neuropathy. Clin Cancer Res. 25 (21), 6295-6301 (2019).
- Chen, X., Gan, Y., Au, N. P. B., Ma, C. H. E. Current understanding of the molecular mechanisms of chemotherapy-induced peripheral neuropathy. Front Mol Neurosci. 17, 1345811(2024).
- Goel, Y., Fouda, R., Gupta, K. Endoplasmic reticulum stress in chemotherapy-induced peripheral neuropathy: Emerging role of phytochemicals. Antioxidants (Basel). 11 (2), 265(2022).
- Doyle, T. M., Salvemini, D. Mini-review: Mitochondrial dysfunction and chemotherapy-induced neuropathic pain. Neurosci Lett. 760, 136087(2021).
- Trevisan, G., et al. Trpa1 mediates trigeminal neuropathic pain in mice downstream of monocytes/macrophages and oxidative stress. Brain. 139 (Pt 5), 1361-1377 (2016).
- Yao, K., et al. Inflammation: The role of TRPA1 channel. Front Physiol. 14, 1093925(2023).
- Trevisani, M., et al. 4-hydroxynonenal, an endogenous aldehyde, causes pain and neurogenic inflammation through activation of the irritant receptor TRPA1. Proc Natl Acad Sci U S A. 104 (33), 13519-13524 (2007).
- Andersson, D. A., Gentry, C., Moss, S., Bevan, S. Transient receptor potential A1 is a sensory receptor for multiple products of oxidative stress. J Neurosci. 28 (10), 2485-2494 (2008).
- Zhao, M., et al. Acute cold hypersensitivity characteristically induced by oxaliplatin is caused by the enhanced responsiveness of TRPA1 in mice. Mol Pain. 8, 55(2012).
- Nativi, C., et al. A TRPA1 antagonist reverts oxaliplatin-induced neuropathic pain. Sci Rep. 3, 2005(2013).
- Moccia, F., Montagna, D. Transient receptor potential ankyrin 1 (TRPA1) channel as a sensor of oxidative stress in cancer cells. Cells. 12 (9), 1261(2023).
- Faris, P., et al. Transient receptor potential ankyrin 1 (TRPA1) mediates reactive oxygen species-induced Ca (2+) entry, mitochondrial dysfunction, and caspase-3/7 activation in primary cultures of metastatic colorectal carcinoma cells. Cell Death Discov. 9 (1), 213(2023).
- Bessac, B. F., et al. Trpa1 is a major oxidant sensor in murine airway sensory neurons. J Clin Invest. 118 (5), 1899-1910 (2008).
- Logashina, Y. A., Korolkova, Y. V., Kozlov, S. A., Andreev, Y. A. TRPA1 channel as a regulator of neurogenic inflammation and pain: Structure, function, role in pathophysiology, and therapeutic potential of ligands. Biochemistry (Mosc). 84 (2), 101-118 (2019).
- Moparthi, L., Zygmunt, P. M. Human TRPA1 is an inherently mechanosensitive bilayer-gated ion channel. Cell Calcium. 91, 102255(2020).
- Naert, R., López-Requena, A., Talavera, K. TRPA1 expression and pathophysiology in immune cells. Int J Mol Sci. 22 (21), 11460(2021).
- Marini, M., et al. Antinociceptive action of leonurine through TRPA1 and TRPV4 channels modulation. Br J Pharmacol. 182 (22), 5469-5488 (2025).
- Sánchez, J. C., Muñoz, L. V., Galindo-Márquez, M. L., Valencia-Vásquez, A., García, A. M. Paclitaxel regulates TRPA1 function and expression through PKA and PKC. Neurochem Res. 48 (1), 295-304 (2023).
- Li, C., Deng, T., Shang, Z., Wang, D., Xiao, Y. Blocking TRPA1 and tnf-α signal improves bortezomib-induced neuropathic pain. Cell Physiol Biochem. 51 (5), 2098-2110 (2018).
- Nassini, R., et al. Oxaliplatin elicits mechanical and cold allodynia in rodents via TRPA1 receptor stimulation. Pain. 152 (7), 1621-1631 (2011).
- Koivisto, A., Jalava, N., Bratty, R., Pertovaara, A. TRPA1 antagonists for pain relief. Pharmaceuticals (Basel). 11 (4), 117(2018).
- Areti, A., Komirishetty, P., Kalvala, A. K., Nellaiappan, K., Kumar, A. Rosmarinic acid mitigates mitochondrial dysfunction and spinal glial activation in oxaliplatin-induced peripheral neuropathy. Mol Neurobiol. 55 (9), 7463-7475 (2018).
- Xu, Z., et al. Chemotherapy for pain: Reversing inflammatory and neuropathic pain with the anticancer agent mithramycin a. Pain. 165 (1), 54-74 (2024).
- Lees, J. G., et al. Immune-mediated processes implicated in chemotherapy-induced peripheral neuropathy. Eur J Cancer. 73, 22-29 (2017).
- Leo, M., Schmitt, L. I., Kutritz, A., Kleinschnitz, C., Hagenacker, T. Cisplatin-induced activation and functional modulation of satellite glial cells lead to cytokine-mediated modulation of sensory neuron excitability. Exp Neurol. 341, 113695(2021).
- Singh, R., Adhya, P., Sharma, S. S. Redox-sensitive trp channels: A promising pharmacological target in chemotherapy-induced peripheral neuropathy. Expert Opin Ther Targets. 25 (7), 529-545 (2021).
- Zhang, H., et al. Dorsal root ganglion infiltration by macrophages contributes to paclitaxel chemotherapy-induced peripheral neuropathy. J Pain. 17 (7), 775-786 (2016).
- Omran, M., et al. Review of the role of the brain in chemotherapy-induced peripheral neuropathy. Front Mol Biosci. 8, 693133(2021).
- Boyette-Davis, J. A., Hou, S., Abdi, S., Dougherty, P. M. An updated understanding of the mechanisms involved in chemotherapy-induced neuropathy. Pain Manag. 8 (5), 363-375 (2018).
- Spera, M. C., Cesta, M. C., Zippoli, M., Varrassi, G., Allegretti, M. Emerging approaches for the management of chemotherapy-induced peripheral neuropathy (CIPN): Therapeutic potential of the C5a/C5ar axis. Pain Ther. 11 (4), 1113-1136 (2022).
- Araldi, D., et al. Role of pattern recognition receptors in chemotherapy-induced neuropathic pain. Brain. 147 (3), 1025-1042 (2024).
- Au, N. P., Fang, Y., Xi, N., Lai, K. W., Ma, C. H. Probing for chemotherapy-induced peripheral neuropathy in live dorsal root ganglion neurons with atomic force microscopy. Nanomedicine. 10 (6), 1323-1333 (2014).
- Chine, V. B., Au, N. P. B., Ma, C. H. E. Therapeutic benefits of maintaining mitochondrial integrity and calcium homeostasis by forced expression of hsp27 in chemotherapy-induced peripheral neuropathy. Neurobiol Dis. 130, 104492(2019).
- Pero, M. E., et al. Pathogenic role of delta 2 tubulin in bortezomib-induced peripheral neuropathy. Proc Natl Acad Sci U S A. 118 (4), e2012685118(2021).
- Trecarichi, A., Flatters, S. J. L. Mitochondrial dysfunction in the pathogenesis of chemotherapy-induced peripheral neuropathy. Int Rev Neurobiol. 145, 83-126 (2019).
- Canta, A., Pozzi, E., Carozzi, V. A. Mitochondrial dysfunction in chemotherapy-induced peripheral neuropathy (CIPN). Toxics. 3 (2), 198-223 (2015).
- Waseem, M., Kaushik, P., Tabassum, H., Parvez, S. Role of mitochondrial mechanism in chemotherapy-induced peripheral neuropathy. Curr Drug Metab. 19 (1), 47-54 (2018).
- Chine, V. B., Au, N. P. B., Kumar, G., Ma, C. H. E. Targeting axon integrity to prevent chemotherapy-induced peripheral neuropathy. Mol Neurobiol. 56 (5), 3244-3259 (2019).
- Zheng, H., Xiao, W. H., Bennett, G. J. Mitotoxicity and bortezomib-induced chronic painful peripheral neuropathy. Exp Neurol. 238 (2), 225-234 (2012).
- Moraes, T. R., et al. Spinal HMGB1 participates in the early stages of paclitaxel-induced neuropathic pain via microglial TLR4 and rage activation. Front Immunol. 15, 1303937(2024).
- Sekiguchi, F., Kawabata, A. Role of HMGB1 in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 22 (1), 367(2020).
- Babu, N., et al. TLR-4: A promising target for chemotherapy-induced peripheral neuropathy. Mol Biol Rep. 51 (1), 1099(2024).
- Tong, S. H., et al. Activation of TLR4/CCl2 in intact neurons drives radicular injury-induced global nerve trunk hypersensitivity in radiculopathy preclinical models. J Pain Res. 18, 3903-3918 (2025).
- Yun, H. D., Goel, Y., Gupta, K. Crosstalk of mast cells and natural killer cells with neurons in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 24 (16), 12543(2023).
- Starobova, H., Mueller, A., Deuis, J. R., Carter, D. A., Vetter, I. Inflammatory and neuropathic gene expression signatures of chemotherapy-induced neuropathy induced by vincristine, cisplatin, and oxaliplatin in C57BL/6j mice. J Pain. 21 (1-2), 182-194 (2020).
- Fumagalli, G., Monza, L., Cavaletti, G., Rigolio, R., Meregalli, C. Neuroinflammatory process involved in different preclinical models of chemotherapy-induced peripheral neuropathy. Front Immunol. 11, 626687(2020).
- Meng, J., et al. Duloxetine, a balanced serotonin-norepinephrine reuptake inhibitor, improves painful chemotherapy-induced peripheral neuropathy by inhibiting activation of p38 MAPK and nf-κb. Front Pharmacol. 10, 365(2019).
- Klein, I., Lehmann, H. C. Pathomechanisms of paclitaxel-induced peripheral neuropathy. Toxics. 9 (10), 229(2021).
- Zhou, L., et al. The therapeutic potential of chemokines in the treatment of chemotherapy- induced peripheral neuropathy. Curr Drug Targets. 21 (3), 288-301 (2020).
- Chen, L. H., et al. Targeting interleukin-20 alleviates paclitaxel-induced peripheral neuropathy. Pain. 161 (6), 1237-1254 (2020).
- Zhang, J., Ma, J., Trinh, R. T., Heijnen, C. J., Kavelaars, A. An HDAC6 inhibitor reverses chemotherapy-induced mechanical hypersensitivity via an IL-10 and macrophage-dependent pathway. Brain Behav Immun. 100, 287-296 (2022).
- Akhilesh Singh, A. K., Tiwari, V. TRPA1 siRNA-loaded nanoformulation ameliorates chemotherapy-induced peripheral neuropathy. ACS Chem Neurosci. 16 (11), 2060-2075 (2025).
- De Logu, F., et al. Oxidative stress mediates thalidomide-induced pain by targeting peripheral TRPA1 and central TRPV4. BMC Biol. 18 (1), 197(2020).
- Iannone, L. F., Nassini, R., Patacchini, R., Geppetti, P., De Logu, F. Neuronal and non-neuronal TRPA1 as therapeutic targets for pain and headache relief. Temperature (Austin). 10 (1), 50-66 (2023).
- Wang, W., Halasz, E., Townes-Anderson, E. Actin dynamics, regulated by rhoa-limk-cofilin signaling, mediates rod photoreceptor axonal retraction after retinal injury. Invest Ophthalmol Vis Sci. 60 (6), 2274-2285 (2019).
- Carozzi, V. A., Canta, A., Chiorazzi, A. Chemotherapy-induced peripheral neuropathy: What do we know about mechanisms. Neurosci Lett. 596, 90-107 (2015).
- Moparthi, L., et al. The human TRPA1 intrinsic cold and heat sensitivity involves separate channel structures beyond the N-ard domain. Nat Commun. 13 (1), 6113(2022).
- Jardín, I., et al. Trps in pain sensation. Front Physiol. 8, 392(2017).
- Sulak, M. A., Ghosh, M., Sinharoy, P., Andrei, S. R., Damron, D. S. Modulation of TRPA1 channel activity by cdk5 in sensory neurons. Channels (Austin). 12 (1), 65-75 (2018).
- Koldsø, H., Jensen, M., Jogini, V., Shaw, D. E. Functional dynamics and allosteric modulation of TRPA1. Structure. 31 (12), 1556-1566.e3 (2023).
- Wei, Y., et al. Function and therapeutic potential of transient receptor potential ankyrin 1 in fibrosis. Front Pharmacol. 13, 1014041(2022).
- Oehler, B., Brack, A., Blum, R., Rittner, H. L. Pain control by targeting oxidized phospholipids: Functions, mechanisms, perspectives. Front Endocrinol (Lausanne). 11, 613868(2020).
- Miyake, T., et al. Distinct mechanism of cysteine oxidation-dependent activation and cold sensitization of human transient receptor potential ankyrin 1 channel by high and low oxaliplatin. Front Physiol. 8, 878(2017).
- De Logu, F., et al. Macrophages and Schwann cell TRPA1 mediate chronic allodynia in a mouse model of complex regional pain syndrome type I. Brain Behav Immun. 88, 535-546 (2020).
- De Logu, F., et al. Peripheral nerve resident macrophages and Schwann cells mediate cancer-induced pain. Cancer Res. 81 (12), 3387-3401 (2021).
- Scopelliti, F., Dimartino, V., Cattani, C., Cavani, A. Functional TRPA1 channels regulate CD56 (dim)CD16(+) NK cell cytotoxicity against tumor cells. Int J Mol Sci. 24 (19), 14736(2023).
- Silverman, H. A., et al. Transient receptor potential ankyrin-1-expressing vagus nerve fibers mediate il-1β induced hypothermia and reflex anti-inflammatory responses. Mol Med. 29 (1), 4(2023).
- Wang, C., et al. TRPV1 and TRPA1 channels interact to mediate cold hyperalgesia in mice. Br J Anaesth. 131 (5), e167-e170 (2023).
- Qi, Y., et al. TRPM8 and TRPA1 are ideal targets for treating cold-induced pain. Eur J Med Chem. 282, 117043(2025).
- Sekiguchi, F., Tsubota, M., Kawabata, A. Sulfide and polysulfide as pronociceptive mediators: Focus on ca(v)3.2 function enhancement and trpa1 activation. J Pharmacol Sci. 155 (3), 113-120 (2024).
- Deng, L., et al. Nav1.7 is essential for nociceptor action potentials in the mouse in a manner independent of endogenous opioids. Neuron. 111 (17), 2642-2659.e13 (2023).
- Betrie, A. H., et al. Zinc drives vasorelaxation by acting in sensory nerves, endothelium, and smooth muscle. Nat Commun. 12 (1), 3296(2021).
- Citak, A., et al. The effects of certain TRP channels and voltage-gated KCNQ/Kv7 channel opener retigabine on calcitonin gene-related peptide release in the trigeminovascular system. Cephalalgia. 42 (13), 1375-1386 (2022).
- Wu, L. Y., et al. Deficiency of kif15 contributes to oxaliplatin-induced cold hypersensitivity by limiting annexin A2 and enhancing TRPA1 localization in DRG neuronal membrane. Neuropharmacology. 269, 110343(2025).
- Zhang, Z., et al. Action potential-independent spontaneous microdomain Ca (2+) transients-mediated continuous neurotransmission regulates hyperalgesia. Proc Natl Acad Sci U S A. 122 (3), e2406741122(2025).
- Perillo, B., et al. Ros in cancer therapy: The bright side of the moon. Exp Mol Med. 52 (2), 192-203 (2020).
- Zhang, Y., et al. Intraganglionic reactive oxygen species mediate inflammatory pain and hyperalgesia through TRPA1 in the rat. Front Pain Res (Lausanne). 4, 1204057(2023).
- Nakatomi, C., et al. Cisplatin induces TRPA1-mediated mechanical allodynia in the oral mucosa. Arch Oral Biol. 133, 105317(2022).
- Riva, B., et al. Oxaliplatin induces pH acidification in dorsal root ganglia neurons. Sci Rep. 8 (1), 15084(2018).
- Cherradi, S., et al. Improving the response to oxaliplatin by targeting chemotherapy-induced cldn1 in resistant metastatic colorectal cancer cells. Cell Biosci. 13 (1), 72(2023).
- Marcotti, A., et al. TRPA1 modulation by sigma-1 receptor prevents oxaliplatin-induced painful peripheral neuropathy. Brain. 146 (2), 475-491 (2023).
- Bellantoni, E., et al. Schwann cell transient receptor potential ankyrin 1 (TRPA1) ortholog in zebrafish larvae mediates chemotherapy-induced peripheral neuropathy. Br J Pharmacol. 181 (23), 4859-4873 (2024).
- Landini, L., et al. TRPA1 role in inflammatory disorders: What is known so far. Int J Mol Sci. 23 (9), 4529(2022).
- Szabó, K., et al. Presence of TRPA1 modifies CD4+/CD8+ t lymphocyte ratio and activation. Pharmaceuticals (Basel). 15 (1), 57(2022).
- Nassini, R., Materazzi, S., Benemei, S., Geppetti, P. The TRPA1 channel in inflammatory and neuropathic pain and migraine. Rev Physiol Biochem Pharmacol. 167, 1-43 (2014).
- Liu, X., Gong, R., Peng, L., Zhao, J. Toll-like receptor 4 signaling pathway in sensory neurons mediates remifentanil-induced postoperative hyperalgesia via transient receptor potential ankyrin 1. Mol Pain. 19, 17448069231158290(2023).
- Sahoo, S. S., et al. Transient receptor potential ankyrin1 channel is endogenously expressed in T cells and is involved in immune functions. Biosci Rep. 39 (9), BSR20191437(2019).
- Zeng, D., et al. TRPA1 deficiency alleviates inflammation of atopic dermatitis by reducing macrophage infiltration. Life Sci. 266, 118906(2021).
- Mukherjee, T., Tung, K. S., Jena, P., Goswami, C., Chattopadhyay, S. Upregulation, functional association, and correlated expressions of TRPV1 and TRPA1 during telmisartan-driven immunosuppression of T cells. Immunol Invest. 53 (4), 622-639 (2024).
- Yin, C., et al. CXCL5 activates CXCR2 in nociceptive sensory neurons to drive joint pain and inflammation in experimental gouty arthritis. Nat Commun. 15 (1), 3263(2024).
- Yin, C., et al. IL-33/ST2 induces neutrophil-dependent reactive oxygen species production and mediates gout pain. Theranostics. 10 (26), 12189-12203 (2020).
- Schumacher, M. A. Peripheral neuroinflammation and pain: How acute pain becomes chronic. Curr Neuropharmacol. 22 (1), 6-14 (2024).
- Koivisto, A., et al. TRPA1: A transducer and amplifier of pain and inflammation. Basic Clin Pharmacol Toxicol. 114 (1), 50-55 (2014).
- Chen, C., et al. TRPA1 triggers hyperalgesia and inflammation after tooth bleaching. Sci Rep. 11 (1), 17418(2021).
- Becker, G., Fialho, M. F. P., Brum, E. S., Oliveira, S. M. K. Kinin B (2) receptor mediates cisplatin-induced painful peripheral neuropathy by intracellular kinase pathways and TRPA1 channel sensitisation. Pharmaceuticals (Basel). 16 (7), 959(2023).
- Gadepalli, A., et al. Loperamide, a peripheral mu-opioid receptor agonist, attenuates chemotherapy-induced neuropathic pain in rats. Int Immunopharmacol. 124 (Pt B), 110944(2023).
- Gadepalli, A., et al. Peripheral mu-opioid receptor activation by dermorphin [d-arg2, lys4] (1-4) amide alleviates behavioral and neurobiological aberrations in rat model of chemotherapy-induced neuropathic pain. Neurotherapeutics. 21 (1), e00302(2024).
- Giniatullin, R. Ion channels of nociception. Int J Mol Sci. 21 (10), 3553(2020).
- Martínez-Rojas, V. A., et al. Interaction of NHE1 and TRPA1 activity in DRG neurons isolated from adult rats and its role in inflammatory nociception. Neuroscience. 465, 154-165 (2021).
- Ummadisetty, O., et al. Dermorphin [d-arg2, lys4] (1-4) amide alleviates frostbite-induced pain by regulating TRP channel-mediated microglial activation and neuroinflammation. Mol Neurobiol. 61 (8), 6089-6100 (2024).
- Vitale, R. M., De Petrocellis, L., Amodeo, P. An updated patent review of TRPA1 antagonists (2020 - present). Expert Opin Ther Pat. 34 (5), 315-332 (2024).
- Balestrini, A., et al. A TRPA1 inhibitor suppresses neurogenic inflammation and airway contraction for asthma treatment. J Exp Med. 218 (4), e20201637(2021).
- Gupta, R., et al. Structural basis of TRPA1 inhibition by hc-030031 utilizing species-specific differences. Sci Rep. 6, 37460(2016).
- Mukhopadhyay, I., et al. Transient receptor potential ankyrin 1 receptor activation in vitro and in vivo by pro-tussive agents: Grc 17536 as a promising anti-tussive therapeutic. PLoS One. 9 (5), e97005(2014).
- Bamps, D., et al. TRPA1 antagonist ly3526318 inhibits the cinnamaldehyde-evoked dermal blood flow increase: Translational proof of pharmacology. Clin Pharmacol Ther. 114 (5), 1093-1103 (2023).
- Terrett, J. A., et al. Discovery of TRPA1 antagonist gdc-6599: Derisking preclinical toxicity and aldehyde oxidase metabolism with a potential first-in-class therapy for respiratory disease. J Med Chem. 67 (5), 3287-3306 (2024).
- Chen, J., et al. Selective blockade of TRPA1 channel attenuates pathological pain without altering noxious cold sensation or body temperature regulation. Pain. 152 (5), 1165-1172 (2011).
- Chen, H., Terrett, J. A. Transient receptor potential ankyrin 1 (TRPA1) antagonists: A patent review (2015-2019). Expert Opin Ther Pat. 30 (9), 643-657 (2020).
- Mesch, S., et al. Discovery of bay-390, a selective CNS penetrant chemical probe as transient receptor potential ankyrin 1 (TRPA1) antagonist. J Med Chem. 66 (2), 1583-1600 (2023).
- Sałat, K., Filipek, B. Antinociceptive activity of transient receptor potential channel trpv1, trpa1, and trpm8 antagonists in neurogenic and neuropathic pain models in mice. J Zhejiang Univ Sci B. 16 (3), 167-178 (2015).
- Gyamfi, O. A., Bortey-Sam, N., Donkor, A. B., White, C. W., Logue, B. A. Analysis of TRPA1 antagonist, a-967079, in plasma using high-performance liquid chromatography tandem mass-spectrometry. J Pharm Anal. 10 (2), 157-163 (2020).
- Trevisan, G., et al. Novel therapeutic strategy to prevent chemotherapy-induced persistent sensory neuropathy by TRPA1 blockade. Cancer Res. 73 (10), 3120-3131 (2013).
- Liu, Z., et al. Liquiritin, a novel inhibitor of TRPV1 and TRPA1, protects against LPS-induced acute lung injury. Cell Calcium. 88, 102198(2020).
- Hernández-Cruz, E. Y., Silva-Islas, C. A., Maldonado, P. D., Pedraza-Chaverri, J., Carballo-Villalobos, A. I. Antinociceptive effect of garlic, garlic preparations and derivative compounds. Eur J Pain. 26 (5), 947-964 (2022).
- Petitjean, H., et al. Trp channels and monoterpenes: Past and current leads on analgesic properties. Front Mol Neurosci. 15, 945450(2022).
- Xiang, L., et al. Network pharmacology-based research uncovers cold resistance and thermogenesis mechanism of Cinnamomum cassia. Fitoterapia. 149, 104824(2021).
- Wang, P., et al. Cinnamaldehyde ameliorates vascular dysfunction in diabetic mice by activating Nrf2. Am J Hypertens. 33 (7), 610-619 (2020).
- Zou, B., et al. Berberine alleviates gastroesophageal reflux-induced airway hyperresponsiveness in a transient receptor potential A1-dependent manner. Evid Based Complement Alternat Med. 2022, 7464147(2022).
- Yu, M., et al. Ligustrazine mitigates chronic venous disease-induced pain hyperalgesia through desensitization of inflammation-associated TRPA1 activity in DRG. J Ethnopharmacol. 298, 115667(2022).
- Lee, G., et al. Identification and characterization of saikosaponins as antagonists of transient receptor potential A1 channel. Phytother Res. 34 (4), 788-795 (2020).
- Ruan, Y., et al. Water extract of Notopterygium incisum alleviates cold allodynia in neuropathic pain by regulation of TRPA1. J Ethnopharmacol. 305, 116065(2023).
- Fallon, M. T., et al. Cancer treatment-related neuropathic pain: Proof of concept study with menthol--a TRPM8 agonist. Support Care Cancer. 23 (9), 2769-2777 (2015).
- Chukyo, A., et al. Oxaliplatin-induced changes in expression of transient receptor potential channels in the dorsal root ganglion as a neuropathic mechanism for cold hypersensitivity. Neuropeptides. 67, 95-101 (2018).