新たに診断され再発した腫瘍から生成された患者由来の磁気膠腫を用いて、3次元膠芽腫移動モデルを提示します。このプラットフォームは、患者特有の移動動態の可視化と治療効果の評価を可能にします。このアッセイは移動後に多重化され、タンパク質の局在化や発現パターンを評価することができます。
この記事について
サマリー
要約
臨床的に関連性の高い低酸素状態下で、新たに診断され再発した腫瘍からの患者由来の膠芽腫膠質球の移動および侵襲的可能性をモデル化する再現可能な3D移動アッセイを記述します。均一な大きさのグリオマスフィアは薄い細胞外マトリックス層に転写され、磁性酸化鉄ナノ粒子と共培養されます。これにより磁性プレートホルダーに配置することで培養井戸内で集中的に局在化できます。シーディングに磁性酸化鉄ナノ粒子を組み込むことで、穏やかな磁気力を介して個々の患者由来の膠質球の精密かつ局所的な画像化が可能になり、位置変動を減らすことで自動画像処理パイプラインを最適化します。このアッセイは、生理学的に関連性の高い微小環境における膠芽腫の移動行動の詳細な研究を支援し、新たに診断された患者由来の膠腫球間で侵襲的可能性と移動行動を直接比較することを可能にします。この手法は生細胞イメージングおよび多重解析と互換性があり、膠芽腫の移動、侵襲的潜在力、治療的反応の前臨床研究のための拡張可能なプラットフォームを提供します。
概要
膠芽腫は神経腫瘍学における最も重要な課題の一つとして残っています。この疾患は、患者間および患者内における広範な異質性、標準治療への強い反応回避、アポトーシス誘導への耐性、そして環境条件に対する顕著な可塑性によって引き起こされます。近年では、腫瘍微小環境(TME)の複雑さ、特に微小環境の変化に応じて表現型や細胞状態を切り替えることができる膠質腫幹様細胞(GSCs)の動的な性質が注目されています2,3。この表現型可塑性は腫瘍の進行を促進し、積極的な最前線の標準治療にもかかわらず避けられない再発に寄与します。外科的切除は患者の予後改善に最も効果的な介入ですが、膠芽腫は非常に浸潤的かつ顕微鏡的に侵襲的であるため、完全な腫瘍摘出は不可能です。患者サンプルの侵襲的動態を様々な病期や腫瘍特有の状態でモデル化することは、膠芽腫移動の動的かつ可塑的な能力をより深く理解し、効果的な新規治療法の特定に役立ちます。したがって、患者特有の侵入および移動動態を捉える生理学的に関連性の高いモデルの開発は、前臨床研究の強化とこれらの目標の進展に不可欠です。さらに、これらのモデルは、理論的には手術と併用して残存顕微鏡的浸潤を防ぎ、再発リスクを低減するために開発可能な新規抗腫瘍療法の有効性を評価する上で極めて重要です。膠芽腫の複雑さは、主要な腫瘍構造的特徴を再現できる高度な複雑な前臨床モデルの必要性を正当化しています。患者由来の三次元モデルは、細胞間相互作用の保存、栄養素、酸素、治療薬の勾配を維持し、ネイティブ腫瘍の構造的完全性を再現する能力で注目を集めています。しかし、これらの3Dモデルを可視化するには、球体の位置、画像の変動性、アッセイの再現性といった技術的課題があります。
ここでは、低酸素条件下で実施される患者特有の3D膠芽腫移動モデルを説明し、治療未経験者および再発性腫瘍サンプルを含む様々な患者腫瘍サブタイプおよび疾患段階から得られたサンプル間の移動動態の調査を可能にします。このプラットフォームは治療薬に対する差異反応の評価を可能にし、画像セグメンテーションによる多重化後移動解析を支援し、移動動態、球状体成長、タンパク質発現の定量的評価を可能にします。磁性酸化鉄ナノ粒子の組み込みにより、穏やかな磁力8を加えることで各井戸内の球体を一貫して集中させることが可能になります。標準的なマルチウェルプレートで培養された球体は、しばしばウェルの縁に向かって漂流する傾向を示し、これは液体の半月板の形成や周辺部の蒸発の影響、特にプレートの周囲9,10,11のウェルで見られると考えられています。これらの現象は、特に透過式顕微鏡撮影中にイメージングアーティファクトや背景雑音を引き起こし、侵入ダイナミクスのタイムラプスイメージングを複雑にします。均一な細胞密度領域をイメージングに選べる2次元単層培養とは異なり、単一球体侵入アッセイでは、球体全体および移動領域をイメージングフィールド内で正確かつ一貫した位置取りが必要です。これにより、井戸内のドリフトや不規則な位置はデータの品質や再現性を損なう可能性があるため、さらなる課題となります。したがって、球体をマルチウェルプレート内に一貫して集中させることで、これらの課題を最小限に抑え、画像品質だけでなく、実験の一貫性、画像処理パイプライン、移行後の解析も向上します。さらに、これらの特殊な球状培養皿で均一な細胞密度で球状培養を開始することで、再現性のある球状体形成を促進し、形態、成長速度、構造の完全性の変動を低減します(10,11)。実務的には、これらのアッセイで用いられる典型的な膠球は直径150〜300μmで、標準化された細胞密度の下で再現性に形成されます。培養は低酸素条件下(1%–2% O2)で維持されます。
ここで説明するプラットフォームは、 96ウェルプレートなどの中〜高スループットフォーマットをサポートし、患者サンプルあたり複数回の複製を可能にします。また、薬物スクリーニングや多疾患アッセ イにもスケーラブルです。したがって、球体の位置と培養条件の最適化は、膠質腫の浸潤ポテンシャルやその他の動的細胞プロセスを研究するために用いられる3D前臨床モデルの堅牢性と臨床的関連性を高めるために不可欠です。
プロトコル
患者由来の膠芽腫細胞はオランダ・ロッテルダムのErasmus MCおよびカナダ・トロントのHospital for Sick Childrenから提供されました。これらの系統の一次患者サンプルは、患者のインフォームドコンセントのもとでの定期切除の一環として取得されました(倫理承認番号、MEC-2013-090、0020010404)。
1. 磁気患者由来膠質球の調製(図1)
- 膠腫球解離の少なくとも30分前に、実験用の十分な細胞剥離酵素培地と膠腫球培地(通常は1mLのT75フラスコ1個)を室温に移します。
- 無菌条件下で、10 mLの血清学的ピペットとピペット補助剤を用いて穏やか吸引で培養フラスコから膠質球を採取し、15 mLの円錐形チューブに移します。遠心分離機で300 x g で3分間加熱します。細胞ペレットを乱さずに上澄液を慎重に捨てます。
- ペレットを室温の細胞剥離酵素培地1mLに再懸浮させ、10〜15分間培養します。2〜3分ごとにP1000ピペットでピペッティングして優しく攪拌し、単一細胞懸濁液への解離を促進します。
- 酵素を不活性化するために、同量のグリオマスフィア培地を加えます。単一細胞懸濁液を300 x g で37°Cで3分間遠心分離し、その後、細胞ペレットを3〜5 mLの完全なグリオマスフィア培地に優しく再懸濁し、細胞ペレットの大きさに応じて正確な体積を記録し、その後の細胞計数に使われます。
注:酵素培地の培養期間は主に培養中の膠腫球の大きさに依存するため、使用前に必ず目視で確認し、適切に採用してください。 - 代表的な10μLの単一細胞懸濁液を取り、1.5 mLのマイクロ遠心分離機チューブで10 μLのトリパンブルーと優しく混ぜます。この混合物を10μLをヘモサイトメーターまたは自動細胞計に注入し、生存可能な細胞を決定します。
- 1ウェルあたり500個の単一膠芽腫細胞を超低付着の96ウェル球状マイクロプレートにシーディングします。最適なシーディング密度は患者サンプルごとに異なる場合があります。
- 1 μg/mLのプロピジウムヨード化物(PI)と0.05 μLの酸化鉄ナノ粒子を加えます(例えば、20個の球体に1.5 μLの磁性ナノ粒子を使用、約10,000個の単一細胞に相当します)。酸化鉄ナノ粒子は添加前に均質化し、100μLに設定されたP100でピペットで上下に調整します。
注:使用する酸化鉄ナノ粒子の体積は使用する細胞株に応じて最適化可能ですが、この場合、10,000細胞あたり1.5μLで球体を中心に局在させるのに十分でした。この構成により、患者サンプル間で球状体サイズが一貫し、侵入アッセイ中の浸潤および成長動態の直接比較が可能となります。 - 加湿細胞培養インキュベーターで37°C、CO25 %、酸素21%で48時間培養し、膠 質球の形成を促します。
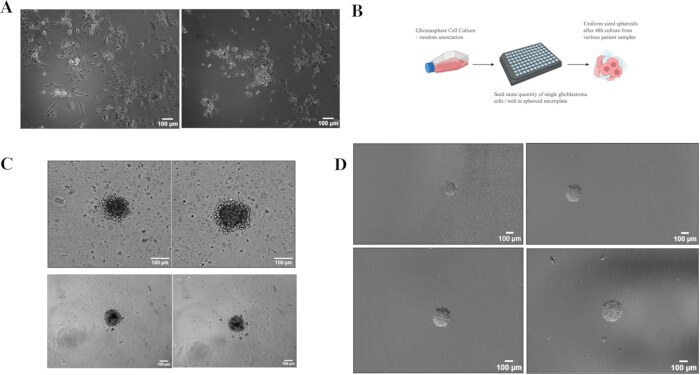
図1:均一な大きさと位置を持つ膠腫球を鉄酸化ナノ粒子と共培養。 (A) 新たに診断され再発した患者腫瘍から得られた膠腫球は、二重表現型とランダムな細胞間結合を示します。 (B) 種付けから48時間以内の均一な球状体形成の概略的表示。 (C) 円底球状マイクロプレートで48時間培養した膠質球体の透過光画像(上部パネル)かつ(下部パネル)酸化鉄ナノ粒子を含まない場合。鉄酸化物ナノ粒子を含む膠質球体の暗く斑点状の外観に注目してください。 (D) ナノ粒子を使わずに培養したグリオマスフィアのランダムな位置(上)と、ナノ粒子で培養されたものの中心位置が一貫している(下)と比較され、背景雑音の低減と画像品質の向上を示す。スケールバー=100μm。Biorender.com を使った回路図。 この図の拡大版はこちらをクリックしてご覧ください。
2. 細胞外マトリックス(ECM)コーティングされたマルチウェルプレートの準備(移動アッセイの1時間前)
- 製造元の指示に従ってECMを分割して保管してください。1 mLのECM(希釈1:10)を氷の上でゆっくりと解凍し、4°Cで一晩過ごします。 メッキ直前に、氷のように冷たい完全なニューロスフィア培地でさらに1:10のストックを1:10希釈し、1:100(v/v)で最終作業溶液を準備します。希釈したECMは常に氷の上に保管して早期重合を防ぎましょう。この希釈は必ず氷上に保管してください。ECMは室温で急速に重合します。
- 1:100 ECM作業液をそれぞれ50 μLを、96ウェルのクリアフラットボトムまたはμクリアボトムプレートの各ウェルに注ぎます。各ウェルで薄いマトリックスを形成するために、37°Cで少なくとも1時間キュベートしてください。
- インキュベーション後、各ウェルから慎重に30μLを除去し、底部には20μLの重合ECM(最終濃度1:100 v/v)をコーティングします。ECMは室温で急速に重合するため、この間はできるだけ低温に保たなければなりません。この過程でイメージングプレートは事前に冷却し、氷上に保管することも可能です。
3. イメージングプレートの設置およびライブセルイメージング
- アッセイ当日(グリオマスフィアシーディングから48時間後)に、ECMコーティングされたマイクロプレートを磁気96ウェルプレートドライブに置き(図2B,C参照)。磁気プレートは70%エタノールでスプレーして消毒し、拭き取って消毒し、浸さないでください。
- 球体の品質や均一性を目視で点検してください。ピペットを使い、各ウェルから単一のグリオマスフィアを含む培地80μLを移し、ECM面のあるプレートに優しくピペットを移します。
注意:特に大きな球状体の場合は、移動時のせん断応力を最小限に抑えるよう注意してください。これは、P100ピペットの先端から1〜2mmをハサミで切り落とし、開口部を広げて機械的損傷を減らすことで実現できます。使用前にハサミは紫外線で消毒されていることを確認してください。最も重要なのは、気泡の添加を最小限に抑えることです。これは画像診断に大きな影響を与えるからです。 - 実験設計に従って球体を処理してください。処理溶液を所定濃度で20μLの体で準備し、この20μLを球状体を含む各井戸に加え、最終体積100μLにします。
注:このように膠質球を処理することでピペッティングを減らし、球体を井戸から除去するリスクを最小限に抑えます。 - 磁気ドライブに残ったプレートをイメージングシステムに転送し、ライブイメージングを行います。磁気ホルダーからプレートを外す際は注意し、球体の動きを最小限に抑えるためにできるだけまっすぐ保つようにしてください。
- プランアポクロマット5倍/0.35 NA対物レンズ、0.5倍チューブレンズ、Axiocam 506カメラ(ビニング=2)、Zen 3.1(ブルーエディション)ソフトウェアを搭載したプログラム可能な逆さま生セル顕微鏡を用いてライブイメージングを行います。ピクセルからミクロンへのキャリブレーションはイメージングシステムに組み込まれており、ソフトウェアによって自動的に処理されるため、手動のキャリブレーションは不要です。この場合、2.5倍(対物レンズ5倍、0.5倍の筒レンズ)で撮影を行い、カメラのビニングを2×2に設定し、1ピクセル=3.645μmのキャリブレーションを実現します。
- 環境制御を調整して、ガスミキサーからの空気流量を非常に遅くして酸素1%、CO25 %にしてください。これにより、加湿ボトルを通す際に入ってくる空気の蒸発を防ぐことができます。
- 初期イメージング期間中の膠質球の変位を防ぐために、顕微鏡の段の加速度と速度を10%に抑え、球体接着前のECM表面の動きを最小限に抑えます。
- 磁気駆動なしでマルチウェルプレートを優しく顕微鏡に装填します。該当する場合は、ソフトウェア内でプレート素材を選択し、光学系が一致するように調整してください。
- 侵入的な視野全体をカバーする適切な拡大倍率を使用してください。例えば、Cell Discoverer 7では5倍対物レンズと0.5倍のチューブレンズが選ばれ、倍率は2.5倍でした。
- 各膠質球を特定し、x-y-z座標を含む位置を特定・割り当てます。もし可能なら、同じ焦点面での一貫したイメージングを確保するために、ハードウェアオートフォーカスを用いてください。
- 位相勾配コントラスト(透過光)と蛍光チャンネルの両方をチェックし、露光時間と光強度を調整して過剰露光がないか確認してください。590nmのLEDを使ってプロピジウムヨウ化物(デッドセル染色)を励起します。クアッドバンドパスフィルターを用いて発光を収集し、618〜756 nmの波長帯域を捕捉します。これは他の顕微鏡によって異なる場合があり、フィルターや光源によって異なる場合があります。
- 希望の日数、1時間ごとに画像を撮影するように設定します。
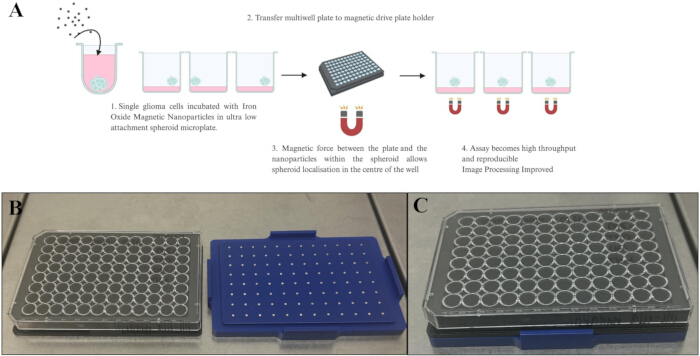
図2:イメージングプレートの設置の説明。(A) 記述されたプロトコルを表す回路図。 (B) 磁気プレートドライブに隣接するマルチウェルプレートの画像と、磁気ドライブの上にマルチウェルプレートを単純に取り付け、各磁石をウェルの中心に配置することでグリオマスフィアの定位を容易にする。Biorender.com を使った回路図。 この図の拡大版はこちらをクリックしてご覧ください。
4. 多重タンパク質解析のための侵入アッセイ後の球状体の固定(図3)
- 侵入アッセイ終了後、各井戸に100μLのPBSを洗浄します。これにより体積は200μL/wellになります。この工程を繰り返し、その後100μLのPBSを除去し、さらに100μLのPBSに置き換えます。
- 慎重に培地200 μLを除去し、各ウェルに4%パラホルムアルデヒド(PFA)100 μLを加え、室温でフームフードの下で10分間培養します。
注意:パラホルマルデヒドは有毒な化学物質であり、リスクや曝露を最小限に抑えるために注意が必要です。 - 固定後は各ウェルからPFAを取り出し、PBSで3回洗浄します。PFAを除去し、それぞれ100mLのPBSを加えます。
- メーカーの指示に従って免疫染色を加えてください。または長期保存のために、PBSにアジドナトリウム(0.02%)を加えて滅菌を維持し、透明膜でプレートを密封する方法があります。必要になるまで4°Cで保存してください。
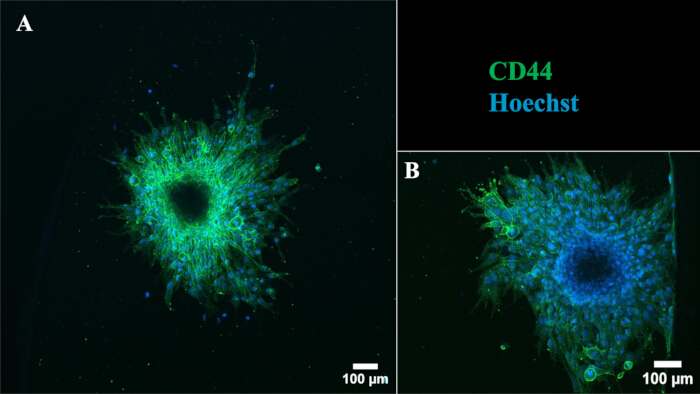
図3:ウェルの中心に位置する膠球球と端に位置する膠腫球の移動アッセイ後の代表的なタンパク質解析。 再発性膠質球のレーザー走査共焦点顕微鏡法を、移動後誘導法でグリオブラストーマ幹細胞マーカーCD44を標的とした抗体で染色した。CD44-FITC(緑)およびHoechst(核、青)。スケールバー=100μm。矢じりは井戸の縁を示しています。 この図の拡大版はこちらをクリックしてご覧ください。
5. 患者由来の移動動態の画像処理パイプライン
注:データセットの経験から、処理コンピュータにはマルチコアプロセッサと高いベースコア周波数と大量のメモリを搭載することを推奨しています。WEKA処理は高いコア数に非常に適しており、データセットサイズに応じて利用可能なメモリを活用します。 使用済みおよび推奨仕様は以下の通りです。 このワークフローではGPU処理は使用されません。
CPU:>=6コア |>= 2 GHz(推奨);32コア |2.1 GHz(使用中)
メモリ:> 32 GB(推奨);192 GB(使用中)
- Open Fiji13 [現在は解析に付属ImageJ-win64.exe実行ファイルが使用されています]。画像を開くにはナビゲーションから – ファイル > 選択を開く フィジーインターフェースでマルチチャンネル、マルチシーンのタイムラプス画像ファイル(.czi)が開きます(スクリプトを使用する場合は 補足ファイル1です)。
- GUIで必要な画像を選択してください。実験で最も侵襲的な膠質球を最初に分類器(すなわちコントロールウェル、DMSO)を訓練するのが最も効果的です。この画像は画像の各セグメントの詳細、すなわち侵入・移動細胞の外観、球状体、背景の区別を提供します。
- 次に画像 >カラー>分割チャンネル に移動します。これにより画像は2つのチャンネルに分けられます。1つはプロピジウムヨード化物染色、もう1つは透過光のチャンネルです。
- セグメント化用のチャンネルを選択してください。この場合は移動動態を表す透過光チャネルです。プラグイン>セグメンテーション> トレーニング可能なWEKAセグメンテーションへナビゲーション 14.
- デフォルトの2つのクラスを次のように改名します:クラス1:グリオマスフィア;クラス2:侵略/移動。「背景」という3つ目のクラスを追加してください(オプションですが推奨)。 設定>「新しい背景」>から。
- Freelineツールを使い、各画像スタックとクラス内のトレーニング領域に代表的な領域を描き、注釈を付けます。つまり、球体に渦巻きを描き、「 Spheroidに追加 」をクリックし、侵入領域と背景を繰り返し、すべての領域が各クラスに表示されるまで繰り返します。分類器を訓練するには 「Train Classifier」をクリックしてください。必要に応じて、追加の画像を注釈付けして分類器の精度向上をさらに訓練することも可能です。
- 満足したら、CellLine_Treatment_Classifier.modelのようなファイル名で訓練済みの分類モデルを保存します。セグメンテーションウィンドウが完了したら閉じてください。
- この保存された分類器を使用した新しい画像については、 プラグイン>セグメンテーション>トレーニング可能なWEKAセグメンテーション>分類器をロード>開いて保存済み分類器CellLine_Treatment_Classifier を開きます(これにより.model - ファイルが保存されます)。 補足ファイル2 ではスクリプトを実行する前にこれを準備しておくことが必須条件の一つです。スクリプトが起動される際には、適切なサンプルファイルを選択しなければなりません。
- Trainable WEKAセグメンテーションインターフェースでNavigate to Probabilityを取得 - これは選択した各クラス(Gliomasphere、Invasion/Migration、Background)ごとに確率マップを作成し、画像に割り当てられた各ピクセル値が特定のクラスや領域に属する可能性を示します。これにより、それぞれの画像に対して32ビットのダイナミックレンジを持つ確率マップ(Gliomasphere、Invasion、Background)の3つの別々の画像が生成されます。
- 侵略/移動に対応する確率マップを選択します。画像>ハイパースタックに移動して次元を下げ>。 「ソースを保持」を選択します。
- チャンネルのチェックを外すがフレームは保持し、これにより時間経過とともにマップが単一のチャネルに縮小されます。この場合は侵入確率マップです。グリオマスフィアに対応する確率マップを選択します。
- ステップ5.10-5.11を繰り返します。移動のシーンと球状面の1つのシーンで、元の送信された光のタイムラプス画像に対応する2つの確率マップが今後作成されます。両方を以下のファイル名の慣例で保存します:ImageName_Scene_Gliomasphere_ProbabilityMapとImageName_Scene_Invasion_Probability Mapは、選択した実験に対応するフォルダ、すなわちCellLine_Treatment。
- バイナリマスクを作成するための閾値を設定する: 画像> しきい値を調整>。閾値法(例:円、大津)を選びます。選択したメソッドは処理済みのすべての画像で同じように保ちましょう。
- 測定値を分析>ナビゲーション。希望する測定値を選択してください;ティック面積、積分密度、平均を選んでからOKボタンを押してください。解析>解析へナビゲーション。侵略/移動の場合、セットサイズ:0 – 無限大;円形度:0.00 – 1.00。グリオマスフィアの場合、セットサイズは通常1500〜無限大(細胞株や処理の球体サイズに応じて調整。対照スフィアは自然に大きくなります);円形度:0.05 – 1.00。すべてのピクセル単位を選択してください。
- 「Analyze>Analyze Pixels> 表示:マスクを選択する。マスクが生成された後は、タイムラプススタック全体で関心領域のセグメントを確認し、正確な追跡を確保します。プロセス> バイナリ> ... (例えば、球面マスクを精錬する際に「Fill Holes」を選択し、その後「Analyze > Analyze Particles > Show > Selected Nothing(何もしない)を選択し、Summarise(要約)を選択します。これにより、選択された測定値の概要ウィンドウが表示されます。
- 結果を保存するには、 ファイル>「結果を>名前で保存」をクリックしてください。.csvファイルとして保存してください。スプレッドシートやその他の分析ソフトで開いてください。
- すべての分割クラス(例:膠質球、侵入)に対して閾値測定と粒子解析を繰り返し、時間経過による測定値を抽出します。 出力.csvは時間をかけて面積(ピクセルまたはミクロン単位で、キャリブレーションに応じて)を提供します。
- PI染色を表す蛍光チャンネル(例:チャンネル2)を選択します。 上記のように閾値測定と粒子解析を適用して、死んだ細胞を特定します。Calculator Plusプラグインを使って、PI陽性細胞のマスクとグリオマスフィアマスクを掛け合わせ、侵入マスクと別々に掛け合わせて特定の領域の死んだ細胞を定量化します。
- マスク、確率マップ、要約表をTIFFやCSVファイルとしてエクスポートし、明確で説明的なファイル名を付けてドキュメント作成や下流分析に活用できます。補遺で提供されているスクリプトを使用する場合、以下の命名規則が見られます:例:FileName_Scene#_(PI-)Invasion_Summary.csv(時間経過した対象のデータ)、FileName_Scene#_(PI-)Invasion.zip(解析粒子で定義された領域)。
注意: 補足ファイル1は 、各シーンごとにタイムラプス画像を含む単一のtifファイルを生成します。 補足ファイル2 では、あらかじめ定義された分類モデルファイルに基づいて、すべてのシーンおよび各タイムラプス内の画像でWEKAピクセル分類を実行し、膠球および侵入セルの確率マップを提供します。 補足ファイル3では 、すべての画像を膠質球と侵入細胞に分割し、被覆領域および死んだ(PI陽性)細胞が覆う領域の区分を定量化します。 Supplementary File 4 は特定の閾値方法と分析すべき特定の領域を前提とし、Supplementary File 3 はユーザーが閾値を設定し、各シーンの領域を調整できるようにします。閾値はシーンごとに異なるメソッドに変更せず、オブジェクトごとに異なるメソッドに設定できます。
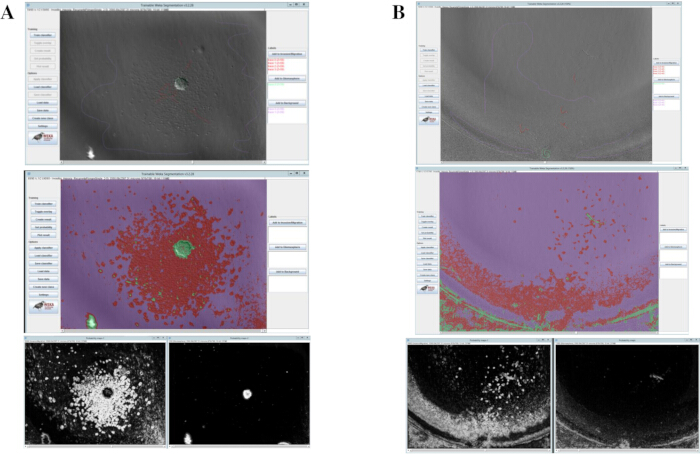
図4:膠質球の分割が不十分であるための再現性画像処理の課題。 Fiji上で訓練可能なWEKAセグメンテーションプラグインを使用した画像処理パイプラインでは 、(A) 背景に対する移動面積の大きな分散を中心に局在する膠質球、 (B) リムに局在する膠質球を示すと、画像分割が不十分で再現が不可能です。膠腫球の局在化の一貫性を確保することで、生物学的複製をまたぐ画像処理が(A)に示されているように現れ、アッセイの再現性と自動化が大幅に向上します。 この図の拡大版はこちらをクリックしてご覧ください。
結果
低酸素条件下での3次元移動アッセイを用いて、再発患者腫瘍の膠質球は車両または薬物Xで治療され、浸潤動態は72時間ごとに監視されました。 図5 は浸潤動態のWEKA分割解析を示しており、臨床的に関連性の高い低酸素状態において薬物Xが再発神経膠球の侵襲可能性を車両対照群と比較して有意に減少させることを示しています。
移動後の幹細胞特性に対する薬物Xの影響をさらに評価するため、膠芽球を固定し免疫染色し、図 6に示すように膠芽腫幹細胞マーカーCD44の発現と局在を測定しました。この多重解析は、移動動態と幹細胞マーカー発現の可視化を促進し、臨床的に関連性の高い低酸素条件下で薬物Xが再発性膠芽腫モデルの侵襲的潜在力および幹様特性をどのように調節するかの洞察を提供します。
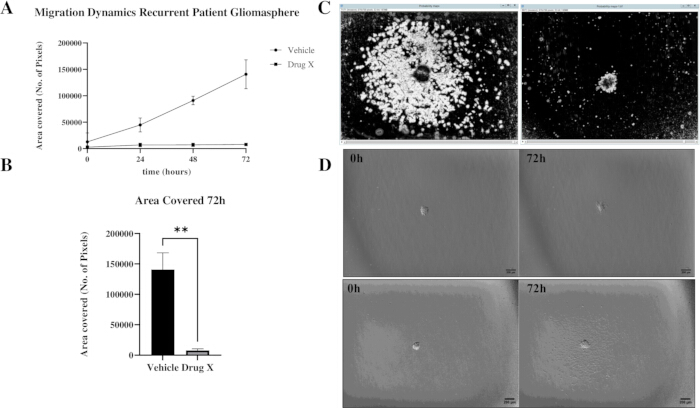
図5:最適化された移動アッセイは、新規薬物Xが再発性膠腫球移動を防ぐ効果を示しています。 患者は低酸素状態で72時間、車両または薬物Xを投与して再発性膠質球を得ました。侵入動態は72時間ごとに記録されました。 (A) 上パネル(車両処理済み)および下パネル(処理済み薬物X)は0時間および72時間の侵入動態を示す代表的な光画像を送信しました。 (B) セグメンテーション解析で用いられる侵入地域の代表的な確率マップ。 (C) 再発性の膠腫球は、薬物Xで治療された膠腫球に比べて侵襲の可能性が有意に低いことが示されました。72時間後の侵襲領域の定量化により、薬物X治療の膠質球における浸潤が有意に減少し、固定時の総カバー面積で表されました。データはn=3回の独立した複製からの侵入地域を時間経過で示しています。統計的有意性は無ペアt検定を用いて評価されました。p < 0.005は**で示されます。 この図の拡大版はこちらをクリックしてご覧ください。
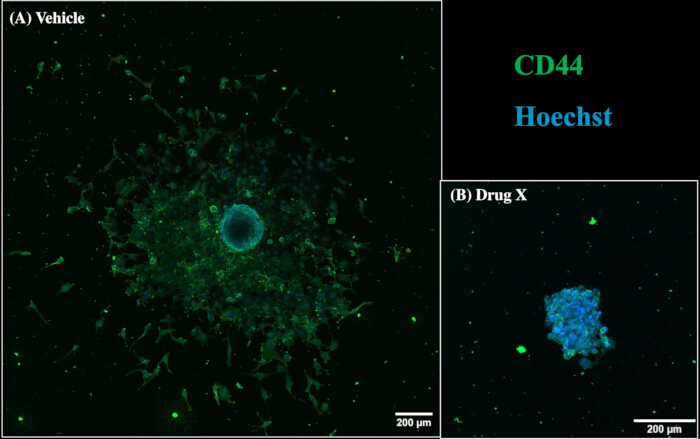
図6:処理後の移動と幹細胞マーカーの発現。図5に記載された膠腫球は移動後に固定され、誘導体または薬物Xのいずれかの治療後に膠芽腫幹細胞マーカーCD44を標的とした抗体で免疫染色されました。この図は、標準的な免疫染色技術を用いて実施可能な多重化後移動分析のタイプを示しています。画像にはCD44-FITC(緑色)とHoechst(核、青色)が示されています。スケールバー=200μm。 この図の拡大版はこちらをクリックしてください。
補足ファイル1:顕微鏡からマルチシーンCZIファイルをTIFファイルとして単一のシーンとして再保存する方法。このファイルをダウンロードするには、こちらをクリックしてください。
補足ファイル2:Wekaモデルを用いた確率マップ生成。このファイルをダウンロードするには、こちらをクリックしてください。
補足ファイル3:閾値なしのセグメンテーション解析。 このファイルをダウンロードするには、こちらをクリックしてください。
補足ファイル4:閾値を用いたセグメンテーション分析。 このファイルをダウンロードするには、こちらをクリックしてください。
ディスカッション
膠芽腫のような非常に攻撃的な腫瘍の侵襲的な動態をモデル化することは、疾患過程の理解を深め、より効果的な治療戦略を特定する上で極めて重要です。膠芽腫細胞移動の複雑で適応的かつ可塑的な性質は、中心腫瘍塊から移動する個々の膠質腫細胞の動的挙動を正確に捉えられる前臨床モデルを必要とします。重要なのは、患者由来の異なる病期サンプルでこれらのプロセスをモデル化することで、研究者が腫瘍の異質性の課題によりよく対処し、病房特有の変化を特定できることです。
この複雑さを考えると、前臨床モデルも同等の高度さを持つべきだと考えるのが妥当です。ここでは、均一なサイズの患者由来膠質球を鉄酸化ナノ粒子と共培養して生成する洗練された方法を説明します。このアプローチにより、各ウェルの中心にあるグリオマスフィアの制御された局在化が可能となり、侵入動態の自動生細胞イメージングが可能になります。いくつかの研究では、従来の3D培養法を用いた球状体のサイズ、形状、成長速度論に有意なばらつきが示されており、Saydeらは球体が未分類と選別されたがん幹細胞集団間で広い直径分布を示すことを示し、球状体形成の本質的な変動を反映しています15,16.この異質性は球状体を用いた薬物スクリーニングアッセイにおける再現性の問題の主要な原因としても特定されており、均質な球状体集団を生成することの重要性をさらに強調しています12。これらの発見は、機能解析を行う前に球状体形成条件を標準化する必要性を強調しており、この手法が直接対処する課題です。球状体のサイズと位置の両方を標準化することで、この方法は再現性を大幅に向上させ、3D細胞培養システムで典型的に見られる不均一な球状形成が下流解析に影響を与える変動を最小限に抑えます。
このアッセイの初期開発段階では、複製体間で球状体の局在化に大きなばらつきが観察され、統計的に有意な結果を得るためには実験ごとに多数の井戸だけでなく、多くの生物学的複製が必要となりました。これにより作業負荷が大幅に増加しただけでなく、利用不能なデータが大幅に増え、分析効率と再現性が低下しました。したがって、その結果生じた変動は侵入行動の違いではなく、定量的なデータの喪失を反映しています。各井戸内にグリオマスフィアを集中させることで、磁気局在化によりすべての複製の画像を一貫して分割・解析できるようになり、サンプル間で生物学的な侵入力学の違いが観察されても解析できます。
酸化鉄ナノ粒子の導入により、膠質球をすべての井戸に一貫して集中させる穏やかな磁力が導入され、画像処理パイプライン、データ処理、移動後の解析の性能が大幅に向上しつつ、膠質球の生物学や生存可能性に影響を及ぼしません。このシステムの大きな利点は、移動後の多重解析との互換性です。例えば 図6 は、膠芽腫幹細胞マーカーCD44の可視化解析を示しており、患者サンプル間の移動と治療後の幹細胞様発現の評価を可能にします。この能力は、浸潤表現型と分子的特徴を結びつける統合的研究の可能性を浮き彫りにしており、膠芽腫幹細胞の表現型可塑性が微小環境の兆候に反応し、治療を回避し避けられない腫瘍再発を促進する能力を考えると重要な考慮点です。
このアッセイは単球体侵入動態の可視化を大幅に向上させますが、将来のアッセイ最適化のために考慮すべき重要な制限が残っています。マトリジェルは基底膜の広く使われているモデルですが、鼠肉腫由来の複雑で未定義の細胞外マトリックス(ECM)代替品であり、人間の脳の微小環境を完全に再現するものではありません。今後の最適化は、脳腫瘍微小環境をより良く模倣するために脳特異的なECMモデルを取り込む可能性があり、これはin vitro脳侵入モデルの重要な最適化ステップであると考えています(18,19)。マトリジェルは現在も広く採用されているECMモデルですが、マウス肉腫由来の非脳特異的細胞外マトリックスを表しています。したがって、人間の脳の微小環境の生化学的および機械的特性を完全には再現していません。重要なのは、ここで述べる磁気局在戦略はマトリックスに依存しないものであり、今後の研究で脳特異的なECMシステムに容易に適応し、生理学的な関連性をさらに高める可能性があることです。
このアッセイの他の考慮点として、サンプルの異質性や侵入形態の変動により、各細胞株ごとに新しいWEKA分割モデルを訓練する必要性があります。さらに、高スループット移動アッセイを行う前に、各細胞株および球体タイプごとにシーディング密度とナノ粒子濃度を最適化し、均一性と生存可能性を維持する必要があります。これらの制約はあるものの、このプラットフォームは患者特有の膠芽腫浸潤と治療反応を研究するためのスケーラブルかつ適応可能なフレームワークを提供します。生細胞イメージング、自動分割パイプライン、多重化後アッセイ解析との互換性により、新規治療薬の高含有量スクリーニング、結合療法、そして非常に異様な患者腫瘍サンプルからの浸潤の機構的研究に機会が開かれています。さらに、このアッセイをアストロサイト、ニューロン、ミクログリアなどの常駐脳細胞や血液脳関門相互作用モデルなどの共培養システムに拡張することで、膠芽腫の進行と再発を促す腫瘍間質の相互作用についてさらに新たな知見が得られます。
アッセイ開発中に再現性と全体的なアッセイ性能の重要な決定要因として、いくつかの技術的ステップが特定されました。アッセイ前に細胞株のシーディング密度を標準化することで、初期の膠質球サイズが一貫していることが保証され、これにより球体の成長動態は細胞株、処理、条件を超えて比較可能となります。この標準化ステップがなければ、初期の球体サイズは大きな変動をもたらし、その結果、神経膠球体の実験条件に対する応答の変動を反映する可能性があります。各井戸内の神経膠球の正確な中心位置化は、正確な自動画像取得および下流のセグメンテーションの重要な要件です。中心外れ球体は大きなイメージングノイズを生み出し、WEKAセグメンテーションによる画像を明確に定義した領域に分割する手段として使うことを妨げます。すべての膠質球が中心に局在していることを保証することで、同じWEKA分類器を複数回使用できるため、ノイズが大幅に減少し、画像品質も劇的に向上します。この表現は図1に示されています。磁性酸化鉄ナノ粒子の組み込みは、膠質球の中心位置を確保し、位置変動を最小限に抑え、画像処理と複製間での比較性を大幅に向上させる方法となります。最後に、WEKAパイプライン内でのセグメンテーションモデルトレーニングは、追加の重要な標準化ステップを示しています。患者間の異質性や侵襲形態の違いにより、単一のセグメンテーションモデルはすべてのサンプルに一般化できない場合があります。各細胞株の分類パラメータを再調整または精緻化することで、侵入領域の正確な確率マップを確保し、定量誤差を防ぎます。
全体として、このアッセイは患者由来の膠質腫サンプルの動的侵襲行動をリアルタイムで研究するための再現可能かつ拡張可能なプラットフォームを提供します。多重化画像診断や下流分子解析との互換性により、基礎および翻訳的な膠腫研究において強力かつ多用途なツールとなり、前臨床膠芽腫モデルの翻訳的関連性を大幅に高めます。
開示事項
特に明かすことはない
謝辞
この研究は、助成金コード20391A01のもとでリサーチ・アイルランド(サイエンス・ファウンデーション・アイルランド)と、助成金コードERA-TRANSCAN-2022-002の健康研究委員会の支援を受けました。細胞は、トロントのSickKidsのDirks Labおよびロッテルダムのエラスムス医療センター(EMC)の協力者から親切に提供されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 96ウェルのバイオプリントキット、クリア | グライナー | 655840 | |
| アキュターゼ | インビトロジェン | 00-4555-56 | 該当なし |
| B-27サプリメント(50X)、血清 ビタミンAなしのフリー | ギブコ | 12587010 | 10% |
| 基本的な線維芽細胞成長因子、ヒト (bFGF) | ペプロテック | 100-18B | 20 ng/ml |
| Celldiscoverer 7 | ツァイス | - | |
| コーニング球状マイクロプレート | コーニング | CLS4515 | |
| コーニング・マトリジェル行列 | コーニング | 354234 | 最終希釈1:100 |
| カウンテス自動セルカウンター | インビトロジェン | - | |
| DMEM-F12 (500ml) | サーモフィッシャー | 11320-074 | 該当なし |
| 表皮成長因子ヒト(EGF) | ペプロテック | AF-100-15 | 20 ng/ml |
| FITCマウス アンチヒューマンCD44 | BD ファーミンゲン | 555478 | 1:100 |
| Greiner CELLSTAR 96ウェルポリスチレン細胞培養マイクロプレート(F底/煙突井戸付き)、透明、黒、TC、滅菌、蓋付き | グライナー | 655090 | |
| ヘパリン | サーモフィッシャー | A16198 | 5µg/ml(g/ml) |
| ホエヒスト 33258 | シグマ・オルドリッチ(メルク) | 861405 | 1µg/ml(g/ml) |
| ナノシャトル-PL | グライナー | 657841 | 1.5 µl/10,000セル |
| ペニシリン - ストレプトマイシン | メルク | P4333 | 1% |
参考文献
- Singh, S., et al. Glioblastoma at the crossroads: Current understanding and future therapeutic horizons. Signal Transduct Target Ther. 10 (1), 213(2025).
- Spitzer, A., et al. Deciphering the longitudinal trajectories of glioblastoma ecosystems by integrative single-cell genomics. Nat Genet. 57 (5), 1168-1178 (2025).
- Dirkse, A., et al. Stem cell-associated heterogeneity in glioblastoma results from intrinsic tumor plasticity shaped by the microenvironment. Nat Commun. 10 (1), 1787(2019).
- Dejaegher, J., De Vleeschouwer, S. Glioblastoma. De Vleeschouwer, S. , Brisbane (AU). (2017).
- Restall, I., Bozek, D. A., Chesnelong, C., Weiss, S., Luchman, H. A. Live-cell imaging assays to study glioblastoma brain tumor stem cell migration and invasion. J Vis Exp. (138), e58152(2018).
- Xie, Y., et al. The human glioblastoma cell culture resource: Validated cell models representing all molecular subtypes. EBioMedicine. 2 (10), 1351-1363 (2015).
- Paolillo, M., Comincini, S., Schinelli, S. In vitro glioblastoma models: A journey into the third dimension. Cancers (Basel). 13 (10), 2449(2021).
- Aye, K. T. N., Ferreira, J. N., Chaweewannakorn, C., Souza, G. R. Advances in the application of iron oxide nanoparticles (ions and spions) in three-dimensional cell culture systems. SLAS Technol. 29 (3), 100132(2024).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Reproducibility of uniform spheroid formation in 384-well plates: The effect of medium evaporation. J Biomol Screen. 21 (9), 923-930 (2016).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Evaporation-reducing culture condition increases the reproducibility of multicellular spheroid formation in microtiter plates. J Vis Exp. (121), e55403(2017).
- Mansoury, M., Hamed, M., Karmustaji, R., Al Hannan, F., Safrany, S. T. The edge effect: A global problem. The trouble with culturing cells in 96-well plates. Biochem Biophys Rep. 26, 100987(2021).
- Zanoni, M., et al. 3d tumor spheroid models for in vitro therapeutic screening: A systematic approach to enhance the biological relevance of data obtained. Sci Rep. 6, 19103(2016).
- Schindelin, J., et al. Fiji: An open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Arganda-Carreras, I., et al. Trainable weka segmentation: A machine learning tool for microscopy pixel classification. Bioinformatics. 33 (15), 2424-2426 (2017).
- Sayde, T., et al. Reproducible 3d culture of multicellular tumor spheroids in supramolecular hydrogel from cancer stem cells sorted by sedimentation field-flow fractionation. J Chromatogr A. 1736, 465393(2024).
- Lee, S., Lim, J., Kwak, B. Factors of bias in spheroid-based drug screening: Fabrication method, spheroid size, and cell viability. Biomed Pharmacother. 192, 118597(2025).
- Aisenbrey, E. A., Murphy, W. L. Synthetic alternatives to matrigel. Nat Rev Mater. 5 (7), 539-551 (2020).
- Barbugian, F., et al. Bioresponsive hyaluronic acid-based hydrogel inhibits matrix metalloproteinase-2 in glioblastoma microenvironment. ChemMedChem. 20 (15), e202401040(2025).
- Carvalho, E. M., et al. Viscoelastic high-molecular-weight hyaluronic acid hydrogels support rapid glioblastoma cell invasion with leader-follower dynamics. Adv Mater. 36 (50), e2404885(2024).
再版と許可
