방법 논문

면역 자극 단백질을 인코딩하는 재조합 홍역 바이러스의 생성

22 조회수

⸱

2026년 9월 30일

이 논문에서

초록

출처: Heidbuechel, J. P., Engeland, C. E. 종양 표적 면역 조절을 위한 파라믹소바이러스: Ex Vivo 설계 및 평가. J. Vis. Exp. (2019)

본 영상에서는 리포좀을 사용하여 바이러스 안티게놈과 필수 헬퍼 단백질을 인코딩하는 플라스미드를 생산 세포로 전달함으로써 재조합 홍역 바이러스를 생성하는 과정을 보여줍니다. 전사 및 복제된 RNA는 면역 자극 및 형광 리포터 단백질을 발현하는 바이러스 입자의 형성으로 이어집니다. 이후 형광 현미경을 사용하여 씽시튬(syncytia) 형성을 시각화함으로써 재조합 바이러스가 성공적으로 생산되었음을 확인합니다.
프로토콜

참고: [O], [P], [M]은 각각 일반적인 항암 바이러스(OVs), (대부분의) 파라믹소바이러스, 또는 홍역 바이러스(MV)에 해당하는 하위 섹션을 나타냅니다. [B]는 이중 특이적 T 세포 결합체(BTE) 트랜스진에 특화된 섹션을 나타냅니다.

1 면역조절제 인코딩 트랜스유전자의 홍역 바이러스 벡터 클로닝

  1. [O] 삽입 서열 설계.
    1. [O] 문헌 연구 또는 유전자 스크리닝과 같은 탐색적 데이터에 기반하여 관심 있는 면역조절제를 결정하고, GenBank, European Nucleotide Archive 또는 국제 면역유전학 정보 시스템(IMGT)과 같은 적절한 데이터베이스에서 관련 상보적 DNA(cDNA) 서열을 도출합니다.
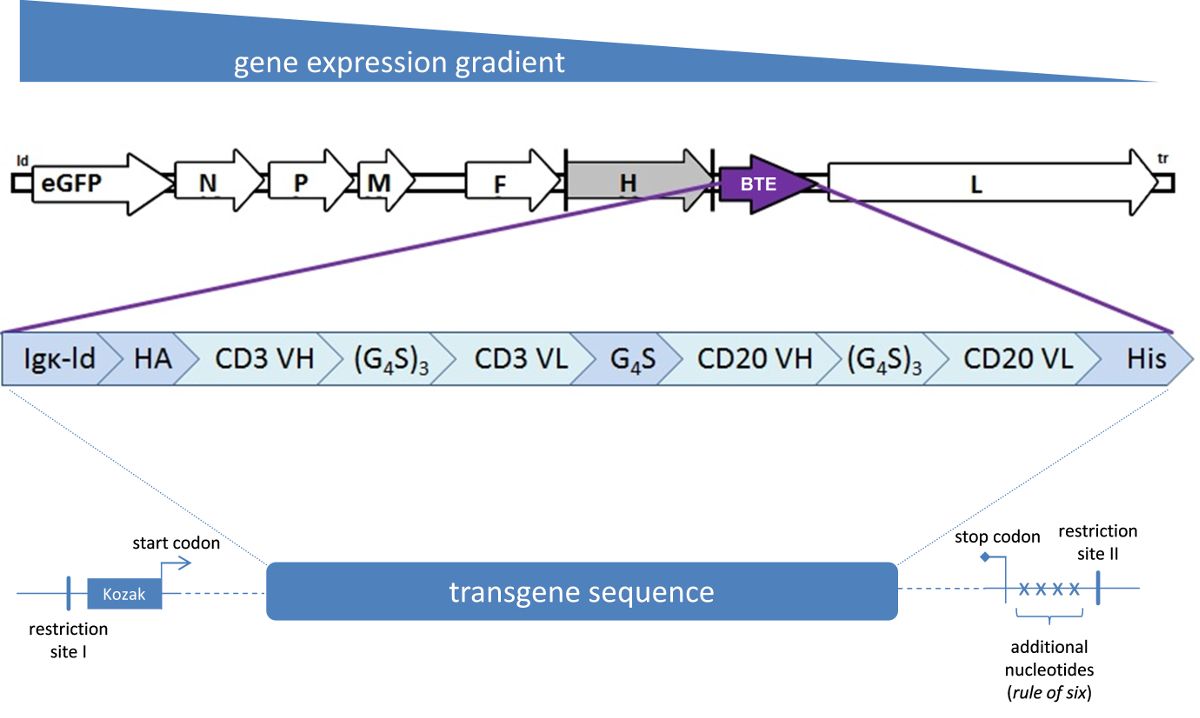
    2. [O] 트랜스유전자 서열에 추가 기능을 추가합니다(그림 1). 앞부분의 Kozak 서열 및 종 특이적 코돈 최적화는 발현을 높일 수 있습니다. 분비를 위해서는 신호 서열이 필요합니다. 검출 및 정제를 위해 N- 및/또는 C-말단 단백질 태그를 인코딩하는 서열을 포함하십시오. 벡터 삽입을 위한 제한 효소 부위를 포함하십시오.
      참고: [M] 재조합 MV 게놈에서 트랜스유전자가 발현되려면 MV 폴리머라제 유전자 시작 및 정지 신호를 포함하는 추가 전사 단위(ATU)가 필요합니다. 사이토메갈로바이러스(CMV) 프로모터에 의해 제어되며, 정의된 위치에 양성 가닥 트랜스유전자를 도입하기 위한 고유한 제한 효소 부위를 가진 ATU를 포함하는 적절한 안티게놈 cDNA 벡터가 이전에 개발되었습니다. [P] 파라믹소바이러스의 전형적인 발현 구배로 인해 바이러스 복제와 트랜스유전자 발현에 영향을 미치므로 트랜스유전자의 적절한 배치가 매우 중요합니다. 안티게놈의 3' 말단에 가까운 ATU(즉, 리더 위치 또는 P 유전자 하류)에 도입하면 일반적으로 바이러스 복제가 감소하는 대신 트랜스유전자 발현이 높게 나타납니다. H 유전자 하류의 ATU를 사용할 때는 복제가 증가하고 트랜스유전자 발현 수준은 낮아질 것으로 예상할 수 있습니다. 홍역 바이러스를 포함한 여러 파라믹소바이러스의 게놈 패키징에는 각 뉴클레오캡시드 단백질에 의한 6개 뉴클레오티드의 결합이 필요합니다. 이러한 바이러스에 트랜스유전자를 삽입할 때는 전체 게놈의 뉴클레오티드 수가 6으로 나누어떨어지는지 확인하십시오. 이를 "6의 법칙(rule of six)"이라고도 합니다. 필요한 경우, 프레임 시프트나 조기 종결 코돈을 도입하지 않고 삽입물(Kozak 서열 상류 또는 종결 코돈 하류)에 추가 뉴클레오티드를 포함하십시오. [M] 트랜스유전자 내에서 MV 유전자 시작(AGGRNCMARGW) 및 정지(RTTAWANAAAA) 신호, 그리고 RNA 편집 서열(AAAAAGGG)과 유사한 특정 서열은 피하십시오.
    3. [O] 원하는 서열의 올리고뉴클레오티드를 구매하거나, 표준 분자 클로닝을 사용하여 사용 가능한 서열로부터 조립합니다.
      참고: [O] 트랜스유전자의 중합효소 연쇄 반응(PCR) 증폭을 위해, 상류 제한 효소 부위와 삽입물의 처음 15-20 뉴클레오티드를 포함하는 정방향 프라이머와, 삽입물의 마지막 15-20 뉴클레오티드 및 하류 제한 효소 부위를 포함하는 역방향 프라이머를 설계하십시오.
  2. [O] 바이러스 (안티-)게놈을 인코딩하는 DNA에 삽입물 클로닝.
    1. [O] 표준 분자 클로닝 기술(즉, 효소적 제한 후 DNA 라이게이션)을 통해 RNA 바이러스의 DNA 벡터 또는 DNA 안티게놈에 삽입물을 클로닝합니다.
      1. [O] 비호환 제한 효소 부위를 사용하거나 라이게이션 전 탈인산화를 수행하여 벡터의 재라이게이션을 방지합니다.
      2. [O] 아가로스 겔 전기영동 후 시판 키트를 이용한 겔 정제로 라이게이션 산물을 분리합니다. 일반적으로 삽입물과 벡터의 몰 비율이 3:1일 때 최적의 라이게이션 효율이 달성됩니다.
    2. [O] 라이게이션 산물을 대형 플라스미드의 효율적인 회복에 적합한 컴피턴트 박테리아에 형질전환(즉, E. coli의 열 충격 수행)하고, 콜로니 PCR을 통해 정확한 DNA를 보유한 박테리아 클론을 식별합니다.
    3. [O] 시판 DNA 조제 키트를 사용하여 단일 박테리아 클론에서 증폭된 DNA를 분리합니다. 적절한 제한 효소(예: MV 게놈의 경우 HindIII [M])를 이용한 대조 절단으로 게놈의 무결성을 확인합니다. 시퀀싱을 통해 트랜스유전자의 정확한 삽입 및 무결성을 확인합니다.
      참고: [M] MV H-ATU에 삽입된 트랜스유전자의 경우, 다음 프라이머를 사용하여 생거 시퀀싱을 수행하십시오: H-9018 [정방향 프라이머, H 오픈 리딩 프레임(ORF)의 MV 게놈 위치 9018에 결합]: 5' GTGTGCTTGCGGACTCAGAATC 3'; L-9249+ (역방향 프라이머, L ORF의 MV 게놈 위치 9249에 결합): 5' CAGATAGCGAGTCCATAACGG 3'.

2. 면역 조절제를 인코딩하는 재조합 홍역 바이러스 입자의 복구

  1. [O] 각 바이러스의 표준 프로토콜에 따라 바이러스 생산 세포에 트랜스펙션을 수행하여 (항-)게놈 DNA로부터 재조합 바이러스 입자를 생성하십시오. 멸균 조건 하의 작업 지침을 준수하십시오. 세포 배양은 후드 내에서 수행하며, 특히 바이러스가 포함된 모든 단계는 class II 생물안전작업대(BSC)에서 수행하십시오.
    1. [M] cDNA로부터 홍역 바이러스를 회수하기 위해, 트랜스펙션 24시간 전에 MV 생산 세포(아프리카 녹색 원숭이 신장 유래 Vero 세포)를 6-well 플레이트에 균일하게 분주하십시오. 트랜스펙션 시점에 65–75%의 합류도(confluency)를 달성할 수 있도록 well당 10% fetal bovine serum (FBS)가 포함된 2 mL Dulbecco's Modified Eagle's Medium (DMEM)에 2 x 10⁵ cells를 seeding 하십시오.
      참고: [P] 바이러스로 유도된 싱시티움(syncytia) 형성 전에 세포가 과성장하는 경우 세포 수를 줄이십시오.
    2. [P] 바이러스 항-게놈을 인코딩하는 DNA, 필요한 헬퍼 플라스미드, 그리고 필요에 따라 트랜스펙션 효율을 평가하기 위한 형광 리포터 인코딩 플라스미드를 세포에 트랜스펙션하십시오.
      1. [M] 홍역 바이러스 항-게놈을 인코딩하는 재조합 DNA 5 µg, 홍역 바이러스 N 및 L 단백질을 인코딩하는 포유류 발현 플라스미드 각 500 ng, 그리고 P 단백질을 인코딩하는 플라스미드 각 100 ng을 총 부피 200 µL의 DMEM에 혼합하십시오. 트랜스펙션 효율 평가를 원하는 경우(그리고 바이러스 항-게놈 컨스트럭트 내에 이미 존재하지 않는 경우), 형광 리포터 플라스미드 100 ng을 포함하십시오.
      2. 리포좀 트랜스펙션 시약 18.6 µL를 첨가하고 튜브를 톡톡 쳐서 즉시 혼합한 후, 상온(RT)에서 25분 동안 배양하십시오.
      3. [P] 배지를 well당 1.8 mL의 DMEM, 2% FBS, 50 µg/mL kanamycin(또는 오염 방지를 위한 기타 항생제)으로 교체한 후, 트랜스펙션 혼합물을 well에 한 방울씩 첨가하고 조심스럽게 흔들어 섞어주십시오. 세포를 37 °C, 5% CO2에서 하룻밤 동안 배양하십시오. 다음 날 배지를 2 mL의 신선한 DMEM, 2% FBS, 50 µg/mL kanamycin으로 교체하십시오. 배지가 산성화되면 이 과정을 반복하십시오.
        주의: [O] 트랜스펙션부터 이후 단계까지 바이러스가 존재할 수 있으므로 생물안전 규정에 따라 세포와 재료를 취급하십시오. (잠재적) 감염성 폐기물은 적절하게 폐기하십시오.

결과

figure-results-1

그림 1: 홍역 바이러스 게놈의 모식도. 리더(ld) 서열 하류의 추가 전사 단위에 강화 녹색 형광 단백질(eGFP)이 인코딩되어 있다. N, P, M, F, H, L은 각각 홍역 바이러스의 구조 단백질인 뉴클레오단백질, P 단백질, 매트릭스 단백질, 융합 단백질, 헤마글루티닌 단백질, 그리고 거대 단백질(중합효소)을 인코딩하는 유전자를 나타내며, 위에서 시각화된 바와 같이 서로 다르게 발현된다. 이중특이성 T 세포 인게이저(BTE) 트랜스진이 H 오픈 리딩 프레임 하류의 추가 전사 단위(ATU)에 삽입되어 있다. 이 트랜스진은 효율적인 분비를 위한 면역글로불린 카파(Igκ) 리더 펩타이드뿐만 아니라, 검출 및 정제를 위한 인플루엔자 헤마글루티닌(HA) 및 헥사-히스티딘(His) 단백질 태그를 인코딩한다. 각각 CD3와 CD20을 표적으로 하는 항체의 가변 중쇄(VH) 및 가변 경쇄(VL) 도메인을 코딩하는 유전자들은 글리신(G)과 세린(S) 잔기를 포함하는 펩타이드 링커 서열을 via 연결되어 있다. 트랜스진 서열 앞에는 Kozak 서열이 위치한다. 코딩 영역 하류에는 '6의 법칙(rule of six)'을 준수하기 위한 예시로 추가 뉴클레오타이드가 포함되었다. 삽입 카세트 양 끝에는 해당 ATU로의 삽입이 가능하도록 두 개의 제한 효소 부위가 배치되어 있다.

재료

이 논문에 사용된 재료 목록
이름회사카탈로그 번호댓글
Rapid DNA Dephos & Ligation KitRoche Life Science, Mannheim, Germany4898117001 
CloneJET PCR Cloning KitThermo Fisher Scientific, St. Leon-RotK1231 
AgaroseSigma-Aldrich, Taufkirchen, GermanyA9539-500G 
QIAquick Gel Extraction KitQIAGEN, Hilden, Germany28704 
NEB 10-beta Competent E. coliNew England Biolabs (NEB), Frankfurt/Main, GermanyC3019I 
QIAquick Miniprep KitQIAGEN, Hilden, Germany27104 
제한 효소 HindIII-HFNew England Biolabs (NEB), Frankfurt/Main, GermanyR3104S 
Dulbecco's Modified Eagle's Medium (DMEM)Invitrogen, Darmstadt, Germany31966-021 
소 태아 혈청 (FBS)Biosera, Boussens, FranceFB-1280/500 
FugeneHDPromega, Mannheim, GermanyE2311선택 가능한 다른 transfection 시약으로 대체 가능
KanamycinSigma-Aldrich, Taufkirchen, GermanyK0129 
Vero 세포ATCC, Manassas, VA, USACCL81 
6-well 플레이트Neolab, Heidelberg, Germany353046 

태그

리포좀 형질전환바이러스 안티게놈헬퍼 플라스미드형광 현미경 검사씽시큠 형성리포터 단백질 발현생산 세포바이러스 구조