유세포 분석법(Flow cytometry)은 특정 세포군을 분리하고 연구할 수 있게 하는 강력한 도구입니다. 본 프로토콜에서는 신생아 형질전환 생쥐의 와우 조직에서 LacZ 발현 세포를 분리하는 단계를 설명합니다. 분리된 와우 세포는 유세포 분석을 통한 분리 전, β-galactosidase의 형광 결합 기질을 사용하여 표지되었습니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
이 논문에서
요약
초록
특정 세포 유형을 분리하면 줄기/전구 세포와 같은 희귀 세포 집단을 분석할 수 있습니다. 내이 조직을 연구하는 이러한 접근 방식은 관심 세포의 수가 매우 적고 형질전환 리포터 마우스 모델이 부족하기 때문에 독특한 어려움이 있습니다. 본 프로토콜에서는 형광 결합 프로브를 사용하여 신생아 달팽이관에서 LacZ 양성 세포를 선택적으로 표지하는 방법을 설명합니다.
감각신경성 난청의 가장 흔한 근본 병리는 소리 파동을 신경 충격으로 변환하는 데 필요한 와우 감각모세포의 가역적이지 않은 손상과 소실입니다. 최근의 증거에 따르면 생쥐의 청각 및 전정 기관에는 재생 잠재력을 가진 줄기/전구 세포가 존재함이 시사되었습니다1,2. 이러한 발견은 줄기/전구 세포 특성을 가진 특정 세포 유형의 식별을 포함한 추가 연구의 필요성을 뒷받침합니다. Wnt 신호 전달 경로는 여러 장기 시스템에서 줄기/전구 세포 집단을 유지하는 데 결정적인 역할을 하는 것으로 입증되었습니다3-7. 저희는 최근 신생아 와우에서 Wnt에 반응하는 Axin2 발현 세포를 확인하였으나, 그 기능은 대부분 알려지지 않은 상태입니다8.
이러한 Wnt 반응성 세포의 in vitro 행동을 더 잘 이해하기 위해, 우리는 Axin2-LacZ 리포터 마우스9의 와우에서 Axin2 발현 세포를 분리하는 방법을 개발하였습니다. 유세포 분석법을 사용하여 신생아 와우에서 Axin2-LacZ 양성 세포를 분리함으로써, 살아있는 세포를 대상으로 다양한 실험을 수행하여 이들의 줄기/전구 세포로서의 행동을 조사할 수 있었습니다. 본 논문에서는 신생아 와우의 미세 해부, 조직의 해리, 형광 기질을 이용한 LacZ 양성 세포의 표지 및 세포 분리 단계에 대해 상세히 설명합니다. 와우를 단일 세포로 해리하고 유세포 분석법을 통해 와우 세포를 분리하는 기술은 이미 보고된 바 있습니다2,10-12. 우리는 신생아 와우에서 LacZ 발현 세포를 분리하는 새로운 프로토콜을 수립하기 위해 이러한 기술들을 수정하였습니다.
프로토콜
1. 와우의 미세 절제
- 표면을 70% ethanol로 닦고 아이스 블록을 배치하여 후드 내의 해부 현미경을 준비한다.
- 멸균 조건에서 35 mm 페트리 접시 10-15개를 준비하고, 멸균된 Calcium 함유 Hank's Balanced Salt Solution (HBSS)을 절반 정도(~2 ml) 채운다.
- 멸균 조건에서 35 mm 페트리 접시 2개를 준비하고, 멸균된 1x phosphate buffered solution (PBS)을 절반 정도(~2 ml) 채운다.
- 50 ml conical Falcon tube에 70% ethanol을 넣어 미세 핀셋을 멸균한다.
- 멸균 후드와 분리된 별도의 방에서, 홍채 가위를 사용하여 생후(P) 0-3일 된 Axin2LacZ/+ 리포터 마우스 12-15마리의 머리를 절단하여 아이스 블록 위의 60 mm 페트리 접시에 놓는다.
- #5 Dumont 핀셋과 홍채 가위를 사용하여 하악골과 혀를 절제하고, 구개 높이에서 두개저를 절단한다.
- 두개관 상부의 피부를 제거하고, 가위를 대후두공 하단에서 구개 중앙까지 삽입하여 두개저를 횡단 절단한다.
- 이소골 캡슐이 손상되지 않도록 주의하면서, 홍채 가위로 구개의 절단된 가장자리부터 두개관 상단까지 양측을 각각 절개한다.
- 대후두공 상단에서 시작하여 경구개의 관상 절단면까지 45도 각도로 두 번 절개하여 측두골 분리를 완료한다.
- 분리된 측두골을 아이스 블록 위의 HBSS가 담긴 35 mm 페트리 접시에 넣는다.
- 희생시킨 약 12-15마리 동물로부터 측두골을 수집하여 총 24-30개의 측두골을 확보한다.
- 분리된 측두골이 담긴 페트리 접시를 앞서 준비한 멸균 해부 후드(1.1)로 옮긴다.
- 미리 준비한 HBSS 함유 35 mm 페트리 접시(1.2) 각각에 측두골 4개씩을 옮기고 아이스 블록 위에 놓는다.
- 두 개의 #55 핀셋을 사용하여 이소골 캡슐 위에 있는 측두골의 피질, 뇌간 및 소뇌를 조심스럽게 제거하며 미세 해부를 시작한다.
- 이소골 캡슐을 제거하지 않은 상태에서, 전정와우신경이 이소골 캡슐로 들어가는 입구부터 시작하여 와우 캡슐의 일부를 깎아낸다.
- 와우 기저부가 노출되면 와우와 주변 조직을 조심스럽게 끌어낸다. 기저부부터 시작하여 남아 있는 나선신경절과 혈관조를 제거한다.
- 와우를 아이스 블록 위의 PBS 함유 35 mm 페트리 접시로 옮긴다.
- 최적의 조직 생존력을 위해 전체 해부 시간은 60 min 미만이어야 한다.
- Axin2-LacZ 마우스의 대조군으로서 wild-type (WT) P0-P3 마우스 3-5마리에 대해 위의 단계를 반복한다.
2. 세포 해리 (기존에 설명된 방법에서 수정됨)2,10
- 배치하십시오 50 μl 코팅되지 않은 6-웰 배양 접시의 웰 중앙에 멸균 PBS를 넣습니다.
- 최대 20개의 Axin2를 옮기십시오.LacZ/+ 각각의 달팽이관에 50 μl PBS 방울. 새로운 50 μl PBS 한 방울을 20개 이상의 달팽이관에 사용해야 합니다.
- 예열 50 μl 0.125% 트립신 분주액으로 약 2분 동안 37°C 항온수조
- 추가 50 μl 달팽이관이 포함된 PBS에 미리 데워둔 0.125% 트립신을 추가한다.
- 6-웰 플레이트를 ~에 놓으십시오. 37°C 디쉬를 흔들지 않도록 주의하며 8분 동안 유지합니다.
- 트립신화를 중단하려면 다음을 첨가하십시오. 50 μl 각각에 대두 트립신 억제제를 100 μl 액적
- 추가하십시오 50 μl 전배지(Full Media, FM) (DMEM/F12 내 IGF-1, EGF, bFGF, HS, ampicillin)의2
- ~을 사용하여 300 μl p200 pipetteman을 사용하여 설정한 뭉툭한 피펫 팁으로 125 μl기포가 생기지 않도록 주의하며 세포를 80회 부드럽게 트리튜레이션(trituration)하십시오.
- 각 액적을 파이펫팅하여 혼합한 후, 추가로 200 μl 각 웰에 FM을 추가합니다.
- 세포를 ~에 통과시킵니다. 40 μm 새 웰에 파란색 Falcon 세포 스트레이너를 넣습니다.
- 세포를 표준 Falcon FACS 튜브(약 300 μl 마쇄 및 여과 후 남은 잔여물).
- 야생형 달팽이관에서 분리한 세포를 3개의 튜브에 나누어 담고 희석합니다. 100 μl ~와 함께 300 μl 각 튜브에 FM을 넣습니다. 튜브 하나는 공시료 대조군(blank control)으로 사용하고, 다른 하나는 프로피듐 아이오다이드(PI, 1 μg/ml)만 (이 단계에서는 추가하지 않음) 사용하며, 마지막 시료는 배경 형광을 검출하기 위해 3-carboxyumbelliferyl β-D-galactopyranoside (CUG, 2.15 참조)로 염색합니다.
- 배치하십시오 400 μl 각 FACS 튜브 내의 Axin2-LacZ 와우 유래 해리 세포 중. CUG 단독 대조군으로서, 희석하십시오. 10 μl ~ 내의 세포의 390 μl FM(단계 2.15의 튜브 F 참조). 남은 모든 튜브의 부피를 다음으로 맞춘다. 400 μl.
- 세포를 다음 조건에서 배양하십시오. 37°C 가습 인큐베이터에서 10분 동안 배양합니다.
- CUG 용액 준비:
- 준비하십시오 200 μl 염색이 필요한 각 FACS 튜브당 CUG의...
- 빛 노출을 최소화한 암실 후드 내에서 CUG를 FM에 1:50 비율로 희석하십시오.
- 희석된 CUG를 다음 온도에서 예열하십시오. 37°C 3~5분 동안.
- 다음으로, 추가하십시오. 200 μl 희석된 CUG를 각각의 해당 FACS 튜브에 분주합니다. CUG를 처리하지 않는 튜브에는 FM만 첨가합니다(2.15 참조).
- 이 단계에서 다음과 같은 내용물이 담긴 다섯 가지 분류의 튜브가 준비되어 있어야 합니다(이 단계에서는 PI를 추가하지 마십시오).
- 야생형 - CUG 또는 PI 없음 (보정의 경우, 단계 3.5-6 참조)
- 야생형 - PI 단독 처리(보정용)
- 야생형 - CUG 및 PI 포함 (Axin2-LacZ 세포에 대한 대조군용)
- Axin2-LacZ - CUG만 포함 (보정용)
- Axin2-LacZ - CUG 및 PI 포함 (실제 세포 분리용)
- Axin2-LacZ - CUG 및 PI 포함 (이벤트 분석용)
- 모든 튜브를 빛으로부터 차단하고 다음의 조건에서 배양하십시오. 37°C 가습 인큐베이터에서 25분 동안 배양합니다.
- 인큐베이션 후 반응을 중단시키기 위한 신선한 HEPES + 소태아혈청(FBS) 용액을 준비하십시오.
- 희석하십시오 400 μl 15 ml Falcon 튜브에 담긴 10 ml의 멸균된 10 mM HEPES(PBS 내)에 갓 해동한 FBS를 추가합니다.
- 2.16 단계가 완료될 때까지 튜브를 얼음 위에 보관하십시오.
- 빛 노출을 최소화하기 위해 조명을 끈 상태로 멸균 후드 내에서 각 FACS 튜브에 얼음처럼 차가운 HEPES 용액 1.8ml를 첨가하십시오.
- 세포를 1200rpm에서 5분 동안 원심분리합니다.
- 상청액을 제거하고 세포를 다음으로 재현탁합니다. 300 μl FM, 분리 샘플(CUG 및 PI로 염색된 Axin2-LacZ)을 위해 모든 분주액을 하나로 모으십시오.
- 각 튜브에 PI를 첨가하여 최종 농도가 다음이 되도록 합니다. 1 μg/ml.
- 세포를 얼음 위에 두고 빛으로부터 차단하십시오.
3. 유세포 분석법
- 488-nm, 633-nm 및 407-nm 레이저가 장착된 BD Aria II를 사용합니다. CUG 검출은 407-nm 바이올렛 레이저를 사용하여 수행하였으며, PI 검출은 Stanford Shared FACS Facility에서 488-nm 블루 레이저를 사용하여 수행하였습니다.
- 숙련된 유세포 분석기 운용자가 필요합니다. 레이저를 예열하고, 제조사 지침에 따라 분석기 검출기를 보정하며, 최적의 소팅 파라미터를 설정한 후 다음 단계로 진행하십시오. 본 연구진의 경험상 100 μm 노즐을 사용하는 것이 후속 실험을 위한 세포 생존율을 최적화하는 것으로 확인되었습니다.
- 다음 파라미터를 사용하였습니다: 임계값(threshold) 5,000 events, 유속 3,000 events/second 미만, 전방 산란광(FSC) 125 volts 및 측방 산란광(SSC) 250 volts, PI에는 PE-Cy5 채널을, CUG에는 Cascade Blue 채널을 사용하였습니다.
- 유세포 분석기 챔버를 70% ethanol과 PBS로 각각 두 번씩 순서대로 세척하십시오.
- 염색되지 않은 야생형 세포(단계 2.15의 튜브 A)로 분석을 시작합니다. 1,000 events를 수집하여 FSC 대 SSC 플롯에서의 세포 분포를 결정하십시오. 산란광 결과가 적절하지 않은 경우 FSC 및 SSC 파라미터를 조정하십시오.
- 염색되지 않은 WT(튜브 A), PI 염색 WT(튜브 B), CUG 염색 Axin2-LacZ(튜브 D) 세포를 사용하여 보정(compensation)을 수행하십시오. 보정을 통해 서로 다른 레이저 파장 간의 신호를 더 정확하게 구별할 수 있습니다.
- 야생형 PI 및 CUG 염색 세포(튜브 C)로 분석을 시작하고 다음의 게이팅 파라미터를 설정하십시오:
- FSC 대 SSC 플롯을 기반으로 한 데브리스(debris) 제거.
- FSC-height 대 FSC-area 플롯을 이용한 더블릿(doublet) 및 응집체 제거.
- FSC-area 대 PE-Cy5-area 플롯을 기반으로 한 사멸 세포 제거.
- FSC-area 대 Cascade Blue-area 플롯을 설정하고 임의의 게이트를 배치합니다.
- 다음으로, Axin2-LacZ PI 및 CUG 염색 세포가 들어 있는 소팅 샘플 튜브(튜브 F)에서 10,000 events를 분석하십시오.
- 야생형 세포를 사용하여 설정한 모든 게이트를 여기에 적용해야 합니다.
- 야생형 세포의 플롯을 사용하여 전체 event 수의 1% 미만인 Cascade Blue-high 세포 게이트를 생성하십시오.
- 동일한 Cascade Blue-high 게이트를 적용하면 Axin2-LacZ 샘플 세포의 약 15-20%가 포함되며, 이들이 Axin2-high 세포가 됩니다.
- Axin2-LacZ 세포의 분석 플롯을 사용하여 형광 강도가 가장 낮은 15-20%의 세포 게이트를 생성하며, 이를 Axin2-low 세포라고 합니다.
- 앞서 언급한 게이팅 전략에 따라, 500 μl FM이 담긴 FACS 튜브에 세포를 소팅하십시오. Axin2-high 세포용 튜브 하나와 Axin2-low 세포용 튜브 하나를 준비하십시오. 소팅 하는 동안 수집 튜브가 4°C로 냉각된 챔버에 있는지 확인하십시오.
- 각 세포 집단에 대해 유세포 분석기로 카운트한 세포 수를 기록하십시오.
4. 대표 결과 (그림 2 참조):
위의 프로토콜을 통해, 야생형 및 Axin2LacZ/+ 와우(그림 2A 및 B) 모두에서 일반적으로 40-45%의 데브리스(debris)가 없는 세포를 회수하며, 그 중 약 70%는 더블릿(doublet)이 없는 세포입니다(그림 2A' 및 B' 참조). 분류된 대부분의 세포는 생존 가능하며 PI를 흡수하지 않았습니다(~95%) (그림 2A'' 및 B''). 평균적으로 상위 ~20%의 CUG 양성 세포가 Axin2-LacZ 양성 세포로 간주되며(그림 2B'''), 이는 동물 10-12마리당 약 15,000개의 Axin2-LacZ-high 세포에 해당합니다.
Axin2-high 세포의 유세포 분석 재분류 분석 결과, Cascade Blue 채널에서 93% 이상의 순도가 나타났습니다. 이러한 세포의 정체성을 추가로 확인하기 위해, anti-β-galactosidase 항체를 사용하여 Axin2-high 및 Axin2-low 세포 모두에 대해 분류 후 면역염색을 수행하였으며, 그 결과 Axin2-high 세포는 약 93.4%의 β-galactosidase 양성 세포를 포함하고(1,500개 이상의 세포 분석), Axin2-low 세포는 약 4.8%의 β-galactosidase 양성 세포를 포함하고 있음을 확인하였습니다.
그림 및 표:

그림 1.실험 패러다임. 위 그림은 프로토콜 섹션에서 설명한 전반적인 실험 전략과 기술을 나타낸다. 야생형 및 Axin2LacZ/+ 마우스로부터 달팽이관을 채취하여 단일 세포로 분리한 후, β-galactosidase의 형광 기질인 CUG로 처리하였다. 그 후 유세포 분석을 통해 Axin2-LacZ-high 세포와 -low 세포를 분리하였다. 여기를 클릭하여 이 이미지의 전체 크기 버전을 확인하십시오.


그림 2.게이팅 전략. 이 그림은 사용된 유세포 분석 게이팅 전략을 보여준다. A) Axin2-LacZ 세포와 동일한 처리를 거친 해리된 야생형 세포를 총 10,000개의 이벤트로 분석하였다. 첫 번째 패널은 측방 산란 면적(SSC-A) 대비 전방 산란 면적(FSC-A)을 보여준다. 여기서 y축에 가까운 이벤트보다 훨씬 크기가 큰 뚜렷한 이벤트 그룹이 나타난다. 이 이벤트들은 "Debris Negative"로 지정된다. 다음 게이트인 A'는 패널 A의 "Debris Negative" 세포를 분석하며, 이는 전체 이벤트 수의 43.8%에 해당한다(아래 표 참조). 이 패널에서는 전방 산란 높이(FSC-H) 대비 FSC-A를 사용하여 더블릿을 제외한다. 플롯의 예상되는 선형 특성에서 벗어난 이벤트들은 제외된다. 이 과정은 일반적으로 지정된 게이트 내에 약 70%의 이벤트를 생성하며, 나머지 세포들은 제외된다. 패널 A''에서는 PE-Cy5 채널로 검출된 propidium iodide (PI)를 사용하여 사멸 세포(5.3%)를 표지한다. 다음 패널(A''')에서는 Cascade blue 채널을 사용하여 형광 기질 CUG를 검출한다. 여기서 LacZ-high 게이트는 전체 이벤트의 1% 미만을 포함한다. B) CUG 및 PI로 처리된 Axin2-LacZ 마우스 유래 해리 세포를 총 10,000개의 이벤트로 분석하였다. 패널 A와 동일한 게이트가 여기에 적용되었다. B'는 세포의 29.5%가 더블릿으로 제외되었음을 보여주며, B''는 5.4%가 생존하지 않았음을 보여준다. LacZ-high 및 -low 세포에 대한 초기 게이트는 패널 B'''를 사용하여 설정되었으며, 초기 LacZ-high는 19.7%, LacZ-low는 20.4%로 설정되었다. 여기를 클릭하여 이 이미지의 전체 크기 버전을 확인하십시오.
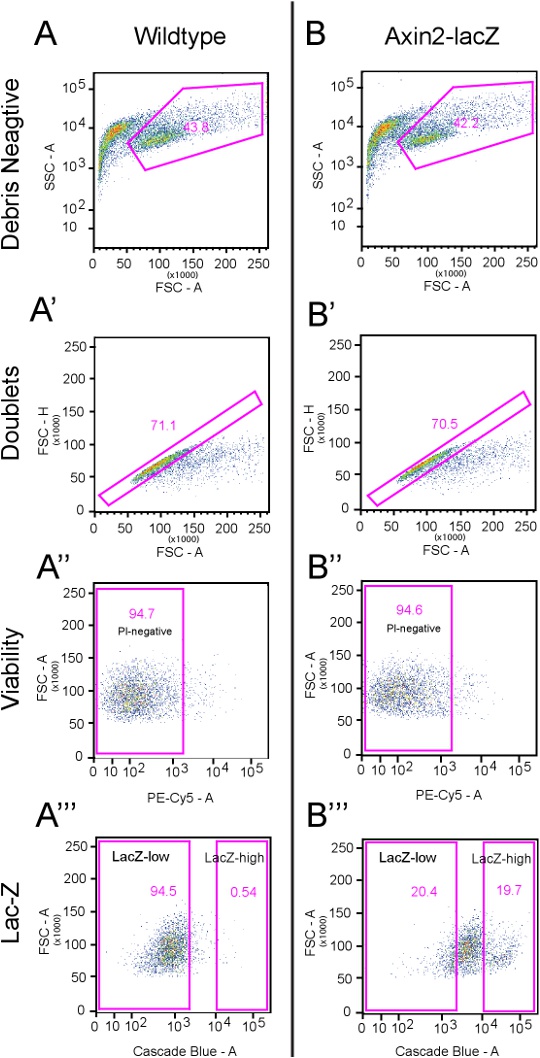
| 이벤트 번호 | 백분율 | ||
| A | 야생형 분석 | 10,000 | |
| A' | 데브리 음성 | 4,381 | 43.80% |
| A'' | 더블렛 네거티브 | 3,116 | 71.10% |
| A''' | PI 음성 | 2,951 | 94.70% |
| LacZ-고발현 | 16 | 0.54% | |
| LacZ-저발현 | 2,790 | 94.50% | |
| B | Axin2-LacZ 분석 | 10,000 | |
| B' | 데브리 음성 | 4,218 | 42.2% |
| B'' | 더블렛 네거티브 (Doublet Negative) | 2,973 | 70.50% |
| B''' | PI 음성 | 2,813 | 94.6% |
| LacZ-고발현 | 553 | 19.70% | |
| LacZ-저발현 | 573 | 20.40% |
표 1. 그림 2의 게이팅 전략에 대한 정량적 분석.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
독립적인 연구들을 통해 신생아 달팽이관 내의 제한적인 재생 능력이 규명되었습니다2,10,12,13. White와 동료들은 GFP-리포터 마우스와 유세포 분석법을 사용하여 특정 달팽이관 지지 세포를 분리하였으며, 이들이 전구 세포의 특성을 가지고 있음을 발견했습니다12.
정준 Wnt 경로(canonical Wnt pathway)는 뇌, 유선, 조혈계, 피부 및 위장관의 장샘(intestinal crypts)을 포함한 여러 장기 시스템에서 줄기/전구세포 집단을 표시하는 것으로 입증되었습니다. 최근 연구에서는 신생아 와우(neonatal cochlea)의 특성이 잘 알려지지 않은 세포 집단에서 활성 Wnt 신호 전달이 발견되었습니다8. Axin2-LacZ 리포터 마우스9는 다른 시스템5,7과 마찬가지로 와우 내 활성 Wnt 신호 전달을 충실하게 읽어냅니다8. 이러한 A...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
선언된 이해상충 없음.
감사의 글
유익한 토론을 해주신 S. Heller, K. Oshima, R. Nusse, Y. Zeng 님과 기술적 지원을 해주신 C. Tang, A. Lee, E. Liaw 님, 그리고 Stanford Shared FACS Facility 직원분들께 감사드립니다. 본 연구는 Howard Hughes Medical Institute Medical Research Training Fellowship, Stanford University Medical Scholars 프로그램(모두 T.A.J. 지원), Stanford University Dean's Fellowship(R.C. 지원), American Otological Society, Triological Society, Percy Memorial Award, Akiko Yamazaki 및 Jerry Yang Faculty Scholar Fund, 그리고 NIDCD/NIH K08 DC011043(모두 A.G.C. 지원)의 지원을 받아 수행되었습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 페트리 접시, 폴리스티렌, 멸균 Geriner Bio-one 35 x 10 mm | VWR international | 82050-540 | |
| BD Falcon 세포 스트레이너, 멸균, BD Biosciences, blue, 40 μm | VWR international | 21008-949 | |
| 행크스’ 균형염용액 (HBSS). 칼슘, 마그네슘 포함, 페놀 레드 미포함, 멸균 용액 | VWR international | 45000-456 | |
| Cellstar 원심분리 튜브, 폴리프로필렌, 멸균, greiner bio-one, 50 ml | VWR international | 82050-346 | |
| Cellstar 원심분리 튜브, 폴리프로필렌, 멸균, greiner bio-one, 15 ml | VWR international | 82050-278 | |
| B-27 무혈청 보충제 (50x), 액체 | Invitrogen | 17504-044 | |
| N-2 보충제 (100x), 액체 | Invitrogen | 17502-048 | |
| bFGF, 인간 염기성 섬유아세포 성장 인자 | Sigma-Aldrich | F0291 | |
| IGF-1, 마우스 유래 인슐린 유사 성장 인자-1 | Sigma-Aldrich | I8779 | |
| EGF, 인간 상피세포 성장인자 | Sigma-Aldrich | E9644 | |
| Dulbecco’변형 이글 (Modified Eagle)’배지/Ham’F-12 50/50 Mix: 1X, L-Glutamine 및 15 mM HEPES 함유 | VWR international | 45000-350 | |
| BD Falcon 라운드 바텀 튜브, 일회용, 폴리스티렌, 12x75 | VWR international | 60819-295 | |
| Trypsin, 0.25% (1X) with EDTA 4Na, 액체 | Invitrogen | 25200-056 | |
| ep Dualfilter 팁 300uL, 960개입 | Eppendorf | 22491245 | |
| 트립신 억제제, 대두, 정제됨 | Worthington Biochemical | LS003570 | |
| BD Falcon 40um 세포 스트레이너 | BD Biosciences | 21008-949 | |
| 멀티웰 플레이트, 폴리스티렌, Greiner Bio-One, 비처리 플레이트, 6웰 | VWR international | 82050-846 | |
| 마커 유전자 FACS Blue LacZ 베타-갈락토시다아제 검출 키트 | 마커 유전자 기술 | M0255 |
참고문헌
- Li, H., Liu, H., Heller, S. Pluripotent stem cells from the adult mouse inner ear. Nat. Med.. 9, 1293-1299 (2003).
- Oshima, K. Differential distribution of stem cells in the auditory and vestibular organs of the inner ear. J. Assoc. Res. Otolaryngol. 8, 18-31 (2007).
- Barker, N. Identification of stem cells in small intestine and colon by marker gene Lgr5. Nature. 449, 1003-1007 (2007).
- Jaks, V. Lgr5 marks cycling, yet long-lived, hair follicle stem cells. Nat. Genet. 40, 1291-1299 (2008).
- Kalani, M. Y. Wnt-mediated self-renewal of neural stem/progenitor cells. Proc. Natl. Acad. Sci. U.S.A. 105, 16970-16975 (2008).
- Willert, K. Wnt proteins are lipid-modified and can act as stem cell growth factors. Nature. 423, 448-452 (2003).
- Zeng, Y. A., Nusse, R. Wnt proteins are self-renewal factors for mammary stem cells and promote their long-term expansion in culture. Cell Stem Cell. 6, 568-577 Forthcoming.
- Chai, R. Dynamic Expression of Lgr5, a Wnt Target Gene, in the Developing and Mature Mouse Cochlea. J. Assoc. Res. Otolaryngol. , Forthcoming.
- Lustig, B. Negative feedback loop of Wnt signaling through upregulation of conductin/axin2 in colorectal and liver tumors. Mol. Cell Biol. 22, 1184-1193 (2002).
- Diensthuber, M., Oshima, K., Heller, S. Stem/progenitor cells derived from the cochlear sensory epithelium give rise to spheres with distinct morphologies and features. J. Assoc. Res. Otolaryngol. 10, 173-190 (2009).
- Savary, E. Cochlear stem/progenitor cells from a postnatal cochlea respond to Jagged1 and demonstrate that notch signaling promotes sphere formation and sensory potential. Mech. Dev. 125, 674-686 (2008).
- White, P. M., Doetzlhofer, A., Lee, Y. S., Groves, A. K., Segil, N. Mammalian cochlear supporting cells can divide and trans-differentiate into hair cells. Nature. 441, 984-987 (2006).
- Zhang, Y. Isolation, growth and differentiation of hair cell progenitors from the newborn rat cochlear greater epithelial ridge. J. Neurosci. Methods. 164, 271-279 (2007).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
