부르크 홀데 리아의 sartisoli RP037-mChe와 전 세포 bioreporter 분석은 물 불포화 모델 시스템에서 공기로 채워진 모공을 해소 균사체에 의한 능동 수송 후 세균 분해 가능한 유기 오염 물질 (즉, 플루 오렌)의 분수를 감지하기 위해 개발되었다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
방법 논문
전체 셀 Bioreporter 접근 물 불포화 시스템에서 유기 오염 물질의 운송과 생체 이용률을 평가하기 위해
이 논문에서
요약
초록
오염 물질의
생체 이용률은 토양에서 효과적인 생분해를 위한 전제 조건입니다. 그러나 오염 물질의 평균 벌크 농도는 가용성에 대한 적절한 척도가 아닙니다. 오히려 생체 이용률은 미생물 세포에 대한 화합물의 잠재적 질량 전달(플럭스)의 동적 상호 작용과 미생물 세포의 화합물을 분해하는 후자의 능력에 따라 달라집니다. 토양의 수분이 부족한 부분에서 균사체는 센티미터 범위에 걸쳐 유기 화합물을 적극적으로 운반하고 동원하여 생체 이용률 제한을 극복하는 것으로 나타났습니다. 균사체 기반 수송의 범위는 화학적 수단으로 쉽게 정량화할 수 있는 반면, 박테리아 세포에 대한 오염 물질의 생체 이용률을 검증하려면 생물학적 방법이 필요합니다. 이러한 제약을 해결하기 위해 PAH 플루오렌(FLU)을 모델 화합물로 선택하고 공간적으로 분리된 FLU 포인트 소스와 Pythium ultimum의 균사체 네트워크에 의해 FLU 분해 바이오리포터 박테리아 Burkholderia sartisoli RP037-mChe를 연결하는 물 불포화 모델 소우주를 개발했습니다. bioreporter는 세포에 대한 PAH 플럭스에 대한 반응으로 eGFP를 표현하기 때문에 컨포칼 레이저 스캐닝 현미경(CLSM)을 통해 소우주에서 직접 박테리아 독감 노출 및 분해를 모니터링할 수 있습니다. CLSM 및 이미지 분석은 균사체 또는 독감이 없는 대조군에 비해 P. ultimum의 존재 하에서 eGFP 발현의 현저한 증가를 보여주었으며, 이는 균사체 매개 수송 후 박테리아에 대한 FLU 생체 이용률을 나타냅니다. CLSM 결과는 동일한 소우주에서 화학 분석에 의해 뒷받침되었습니다. 개발된 소우주는 오염 물질의 생체 이용률을 조사하고 관련된 박테리아-균사체 상호 작용을 동시에 시각화하는 데 적합한 것으로 입증되었습니다.
서론
토양은 밀도가 박테리아 같은 미생물 1, 2의 넓은 범위에 의해 채워집니다. 그러나,이 서식지의 조건은 특히 물 이용 3의 관점에서, 도전이다. 박테리아는 영구적 이종 환경에서 최적의 조건 (4)를 검색 할 필요가 있지만, 물의 연속 필름 부재는 자유롭게 확산을 방해하도록 제한된 이동성 5 초래된다. 또한, 용질의 확산 속도 (예를 들어, 양분) 불포화 조건 하에서 6 낮아진다. 따라서, 박테리아와 영양분은 종종 물리적으로 분리하고 영양 접근성은 3 제한됩니다. 결과적으로, 물이 연속 상을 요구하지 않는 화학 물질에 대한 전송 벡터는 이러한 한계를 극복하는 데 도움이 있었다. 사실, 균류 및 oomycetes 많은 미생물하여 도달 모비 공기로 채워진 기공 공간을 통해 성장 할 수 있도록 사상 성장 양식을 개발했다LIZING는 실제 장거리 영양소 7, 8 탄소 물질을 분리. 심지어 박테리아 9 당 및 기타 에너지 원을 제공하는 생물학적 전송 벡터로서 작용할 수있다. 통풍 및 균사 생물의 전송은 또한 Pythium ultimum 10 또는 arbuscular mycorrhizal 곰팡이 (11)의 다환 방향족 탄화수소 (PAH)와 같은 소수성 유기 오염 물질에 대한 나타났다. PAH는 유비쿼터스 저조한 수용성 오염 물질이 토양에 12이기 때문에, 균사 매개 교통 잠재적 인 세균 degraders에 대한 오염 물질의 생체 이용률을 증가하는 데 도움이 될 수 있습니다. 오염물 수송 총량 케미컬 직접 정량화 될 수있는 반면 분해 세균 및 다른 생물체에 의해 수송 균사 오염물 생체 이용률 쉽게 평가 될 수 없으며, 10을 의미한다.
다음 프로토콜 myce의 영향을 평가하기위한 방법을 제시직접 방식으로 세균 degraders에 오염 물질이 생체 이용률에 대한 LIA; 이 미생물 생태계에 오염 물질의 시공간에 미치는 영향에 대한 정보를 수집 할 수 있습니다. 우리는 어떻게 균사 전송 경로를 통해 PAH-굴욕 bioreporter 박테리아와 물리적으로 분리 된 PAH 포인트 소스를 연결하여 토양에 공기 - 물 인터페이스를 흉내 낸 정교한 불포화 소우주 시스템을 설정에 대해 설명합니다. 항공 운송은 제외되어 있기 때문에, 세균 PAH의 생체 이용률에 균사 기반 전송의 효과는 격리 방법으로 공부하실 수 있습니다. 보다 구체적으로, 세 개의 링 PAH 플루 오렌, 균사 유기체 Pythium ultimum과 bioreporter 박테리아 부르크 홀데 리아 sartisoli RP037-mChe (13)는 설명 소우주의 설정에 적용되었다. 세균 B. sartisoli RP037-mChe는 원래 셀 (14)에 페난 트렌 플럭스을 연구하기 위해 지어졌습니다에 PAH 플럭스의 결과로 녹색 형광 단백질 (eGFP는)을 강화 표현한다mCherry는 항시 적으로 발현되는 반면, 적색 형광 셀. 기자의 구성에 대한 자세한 정보는 TECON 등. 예비 시험에서 (13)에 의해 제공됩니다, 세균은 수영과 매우 느린 득시글 거리는 능력을 보이지 않았다. 그것은 균사의 상단에 조밀 한 서스펜션으로 적용 할 때 Pythium의 ultimum의 균사에 천천히 마이그레이션 할 수 있었다. 박테리아가 다음과 같은 프로토콜의 아가로 오스에 포함 되었기 때문에, 균사에 이주가 발생하지 않았다.
공 초점 레이저 주사 현미경 (CLSM)을 이용하여, bioreporter 박테리아는 소우주 직접 시각화 될 수 있고 eGFP는 표현은 소프트웨어 ImageJ에의 도움으로 (mCherry 신호에 비례) 세포의 양과 관련하여 정량화 할 수있다. 이것은 다른 시나리오에서 질적으로 생체 이용률을 비교 할 수 있습니다 (즉, 높거나 낮은). 독감은 P.에 의해 균사 전송 후 생물학적 인 것으로 밝혀졌다 ultimum (즉, 그것을) 음성 대조군보다 높았다. 또한, 프로토콜은 화학적 수단을 통해 매개 된 수송 균사의 총량을 정량화하고 동일한 소우주 규소 코팅 된 유리 섬유 (SPME 섬유)를 사용하여 생체 이용률 오염물을 확인하는 방법을 설명합니다. 이 소우주 설정을 사용하여 결과 발표 및 P.의 조합에 대해 논의되었다 ultimum, 플루 오렌 및 B. sartisoli RP037-mChe 15. 여기서, 초점은 상기 애플리케이션에 대한 가능성이 기술을 제공하는 방법의 상세한 설명 및 프로토콜의 전위 함정 식별에 놓여있다. 또한 응용 프로그램 (오염 된 사이트의 예) 각종 곰팡이, 박테리아 종을 포함, 및 기타 오염 물질 (예를 들면, 농약) 또는 오염 물질 공급 (예를 들어, 세 토양) 할 수 있습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
요리, 슬라이드 배양 챔버 1. 준비
- 각각의 소우주에 대해 다음 재료를 준비합니다 하나의 큰 플라스틱 페트리 접시 바닥 (D = 10cm), 수정 (단계 1.2 참조) 뚜껑 작은 플라스틱 페트리 접시 바닥 (D = 5cm)과 세 충치 하나의 계산 챔버 슬라이드.
- 페트리 접시 바닥 부분의 원하는 번호 (D = 5cm)를 가져 가라. 정확히 슬라이드 (26mm 에지 길이)에 맞게 톱으로 가장자리의 일부를 제거합니다. 시스템을 소독하기 위해 70 % 에탄올 O / N에서 배양 접시 바닥과 뚜껑을 담가 UV 빛 아래 흐름 캐비닛에 최소 2 시간 동안 건조한다. 또한 2 시간 동안 자외선에 노출되었던 단단히 밀봉 플라스틱 용기에서 배양 접시를 저장합니다.
- 70 % 에탄올과 슬라이드의 원하는 번호 닦아을 공기를 말린다. 알루미늄 호일에 슬라이드를 감싸고 가능한 오염을 제거하기 위해 450 ℃에서 5 시간 동안 머플에 넣어.
- 뚜껑 유리 배양 챔버를 준비합니다. 70 % 에탄올로 청소하고 흐름 캐비닛에 최소 2 시간 동안 자외선에 열려있는 챔버를 노출합니다.
주 : 뚜껑 큰 데시 케이 터 (직경 약 30cm)가이 목적을 위해 이용 될 수있다; 각 데시 케이 터 10 소우주의 설정까지 수용 할 수 있습니다.
미디어 및 문화 2. 준비
- 수정 트립 효모 매체 (MTY) 14, 21 세기 최소한의 매체 (16) (MM)의 약 150 ml의, 최소 배지 한천 5 ㎖를 100 ㎖ 구 (20) 병렬 소우주를 실행하려면, 세 (MMA, 0.5 % / V w) 감자 덱 스트로스 한천 플레이트 (PDA; 1.5 %, w / v)를 용 P. ultimum, 4 빈 접시, 2 mg을 L -1 사이클로 헥, 네 아가 플레이트를 포함하는 하나 PDA 판 (3 %, w / v)의 0.3를 포함 g ml의 -1 활성탄 2 mg의 부분에서 독감의 40 mg을.
- MTY 카나마이신의 50 mg을 L -1을 포함 준비 (카나마이신은의 requir입니다ED는 세균 배양을위한 10 mM의 아세테이트를 포함하는 eGFP는 기자 플라스미드)과 MM을 유지합니다. 소우주에서 박테리아의 고정화 0.5 % MMA를 준비하는 아세테이트없이 MM를 사용 Pythium의 ultimum와 소우주 설정 배양에 1.5 %의 PDA의 판 (각 20 ml)에 붓는다.
- P.의 일부 균사를 접종 세 신선한 PDA 판에 ultimum과는 약 72 시간 동안 25 ° C에서 어둠 속에서 배양한다. 그런 다음 판 신선한 솜털 균사체에 의해 완전히 자란되어 있는지 확인하십시오.
- B의 두 문화를 시작합니다 글리세롤 주식에서 MTY 50 ㎖에 sartisoli RP037-mChe. 230 rpm으로 회전 플라스크 운동 O / N 30 ° C에서 품어.
- 측정 문화 광학 밀도 (OD) 578 nm에서 원심 분리기 10 분 동안 1,000 XG에 (B. sartisoli RP037-mChe를 들어, 예상 OD (578)은 약 1.0이고, 세포는 지수 상에있다). 뜨는을 취소하고 세포를 다시 일시 중지MM의 적당량 0.4 OD 578에 도달한다. 50 mg을 L -1 재현 탁 세포의 400 μL와 카나마이신을 포함하는 MM 20 ㎖를 접종한다. 230 rpm으로 회전 플라스크 운동 O / N 30 ° C에서 품어.
- MM의 문화의 OD 578을 측정 (B. sartisoli RP037-mChe를 들어, 예상 OD (578)은 약 0.2이고 세포는 초기 지수 단계에있다). 원심 배양은 10 분 2,000 XG 0.4의 OD에 도달하는 MM의 적절한 양으로 세포를 재 중단. 사용 때까지 50 ° C에서 셀 2 ml의 튜브에 따뜻한 액체 MMA의 500 μL와 서스펜션과 상점의 50 μl를 섞는다. 각각의 소우주에 대한 MMA에서 세포의 150 μl를 사용합니다.
- 활성 탄소를 포함하는 아가 로스 젤의 판을 따르십시오. 융해 (3 % W / V)을 두 번 증류수. (g ml의 -1 0.3)를 활성탄으로 잘 혼합 플라스틱 페트리 접시에 혼합물을 부어(D = 10cm).
설치 3. 소우주
참고 :. 완벽한 소우주 설정이 그림 1에 개략적으로 도시 모든 다음의 각 단계는 그림 1을 참조하십시오. 다음 단계는 균사 전송 벡터와 세 가지 제어 설정 (CON 공기, CON의 NEG, CON의 POS)과 샘플 (SAM)의 제조 방법을 설명한다. 모든 다른 설정의 요약은 표 1에서 찾을 수있다.
- 배양 접시와 슬라이드의 원하는 번호를 가지고 30 분 동안 흐름 캐비닛에서 자외선에 노출.
- 큰 하나 내부의 작은 페트리 접시를 놓고 작은 페트리 접시의 갭을 통해 슬라이드를 맞습니다. MMA의 따뜻한 세포 현탁액의 하나의 샘플을 가지고 하나의 슬라이드의 중간 공동으로 150 μl를 추가합니다. 모든 슬라이드의 중간 충치가 될 때까지이 단계를 반복합니다MMA 가득합니다. MMA 응고 5 분을 기다립니다.
- 빈 PDA 판에서 원형의 패치를 펀치 1cm 코르크 구멍 뚫는을 사용합니다. 작은 페트리 접시 내부의 MMA 옆에 2mm의 거리에서 하나의 패치를 놓습니다. (그림 1의 PDA 3) 설정에서 균사 생장을 촉진하기 위해이 추가.
- 기계적 장벽 곡선 된 PDA 패치를 잘라. 깨끗하고 무균 작은 배양 접시 바닥 부분을 사용하여 PDA 판으로 누르십시오. PDA 링 결과 한천에 0.5 cm의 거리에서 또 다른 작은 반지를 잘라 주걱을 사용합니다.
- 정확히 소우주 설정에서 작은 페트리 접시의 격차에 맞는 조각을 잘라 슬라이드의 상단에 격차 내부에 배치합니다. MMA와 원형 PDA 장벽 사이의 거리가 약 2mm 있는지 확인하십시오. 부드럽게 PDA 장벽으로를 누르면 작은 페트리 접시의 뚜껑을 닫습니다.
- 반복 2g의 L를 포함하는 PDA 플레이트 3.4과 3.4.1 단계 -1의 사이클로 헥.
참고 : 균사가 cycloheximide에 의해 억제되고 MMA를 자라다하지 않기 때문에 이것은 bioreporter 세포를 향해 공중 수송 (CON의 AIR)에 대한 제어 설정입니다.
- 빈 PDA 판의 원형 패치를 펀치 1cm 코르크 구멍 뚫는을 사용합니다. 첫 번째 패치의 중간을 잘라 다른 0.5 cm 코르크 구멍 뚫는을 사용합니다. PDA 장벽 (그림 1의 PDA 1) 옆에 1mm의 거리에서 결과 작은 PDA 링을 놓습니다.
- PDA 1.의 구멍 P.와 함께 자란 PDA 판에서 원형 패치를 잘라 1cm 코르크 구멍 뚫는에 독감의 2 mg을 추가 ultimum 및 균사 매트 독감 결정을 향하도록 PDA 링에 내려 바닥 (그림 1의 PDA 2) 하나의 패치를 배치합니다.
- 독감 결정을 추가하지 않고 이전 단계를 반복합니다.
참고 :이 배경을 결정하는 음성 대조군 설정 (CON NEG)입니다bioreporter 세포의 형광.
- 독감 결정을 추가하지 않고 이전 단계를 반복합니다.
- 활성 탄소를 포함하는 배지에서 원형 패치를 펀치 1cm 코르크 구멍 뚫는을 사용합니다. 또한 가스 독감 농도 (그림 1)을 감소하기 위해 각 축소판 설정에서 네 개의 패치를 놓습니다.
- 양성 대조군 (CON의 POS)를 준비합니다. MMA 세포 현탁액 200㎕의 일부 독감 결정을 추가하고 빈 슬라이드 중 하나 캐비티에 넣어.
- 챔버 내의 가스 독감 농도를 최소화하기 위해 배양 챔버의 바닥에 활성탄의 일부 가루와 함께 페트리 접시 (D = 10cm)를 놓습니다. 또한, 실내의 습도를 유지하기 위해 바닥에 멸균 물 4-5 50 ㎖ 비커를 놓습니다.
- 배양 챔버에 소우주의 설정을 전송하고 96 시간 동안 25 ℃에서 배양한다. 무작위로 다른 성장 챔버에 넣어 샘플 위치 효과를 제외한다.
참고 :이 배양 시간 AP = 연합 뉴스난균 강 P.에 플라이 ultimum. 그것은 다른 생물 다를 수 있습니다.
- 배양 챔버에 소우주의 설정을 전송하고 96 시간 동안 25 ℃에서 배양한다. 무작위로 다른 성장 챔버에 넣어 샘플 위치 효과를 제외한다.
4. 공 초점 레이저 주사 현미경
- 이상적으로 직립 현미경으로 CLSM 설정을 사용합니다.
주 : 기존의 레이저 제공하는 예를 들어, 여기에 대한 또는 조정 가능한 흰색 레이저 소스와 488, 561 및 633 nm의 라인을 갖추고 할 수있다. - 인가 전압 : 이미지의 수집을 위해 다음과 같은 설정을 사용하여 490 nm의 (eGFP는) 적절한 레이저 강도 (동시 여기)에서 585 나노 미터 (mCherry); 방출 범위 : 500 550 나노 미터 (eGFP는)과 605-650 nm의 (mCherry)에; 대물 렌즈 (인해 긴 작동 거리) 63X NA 0.9 물 침수; 0.5 μm의 : Z-스택에 대한 스텝 크기.
- 오픈 축소판 설정 및 PDA 1, 2, 3, PDA 장벽을 제거하기 위해 메스를 사용한다. MMA의 상단에 유리 커버 슬립을 넣고 기포를 제거하기 위해 부드럽게 누르십시오. 현미경 무대에 마운트 슬라이드. 제 위에 물방울을 추가전자 커버 슬립과 시료의 bioreporter 세포를 찾기 위해 mCherry 설정을 사용합니다.
- 샘플의 빠른 개요를하고 글로우 - 이상 - 아래 룩업 테이블 적색 (mCherry)과 녹색 (eGFP는) 채널을 사용하여 신호 대 잡음 비율을 최적화 할 수 있습니다. bioreporter 형광을 분석 할 수있는 샘플에 임의의 위치를 선택합니다.
참고 : 균사는 bioreporter 배출 (예를 들어, 녹색 형광도) 17의 범위에서 형광도를 표시 할 수 있습니다. 이 경우 경우 균사없이 영역을 선택해야합니다. - 정의하고 녹색 (eGFP는)과 적색 (mCherry) 채널의 각 위치를 Z-스택을 기록한다. 표면 형광 빛 또는 레이저 빛에 오래 노출하여 샘플의 표백을하지 마십시오.
- 열 무작위로, 균일하게 분포 된 위치를 반복 이전 단계.
- 테스트 트랙 (SAM), CON 공기, CON의 NEG와 CON의 POS의 모든 샘플에 대해 동일한 설정을 사용하여 모든 단계를 반복합니다.
5. 이미지 분석
참고 : 다른 옵션 사이에 자유 소프트웨어 ImageJ에 18 (http://rsb.info.nih.gov/ij/download.html)이 될 수 있습니다, 기록 된 Z-스택에 적색 (mCherry)과 녹색 (eGFP는) 형광을 분석하려면 사용.
- logi_tool 플러그인 (http://downloads.openmicroscopy.org/bio-formats/4.4.10/)를 설치해야합니다.
- ImageJ에있는 파일을 엽니 다. "분할 채널"과 가까이의 녹색 채널을 선택합니다. Z-스택에 빨간색 형광의 영역을 정량화하는 보조 코드 파일로 제공 매크로 'mCherry 영역'을 사용합니다. 매크로에서 기본 설정을 조정합니다 (볼드체로 표시).
- 출력 Z- 스택에서 측정 된 픽셀 임계 값보다 (그리고 정의 된 최소 크기 이상)와 테이블입니다.
주 : 모든 값의 합계는 스택에 빨간색 픽셀 (영역)의 총 수입니다.
- 출력 Z- 스택에서 측정 된 픽셀 임계 값보다 (그리고 정의 된 최소 크기 이상)와 테이블입니다.
- ImageJ에있는 파일을 엽니 다. "분할 채널 '과 가까운 빨강 채널을 선택합니다. 매크로를 사용하여 (216), 보조 코드 파일로 제공 eGFP는의 INT는 'Z- 스택에 녹색 형광의 강도를 정량화한다. 매크로에서 기본 설정을 조정합니다 (볼드체로 표시).
- 출력 Z-스택의 모든 녹색 객체 임계 값보다 (그리고 정의 된 최소 크기 이상)의 평균 농도와 면적 테이블입니다. 스택에서 녹색 화소의 총 강도를 계산하기 위해, 각각이 대응하는 영역에 의해 강도를 의미 곱한다.
- 상대 eGFP는 유도 (eGFP는 확인해)를 계산한다
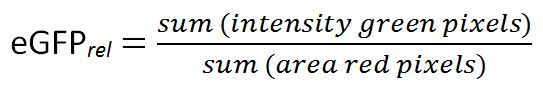 (1)
주 : mCherry는 항시 적으로 발현되므로, eGFP는 확인해의 결과 값이 셀들의 특정 량에 의해 표현 eGFP는 양의 상대 척도이다. 또한 eGFP는 확인해 계산에 대한 자세한 내용은 표 3을 참조하십시오.
주 : 소우주 셋업도 또는 비 생물학적 오염물 싱크없이 전좌 FLU 량의 화학 정량을 수행하는데 사용될 수있다.
- 알루미늄 호일에 15 ml의 유리 병, 1 ML의 GC / MS 튜브 및 삽입을 바꿈. 나 2 SO 4 요리를 증발 채우 가능한 오염을 제거하기 위해 450 ℃에서 5 시간 동안 머플의 모든 놓습니다. 활성화 된 데시 케이의 나 2 SO 4 내부를 저장합니다.
- 0.5 cm 길이로 PDMS 코팅 된 유리 섬유를 잘라. 신선한 메탄올 4 회 2 시간을 흔들어 섬유를 씻으십시오. 반복 세탁은 밀봉 된 유리 병에 초순수에서 초순수 및 저장 깨끗한 섬유와 또 다른 4 번 단계를 반복합니다.
- (: 1, v / V를 3)를 포함 10 μg의의 L -1 페난 트렌-D 10 톨루엔 / 아세톤 1.5 L를 준비합니다.
- 단계 1, 2, 프로토콜의 3을 수행합니다. bior없이 소우주를 준비독감 저하를 확인하고 bioreporter 세포 (SAM)와 () - (-)와 콘 AIR SAM () eporter 세포는 독감 전송을 연구한다.
- (bioreporter 세포없이) 옵션 : SAM의 MMA 내부 인공 및 정량화 할 수있는 오염 물질 싱크 (일반적으로 SPME 실험에 사용) 유리 섬유 코팅 장소 세 PDMS (-)를 미세 집게를 사용.
- 미세 집게를 사용하여 유리 섬유를 제거하고 삽입과 GC / MS 유리 병에 각각 전송합니다.
- 톨루엔의 200 μl를 추가하고 수직 O / N을 흔들 GC / MS를 통해 분석 할 수 있습니다. 표 2에서 제공되는 설정을 사용합니다.
- 15 mL 유리 병에 중간 공동에서 MMA를 전송하고 SO 4 나 2 세 주걱에 대해 추가합니다. 철저하게 주걱을 사용하여 혼합 용매 10 ㎖를 추가합니다. 소용돌이 혼합물과 어둠 속에서 수평으로 O / N를 흔들.
- 전송 (100)1, 삽입, GC / MS 유리 병에 시료의 리터. 아세 나프 틸렌 08-D (10 mg을 L-1) 10 μl를 첨가하고, 6.4.3에 기술 된 바와 같이 동일한 프로그램을 사용하여 GC / MS로 분석한다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
여기에 제시된 결과는 이미 이전에 15 발표되었다. 자세한 기계적 및 환경 논의에 대한 문서를 참조하십시오.
CLSM 통한 화상 기록 후, 최대 강도 투영 시료의 제 시각적 인상 제어 (도 2)를 얻기 위해 각각의 현미경 ImageJ에 또는 소프트웨어를 사용하여 수행 할 수있다. 이후, 상기 데이터 세트는 특정 시각화 소프트웨어에 의해 의미있는 특징을 보여주기 위해 상이하게 돌출 될 수있다. 양성 대조군 (CON의 POS)은 공기 제어 (CON의 AIR) 반면 만 배경 eGFP는 형광 (그림 2B)를 전시하고, 별개의 eGFP는 유도 (그림 2A)를 보여줍니다. 테스트 샘플 (SAM)에 eGFP는 형광은 CON AI...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
제시된 소우주 설정은 균사체에 의한 흡수와 수송 후 생물 분해에 공간적으로 분리 된 화학 물질의 생체 이용률을 연구하기에 적합 증명했다. 부분적 휘발성 화합물의 잠재적 기상 수송이 방지된다 bioreporter 박테리아 세포 성 시스템으로의 방해를 최소화하므로 정교한 시료 전처리없이 가시화 될 수있다. 동시에, 시료의 화학적 분석을 용이 얻은 결과 양호한 제어 및 전송의 총 수 정량을 실시 할 수있다. 그러나, 일부 포인트에 앞서 및 실험을 수행 할 때 고려되어야한다. 중요한 점은 어떤 세균이나 화학 교차 오염의 무료 소우주를 유지하는 것입니다. 많은 소우주가 병렬로 실행되며, 따라서, (예를 데시 케이 터 등의) 큰 배양 챔버가 요구되기 때문에 이것은 문제가 될 수있다. 그러므로, 설치 CONSTRUC하기에 앞서 모든 부분을 소독하는 것이 중요하다기. 또 다른 중요한 점은 소우주 플라스틱 페트리 접시를 적용 할 수있다. PAH bioreporter과 직접 접촉하지 않지만, 어느 정도의 PAH는 플라스틱 재료에 의해 흡수 ...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자는 경쟁적인 금전적 이해관계가 없음을 선언합니다.
감사의 글
독일 환경 재단(DBU)의 자금 지원이 인정되었습니다. 저자는 CLSM 분석에 대한 기술적 도움을 준 Ute Kuhlicke와 숙련된 실험적 도움을 준 Birgit Würz, Rita Remer 및 Jana Reichenbach에게 감사를 표합니다. 저자들은 특히 Jan Roelof van der Meer 교수와 Robin Tecon 박사에게 유익한 토론을 하고 bioreporter 균주를 제공한 것에 대해 감사를 표하고 싶습니다. 헬름홀츠 협회(Helmholtz Association)의 '환경 속의 화학물질(Chemicals in the Environment, CITE)' 연구 프로그램에 기여하고 있습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 컨포칼 현미경 | Leica | TCS SP5X, LAS AF - 버전 2.6.1; 또는 동급의 CLSM | |
| GC HP 7890 시리즈 GC 및 Agilent 5975C MSD | Agilent | 와 동등한 GC/MS를 GC | |
| 모세관 컬럼 J& 여 121-5522 | Agilent | ||
| 코르크 보어 | Fisher Scientific | 12863952 | 또는 기타 |
| 커버 슬립 | Marienfeld | 107222 | High performance, No.1.5H |
| GC/MS insterts | WICOM WIC 47080 | ||
| GC/MS 바이알 2 ml | WICOM | WIC 41150 | |
| 뚜껑 / 세프타 스크류 캡 바이알용 | DIONEX | 49463 / 049464 | |
| GC/MS 바이알용 뚜껑 | WICOM | WIC 43948/B | |
| 대물렌즈 슬라이드 | Menzel | 일반 | |
| PDMS 코팅 유리 섬유 | Polymicro Technologies, Inc. | V (PDMS) = 13.55 &플러스mn; 0.02 &마이크로; 엘 m-1 | |
| Petri Dishes 스몰 / 빅 | Greiner | 633-102 / 628-102 | |
| 스크류 캡 바이알 40 ml | DIONEX | 48783 | 기타 유리 바이알 사용 가능 |
| 스크류 캡 바이알 60 ml | DIONEX | 48784 | 기타 유리 바이알 사용 가능 |
| Acenaphthylene d08 | Dr. Ehrenstorfer | C 20510100 | |
| 아세톤 | Carl Roth | 9372.2 | |
| 활성탄 | Sigma-Aldrich | 242276-1kg | |
| Agarose | Carl Roth | 2267.4 | |
| Fluorene | Fluka | 46880 | |
| Kanamycin sulfate | Carl Roth | T832.2 | 50 mg L-1 |
| Methanol | Carl Roth | P7171 | |
| Minimal Medium: 100 ml Solution 1 + 25 ml Solution 2 + 5 ml Solution 3 ad. 1,000 ml aqua dest | |||
| Solution 1 | |||
| Ammonium sulfate | Carl Roth | 3746.1 | 5 g L-1 |
| 마그네슘 클로라이드 x 6 H2O | Carl Roth | 2189.1 | 1 g L-1 |
| 칼슘 질산염 x 4 H2O | Carl Roth | P740.1 | 0.5 g L-1 |
| Solution 2 | |||
| Disodium phosphate | Carl Roth | P030.1 | 55.83 g L-1 |
| Monopotassium phosphate | Carl Roth | 3904.1 | 20 g L-1 |
| Solution 3 (pH 6.0) | |||
| Disodium EDTA | MERCK | 1084180250 | 0.8 g L-1 |
| Iron(II) chloride x 4 H2O | MERCK | 1038610250 | 0.3 g L-1 |
| Cobalt(II) chloride x 6 H2O | Carl Roth | T889.3 | 4 mg L-1 |
| Manganese(II) chloride x 1 H2O | Carl Roth | 4320.2 | 10 mg L-1 |
| 구리(II) 황산 | 염 Carl Roth | P023.1 | 1 mg L-1 |
| Sodium molybdate x 2 H2O | Carl Roth | 0274.1 | 3 mg L-1 |
| 아연 염화 | MERCK | 1088160250 | 2 mg L-1 |
| 리튬 염화 | Carl Roth | P007.1 | 0.5 mg L-1 |
| Tin(II) chloride x 2 H2O | Carl Roth | 4473.1 | 0.5 mg L-1 |
| Boric acid | Riedel-de-Haen | 11606 | 1 mg L-1 |
| 포타슘 브로마이드 | Carl Roth | A137.1 | 2 mg L-1 |
| 요오드화 칼 | 로스 | 6750.1 | 2 mg L-1 |
| 바륨 클로라이드 | Carl Roth | 4453.1 | 0.5 mg L-1 |
| MMA | 최소 매체 + 아가로스 0.2% | ||
| Phenanthrene d10 | Dr. Ehrenstorfer | C 20920100 | |
| 감자 포도당 한천: 24 g L-1 육수 + bacto-agar 1.5%; pH 6.8 | |||
| 감자 포도당 육수 | Difco/ Beckton Dickinson | 254920 | |
| Bacto-agar | Difco/ Beckton Dickinson | 214040 | |
| 아세트산 나트륨 x 3 hydr. | Carl Roth | 6779.1 | |
| 황산나트륨 | MERCK | 1066495000 | |
| 톨루엔 | MERCK | 1083252500 | |
| mTY medium: 3 g L-1 효모 추출물, 5 지 L-1 bacto 트립톤 및 50mM NaCl | |||
| 효모 추출물 | Merck | 1037530500 | |
| Tryptone | Serva | 4864702 | |
| 염화나트륨 | Carl Roth | 3957.1 | |
| ImageJ with logi tool plugin | http://rsb.info.nih.gov/ij/download.html and http://downloads.openmicroscopy.org/bio-formats/4.4.10 | ||
| Pythium ultimum 균주 67-1 | Christoph Keel 박사의 실험실에서 획득; 스위스 로잔 대학교 기초 미생물학과 | ||
| Burkholderia sartisoli RP037-mChe | Jan Roelof van der Meer 교수의 연구실에서 획득; 스위스 University of Lausanne 기초미생물학과 |
참고문헌
- Holden, P. A., Fierer, N. Microbial processes in the vadose zone. Vadose Zone Journal. 4, 1-21 (2005).
- Whitman, W. B., Coleman, D. C., Wiebe, W. J. Prokaryotes: The unseen majority. Proceedings of the National Academy of Sciences. 95, 6578-6583 (1998).
- Kieft, T. L., et al. Microbial abundance and activities in relation to water potential in the vadose zones of arid and semiarid sites. Microbial ecology. 26, 59-78 (1993).
- Wang, G., Or, D. Aqueous films limit bacterial cell motility and colony expansion on partially saturated rough surfaces. Environ. Microbiol. 12, 1363-1373 (2010).
- Griffin, D. M. Water Potential Relations in Soil Microbiology SSSA Special Publication. Parr, J. F., Gardner, W. R., Elliott, L. F. , Soil Science Society of America. 141-151 (1981).
- Papendick, R. I., Camprell, G. S. Water Potential Relations in Soil Microbiology SSSA Special Publication. Parr, J. F., Gardner, W. R., Elliott, L. F. , Soil Science Society of America. 1-22 (1981).
- Boswell, G. P., Jacobs, H., Davidson, F. A., Gadd, G. M., Ritz, K. Functional consequences of nutrient translocation in mycelial fungi. J. Theor. Biol. 217, 459-477 (2002).
- Jennings, D. H. Translocation of solutes in fungi. Biol. Rev. Camb. Philos. Soc. 62, 215-243 (1987).
- Bais, H. P., Weir, T. L., Perry, L. G., Gilroy, S., Vivanco, J. M. The role of root exudates in rhizosphere interactions with plants and other organisms. Annu. Rev. Plant Biol. 57, 233-266 (2006).
- Furuno, S., et al. Mycelia promote active transport and spatial dispersion of polycyclic aromatic hydrocarbons. Environ. Sci. Technol. 46, 5463-5470 (2012).
- Gao, Y., Cheng, Z., Ling, W., Huang, J. Arbuscular mycorrhizal fungal hyphae contribute to the uptake of polycyclic aromatic hydrocarbons by plant roots. Bioresour. Technol. 101, 6895-6901 (2010).
- Semple, K. T., Morriss, A. W. J., Paton, G. I. Bioavailability of hydrophobic organic contaminants in soils: fundamental concepts and techniques for analysis. Eur. J. Soil. Sci. 54, 809-818 (2003).
- Tecon, R., Binggeli, O., vander Meer, J. R. Double-tagged fluorescent bacterial bioreporter for the study of polycyclic aromatic hydrocarbon diffusion and bioavailability. Environ. Microbiol. 11, 2271-2283 (2009).
- Tecon, R., Wells, M., vander Meer, J. R. A new green fluorescent protein-based bacterial biosensor for analysing phenanthrene fluxes. Environ. Microbiol. 8, 697-708 (2006).
- Schamfuss, S., et al. Impact of mycelia on the accessibility of fluorene to PAH-degrading bacteria. Environ. Sci. Technol. 47, 6908-6915 (2013).
- Smibert, R. M., Krieg, R. M., et al. Manual of methods for general bacteriology. Gerhardt, P., Murray, R. G. E., Costilow, R. N., Nester, E. W., Wood, W. A., Krieg, N. R., Phillips, G. B. 19, American Society for Microbiology. Washington, D.C. 409-443 (1981).
- Wu, C. H., Warren, H. L. Natural autofluorescence in fungi and its correlation with viability. Mycologia. 76, 1049-1058 (1984).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat. Methods. 9, 671-675 (2012).
- Pedersen, C., Sylvia, D. Ch. 8 Concepts in Mycorrhizal Research. Handbook of Vegetation Science. Mukerji, K. G. Vol. 19, Springer. Netherlands. 195-222 (1996).
- Furuno, S., et al. Fungal mycelia allow chemotactic dispersal of polycyclic aromatic hydrocarbon-degrading bacteria in water-unsaturated systems. Environ. Microbiol. 12, 1391-1398 (2010).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
