이 프로토콜은 HIV-1 뉴클레오캡시드 단백질의 샤페론 활성을 체외에서 억제할 수 있는 분자를 신속하게 식별할 수 있는 분석법인 NAME을 설명합니다.
방법 논문
뉴 클레오 캡시드 소둔 매개 전기 영동 (NAME) 분석은 HIV-1 뉴 클레오 캡시드 억제제의 신속한 식별을 할 수 있습니다
이 논문에서
요약
초록
RNA 또는 안정 삼차원 접는 접어 DNA는 항 종양 또는 바이러스 약물의 개발에 흥미있는 대상입니다. HIV-1의 경우에, 바이러스 활성의 조절에 관여하는 바이러스 성 단백질은 여러 핵산을 인식한다. 뉴 클레오 캡시드 단백질 NCp7 (NC)는 바이러스 복제 동안 여러 프로세스를 조절하는 핵심 단백질이다. NC 사실 RNA 및 DNA 및 어닐링을 용이 이차 구조를 불안정화 샤페론이다. NC의 불 활성화는 새로운 접근법 및 항 HIV 치료에 대한 흥미로운 대상이다. N은 nnealing- M은 E의 lectrophoresis ediated ucleocapsid (NAME) 분석에 의해, 타르의 머리 핀의 자형 구조와 HIV의 cTAR 요소로 열역학적으로 안정 삼차원 입체에 접어 RNA 및 DNA의 용융 및 어닐링을 억제 할 수 분자를 식별하기 위해 개발되었다 HIV-1의 뉴 클레오 캡시드 단백질. 새로운 분석은 재를 사용한다이전 라벨의 필요없이 combinant 또는 합성 단백질 및 올리고 뉴클레오티드. 결과의 분석은 통상적 인 핵산 염색 하였다 표준 폴리 아크릴 아미드 겔 전기 영동 (PAGE)에 의해 달성된다. 이 연구에서보고 된 프로토콜은 핵산 유능 모두, 산의 샤페론을 전장 단백질 또는 염기성 N 말단 도메인이 결여 그 절두 버전 NAME 분석을 수행하는, 방법에 의해 NC 샤페론 활성의 억제를 평가하는 방법을 설명 인터 칼 스레딩. 또한,이 식별 NAME NC 억제제의 작용 메카니즘에 표시 추정을 획득하기 위해, 다음의 두가지 상이한 모드로 유용하게 수행 될 수있다.
서론
인간 면역 결핍 바이러스 1 형 (HIV-1)의 뉴 클레오 캡시드 단백질 NCp7 (NC)는 역전사 동안 보조 인자로서 바이러스 복제에 중요한 역할을 단단히 성숙한 감염성 바이러스 게놈 RNA와 관련된 작은 염기성 단백질을 인 게놈 인식, 및 포장. 1-3 NC 안정한 핵산 구조체의 불안정화와 상보적인 서열의 어닐링을 촉매 핵산 샤페론 역할을한다. 양면 불안정화 활성의 징크 핑거 구조 (12-55 펩티드)에 매핑 된하면서 핵산 응집 활성은 11 개의 아미노산으로 주로 N 말단 도메인 상주. 4 양전하 단백질 어닐링 반응의 정전 장벽을 낮추고 두 개의 상보적인 서열이 함께 모여 속도를 증가시킨다.
안정된 형태로 접혀 핵산 facilitat하는 NC의 보호자 활동을 필요로즉 그들의 어닐링 5 이는 NC는 스트랜드 전송 이벤트에서 중요 역전사에서 특히 중요하다. 마이너스 가닥 전송에서 마이너스 가닥 정지 DNA가 단지 retrotranscribed, R 영역에 상보적인 서열로 옮기고 어닐링되어야 열역학적으로 선호되지만 RNA 게놈의 3 '말단에 주형. 6,이 반응으로 인해 R 영역에서 트랜스 활성화에 응답하여 영역 (TAR) RNA의 안정된 구조의 존재로 NC의 부재하에 광범위하게 발생하지 않는, 그는 그 DNA 사본 (cTAR DNA). 특성 줄기 루프 형태 7 cTAR 및 TAR은, 사실, 매우 구조화되어 지역에 연결되어 있어야합니다. NC 단백질이 머리핀을 변성하고, 상보적인 핵산 가닥 사이의 분자간 소둔 속도를 증가시킴으로써 마이너스 가닥의 전사를 촉진한다. TAR과 cTAR의 NC 소둔 메카니즘은 충분히 조사 및 드되었습니다여러 연구 논문에서 TAR 어닐링 분석으로 스크라이브 제안하는 기법은 우수한 리뷰에 도시되어있다. 8-11 요약하기는, NC는 이러한 TAR-RNA 안정적 RNA의 2 차 구조를 불안정하게 상보 시퀀스 cTAR-DNA의 2 차 구조를 불안정하게 , 결과적으로 어닐 TAR / cTAR heteroduplex를 형성 선도 RNA / DNA의 반응. 10,11 촉진 HIV 복제 중 가닥 - 전사 공정이 선호된다. 12
NC는 NC 향해 작은 분자에 의해 유도 된 간섭 가능성이 손상된 NC 활동의 결과로 바이러스 게놈의 역전사 환원 초래 보낸 새로운 항 바이러스제의 개발에 대한 매력적인 표적이다. 2,13이 접근 할 수있을 궁극적으로 성공적인 항 HIV 제의 개발로 이어질. NC 선별의 과정에서 우리는 잘 알려진 특성에 의존하는 분석을 개발 (14) 저해제효율적으로 불안정 뉴 클레오 캡시드 및 어닐링 보완 올리고 뉴클레오티드의. (10, 11) 우리는 N이 nnealing- M은 E의 lectrophoresis (NAME) 분석을 ediated ucleocapsid했다. NAME 분석은 하이브리드 TAR / cTAR의 heteroduplex를 수득하는 상보 DNA 서열 (cTAR)와 TAR-RNA 서열의 꼭대기 부에 대응하는 올리고 뉴클레오티드 우리의 경우, 상보적인 핵산을 안정적으로 구조화 사본 간의 어닐링을 중재하도록 NC를 사용 . NC의 존재 TAR / cTAR 어닐링 반응의 분석은 천연 폴리 아크릴 아미드 겔 전기 영동 (PAGE)에 의해 조사 될 수있다.
이 프로토콜은 빠르게 안정 헤어핀 구조에 접어 실내 온도 올리고 뉴클레오티드에서 어닐링에 NAME 분석을 수행하는 방법을 보여줍니다, 어떻게 실험의 반응 가능한 문제 해결의 결과를 분석합니다. 핵산의 방사성 라벨이 요청하고, detecti되지올리고 뉴클레오티드의 밴드에 종래의 염색 방법에 의해 수행 될 수있다. 재조합 전체 길이 단백질 또는 NC의 잘린 합성 버전을 사용 분석은, NC, RNA 및 DNA에 강한 결합과 상관 관계를 나타낸 활성을 억제 스레딩 인터 칼의 식별을 할 수 있습니다. (14)
프로토콜
소재, 핵산과 단백질의 제조 1.
- 핵산
- 1.5 ml의 튜브를 압력솥과 멸균 용기에 저장합니다. 오염 에이전트가 실험실 소모품에서 클레아 제를 즉 제거하는 살균 필터 정보를 사용하여 모든 단계를 수행합니다.
- DEPC 처리 된 물에 트리스 -HCl 10 mM의 버퍼 pH 7.5을 준비하고 0.22 ㎛의 공극 크기의 필터로 필터링 용액.
- 참고 : "TAR"라고 올리고 뉴클레오티드는 짧은 (29 메르) RNA 서열에 해당 5'-GGCAGAUCUGAGCCUGGGAGCUCUCUGCC-3 '15 cTAR는 DNA 상보 서열 5'-GGCAGAGAGCTCCCAGGCTCAGATCTGCC-3 동안'.
- 언급 한 위의 트리스 버퍼에 TAR와 cTAR 모두 용해 (1.1.2.) 100 μM 원액을 확인합니다. -20 ° C에서 보관 cTAR 원액 (분취 이러한 조건에서 개월 동안 저장 될 수있다). RNA의 장기 보존에, TAR 20㎕의 분취 액을스톡 용액을 진공 원심 농축기를 이용하여 각각의 분취 액을 건조시키고 -80 ℃에서 보관. 갓 사용하기 전에, 20 μL DEPC 처리 된 물에서 각 TAR 나누어지는을 재현 탁.
주 : 사용 TAR 씩 2 주 동안 -20 ℃에서 저장 될 수있다.
- 언급 한 위의 트리스 버퍼에 TAR와 cTAR 모두 용해 (1.1.2.) 100 μM 원액을 확인합니다. -20 ° C에서 보관 cTAR 원액 (분취 이러한 조건에서 개월 동안 저장 될 수있다). RNA의 장기 보존에, TAR 20㎕의 분취 액을스톡 용액을 진공 원심 농축기를 이용하여 각각의 분취 액을 건조시키고 -80 ℃에서 보관. 갓 사용하기 전에, 20 μL DEPC 처리 된 물에서 각 TAR 나누어지는을 재현 탁.
- NC 단백질 및 (12-55) 펩타이드 NC
- 보고 된 전체 길이 재조합 NC 단백질을 준비합니다. 16 점 -20 ° C에서 분량 씩 원액. 6410 cm -1 M -1의 280 nm에서의 흡광 계수를 이용하여 UV-비스 분광 정확한 단백질 농도를 결정한다.
- 합성 (12-55) 트리스 - 염산 10 mM의 pH가 7.5 NC 펩타이드를 재현 탁 및 -20 ° C에서 분량의 원액을 저장합니다. 5700 M의 280 nm에서의 흡광 계수를 사용하여 분광 광도계 UV-비스 올바른 펩타이드 농도를 결정 cm -1 -1.
참고 : (12-55) NC 펩타이드는 HPLC는 정제 lyoph을 얻었다아연 클로라이드 2 당량을 함유하는 용액으로부터 ilized.
- 화합물 1
- 분석 저울을 사용하여 동결 건조 된 화합물 (1)의 약 1 mg의 체중 및 고농도 (≈10 mM)을 스톡 용액을 얻었다, 100 % DMSO 100 ㎕, 마침 좋은시기에 칭량에 용해. 그것의 흡광 계수를 사용하여 분광 광도계 UV-비스에 정확한 화합물 농도를 측정 (354 nm에서 : 11,387 M -1 cm-1). 사용하기 전에 -20 ° C에서 어둠 속에서 원액을 저장합니다.
2. 젤 젤 장치 및 주조의 설정
- 건조를하자, 70 % 에탄올 (긴 하나는 짧은)을 두 판을 씻어 젤을 설정 한 다음 더 이상 판의 긴 가장자리를 따라 두 1mm 스페이서를 배치하려면; 짧은 플레이트를 커버하고 아래에있는 두 개의 접시를 정렬해야합니다.
- 젤을 캐스팅하기 위해, 좌제가 제공하는 지침을 따르십시오에르는 (; 샌드위치 클램프 스택 각 주조 장치에 의해 제공되는 다른 공급 업체는 약간 다른 장치를 사용). 모든 경우에, 클램프, 스택 및 가스켓이 깨끗한 지 확인하고, 이전 사용자가 왼쪽 아크릴 아미드의 흔적을 제거합니다.
- 주조 스탠드 조립 젤 샌드위치를 놓고 공급자의 특정 지침을 따르십시오.
참고 : 일반적으로 주조 슬롯의 바닥에 깨끗한 실리콘 가스켓은 좋은 도장을 보장하고 젤을 주입 할 때 누출을 방지하는 데 도움이됩니다. - 유리판 사이에 피펫을 사용하여 증류 물을 부어, 누출을 확인하십시오. 샌드위치를 작성하고 누수가 발생하지 있는지 확인하기 위해 몇 분 후에 물을 추가합니다. 샌드위치가 제대로 조립되어있는 경우, 물을 제거하고 안경을 건조 두 잔 사이에 종이 필터를 삽입합니다. 용지를 제거하고 이제 샌드위치 겔 캐스팅에 대한 준비가되어 있습니다.
- 실온 (RT, 25 ° C)에서 젤을 붓고. 폴리 아크릴 아미드가 매우 신경 독성 때문에, 장갑을 착용하십시오. 우리비 변성 (기본) 상태에서 전자 연속 12 % 폴리 아크릴 아마이드 겔은 NAME 분석을 수행 할 수 있습니다.
- 12 % 겔 용액을 준비 : 40 % 아크릴 아미드 12 ml의 혼합 / 비스 아크릴 아미드 (19/1) 솔루션 4 ML의 TBE 10 배 버퍼 (10 배 : 트리스 - 염산 890 mM의, 붕산염 890 mM의, EDTA 20 mM)을 24 ml의 한 MilliQ 물 . 400 μL APS 및 사용하기 전에 바로 TEMED 50 μl를 추가합니다. 솔루션을 혼합하고 빠르게 유리판 사이에 솔루션을 부어 피펫을 사용합니다. 거품을 방지 유리판 사이 빗 소개. 완전히 샌드위치를 채우기 위해 겔 용액을 추가합니다.
- 겔은 1 시간 45 분 동안 중합하자. 즉시 샘플 로딩하기 전에, 천천히 빗을 제거하고 철저하게 증류수로 우물을 씻어.
- 중합 우물 세척 단계 후, 수직 겔 전기 영동 장치에 젤 샌드위치를 배치 공급 업체에 적용되는 지시 사항을 따르십시오. 냉각 장치가있는 경우에 코르 겔 시스템을 배치 확인냉각 코어의 RECT 위치.
- 시스템이 하나 이상의 겔을 처리하도록 설계되었지만 하나만 겔이 실행되어야하는 경우, 전체 상부 버퍼 챔버를 형성하는 다른 쪽의 냉각 코어 버퍼 댐 겔 샌드위치 첨부.
주 : 댐이 정확하게 위치되지 않은 경우, 버퍼는 상부 겔 실행을 중지 가능성 누출. - (: 트리스 - 염산 89 mM의, 붕산염 89 mM의, EDTA 2 mM의 1 배) 탈 이온수에 버퍼를 실행 TBE의 2.5 L를 준비합니다. 버퍼 챔버 상부에 대해 TBE 완충액 약 500 ml의 간격을 설정하고 하부 버퍼 챔버로 나머지를 붓는다. 버퍼 챔버 상부에 잔존 한 500㎖ TBE 버퍼를 붓는다.
- 양극과 음극이 적절한 위치에 있도록, 상기 하부 버퍼 챔버의 상부에 덮개를 배치.
- 존재하는 경우 호스를 사용하여 물 꼭지에, 냉각 코어를 연결합니다. 전기 영동시 히트 싱크 (heat sink)의 역할을하고, 수돗물이 당선자 동안 코어를 순환하게됩니다 수돗물 코어를 채우기rophoresis.
3. 뉴 클레오 캡시드 소둔 매개 전기 영동 (NAME) 분석
- 버퍼의 준비
- TNMG 버퍼 준비 (1 배 : 트리스 - 염산 10 mM의 NaCl을 20 mM의, 마그네슘 (C10의 4)이 1 ㎜, 산도 7.5)에 DEPC 처리 된 물과 0.22 μm의 기공 크기의 필터 솔루션을 필터링 할 수 있습니다.
참고 : TNMG 버퍼가 칠일까지 4 ° C에 저장할 수 있습니다. 최고의 폴딩 및 어닐링 결과, 우리는 갓 만든 버퍼의 사용을 권장합니다. - SDS 포함 된 젤 로딩 버퍼 준비 (GLB SDS를 : 트리스 - 염산 100 mM의, EDTA 4 mm의 w 50 % / V 글리세롤, w 2 % / SDS V, 0.05 % 파란색 V 브로 모 페놀 / w) DEPC 처리 된 물.
참고 : GLB는 올리고 뉴클레오티드 샘플 겔 시스템으로 실행하는 방법까지 추적하는 데 도움이 겔에 샘플을 싱크 할 수 있습니다. GLB에 SDS 첨가 NAME 분석의 최적의 성공을위한 중요한 단계입니다. 이 단계를 따르지 않으면 GE 핵산의 대역을 구별하는 것은 불가능L 시스템 (그림 2).
- TNMG 버퍼 준비 (1 배 : 트리스 - 염산 10 mM의 NaCl을 20 mM의, 마그네슘 (C10의 4)이 1 ㎜, 산도 7.5)에 DEPC 처리 된 물과 0.22 μm의 기공 크기의 필터 솔루션을 필터링 할 수 있습니다.
- 준비를 제어
- 직렬 올리고 뉴클레오티드의 원액을 희석하고, TAR의 1 μM 용액 10 μl를 준비하는 갓 10 μm의 솔루션을 사용합니다. 별도로, 동일한 방식으로 준비 1 μM cTAR 10 μL TNMG 1X 버퍼. 5 분 동안 95 ° C에 각 튜브를 가열 한 후 자신의 줄기 팽창 루프 구조를 가정하는 TAR와 cTAR 위해서는 실온으로 냉각 둡니다.
- 제어 하이브리드 TAR / cTAR 1 μm의 솔루션을 준비합니다. 10 μL의 총 부피에서, TNMG 1 배에서 10 μM cTAR 1 μL 10 μm의 TAR의 1 μl를 섞는다. 5 분 동안 95 ° C로 튜브를 가열하여 올리고 뉴클레오티드를 변성과 그것을두고 TAR은 상호 보완적인 순서 cTAR에 어닐링하고 이중 가닥 하이브리드 TAR / cTAR을 형성하기 위해서는 RT 천천히 냉각.
- 용액이 실온으로 냉각되는 경우, 짧은 스핀 원심 분리를 수행. GLB SDS 3 μl를 추가, 피펫 EAC시간의 관 3 회 내부 솔루션과 얼음에 튜브를 넣어. 로딩 단계까지 얼음에 안정 제어 샘플을 보관하십시오.
- 샘플 준비 NC 단백질 및 (12-55) 펩타이드 NC 활성을 분석
- 각 샘플에 대한 갓 만든 4 μM 올리고 뉴클레오티드 솔루션의 2.5 μl를 사용합니다. 항상 피펫 오류를 방지하기 위해 각각의 용액을 약간 과량의 제조. 언급 한 위의 컨트롤 준비에 대한보고 TNMG 1X 버퍼에 cTAR의 개별적, TAR의 4 μM 솔루션의 32.5 μl를 접어 (단계 3.2.1.).
- MilliQ를 물 80 μm의 솔루션 모두 NC 단백질의 원액과 (12-55) NC 펩타이드를 희석.
- TAR과 cTAR 용액을 실온으로 냉각 될 때, 양쪽 튜브의 짧은 스핀 원심 분리를 수행하고 샘플 튜브의 제조를 시작한다.
- 튜브 고압 멸균 (12) 빈 0.5 ml의를 준비합니다. 실험실 샘플 랙에 4 관의 3 행을 놓습니다. 각 행은 일을 분석 할 수있는 각각의 샘플을 나타냅니다E 전장 NC 단백질, 단백질이없는 샘플 및 샘플 (12-55) 펩타이드 NC 활성을 분석한다.
- 항상 언제 다른 시약을 사용하는 팁을 교체합니다.
- 각각의 튜브에 접어 TAR의 2.5 μL 접혀 cTAR의 2.5 μl를 추가합니다. NC의과 (12-55) NC의 분석을 위해 샘플 4 μL의 DEPC 처리 된 물을 추가합니다. 다른 샘플 5 μL의 DEPC 처리 된 물을 추가합니다.
- 각각의 샘플을 80 μM NC의 1 μL 또는 80 μM (12-55) 1 μL NC 추가, NC 또는 (12-55) NC 분석.
- 각 튜브 3 회 내부의 솔루션을 피펫 팅 (그림 1에서 0으로보고) 시간 0 분 샘플을 GLB SDS의 즉시 3 μl를 추가하고, 마지막 얼음에 튜브를 넣어. 모든 샘플 및 컨트롤에 대해이 단계를 반복합니다. 로딩 단계까지 얼음에 정상 샘플을 보관하십시오.
- 15 분, 30 분, 실온에서 배양 한 시간 후, GLB SDS 3 μl를 추가 EAC 내부의 솔루션을 피펫H 관 3 회와 얼음에 튜브를 넣어. 각각의 모든 샘플과 컨트롤에 대해이 단계를 반복하고, 로딩 단계까지 얼음에 보관하십시오.
- 겔 장치의 덮개를 제거합니다. 로드 우물에 각 시료 13 μL는 이전에 잘 형성 빗 젤을 주조에 의해 설명 형성했다. 그림 1에보고 된 다음과 같은 순서로 샘플을로드합니다.
- 겔 장치의 덮개를 교체합니다. 전원 공급 장치의 겔에 붙여. 전극이 전원 공급 장치에 올바른 슬롯에 연결되어 있는지 확인합니다.
- 전원을 켜고 염료 겔의 바닥에서 1.5 cm로 이주 할 때까지, 2 시간 200 V의 일정한 전압에서 30 분 동안 젤을 실행합니다.
- 샘플 준비는 NC와 (12-55) NC에 안트라 퀴논 활동을 분석
- 화합물 1 원액을 희석. 500 μM의 10 μL, 250 μM, 화합물 50 μM, 5 μm의 희석을 준비 강한.
- 위에보고 제어 샘플을 준비 (3.2 절.).
- 각 샘플에 대한 갓 만든 4 μM 올리고 뉴클레오티드 솔루션의 2.5 μl를 사용합니다. 항상 피펫 오류를 방지하기 위해 각각의 용액을 약간 과량의 제조. TNMG 1X 버퍼에 cTAR의 개별적, TAR의 4 μM 솔루션의 27.5 μl를 접어은 위 (단계 3.2.1.) 언급했다.
- 물에 80 μm의 솔루션 모두 NC 단백질의 원액과 (12-55) NC 펩타이드를 희석.
- TAR과 cTAR 용액을 실온으로 냉각 될 때, 양쪽 튜브의 짧은 스핀 원심 분리를 수행하고 샘플의 제조를 시작한다.
- 튜브 고압 멸균 (20) 빈 0.5 ml의를 준비합니다. 실험실 샘플 랙에 10 관 각 2 행을 놓습니다.
- 항상 언제 다른 시약을 사용하는 팁을 교체합니다.
- 접힌 TAR의 2.5 μL와 함께 첫 번째 행의 모든 튜브를 추가합니다. 접힌 cTAR의 2.5 μL로 두 번째 행의 모든 튜브를 추가합니다.
- 해당 화합물의 2 μl를 추가 1 희석 TAR와 cTAR에 (500 μM 희석에 5 μM의 농도를 증가). 화합물의 부재에서 NC의 분석 및 (12-55) NC의 샘플에서 물 화합물을 교체합니다. RT에서 15 분 동안 샘플을 인큐베이션.
- 15 분 부화 후, 상대 TAR 샘플 (첫 번째 행의 튜브)와 cTAR 샘플 (두 번째 행의 튜브)를 섞는다.
- 각각 NC 또는 (12-55) NC 분석을위한 샘플을 80 μM NC의 1 μL 또는 80 μM (12-55) 1 μL NC를 추가합니다.
- 15 분 부화 후, GLB SDS 3 μl를 추가 할 때마다 튜브 3 회 피펫과 얼음에 튜브를 넣어. NC와 (12-55) NC 분석을위한 샘플을 사용하여, 각각이 단계를 반복합니다. 로딩 단계까지 얼음에 정상 샘플을 보관하십시오.
- 겔 장치의 덮개를 제거합니다. 우물에 각 시료 13 μl를로드합니다. 도에보고 된 순서에 따라 시료를로드우레의 3B.
- 겔 장치의 덮개를 교체합니다. 전원 공급 장치의 겔에 붙여. 전극이 전원 공급 장치에 올바른 슬롯에 연결되어 있는지 확인합니다.
- 전원을 켜고 염료 겔의 바닥에서 1.5 cm로 이주 할 때까지, 2 시간 200 V의 일정한 전압에서 30 분 동안 젤을 실행합니다.
- 샘플 준비 : NC-예비 배양 모드 대 올리고 - 예비 배양 모드
- 화합물 희석 1 원액. 500 μM의 10 μL, 250 μM, 50 μM, MilliQ를 물에 화합물 1의 5 μm의 희석을 준비합니다.
- 위에보고 제어 샘플을 준비 (3.2 절.).
- 각 샘플에 대해 4 μM 올리고 뉴클레오티드 솔루션의 2.5 μl를 사용합니다. 항상 피펫 오류를 방지하기 위해 각각의 용액을 약간 과량의 제조. 언급 위와 같이 TNMG 1X 버퍼에 cTAR의 개별적, TAR의 4 μM 솔루션의 27.5 μl를 접어 (단계 3.20.1.).
- 물에 80 μm의 솔루션 모두 NC 단백질의 원액과 (12-55) NC 펩타이드를 희석.
- TAR과 cTAR 용액을 실온으로 냉각 될 때, 양쪽 튜브의 짧은 스핀 원심 분리를 수행하고 샘플의 제조를 시작한다.
- 항상마다 시약이 변경 팁을 교체하거나 반응 관에 포함 된 다른 액체 또는 솔루션은 터치합니다.
- 이 단계에서 명확하게 라벨과 두 개의 서로 다른 사전 배양 절차에 대한 샘플을 분리해야합니다.
- 올리고 - 예비 배양 모드
- 튜브 고압 멸균 (10) 빈 0.5 ml의를 준비합니다. 실험실 샘플 랙에 5 튜브의 두 행을 놓습니다.
- 접힌 TAR의 첫 번째 행 2.5 ㎕를 각각의 튜브에 추가합니다. 접힌 cTAR의 두 번째 행 2.5 ㎕를 각각의 튜브에 추가합니다.
- 해당 화합물의 2 μl를 추가 1 희석 TAR와 cTAR에 (500 μM 희석에 5 μM의 농도를 증가).화합물의 부재에서 NC의 분석을 위해 샘플에서 물 화합물을 교체합니다. RT에서 15 분 동안 샘플을 인큐베이션.
- 15 분 부화 후, cTAR 샘플 (두 번째 행)을 타고 상대 TAR 샘플 (첫 번째 행)에 넣어.
- 각 샘플에 80 μM NC의 1 μl를 추가하고 실온에서 15 분 동안 샘플을 품어.
- 15 분 부화 후, GLB SDS 3 μl를 추가 할 때마다 튜브 3 회 피펫과 얼음에 튜브를 넣어. 로딩 단계까지 얼음에 정상 샘플을 보관하십시오.
- NC-예비 배양 모드
- 5 빈 0.5 ml의를 멸균 튜브를 준비하고 실험실 샘플 랙에 배치합니다.
- 적절한 화합물 (1) 희석 각 튜브 4 μL에 추가 (500 μM 희석에 5 μM의 농도를 증가). 화합물의 부재에서 NC의 분석을 위해 샘플에서 물 화합물을 교체합니다.
- 80 μ의 각 튜브에 추가 1 μL; M NC 실온에서 15 분 동안 샘플을 품어.
- 튜브에 접어 cTAR 15 μL 접혀 TAR의 15 μl를 혼합하고 다음 단계에서이 TAR + cTAR 솔루션을 사용합니다.
- 15 분 배양 후, TAR + cTAR 혼합 용액 5 μL를 각각의 샘플에 추가하고 RT에서 15 분 동안 샘플을 배양한다.
- 15 분 부화 후, GLB SDS 3 μl를 추가 할 때마다 튜브 3 회 피펫과 얼음에 튜브를 넣어. 로딩 단계까지 얼음에 정상 샘플을 보관하십시오.
주 :이 단계에 3.5.8에서 분석 된 모든 샘플 (3.5.7에서 복귀)으로 수행 될 수있다.
- 올리고 - 예비 배양 모드
- 겔 장치의 덮개를 제거합니다. 우물에 각 시료 13 μl를로드합니다. 그림 4에보고 된 다음과 같은 순서로 샘플을로드합니다.
- 겔 장치의 덮개를 교체합니다. 전원 공급 장치의 겔에 붙여. 전극이 전원 석류의 올바른 슬롯에 연결되어 있는지 확인Y.
- 전원을 켜고 염료 겔의 바닥에서 1.5 cm로 이주 할 때까지, 2 시간 200 V의 일정한 전압에서 30 분 동안 젤을 실행합니다.
4. 젤과 젤 염색 제거
- 전기 영동 후, 시스템에서 전원 공급 장치를 끄고 전원 리드를 분리합니다. 냉각 시스템의 수도꼭지를 끄고 핵심에서 호스를 분리합니다.
- 시스템이 냉각 된 경우, 냉각 코어를 제거하고 양원에서 버퍼를 부어 뚜껑을 제거하고.
- 조심스럽게 장치에서 젤 샌드위치를 분해하여 유리 접시에서 모든 클램프를 제거합니다. , 판에서 젤을 제거 플레이트의 측면에 밖으로 스페이서 중 하나를 밀어 올려 멀리 상부 유리 기판 부드럽게 비틀합니다. 겔의 두 모서리를 잡고 유리에서 제거 조심스럽게 들어 올립니다.
- 위한 목적 핵산 염색 용액으로 적당한 용기에 겔을 배치교반하면서 30 ~ 45 분.
- 염색 후, 겔계 핵산 형광 신호를 검출하는 transilluminator가 촬상 시스템에 겔을 넣어.
결과
도 1은 전체 길이 재조합 단백질) 내가 수행 뉴 클레오 어닐링 매개 영동 (NAME) 분석의 대표적인 결과를 나타내고, ⅱ) cTAR + TAR을 혼합하고 실온에서 1 시간까지 배양하고, 즉 단백질, 및 III없이 ) (12-55) NC, N 말단 도메인의 11 아미노산이 부족한 합성 펩티드로 수행 동일한 분석. 도 1에 예비 절첩 TAR과 cTAR이 혼합하고 열처리 heteroduplex를 TAR의 형성은 / cTAR 단백질의 부재 하에서, (도 1의 좌측 레인) 전체 길이 재조합 NC의 존재하에 모니터링 하였다 (중앙 차선 ),도 1의 절단 (12-55) 펩타이드 NC (우측 차선의 존재). 컨트롤이됩니다 자신의 느린 annealin 다음 cTAR에 TAR의 안정적 접힌 구조의 열 변성을 통해 얻은, cTAR 접힌 TAR 접혀, 하이브리드 (TAR / cTAR)를 어닐링g. (14)
확장 heteroduplex를 나선으로 두 안정한 핵산 서열을 변성 NC의 능력은 불확실한 : 전장 NC 단백질 TAR / cTAR 하이브리드 형성에 바로 리드 : 0 '에 NC 첨가 사이를 통과하는 최소 시간을 나타내고 샘플과의 반응을 정지 겔 로딩 완충액의 첨가; 완전한 형성은 이미 15 '배양 시간 후에 이루어집니다. heteroduplex를 어닐링의 강도의 증가는 절첩 cTAR TAR과 올리고 뉴클레오티드의 강도 저하를 평행. heteroduplex를 형성은 절두 형태의 존재 하에서도 달성 합성 펩티드의 생물학적 활성을 확인하고, (12-55)을 NC 즉된다. 단백질 또는 heteroduplex를 형성이 관찰되지 않은 펩티드, 및 TAR과 cTAR 올리고 뉴클레오티드의 부재로 heteroduplex를 실온 (도 1)에서 어닐링 할 수 없습니다. 에모든 실험, 불안정한 중간체 시간이 지남에 따라 감소 (그림 1의 "중간 단지")의 빠른 형성은 지속적으로 올바른 핵산 접이식까지 cTAR의 머리핀과 TAR 통해 가닥 교환의 제안 메커니즘, 관찰된다. (17)
실험의 가능한 문제 해결 젤 로딩 버퍼에 SDS의 부족이다. GLB SDS에서의 부재에서 반응의 결과는도 2에 도시되고 GLB + SDS 결과와 비교된다. 예비 절첩 cTAR TAR과 혼합하고 실온에서 3 시간 동안 인큐베이션 하였다 재조합 NC 전장 단백질과 37 ° C에서 3 시간 동안. SDS (GLB)없이 하나의 반 겔 로딩 버퍼로 다른 절반은 SDS GLB (GLB SDS)로하고있는 동안 첨가 하였다 : 배양 후 샘플을 두 분할 하였다. 샘플은 겔에 로딩하고, 핵산 대역의 위치에 의해 실행 후에 겔 가시화시켰다염료 염색. 이 예상되고 단백질과 핵산 사이에 강한 결합을 나타냅니다 : NC가 존재하지만 샘플 GLB로드 된 경우, 모든 핵산 밴드까지 이동했다. GLB SDS와 결과 겔의 맨 오른쪽에 나타낸다 : SDS의 첨가는 대조군과의 비교를 허용하고 단백질을 변성 단백질과 안정한 복합체로부터 핵산을 발표한다.
NAME 분석법 동적 핵산 구조를 안정화시키고 NC에게 샤페론 활성을 억제하는 인터 칼 스레딩의 능력을 평가하기 위해 사용된다.도 14 스레딩 인터 칼 같은 안트라 퀴논 등의 고리 계의 대향 위치에 위치하는 벌키 측쇄로 치환 평면 방향족 분자 도 3a에 도시. 선택된 인터 칼 (18)은 핵산의 이중 나선을 통과하여 할 수 있으며, 최종적으로 이중 각 홈에 측쇄를 찾는나선. (19, 20)
도 3b는 전체 길이 NC의 존재 또는 절단 된 펩티드의 화합물 1, 공지 관통 삽입 제, (18)의 존재하에 NAME 분석의 결과를 나타낸다. 두 경우 모두, NC 의해 TAR / cTAR 하이브리드 형성하는 동안, 동시에, 자유 TAR과 cTAR 량이 증가를 삽입 제의 농도를 증가시킴으로써 감소된다. N 말단 꼬리 (12-55NC)를 결여 단백질의 절단 된 형태의 활성 억제에 더 민감하다 : 이러한 차이는 지금까지 테스트 한 모든 화합물을 확인 하였다.
NAME 분석하거나 절첩 핵산 기판을 15 분 동안 시험 화합물을 전 처치가 두 가지 방법으로, 어느 절첩 올리고 뉴클레오티드 (NC-예비 배양 모드)을 첨가하여 NC와 시험 화합물을 대해 미리 배양에 의해 수행 될 수있다 , NC를 첨가하고, 15 분 (올리고 PR위한 추가적인 인큐베이션eincubation 모드). 전체 배양 시간은 다음의 두가지 상이한 모드로 동일하지만, NC 첨가 전에 절첩 올리고 뉴클레오티드는 예비 배양 절첩 핵산에 인터 칼의 관통을 위해 더 많은 시간을 허용한다. 이것은 그들의 동적 구조의 강력한 안정화와 NC의 보호자 활동을 쉽게 억제로 발생합니다. 도 4에 도시 된 바와 같이 두 가지 모드 NAME 분석법 분석 따라서, NC 억제제의 작용 메카니즘의 차이를 향상 : 화합물 1 올리고 예비 배양 모드 NAME로 분석하면 (도 4 왼쪽 차선) 훨씬 낮은 억제 NC-예비 배양 모드에서 관찰되는 반면이, NC 매개 어닐링의 강력한 억제를 보여줍니다 (그림 4, 오른쪽 차선). 이 분석으로 이러한 조건, 각 체험관에서 관련 화합물의 세트를 선별하는 동안 억제 농도의 측정에주의하시기 바랍니다3 중으로, 표준 (특히 IC 50 값 정도) 가깝게 이격 된 농도를 이용하여 적어도 수행되어야한다. 14
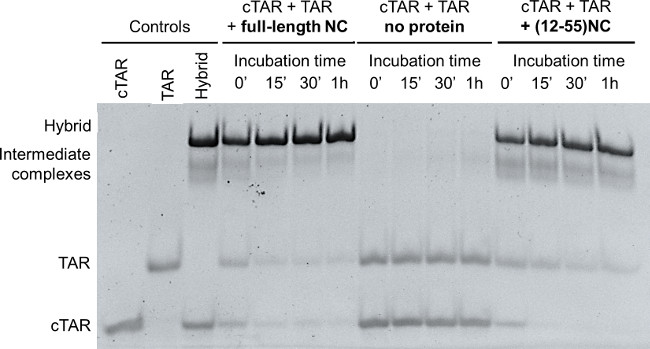
그림 1 :. 전체 길이 NC와 잘립니다 (12-55) NC 접이식 TAR와 cTAR 각 1 μM와 NAME 분석은, 재조합 NC 또는 함께 배양 하였다 (12-55) NC (올리고 / NC = 1 / 8) 0 분, 15 분, 30 분 및 1 시간 동안. 단백질 (0 분, 15 분, 30 분 및 1 시간)의 부재하에 항온 처리하고 cTAR TAR은 음성 대조군으로 사용 하였다. 접이식 TAR, 접힌 cTAR 하이브리드 TAR은 / cTAR는 체외 어닐링하는 것은 대조군으로 사용 된 다음에 열 변성 후의. 반응은 다음 GLB SDS 사용을 중단했다. 샘플은 1X TBE의 12 % 폴리 아크릴 아미드 겔상에서 해결 하였다 젤에 전기 영동 핵산 후 염색 및 transilluminator가 감지.
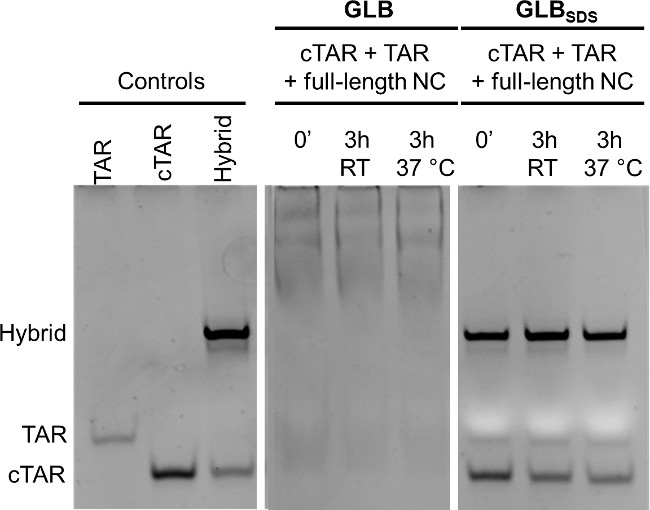
그림 2 :. TAR을 분석 할 때 젤 로딩 버퍼 SDS의 효과 (GLB) / TNMG 1 배에 prefolded NC TAR와 cTAR,에 의해 cTAR 어닐링 전체 길이 재조합 NC (올리고 / NC = 1/8) 3와 함께 배양 하였다 실온에서 또는 37 ° C에서 시간. GLB 또는 GLB SDS는 NC와 함께 배양 된 샘플에 첨가 하였다. 컨트롤 : TAR, cTAR 및 어닐링 하이브리드 TAR / cTAR (각 1 μM). 1X TBE 전기 영동은 12 % 폴리 아크릴 아미드 겔을 사용하여 수행 하였다; 젤에 전기 영동 핵산 후 염색 및 transilluminator가 감지. 이 그림은 그림 S4에서 수정되었습니다. Sosic, A. 등 설계, 합성 및 HIV-1 뉴 클레오 캡시드 억제제 TAR와 cTAR 바인더의 생물학적 평가 MedChemComm 4 1388년부터 1393년까지, 도이 :. / c3md00212h (2013) 10.1039 .
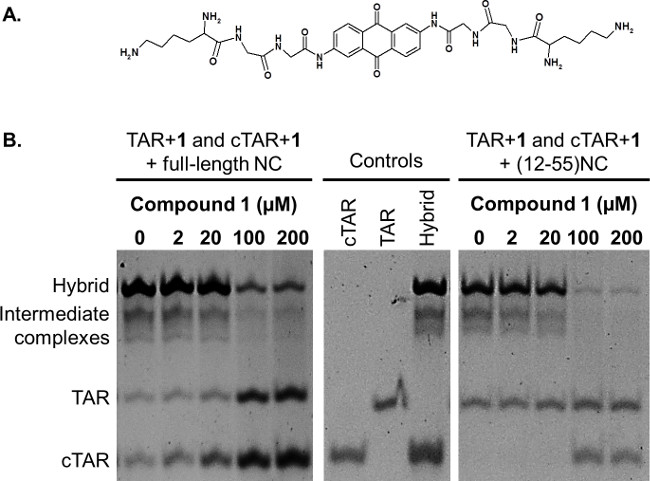
그림 3 : NAME 분석에 의해 평가 삽입 제 1 스레딩의 스레딩 삽입 제 1 (B)의 (A) 화학 구조 효과. TAR과 cTAR 각각 1 μM 접이식, 각 8 μM 전체 길이 또는 NC (12-55)와 NC (1)의 화합물을 지시 된 농도의 존재 하에서 배양 하였다. cTAR 및 확장 heteroduplex를 TAR 접이식 TAR은 / cTAR는 대조군으로 사용 하였다. 반응은 다음 GLB SDS 사용을 중단했다. 샘플은 1X TBE의 12 % 폴리 아크릴 아미드 겔상에서 해결 하였다 젤에 전기 영동 핵산 후 염색 및 transilluminator가 감지.
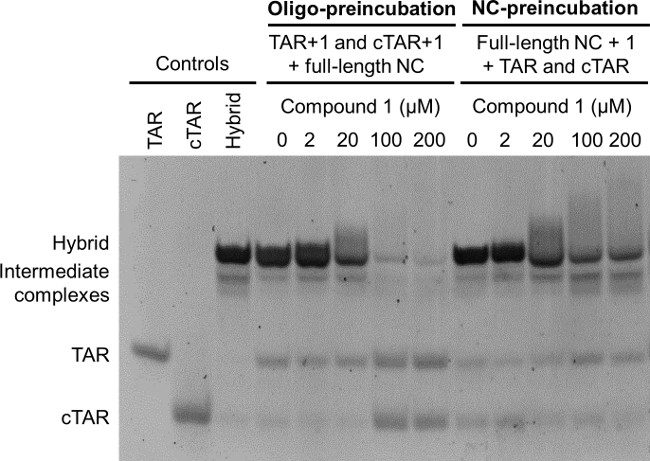
그림 4 : NC-예비 배양 모드 대 올리고 - 예비 배양 : NAME 분석에 효과를 올리고 예비 배양 모드.E :. 접힌 TAR과 cTAR 접혀 각 1 μM, 전체 길이 NC (8 μM) NC-예비 배양의 존재에 추가로 15 분 동안 다음 15 분 동안 스레딩 삽입 제 1의 표시 농도 미리 배양하고 있었다 모드 : 관통 삽입 제 1의 표시된 농도에서 15 분 동안 전장 NC (8 μM)와 함께 전 배양 한 후 추가로 15 분 동안 절첩 TAR의 존재 및 cTAR 각각 1 μM 접혀 하였다. cTAR 및 확장 heteroduplex를 TAR 접이식 TAR은 / cTAR는 대조군으로 사용 하였다. 모든 반응은 결국 GLB SDS 사용을 중단했다. 샘플은 1X TBE의 12 % 폴리 아크릴 아미드 겔상에서 해결 하였다 젤에 전기 영동 핵산 후 염색 및 transilluminator가 감지.
토론
NAME 신속 HIV-1, 신규 한 항 HIV 약물 검색 흥미로운 타겟의 뉴 클레오 캡시드 단백질의 샤페론 활성 억제를 평가할 수 분석법이다. NC 빠르고 안정된 폴딩 달리 그주의 소둔이어서 고온에서 열 변성을 필요 실온 핵산에 어닐링. 분석은 어느 전장 NC 또는 절단 (12-55) NC로 수행 될 수있다 : 두 경우 두 핵산 (RNA와 상보적인 DNA 카피)를 급속 어닐링된다. 이 잘린 NC 펩타이드와 문학의 관찰과 일치 : 소둔 TAR 혀끝 루프의 보완 순서로, 약한 NC 바인딩 사이트의 보완 혀끝 루프의 상호 작용에 의해 다음 cTAR의 줄기를 효율적으로 용해에 의해 시작되어, 확장 어닐링 하이브리드 여러 가지 불안정한 중간체를 통해 종료. (21)
NC는 매우 안정적인 제자입니다EIN과 몇 가지 문제가 수행 NAME이 발생할 수있다. 이것이 실현되지 않으면, 겔 정확한 위치 핵산 밴드를 표시하지 않을 것이다 : 그것은 그러나 버퍼 반응을 정지하는 데 사용되는 젤 로딩 갓 만든 SDS를 추가하는 것이 매우 중요하다. 그 올바르게 단백질을 변성 및 핵산과의 긴밀한 복잡한에서 분리 젤 로딩 버퍼에 존재해야 겔 전기 영동 SDS에 의해 TAR / cTAR의 heteroduplex를 시각화 그래서 사실, NC는 핵산 결합 단백질이다. 이것은 또한 겔 동작 동안 시프트 밴드의 형성 즉, 실험의 가능한 문제이다. 이 효과는 전체 길이 NC는도 2에서와 같이 사용될 때, 특히 명백하며, 핵산에 강한 응집 효과를 갖는, 매우 기본적인 N 말단 꼬리의 존재에 연결된다.
단말기 기본 꼬리의 존재는 쇼로, 어닐링 반응을 억제하는 것이 더욱 어렵게 할 수있다N 그림 3 사용하여 화합물 1, 대표 스레딩 인터 칼, TAR와 cTAR의 줄기 루프 구조의 안정화에 특히 효율적인 즉, 인터 칼에. 사실, 핵산과 상호 작용이 타입의 벌지와 루프 염기쌍으로 벌키 치환체 쉽게 관통을 허용 이중 나선의 연속성을 방해 할 때 선호된다. 이러한 핵산 결합제 의해 TAR과 cTAR의 안정화는 이전 두 개의 올리고 뉴클레오티드의 용융 온도 증가의 판정에 의해 분석 하였다. (14) 또한, 용융 온도의 증가는 HIV-1 NC 의해 촉매 어닐링 저해와 상관 관계, heteroduplex를 TAR / cTAR의 감소 형성으로 이어지는 및 스레딩 인터 칼은 TAR 요소로 RNA의 동적 구조에 대한 바인더의 흥미로운 클래스 있음을 나타냅니다. (14)
작용 기전은 이러한 콤포넌트에 대해 호출도 4에 도시 된 바와 같이 unds 추가로, 다른 대안적인 형식 NAME 분석을 수행함으로써 확인 될 수있다 : 인터 칼의 경우 heteroduplex를 어닐링의 억제 향상 약물이 두 절첩 올리고와 함께 배양 될 때. 이러한 NC 단백질의 직접적인 결합제 다른 작용 메커니즘으로 작용하는 화합물은 다른 모드에 의해 예비 배양 덜 영향을받을 것이다. NAME 분석 따라서 NC 억제제의 식별을 위해 화합물의 라이브러리를 스크리닝하는 데 사용될 수있는 두 가지 방법으로 수행하고, NC 대상으로 항 HIV 약물을 검색하는 동안 또한 포지티브 히트 작용 추정 메커니즘을 평가. 분명히 식별 NC 억제제의 작용 메카니즘에 대한 특정 주장 단독 이러한 기술의 사용은 충분하지 않고, 다른 적합한 생화학 적 분석은 작업 가설을 유지하기 위해 필요하다. 14
마지막으로, 그것은 매우 NAME 사용 강조되어야시험 화합물에 의한 NC의 "체외"억제에 대한 귀중한 정보를 제공 재조합 또는 합성 중 정제 효소,. 이것은 "장점과 단점"분석의이다 : NAME 잘 가상 스크리닝을 보완 할 수 및 분자 모델링을 신속하게 구조 활동 관계를 구축하고 분석 할 수 있도록하고 결국 합성과 약물 디자인을 리디렉션, 신약 개발 프로그램의 예비 단계에 접근한다. 다른 생화학 적 분석은 HIV 약물 개발 프로젝트에 사용하지만, 이름은 바이러스에 감염된 세포에서 추정 억제제의 효과에 대한 정보를 제공하지 않습니다.
공개 사항
저자는 경쟁하는 금전적 이해관계가 없음을 선언합니다.
감사의 글
이 작업은 Ministero degli Affari Esteri (MAE, DRPG, Unità per la cooperazione scientifica e tecnologica, Grant: PGR Italy-USA)와 MIUR, Progetti di Ricerca di Interesse Nazionale (Grant: 2010W2KM5L_006)의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| cTAR, 29-mer DNA 올리고. 탈염. HPLC 정제. | Metabion International AG | 재고 저장 솔루션 -20 ° 씨 | |
| TAR, 29-mer RNA 올리고. 탈염. HPLC 정제. | Metabion International AG | 재고 분취액 -80 ° 씨 | |
| (12-55)NC 펩타이드 | EspiKem srl | -20 °에 재고 용액을 저장합니다. C | |
| 1.5 ml 튜브 | Eppendorf | 0030 120 086 | 사용 전 오토클레이브 |
| 0.5 ml 튜브 | Eppendorf | 0030 121 023 | 사용 전 오토클레이브 |
| Biosphere 필터 팁 0.1-10 µ l | Sarstedt | 701,130,210 | |
| 생물권 필터 팁 2-20 &마이크로; l | Sarstedt | 70,760,213 | |
| 생물권 필터 팁 200 &마이크로; l | Sarstedt | 70,760,213 | |
| 주사기 필터 0.22 &마이크로; m | Biosigma srl | 51,798 | |
| 에탄올 | Carlo Erba | 414631 | |
| 나트륨 도데실 설페이 | 시그마-알드리치 | 71725-50G | |
| 디메틸 설폭사이드 | 시그마-알드리치 | D8418-1L | |
| 염화나트륨 | 시그마-알드리치 | 71376-1KG | |
| 붕산 | 시그마-알드리치 | B0252-2.5KG | |
| 에틸렌디아민테트라아세트산 | 시그마-알드리치 | E5134-500G | |
| 마그네슘 퍼클로레이트 | 시그마-알드리치 | 222283-100G | 저장 1 -20 에서 M 솔루션; &데그; C |
| 글리세롤 | 시그마-알드리치 | 49770-1L | |
| 브로모페놀 블루 | GE 헬스케어 생명 과학 | 17-1329-01 | |
| N,N,N′,N′ -Tetramethylethylenediamine | Sigma-Aldrich | T9281-100ML | |
| 과황산암모늄 | Sigma-Aldrich | A7460-500G | 사용하기 전에 10% 용액을 갓 준비 |
| Acrylamide-bis 즉시 사용 용액 40% (19:1) | Merck Millipore | 1006401000 | Polyacrylamide는 신경독성이 높습니다: 젤 캐스팅 중 장갑을 착용 |
| Tris ultrapure | Applichem | A1086, 1000 | |
| DEPC 처리수 | Ambion | AM9922 | |
| 원심분리기 5415R | Eppendorf | 22,621,408 | |
| NanoDrop 1000 분광계 | Thermo Scientific | ||
| UV-VIS 분광계 Lambda 20 | Perkin Elmer | ||
| Protean II xi Cell | Bio-Rad | 165-1803 | |
| PowerPac 기본 전원 공급 장치 | Bio-Rad | 164-5050 | |
| SybrGreen II RNA 겔 염색 | Lonza | 50523 | TBE 1x에서 1/10,000 희석을 만듭니다. 4 &데그; C를 2주 동안 사용합니다. |
| Geliance 600 이미징 시스템 | Perkin Elmer |
참고문헌
- Druillennec, S., et al. A mimic of HIV-1 nucleocapsid protein impairs reverse transcription and displays antiviral activity. Proc Natl Acad Sci USA. 96, 4886-4891 (1999).
- Darlix, J. L., Garrido, J. L., Morellet, N., Mely, Y., de Rocquigny, H. Properties, functions, and drug targeting of the multifunctional nucleocapsid protein of the human immunodeficiency virus. Adv Pharmacol. 55, 299-346 (2007).
- Thomas, J. A., Gorelick, R. J. Nucleocapsid protein function in early infection processes. Virus Res. 134, 39-63 (2008).
- Mirambeau, G., Lyonnais, S., Gorelick, R. J. Features, processing states, and heterologous protein interactions in the modulation of the retroviral nucleocapsid protein function. RNA Biol. 7, 724-734 (2010).
- Zeng, Y., et al. Probing nucleation, reverse annealing, and chaperone function along the reaction path of HIV-1 single-strand transfer. Proc Natl Acad Sci USA. 104, 12651-12656 (2007).
- Basu, V. P., et al. Strand transfer events during HIV-1 reverse transcription. Virus Res. 134, 19-38 (2008).
- Guo, J., Henderson, L. E., Bess, J., Kane, B., Levin, J. G. Human immunodeficiency virus type 1 nucleocapsid protein promotes efficient strand transfer and specific viral DNA synthesis by inhibiting TAR-dependent self-priming from minus-strand strong-stop DNA. J Virol. 71, 5178-5188 (1997).
- Godet, J., Mely, Y. Biophysical studies of the nucleic acid chaperone properties of the HIV-1 nucleocapsid protein. RNA Biol. 7, 687-699 (2010).
- Darlix, J. L., et al. Flexible nature and specific functions of the HIV-1 nucleocapsid protein. J Mol Biol. 410, 565-581 (2011).
- Lapadat-Tapolsky, M., Pernelle, C., Borie, C., Darlix, J. L. Analysis of the nucleic acid annealing activities of nucleocapsid protein from HIV-1. Nucleic Acids Res. 23, 2434-2441 (1995).
- Vo, M. -N., Barany, G., Rouzina, I., Musier-Forsyth, K. Mechanistic studies of mini-TAR RNA/DNA annealing in the absence and presence of HIV-1 nucleocapsid protein. J Mol Biol. 363, 244-261 (2006).
- Beltz, H., et al. Structural determinants of HIV-1 nucleocapsid protein for cTAR DNA binding and destabilization, and correlation with inhibition of self-primed DNA synthesis. J Mol Biol. 348, 1113-1126 (2005).
- Mori, M., et al. Nucleocapsid Protein: a Desirable Target for Future Therapies against HIV-1. Curr Top Microbiol Immunol. , Forthcoming Forthcoming.
- Sosic, A., et al. Design, synthesis and biological evaluation of TAR and cTAR binders as HIV-1 nucleocapsid inhibitors. MedChemComm. 4, 1388-1393 (2013).
- Tabarrini, O., et al. Studies of Anti-HIV Transcription Inhibitor Quinolones: Identification of Potent N1-Vinyl Derivatives. Chemmedchem. 5, 1880-1892 (2010).
- Hagan, N., Fabris, D. Direct mass spectrometric determination of the stoichiometry and binding affinity of the complexes between nucleocapsid protein and RNA stem-loop hairpins of the HIV-1 Psi-recognition element. Biochemistry. 42, 10736-10745 (2003).
- Ivanyi-Nagy, R., Davidovic, L., Khandjian, E. W., Darlix, J. L. Disordered RNA chaperone proteins: from functions to disease. Cell Mol Life Sciences: CMLS. 62, 1409-1417 (2005).
- Zagotto, G., et al. Tuning G-quadruplex vs double-stranded DNA recognition in regioisomeric lysyl-peptidyl-anthraquinone conjugates. Bioconjug Chem. 22, 2126-2135 (2011).
- Carlson, C. B., Vuyisich, M., Gooch, B. D., Beal, P. A. Preferred RNA binding sites for a threading intercalator revealed by in vitro evolution. Chem Biol. 10, 663-672 (2003).
- Gooch, B. D., Beal, P. A. Recognition of duplex RNA by helix-threading peptides. J Am Chem Soc. 126, 10603-10610 (2004).
- Kanevsky, I., et al. Structural determinants of TAR RNA-DNA annealing in the absence and presence of HIV-1 nucleocapsid protein. Nucleic Acids Res. 39, 8148-8162 (2011).
재인쇄 및 허가
