본 리뷰는 CIPN 발병기전에서 일시적 수용체 잠재력 앙키린 1(TRPA1)의 기전적 역할을 탐구하고, 면역조절 및 항염증 중재의 치료 표적으로서의 잠재력을 평가하는 것을 목표로 합니다.
이 논문에서
요약
초록
화학요법 유발 말초 신경병증(CIPN)은 화학요법제가 말초 신경계를 손상시킬 때 발생하는 흔하고 심각한 임상 질환으로, 보통 원위 사지에 비정상적인 통증과 뜨거운 및 냉기 자극에 대한 민감성 증가가 특징입니다. 그러나 CIPN에 대한 임상 치료법이 거의 없기 때문에 효과적인 치료 방식을 식별하는 것이 매우 중요합니다. 일시적 수용체 전위 안키린 1(TRPA1)은 손상 수용체로, CIPN의 발병 및 진행 과정에서 산화 스트레스, 염증 매개체, 저체온 상태에 의해 활성화될 수 있습니다. TRPA1은 하류 염증 경로를 조절하고 염증 인자와 신경펩타이드의 분비를 촉진하여 비정상적인 면역 조절을 유도하고, 이는 다시 신경성 염증 반응과 통증 신호 전달으로 이어집니다. 본 연구에서는 TRPA1이 CIPN 발병기전에서 어떤 역할을 하는지 조사하고, 신경염증을 억제하여 TRPA1을 표적으로 CIPN 치료할 수 있는 가능성을 검증하며, TRPA1 길항제와 천연 허브를 CIPN 임상 치료에 활용하는 가능성도 탐구합니다.
서론
암은 여전히 주요 글로벌 공중보건 과제 중 하나입니다. 화학요법은 암 생존율 향상에 중요한 역할을 하지만, 종종 심각한 부작용이 동반되며, 그중 CIPN은 가장 흔하고 복잡한 합병증 중 하나입니다. CIPN은 임상적으로 말단 말단의 대칭적 통증, 감각이상, 차가운 또는 열에 대한 비정상적인 민감성을 특징으로하며, 일부 환자는 미세 운동 협응력 저하도 경험할 수 있습니다. 보고된 CIPN 발생률은 약 50%에서 90%까지 다양하며, 약 30%에서 40%의 사례가 만성 신경학적 합병증으로 진행되어 환자의 삶의 질과 치료 순응도가 크게 저하될 수 있습니다. CIPN 발병 위험은 투여 방식(단회 투여, 누적 용량 또는 치료 기간), 동반 약물, 연령, 빈혈, 높은 체질량지수(BMI), 기존의 신경병증등 여러 요인에 의해 영향을 받습니다. 신경독성을 유발하는 항종양제로는 백금 기반 화합물, 탁산, 빈카 알칼로이드, 프로테아좀 억제제(예: 보르테조몹), 후생유전학 또는 면역조절제(예: 탈리도마이드, 레날리도마이드), 미세소관 억제제(예: 에리불린)가 보고되었습니다6.
현재 CIPN 관리를 위한 약리학적 선택지는 제한적입니다. 미국 임상종양학회(ASCO)는 CIPN 치료에 근거 기반의 유일한 약물 중재로 둘록세틴을 권장합니다. 임상 연구들은 둘록세틴이 CIPN 관련 통증 완화에 효과적임을 입증했으며, 치료적 이점은 특히 백금 기반 화학요법제, 특히 옥살리플라틴(OXA)에 의해 유발되는 신경병증에서 두드러지지만, 탁산과 빈카 알칼로이드 등 다른 약물에 의해 유발되는 CIPN에서의 효능은 연구별로 더 다양하게 나타납니다7. 진통 효과가 입증되었음에도 불구하고, 둘록세틴의 전반적인 임상적 이점은 중간 정도로, CIPN 예방이나 기저 병리학적 변화 역전보다는 주로 증상 완화를 제공합니다. 더불어, 둘록세틴은 일반적으로 잘 견디지만, 피로, 불면, 메스꺼움 등 경미하거나 중등도의 부작용이 동반될 수 있어 일부 환자의 장기 복용에 제한이 될 수 있습니다. 가바펜틴과 프레가발린과 같은 다른 흔히 사용되는 약물들도 증상 관리에 사용되었으나, CIPN 8,9에서는 치료 결과가 일관되지 않거나 만족스럽지 못한 것으로 나타났습니다. 따라서 더 효과적인 예방 전략을 개발하고 CIPN의 새로운 치료 표적을 식별하는 것이 시급합니다.
최근 몇 년간 CIPN의 발병 기전에 대한 이해가 심화됨에 따라, 염증 반응, 산화 스트레스, 신경 가소성 변화와 같은 여러 기전이 점차 주목받고 있습니다10, 11, 12. 이 중 산화 스트레스와 신경염증은 CIPN에서 신경 손상의 시작과 진행에 중심적인 원인으로 간주됩니다. 중요하게도, 감각 신경세포에서 풍부하게 발현되는 산화환원 민감성 이온 채널인 TRPA1 채널이 산화 스트레스와 염증 신호를 신경 과흥분 및 통증 과민증과 연결하는 핵심 분자 매개체로 부상했다13,14. 주로 유해한 열을 감지하는 TRPV1과 차가운 자극을 감지하는 TRPM8과 구별되는 TRPA1은 4-하이드록시노넨날(4-HNE)과 같은 다양한 산화성 및 친전자성 대사산물에 대한 높은 민감성을 특징지어집니다15. TRPA1의 활성화는 일반적으로 중요한 시스테인 잔기의 공유 변형을 포함하며, 이는 TRPA1이 화학요법으로 유도된 산화 및 지질 과산화 스트레스와 통증 과민증 발달을 연결하는 중요한 분자 다리 역할을 하는 독특한 메커니즘입니다. 더불어, 여러 동물 연구에서 TRPA1이 화학요법 유발 신경병성 통증에 기능적으로 관여한다는 사실이 입증되었습니다. 특히, OXA 유도 신경병증 모델에서 TRPA1의 유전적 절제술 또는 약물학적 차단은 추위 및 기계적 동이체증을 현저히 완화하여 TRPA1이 CIPN17,18의 병인에 결정적으로 기여함을 시사합니다.
구체적으로, TRPA1은 말초 통각수용 뉴런에서 고도로 발현되는 산화환원 민감성 이온 채널입니다. 화학요법제는 종종 뉴런에서 미토콘드리아 기능 장애, 산화 스트레스, 지질 과산화를 유도하여 4-HNE와 같은 지질 과산화 생성물의 과도한 축적을 초래합니다. 이 반응성 분자들은 TRPA1의 주요 시스테인 잔기들을 공유 결합 변형하거나 활성화 역치를 변화시켜 채널 개방, Ca²⁺ 유입, 신경 탈분극을 일으켜 통증 전달과 염증 신호를 증폭시킵니다 19,20,21. 이전 연구들은 TRPA1이 추위에 민감하며 내인성 염증 매개체에 의해 활성화될 수 있음을 보여주었으며, 이는 추위에 의한 통증 과민증 발병에 기여하는 것으로 밝혀졌습니다22. 또한 TRPA1은 세포 산화환원 상태에 의해 조절되는 기계적 민감 이온 채널로 작용하여 비정상적인 기계적 통증과 과민성에 참여하는 것으로 밝혀졌습니다22,23. 뉴런 외에도 TRPA1은 여러 면역 세포 유형에서도 발현되며, 활성화가 사이토카인 방출과 염증 연쇄 반응을 조절하여 말초 신경 염증을 더욱 증폭시킵니다. TRPA1의 냉기 민감성, 기계적 민감성, 산화환원 반응성은 화학요법으로 인한 산화 스트레스와 그에 따른 병리적 통증 과정 사이에 명확한 기전적 연관성을 확립하여 CIPN의 시작과 유지에 기여합니다. 따라서 TRPA1을 표적으로 삼아 산화 스트레스와 신경염증 독성의 악순환을 끊는 것은 화학요법으로 인한 말초 신경병성 통증 관리에 유망한 치료 전략이 될 수 있습니다. 기존 연구에서 TRPA1을 표적으로 한 개입 전략은 여러 모델 시스템에서 검증되었습니다. 시험관 내에서는 DRG 뉴런 배양과 칼슘 영상을 결합하여 TRPA1 활성화가 화학요법 유발 신경 흥분성에 미치는 영향을 검증하는 데 흔히 사용됩니다. 생체 내에서 CIPN은 주로 OXA, 파클리탁셀 또는 보르테조몹을 사용하여 설치류에서 유도되며, 이어서 TRPA1의 약리학적 또는 유전적 억제와 추위 및 기계적 과민증과 같은 행동 평가가 이어집니다 17,26,27. 치료 수준에서 TRPA1 길항제는 전임상 모델에서 신경병성 통증 완화에 효과가 입증되었습니다28,29. 이 결과들은 TRPA1을 CIPN 치료 전략으로 삼는 중개 연구의 견고한 실험적 기반을 제공합니다.
현재 연구에서는 TRPA1과 CIPN 간의 잠재적 연관성이 이미 밝혀졌습니다. 그러나 이 연구들은 주로 TRPA1이 통증 신호 전달에 미치는 직접적인 영향과 염증 반응에서 국소적 역할에 초점을 맞추고 있습니다. 그러나 TRPA1이 면역 반응을 조절하여 CIPN의 전체 병리학적 과정에 영향을 미치는 메커니즘에 대한 체계적인 연구와 심층 탐구는 여전히 부족합니다. 따라서 본 글에서는 CIPN의 잠재적 메커니즘을 논의하며, CIPN의 발병 기전에서 TRPA1의 역할을 탐구하는 데 중점을 둡니다. TRPA1 길항제 및 천연 약초에 관한 현재 연구 현황도 요약하여 CIPN 치료를 위한 TRPA1 억제 억제 항염증 면역 효과를 입증하였습니다. 이 글의 혁신은 면역조절 관점에서 TRPA1이 CIPN 발병기전에서 차지하는 역할을 체계적으로 연구한 데 있으며, 이는 기존의 신경세포나 국소 염증에만 초점을 맞춘 연구의 한계를 극복한 것입니다. 또한, CIPN 치료용 약물 개발을 위한 새로운 표적과 이론적 지원을 제공하며, 이는 과학적 중요성과 임상 적용 가치가 큽니다.
리뷰 및 관점
1. CIPN의 잠재적 메커니즘
CIPN의 병태 기전은 복잡하며, 항암제에 의한 미토콘드리아 기능 장애, 산화 스트레스, 면역계 이상, 이온 채널 조절 장애, 배근신경절(DRG) 신경 손상, 신경 세포골격 파괴와 관련이 있습니다. 2,30,31,32,33,34,35,36,37,38, 39, 40, 41, 42. 표 1은 CIPN에 관련된 특정 병원성 기전에 대한 개요를 제공합니다.
- 미토콘드리아 기능 장애와 산화 스트레스
화학요법제는 미토콘드리아 형태학적 변화, 생체에너지 교란, ROS의 과도한 생성을 유발하여 미토콘드리아 구조 손상, 기능 장애, 산화 스트레스를 초래합니다12,43. 이러한 사건들은 면역 세포를 활성화하고, 염증성 사이토카인 수치를 높이며, 염증성 신호 전달 경로를 촉진하여 궁극적으로 CIPN 발달에 기여합니다. 구체적으로, 백금 기반 화학요법제는 DRG에 축적되는 백금 DNA 부가물을 형성하며, 여기서 핵 DNA(nDNA)와 미토콘드리아 DNA(mtDNA)에 결합합니다. 이로 인해 가교 결합이 촉진되고, 핵 DNA의 구조와 합성이 변화하며, DNA/미토콘드리아 손상을 유도하고, ROS 생성을 촉진하며, 손상 수용체 관련 채널을 활성화하고, 신경세포 세포자멸사를 유도합니다. 또한 OXA가 미토겐 활성화 단백질 키나아제(MAPK) 경로에서 성상교세포를 활성화하고 염증성 사이토카인을 상향 조절하여 신경병성 통증을 유발한다는 증거도 있습니다.
백금 기반 화합물 외에도 다양한 기전을 통해 미토콘드리아의 무결성을 저해할 수 있는 다른 화학요법제들도 있습니다. 파클리탁셀은 축삭과 미토콘드리아 수송 모두에 간섭하여 미토콘드리아 투과성 전이공(mPTP)의 개방을 유도합니다. 이 사건은 미토콘드리아 막 전위 손실, ROS 과도한 생성, ATP 고갈, 칼슘 유출, 미토콘드리아 부종을 초래합니다. 반면 보르테조미브는 프로테아좀 활동을 억제하고 세포 단백질 항상성을 방해하여 미토콘드리아 구조 손상과 기능 장애를 유발합니다. 이러한 변화는 미토콘드리아 부종과 공포화, 칼슘 조절 장애, 호흡 사슬 억제, ATP 생성 감소, ROS 축적으로 나타납니다. 더불어 빈크리스틴(VCR)은 미세소관 중합을 억제하여 축삭을 따라 미토콘드리아 수송을 저해하고, 그 결과 막 전위 감소, 칼슘 항상성 교란, 그리고 비정상적인 신경 흥분성을 초래합니다. 이들 약물은 미토콘드리아 기능 장애가 화학요법 약물의 신경독성 효과에서 중심적 역할을 한다는 점을 강조합니다 41,44,45,46,47.
마찬가지로, 미토콘드리아 기능 장애는 염증 유발 신호의 중심 조절 역할을 하며, 염증은 다시 미토콘드리아 손상을 악화시켜 신경독성의 악순환을 만듭니다30,31. 특히, 이 과정에서 생성된 ROS는 산화환원 감응 이온 채널 TRPA1을 직접 활성화하여 칼슘 유입, 신경 과흥분성, 감기 및 기계적 동이신증과 같은 CIPN 관련 특징 증상을 유발합니다. 따라서 산화 스트레스는 미토콘드리아 손상, TRPA1 활성화, CIPN의 병인기를 연결하는 중추적 역할을 합니다. 그림 1은 미토콘드리아 기능 장애와 산화 스트레스가 CIPN 발달에 어떻게 기여하는지 보여준다. - 면역 체계의 이상
- 신경면역 상호작용
신경면역 상호작용은 CIPN의 발달과 지속에 중요한 역할을 합니다. 점점 더 많은 증거가 신경계와 면역계 간의 소통이 발병 기전에 크게 기여한다는 것을 시사합니다. 화학요법제는 세포 스트레스와 축삭 손상을 유발하여 손상 관련 분자 패턴(DAMP)을 방출하여 대식세포와 교세포에서 Toll-like 수용체 4(TLR4) 신호를 활성화합니다. 이 활성화는 M1 대식세포 분극과 CCL2, CXCL10과 같은 화학인의 분비를 촉진하여 CD4+와 CD8+ T 림프구와 B 세포를 DRG에 모집하고, 항염증 T 세포수는 48,49,50,51을 감소시킵니다. 호중구는 화학요법의 세포독성 효과에 매우 취약하여 전신성 호중구감소증을 유발하지만, 여러 연구에서 화학요법 유발 신경병증 시 말초 신경계 및 DRG에서 호중구 활성화 및 침윤 증가가 보고되었습니다32. 비만세포(MCs)는 면역 세포를 모집하고 다양한 염증성 사이토카인을 방출함으로써 염증 유발 반응을 추가로 조절합니다. 또한, 염증성 사이토카인은 자연살해(NK) 세포의 활동을 억제하여 신경염증과 산화 스트레스를 악화시키고, 이를 통해 CIPN 진행을 촉진할 수 있습니다.
화학요법제는 감각 뉴런에서 면역 및 신경 기능과 관련된 유전자의 발현을 변화시킬 수도 있습니다. 예를 들어, VCR은 활성화 전사인자 3(Atf3)와 뉴로텐신(Nts)의 발현을 상향 조절하여 화학인 분비를 조절하고 면역 세포의 DRG 모집을 촉진하며, 이는 신경염증 반응에 영향을 미칩니다. OXA는 프로스타글란딘-H-2 D-이성질체(Ptgds)와 소규모 핵간 RNA 숙주 유전자 1(Snhg1)의 발현을 조절하며, 이들은 염증 매개체 합성과 신경 가소성 조절에 관여하여 신경 자극성 및 통증 신호 전달에 영향을 미칩니다. 반면, 시스플라틴(CDDP)은 리포칼린-2(Lcn2)와 아연 핑거 홈박스 2(Zfhx2)의 발현을 변화시켜 신경 대사 항상성과 전사 조절을 방해하고, 그 결과 신경염증과 신경 기능 장애를 촉진합니다53. 이 유전자 발현 프로필의 통합 조절 이상은 CIPN 병과 기전 중 신경 손상과 면역 활성화 간의 복잡한 상호작용을 보여준다.
더불어, TRPA1은 감각 뉴런뿐만 아니라 대식세포와 MCs와 같은 면역 세포에서도 발현되며, 여기서 염증성 사이토카인 방출을 매개합니다. 이 TRPA1의 이중 신경 및 면역 발현은 CIPN의 신경면역 교차 반응과 염증을 유발하는 핵심 분자 연결 고리일 수 있습니다. - 신경염증 악화
화학요법제는 DRG의 위성 교세포(SGC), 척수의 미세교세포와 성상교세포, 축삭의 슈반 세포(54)의 활성화와 면역 매개체 분비를 조절합니다. 면역 세포 활성화는 종양 괴사 인자-알파(TNF-α), 인터루킨-1 베타(IL-1β), 인터루킨-6(IL-6), 인터루킨-8(IL-8), 인터루킨-20(IL-20)과 같은 염증성 사이토카인의 수치를 증가시키며, 이들은 신경염증과 신경 감작을 촉진합니다; 반대로 인터루킨-10(IL-10)과 인터루킨-4(IL-4)와 같은 항염증성 사이토카인의 발현이 억제되어 염증 해소를 저해합니다. 동시에 CCL2, CXCL1, CXCL12, CX3CL1, CCL3 등 화학계 화학인은 면역 세포 모집과 교세포-신경 간 상호작용에 기여합니다. 이러한 변화들은 MAPK와 활성화된 B 세포의 핵 인자 카파-라이트 사슬-증강자(NF-κB)와 같은 주요 염증 신호 전달 경로를 활성화하여 사이토카인 생성과 신경 과흥분성을 더욱 증진시킵니다 54,55,56,57,58,59. 그림 2는 면역 체계 조절 이상이 CIPN을 유발하는 메커니즘을 보여줍니다.
중요한 점은, 최근 연구에서 TRPA1이 이러한 염증 연쇄 반응의 중요한 하위 효과자이자 증폭자로 작용한다는 점입니다. 염증성 사이토카인과 산화 매개체는 감각 신경세포의 TRPA1 채널을 감각화하거나 직접 활성화할 수 있어, CIPN60,61에서 신경 염증과 신경 흥분성 증가 및 통증 과민증을 연계시킨다.
- 신경면역 상호작용
- 이온 채널 조절 이상화
- 칼륨 채널
화학요법제는 신경염증 반응을 유도하여 Kir4.1 채널의 비정상 발현을 유도하고, 이는 SGCs 활성화, 교세포섬유산 단백질(GFAP)의 상향 조절, 그리고 염증성 사이토카인(예: TNF-α 및 IL-6)의 방출을 촉진합니다. 이로 인해 DRG 뉴런의 흥분성이 악화되어 CIPN33이 유도됩니다. - TRP 채널
TRP 채널은 CIPN과 관련된 염증 반응과 신경병성 통증에 관여하며, 화학요법으로 인한 산화 스트레스에 의해 활성화될 수 있습니다. 그중 TRPA1 채널은 주로 감각 신경세포에 국한되어 있으며, 칼시토닌 유전자 관련 펩타이드(CGRP)와 물질 P(SP)와 같은 신경펩타이드를 방출하여 면역 세포가 손상 부위로 모집되도록 촉진함으로써 신경성 염증을 매개합니다. 한편, TRPA1은 교세포와 면역 세포에서도 발현되며, 활성화되면 염증성 사이토카인과 케모카인의 분비가 촉진되어 면역 세포 모집을 더욱 강화하고 염증 반응을 증폭시킵니다. TRPA1은 신경계와 면역계 사이의 중요한 다리 역할을 하여 CIPN에서 염증 증가와 신경 과민증에 기여합니다. 따라서 TRPA1 길항작용은 이중 신경면역 조절을 통해 CGRP와 SP의 분비를 억제하고, 신경성 염증과 면역 세포 모집을 감소시키며, 염증성 사이토카인 수치를 낮추어 통증을 완화할 수 있습니다62.
Singh 등은 OXA 처리가 쥐의 DRG에서 TRPA1과 함께 일시적 수용체 전위 바닐로이드 1(TRPV1)과 일시적 수용체 전위 M8(TRPM8)의 공동 발현을 증가시켜 신경병성 통증 행동을 증가시킨다고 보고했습니다. 특히 TRPA1과 TRPV1은 화학요법 유발 통증 신호 전달에서 기능적 교차 반응을 공유합니다; 그러나 현재 임상 응용은 주로 TRPV1 작용제 캡사이신에 집중되어 있는데, 이 약물은 TRPV1 발현 통각수용체를 둔감화시켜 신경병성 통증을 완화합니다34. 이는 TRPA1을 표적으로 하는 진통 전략의 향후 개발에 대한 통찰을 제공합니다. TRPA1은 산화 스트레스, 면역 활성화, 통증 신호 전달의 중요한 통합체 역할을 하여 CIPN에서 진통 및 항염증 치료의 유망한 표적입니다.
- 칼륨 채널
- DRG 신경 손상
- 직접적인 신경 손상
DRG는 CIPN의 주요 영향을 받는 부위이지만, 신경 손상의 기전은 화학요법 약물마다 다릅니다. 그림 3은 다양한 약물에 의해 유발되는 DRG 신경 손상에 관여하는 뚜렷한 경로를 보여줍니다. 예를 들어, PTX는 대식세포가 DRG로 침투하도록 촉진하여 표피 내 신경 섬유(IENF)의 수를 줄이고 CIPN35의 진행을 가속화합니다. 백금 기반 물질은 DRG 뉴런에 축적되어 미토콘드리아 기능 장애, 과도한 ROS 생성, 신경세포 세포자멸사를 유발합니다. 탈리도마이드는 DRG 신경 손상을 직접 유도할 수 있습니다. 더불어 여러 화학요법 약물은 나트륨, 칼륨, 칼슘 이온 채널의 발현과 기능을 변화시켜 신경 과흥분성을 유발합니다36,37. DRG 내 미세소관 구조의 파괴는 축삭 수송을 더욱 저해하고 월러리안 퇴행을 유발하여 궁극적으로 신경 섬유 손실과 신경 전달 장애를 초래합니다38. - 간접 면역 매개 손상
직접적인 신경 독성 외에도, 화학요법 약물은 선천 면역 신호 활성화를 통해 DRG 뉴런을 간접적으로 손상시킬 수 있습니다. 이 물질들에 의한 세포 손상은 DAMP를 방출하며, 이는 다시 TLR4와 고급 당화 종산물 수용체(RAGE)와 같은 패턴 인식 수용체(PRR)를 활성화합니다. 이 수용체의 활성화는 신경염증 연쇄반응을 유도하고, 신경 세포 흥분성을 증폭시키며, 신경병성 통증을 악화시킵니다39. 종합적으로 이 결과들은 화학요법제가 직접 세포독성 기전과 간접 면역 매개 경로를 통해 DRG 손상을 유도하여 CIPN의 발병 및 진행에 기여함을 시사합니다.
- 직접적인 신경 손상
- 신경 세포골격의 붕괴
이전 연구들은 미세소관 탈중합이 뉴런의 구조적 완전성을 직접적으로 약화시키고 축삭 신장 능력을 저해한다는 것을 보여주었습니다. 세포골격의 분해는 신경 표면에 불규칙성을 일으키며, 이러한 기계적 변화는 CIPN40의 물리적 특징이 될 수 있습니다. Chine 등의 또 다른 연구는 Hsp27이 축삭 구조를 보호함으로써 CIPN을 예방할 수 있음을 처음으로 입증했습니다. 기존의 항염증 기전과 달리, Hsp27은 세포자멸 경로를 조절하고 세포골격계 안정성을 유지함으로써 신경 보호 효과를 발휘합니다46.
빈카 알칼로이드(예: 빈크리스틴, VCR)는 β-튜불린 말단에 특이적으로 결합하여 방추체 형성과 축삭 수송을 차단하여 미세소관 탈중합과 신경돌기 성장 결함을 초래합니다40. 반면 파클리탁셀은 미세소관을 안정화하고 탈중합을 막아 축삭 내 전기 신호 전달과 미토콘드리아 수송을 방해하여 말초 신경 섬유의 탈수초화를 유도합니다41. 보르테조맙은 비프로필아소좀 경로를 통해 과도한 미세소관 중합을 유도하고, 신경돌 확장을 억제하며, 축삭 변성을 유발합니다.
이 약물들은 축삭 수송 장애, 신경세포자멸사, 신경 전도 상실을 일으켜 CIPN의 핵심 병리학적 기초를 형성합니다. 또한 RhoA/ROCK/LIMK/코필린 신호 전달 경로의 활성화는 액틴 필라멘트 재형성을 막아 축삭 재생을 더욱 억제합니다63. 세포골격 교란은 미토콘드리아 수송 결함과 칼파인 활성화와도 상호작용하여 CIPN64의 진행을 가속화하는 악랄한 "구조-에너지-세포자멸사" 사이클을 형성합니다.
2. TRPA1과 관련된 CIPN의 기전
TRPA1은 일반적으로 세포막 내 호모테트라머로 존재하는 비선택적 양이온 채널입니다. 이 부위는 TRP 채널의 특징인 6개의 막관통 구간(S1-S6)을 포함하고 있습니다. 이 중 S1-S4는 전압 센서 유사 도메인(VSLD)을 형성하고, S5와 S6는 이온이 통과하는 기공을 형성합니다. 이 영역들은 채널의 활성화와 고통, 열, 화학적 자극을 감지하는 데 필수적이다65. TRPA1의 긴 N-말단 영역에는 여러 앙키린 반복 도메인(ARD)이 포함되어 있어 다른 단백질과의 상호작용을 매개하고 채널 조절에 기여합니다. 이 부위는 통증 신호전달에 관여하는 키나아제에 의한 조절의 핵심 부위 역할도 합니다. C-말단에서 TRP 유사 도메인은 막관통 영역과 연결되며 채널 게이팅에서 중심적인 역할을 합니다. 이 도메인의 이동과 S5, S6의 재배열은 채널 개방과 Ca2+ 유입을 촉진하며, 이는 염증과 통증에 관여하는 하위 신호 경로를 활성화합니다68,69. 전반적으로 ARDs, 막관통 헬리스(S1-S6), TRP 유사 도메인이 TRPA1 활성화와 통증 및 염증 신호 전달에서의 역할을 결정하는 주요 구조적 특징입니다. 그림 4는 TRPA1의 화학요법 활성화와 관련된 주요 구조 도메인을 보여주며, 표 2는 TRPA1과 관련된 CIPN 기전을 요약합니다 61,62,70,71,72,73,74,75,76,77,78,79,80, 81, 82, 83.
- CIPN에서 산화 스트레스 매개 TRPA1 활성화
- 산화 스트레스는 항암제의 항종양 효능과 신경독성 모두에 주요 기여를 합니다84. TRPA1은 산화환원 및 친전체 민감성 이온 채널로서 화학요법 중 산화 스트레스가 증가한 조건에서 활성화됩니다. 산화된 인지질(OxPAPC)과 기타 활성 산소종(ROS) 유래 전자필기체는 TRPA1의 N-말단 도메인에서 시스테인 잔기를 공유결합 변형하여 채널을 활성화하고 칼슘 유입을 촉진합니다. 이 활성화는 CGRP와 SP와 같은 신경펩타이드와 염증 매개체의 방출을 유도하며, 이들은 CIPN 발병기전에서 비정상적인 통증 전달과 신경성 염증을 매개합니다61,70. 한편, 항암치료제에 의해 유발된 말초 염증은 감각신경절에서 ROS의 과도한 생성과 축적을 초래하며, 이는 TRPA1을 추가로 활성화하고 상향 조절하여 ROS-TRPA1 양성 피드백 루프를 형성하여 염증과 기계적 과민성을 증폭시킵니다85.
CDDP 유도 CIPN 역시 이 메커니즘에 의존하는데, CDDP는 구강 조직에서 ROS 생성을 촉진하여 TRPA1을 활성화하고 지속적인 구강안면 통증을 유발합니다86. 마찬가지로, OXA는 여러 메커니즘을 통해 TRPA1 활성을 조절합니다. 한편으로, OXA는 글루타티온 민감성 기전을 통해 TRPA1을 직접 활성화하여 DRG 뉴런71,87에서 세포질 산성화를 일으킨다. 반면, OXA는 PROLYL 하이드록실라제(PHD)를 억제하여 TRPA1의 N-말단 영역에서 프로린 잔기의 하이드록실화를 방지하고, 이는 채널의 ROS에 대한 민감도를 높이고 냉 자극에 대한 반응성을 현저히 높입니다. 또한 OXA는 p38 MAPK 신호 전달 경로를 활성화하여 TRPA1 매개 냉기 과민증을 더욱 촉진합니다88.
동물 연구는 이러한 메커니즘을 강력히 뒷받침하는 증거를 제공했습니다. OXA 처리된 야생형 쥐에서는 뚜렷한 기계적 이로디니아와 냉기 과민증이 관찰되었으나, TRPA1 녹아웃 마우스89에서는 이러한 반응이 유의미하게 감소하였습니다. CIPN의 제브라피시 유충 모델에서도 TRPA1 활성화가 산화 스트레스와 통증 신호 전달을 촉진하여 ROS 생성을 증가시켜 통증 반응을 지속시키는 일관된 결과가 나타났습니다90. 종합적으로 이 결과들은 TRPA1이 ROS 감지와 통증 증폭을 연결하는 중요한 연결 지점으로서 CIPN에서 산화 스트레스가 신경병성 통증을 매개하는 중심 경로를 형성함을 시사합니다.
- 산화 스트레스는 항암제의 항종양 효능과 신경독성 모두에 주요 기여를 합니다84. TRPA1은 산화환원 및 친전체 민감성 이온 채널로서 화학요법 중 산화 스트레스가 증가한 조건에서 활성화됩니다. 산화된 인지질(OxPAPC)과 기타 활성 산소종(ROS) 유래 전자필기체는 TRPA1의 N-말단 도메인에서 시스테인 잔기를 공유결합 변형하여 채널을 활성화하고 칼슘 유입을 촉진합니다. 이 활성화는 CGRP와 SP와 같은 신경펩타이드와 염증 매개체의 방출을 유도하며, 이들은 CIPN 발병기전에서 비정상적인 통증 전달과 신경성 염증을 매개합니다61,70. 한편, 항암치료제에 의해 유발된 말초 염증은 감각신경절에서 ROS의 과도한 생성과 축적을 초래하며, 이는 TRPA1을 추가로 활성화하고 상향 조절하여 ROS-TRPA1 양성 피드백 루프를 형성하여 염증과 기계적 과민성을 증폭시킵니다85.
- 면역 조절과 염증성 통증에서 TRPA1의 역할
TRPA1은 말초 감각 신경계와 다양한 면역 세포 유형에서 발현되는 산화환원 민감성 비선택적 양이온 채널입니다. 이 약물은 화학요법 약물로 유발되는 산화, 질화, 알데히드 스트레스뿐만 아니라 염증 매개체와 전기화학적 자극에 의해 활성화될 수 있어, CIPN 중 염증 반응과 통증 감작에 중요한 역할을 합니다24,91,92.- TRPA1은 면역 세포 매개 신경염증을 조절합니다
말초 신경계에서 TRPA1은 DRG 감각 뉴런에서 가장 잘 특징지어지며, 통각감각의 주요 매개체 역할을 합니다. 화학요법 중에는 주로 손상된 뉴런과 주변 슈반 세포에서 유래하는 ROS, 반응성 질소종(RNS), 알데히드 대사산물의 높은 수치가 신경 TRPA1을 직접 활성화하여 신경 흥분성 증가와 통증 과민성을 유발합니다93. 한편, 감각 뉴런에서는 TLR4 신호가 DRG 뉴런의 TRPA1 발현을 상향 조절하여 통증 과민성을 증가시키는 것으로 나타났습니다94.
뉴런 외에도 슈반 세포는 산화 스트레스에 의해 활성화될 수 있는 TRPA1도 발현합니다. 활성화된 슈반 세포는 ROS 신호를 증폭하고 염증 매개체를 방출하여 "슈반 세포-뉴런-TRPA1" 피드백 루프를 형성하여 신경염증을 지속시키고 CIPN72,73의 발달에 기여합니다. 동물 연구에 따르면 좌골신경 상주 대식세포의 감소가 슈반 세포 TRPA1 활성화와 산화 스트레스로 유발하는 암 관련 통증을 현저히 완화하며, 슈반 세포와 골수세포 간의 상호작용을 강조합니다73.
감각 뉴런 외에도 TRPA1은 대식세포, T 세포, NK 세포, MCs 등 여러 면역 세포 집단에서 기능적으로 발현됩니다24, 74, 95. 화학요법 중 생성되는 ROS, RNS, 대사산물은 이 세포들에서 TRPA1을 활성화하여 세포유형에 따라 다양한 면역 반응을 유도합니다. 대식세포에서 TRPA1은 염증 촉진 활성화를 억제하고, 항염증 표현형을 촉진하며, 대식세포 침투를 제한하여 항염증 및 조직 보호 효과를 발휘합니다14,96. 림프구에서 TRPA1 활성화는 T 세포 활성화와 효과기 기능을 억제하여 T 세포 매개 면역 반응을 부정적으로 조절하며, TRPA1 매개 Ca2+ 유입은 NK 세포 독성을 증진시켜 신경 손상 후 신경 염증 반응을 조절할 수 있습니다72,74. 비만세포에서 TRPA1 활성화는 스트레스로 인한 탈과립과 염증성 신호 전달에 관여하여 알레르기 및 신경성 염증 증폭에 기여하는 것으로 알려져 있습니다24,75.
이러한 관찰을 종합해 보면, TRPA1은 뉴런, 슈반 세포, 면역 세포를 연결하는 신호 전달 허브 역할을 하며, 각 세포 유형에서 TRPA1 활성화가 높아져 CIPN의 시작과 유지에 기여함을 시사합니다. 그림 5 는 CIPN에서 TRPA1 매개 신경면역 교차 반응과 통증 신호전달의 제안된 기전을 보여줍니다. - 염증성 통증과 CIPN 관련 통각수용에서의 TRPA1
감각 신경계에서 TRPA1은 주로 DRG의 1차 감각 신경세포, 삼차신경절(TG), 미주신경절(VG)에 국한되어 있습니다. 산화 스트레스 산물, 염증 매개체, 그리고 화학요법제에 의해 유도되는 단백질 키나제 신호(PKA/PKC)는 TRPA1 인산화와 채널 활성을 증진시킵니다26. 채널 활성화는 세포 내Ca2+ 유입을 증가시키며, SP, 뉴로키닌 A(NK-A), CRP와 같은 신경펩타이드 분비를 촉진하여 혈관 확장, 혈장 유출, 면역 세포 모집을 촉진하여 신경성 염증과 통증 감작을 유도합니다.
염증성 상태에서는 염증성 사이토카인(IL-1 계열, TNF-α, IL-6, IL-8)과 케모카인(CXCL5/CXCR2) 수치가 상승하여 ROS 생성과 TRPA1 활성화를 더욱 증가시켜 막 탈분극과 DRG 뉴런의 과흥분성을 유발하여 궁극적으로 신경병성 통증에 기여합니다. 또한 NGF와 같은 염증 매개체는 TRPA1 발현을 상향 조절하여 염증과 통증을 지속시키는 양의 피드백 루프를 형성합니다. TRPA1은 말초 및 중추 감작에도 참여하여통증 전달을 증폭시킵니다.
더 나아가, TRPA1은 염증 관련 경로를 조절하여 통각수용 신호를 촉진합니다. 상향 조절된 TRPA1은 Ca2+ 유입을 증가시키고 판넥신-1(PANX1) 경로를 활성화하여 아데노신 삼인산(ATP) 방출을 촉진합니다. 신경전달물질 역할을 하는 세포외 ATP는 통증 과민증에 추가로 기여합니다102. 화학요법제는 또한 비만세포 내 브래디키닌 B2 수용체와 하류 PLC/PKCε 신호 활성화를 통해 TRPA1을 감작할 수 있으며, 이는 CIPN 관련 통증을 악화시킵니다103. 반대로 로페아마이드와 같은 오피오이드 화합물은 TRPA1 및 전압 개폐 나트륨 채널(VGSC) 활성을 억제하고, 미세아교세포 활성화와 산화 스트레스를 억제하여 CIPN104,105에서 과민 통증을 완화하는 것으로 나타났습니다.
요약하자면, TRPA1은 CIPN에서 산화 스트레스와 염증 신호를 연결하는 핵심 분자 표적 역할을 합니다. 면역 세포와 감각 뉴런 간의 양방향 상호작용을 조정함으로써, TRPA1은 염증을 유발하고 전파시킬 뿐만 아니라 통증을 증폭시켜 면역 조절, 신경염증, 통각수용 과민성 사이의 중요한 다리 역할을 합니다. - TRPA1 매개 이온 채널 교차 및 DRG 신경 감작
TRPA1은 손상된 감각 뉴런, 특히 DRG에서 매우 많이 발현되며, CIPN을 매개하는 주요 이온 채널 역할을 합니다. 이 치료는 신경 세포의 흥분성을 조절하고 여러 이온 채널과의 상호작용을 통해 통각수용 신호 전달을 촉진합니다. 예를 들어, TRPV1 활성화는 TRPA1 민감도를 높일 수 있으며, 두 채널은 종종 함께 발현되어 냉각 알로디냐와 기계적 과민지통에 시너지 효과를 보입니다 76,106. 또한 TRPA1은 추위에 민감한 채널 TRPM8과 상호보호 기능을 보입니다: TRPM8은 25-28 °C 범위 내에서 무해한 냉각 감각을 매개하는 반면, TRPA1은 17 °C 이하에서 활성화되어 강렬하고 유해한 추위 자극을 감지하는 역할을 합니다. 두 채널의 비정상 활성화는 CIPN 환자에서 흔히 관찰되는 냉 과민증과 관련이 있다고 지적되었습니다77. 화학요법으로 인한 산화 스트레스와 Ca2+ 채널 활성의 증가는 TRPA1 채널을 추가로 활성화시켜 전압 개폐성 Na+ 채널에 의존하는 빈번한 활동전위 발화를 유발합니다(Nav1.7)78,79. 더불어, Zn2+는 TRPA1을 직접 활성화하여 CGRP80의 방출을 촉진할 수 있는 반면, 전압 게이트 K+ 채널(Kv7)은이 과정에 부정적인 조절 효과를 가합니다. TRPA1과 TRPV1, TRPM8, Ca2+, Na+, K+, Zn2+ 채널 등 다른 이온 채널 간의 협력적 상호작용은 CIPN에서 신경 흥분성과 통각수용 전달을 증폭시킵니다.
더 나아가, 세포 내 pH 항상성은 TRPA1 활성을 조절할 수 있습니다. Na+/H+ 교환체 1(NHE1)은 세포 내 pH를 조절함으로써 TRPA1 민감도에 영향을 미칩니다. 염증성 또는 화학요법으로 인한 손상 상태에서 TRPA1과 NHE1은 DRG 뉴런 87,107에서 상호작용하며, 세포 내 산성화는 TRPA1의 반응성을 증가시켜 활동 전위 빈도와 글루타메이트, CGRP 같은 신경전달물질 방출을 증가시킵니다82,83. 이 과정은 염증성 통증과 감기 과민증을 유발하며 신경 염증을 더욱 유지시킵니다. 반대로, DRG 뉴런에서 TRPA1 발현 또는 기능을 억제하면 통각 전달과 신경염증 반응이 현저히 감소한다108.
요약하자면, TRPA1은 CIPN에서 산화 스트레스와 이온 채널 신호를 연결하는 중심 분자 허브 역할을 합니다. 다중 이온 채널과 세포 내 조절 기전과의 광범위한 교차 반응을 통해 TRPA1은 감각 신경 과흥분성과 통증 과민감화를 촉진하며, CIPN 관련 통증 치료에 중요한 분자 표적으로 역할을 합니다. 그림 6 은 TRPA1이 다양한 이온 채널과의 상호작용을 통해 신경 흥분성을 조절하고 통각수용 신호를 증진하는 메커니즘을 보여줍니다.
- TRPA1은 면역 세포 매개 신경염증을 조절합니다
3. CIPN 치료를 위한 TRPA1 표적 가능성
이전 섹션에서는 TRPA1이 신경염증 연쇄반응을 유발하여 CIPN을 완화하는 핵심 표적임을 설명했습니다. TRPA1의 작용 기전은 두 가지입니다: 한편으로는 신경염증 연쇄 반응에 의해 직접 조절되어 CIPN의 병리학적 과정에 참여하고; 반면, TRPA1은 염증 신호와 상호작용하여 신경독성 반응을 매개하고 신경 손상을 악화시킵니다. 따라서 TRPA1의 표적 억제는 산화 스트레스와 신경염증 반응을 줄이고, 통증 신호를 완화하며, 궁극적으로 CIPN 관련 증상을 개선할 수 있습니다. 그림 7 은 특정 길항제나 천연 한방 약물에 의한 TRPA1 억제가 CIPN과 관련된 신경병증성 통증을 완화하는 제안된 기전을 보여줍니다.
- TRPA1 길항제
TRPA1은 외인성 물질(예: 겨자유, 계피)과 내인성 물질(예: 산화 스트레스 산물 및 염증 매개체)에 의해 활성화될 수 있으며, 62 통증, 가려움, 염증을 유발할수 있습니다. 이러한 이유로 TRPA1은 통증 관리, 염증성 질환, 신경학적 장애 등 광범위한 적용 가능성을 가진 치료 표적으로 인정받고 있습니다. 따라서 TRPA1 길항제 연구 및 개발이 매우 중요합니다.
여러 TRPA1 길항제는 CIPN109,110,111,112,113,114,115,116,117 완화에 잠재적 치료적 가치를 입증했습니다. 이들의 주요 기전은 TRPA1 매개 산화 스트레스 반응, 칼슘 유입, 신경염증 신호를 억제하여 TRPA1 활성에 길항 효과를 가하는 것입니다. 전임상 연구에서 선택적 TRPA1 차단제 HC-030031은 OXA 및 CDDP에 의해 유발된 기계적 및 냉기 과민증을 유의미하게 완화했다28. 한편, GRC-17536과 LY-3526318과 같은 차세대 길항제는 당뇨병성 신경병증, 만성 기침, 골관절염 관련 신경병성 통증에 대한 2상 임상시험으로 진출하여 우수한 내약성과 예비 효능을 보였습니다109,113.
표 3은 대표적인 TRPA1 길항제의 현재 개발 상태와 임상 적용 현황을 요약합니다. 이 연구들은 신경병성 통증 치료에서 TRPA1 길항제의 번역 가능성을 지지하는 임상적 증거를 제공합니다. 그러나 대부분의 TRPA1 길항제는 여전히 낮은 생체이용률과 잠재적 비표적 효과 115,118,119로 제한되어 있으며, 아직 CIPN 특이적 임상 평가에 들어가지 않았습니다. 향후 연구는 화합물의 선택성과 약동학적 특성 최적화, 그리고 CIPN을 특이적으로 표적으로 한 임상시험 설계에 집중하여 TRPA1 억제의 치료 중요성을 검증하는 데 중점을 둘 것입니다.
직접적인 길항 외에도, 다른 분자 표적을 통한 TRPA1 활성 조절도 CIPN에서 유망한 결과를 보였습니다. 시그마-1 수용체는 다양한 이온 채널에 조절 기능을 발휘하며, 시그마-1 수용체 길항제는 TRPA1 채널의 원형질막 발현과 기능을 유의미하게 억제하여 OXA 유도 CIPN 모델 마우스에서 통증 증상 진행을 방지하는 것으로 나타났습니다89. Trevisan 등의 연구는 보르테조뮈브에 의해 유발된 CIPN 과민증 증상을 TRPA1 길항제 HC-030031 또는 항산화제 α-리포산을 항암 치료 전후 또는 시중에 함께 사용하면 효과적으로 예방하고 완화할 수 있음을 보여주었다. 더 나아가, 화학요법 약물에 의한 신경독성 맥락에서 TRPA1 억제제는 칼슘 의존성 염증 촉진 신호를 감소시켜 신경학적 손상을 완화할 수 있습니다.
요약하자면, TRPA1 길항제는 이 채널의 기능을 조절하고 활동을 억제하는 등 다양한 기전을 통해 CIPN 예방과 치료에 중요한 역할을 하여 통증 과민성을 완화하고 신경 손상을 완화합니다. - CIPN 치료의 새로운 선택지로서 TRPA1 활성 조절자에 대해
TRPA1은 신경염증 연쇄반응과 신경독성 손상을 통해 CIPN의 병리학적 과정에 관여하며, CIPN 치료의 새로운 표적이 될 수 있습니다.
여러 연구에서 특정 천연 허브와 그 활성 성분이 TRPA1 채널 활동 조절과 밀접하게 연관되어 있으며, 항염증 및 진통 작용과 같은 생물학적 효과를 보여, CIPN 예방 및 치료를 위한 잠재적 전략을 제시하고 있습니다. 예를 들어, 리퀴리틴은 상당한 항염 특성을 가진 것으로 나타났습니다121알리신은 항산화 및 항염증 특성으로 인해 진통 잠재력을 보입니다122; 두 화합물 모두 TRPA1 채널 활성의 조절에 관여합니다. 이러한 발견에 근거하면, 이러한 천연 화합물이 TRPA1 활성 조절을 통해 CIPN 관련 통증 인식과 신경염증 반응을 완화하여 잠재적인 치료 효과를 발휘할 수 있다고 추측합니다. 추가 연구에서는 멘톨이 TRPA1 채널에 양방향 조절 효과를 보이며, 낮은 농도에서는 TRPA1을 활성화하고 높은 농도에서는 그 활성을 억제한다는 사실이 밝혀졌습니다. 따라서 멘톨의 적절한 사용은 CIPN 환자에서 TRPA1 활성을 조절하여 진통 및 항염증 효과를 달성할 수 있습니다123. 마찬가지로, 전통적으로 혈액 순환을 촉진하는 온열 요법으로 사용되는 계피도 주요 활성 성분으로 계피를 함유하고 있습니다. Li 등은 시나말데히드가 TRPA1 수용체를 활성화하여 갈색 지방 조직에서 열생성을 촉진하여 체온 유지와 추위 민감성 완화에 도움을 준다고 보고했습니다124. 더불어, 시나말데히드는 핵 인자 적혈구 관련 인자 2(Nrf2)를 활성화하여 항산화 반응을 강화합니다125. 전체적으로 멘톨은 높은 농도에서 TRPA1을 억제함으로써 CIPN에 특징적인 기계적 및 냉 알로디냐를 완화할 수 있으며, 시나말데히드는 TRPA1 활성화 및 Nrf2 매개 항산화 기전을 통해 화학요법으로 인한 산화 스트레스를 상쇄하고 CIPN 환자의 추운 불내성을 개선할 수 있습니다. 또한, 베르제닌 모노하이드레이트, 리구스트라진, 사이코사포닌, 그리고 Notopterygium incisum의 수분 추출물이 신경병증성 통증을 줄이는 것으로 나타났습니다126,127,128,129.
표 4 TRPA1 리간드의 천연 허브 공급원과 CIPN 완화에 있어 가능한 메커니즘을 요약합니다. 이 발견들은 CIPN에서 신경독성 완화에 있어 TCM 성분의 잠재력을 강조합니다. 다양한 천연 화합물이 잠재적 치료 효과를 가진 TRPA1 조절자로 확인되었지만, 대부분은 여전히 in vitro 그리고 동물 연구 단계에 대해 연구하며, CIPN에서의 효능에 대한 증거는 주로 전임상 모델에서 도출됩니다. 반면, 인간의 개념 증명 증거가 제한적이고 등록된 임상시험은 멘톨만이 존재합니다130. 이 결과들은 TRPA1 표적 천연산물이 CIPN 관련 신경독성 완화에 큰 가능성을 보여주지만, 그 번역 잠재력과 치료 효능을 검증하기 위해 더 잘 설계된 임상 연구가 필요함을 시사합니다.
식물 추출물에서 확인된 천연 TRPA1 조절제는 통증 관리에 새로운 치료적 관점을 제공할 뿐만 아니라 CIPN 치료의 잠재적 자연적 공급원으로도 보입니다. 점점 더 많은 증거는 천연 화합물이 TRPA1 과활성화를 억제하거나 채널에 양방향 조절 효과를 가함으로써 항암치료로 인한 신경독성 증상을 완화할 수 있음을 시사하며, 이를 통해 진통과 항염증 효과를 모두 달성할 수 있습니다. 그러나 유망한 전임상 잠재력에도 불구하고, 체계적인 임상 검증은 여전히 부족합니다. 더불어, 이들 화합물은 일반적으로 다중 표적 및 다중 경로 조절 특성을 보여 TRPA1 조절이 전체 치료 효과에 얼마나 기여하는지 정의하기 어렵습니다. 향후 연구는 자연 TRPA1 조절자가 CIPN에 영향을 미치는 분자 메커니즘을 밝히고, TRPA1과 다른 이온 채널 또는 신호 경로 간의 시너지 상호작용을 탐구하며, 그 효능과 안전성을 확인하기 위한 잘 설계된 임상시험을 수행하는 데 집중해야 합니다. 이러한 노력은 TRPA1 표적 물질을 CIPN 관리의 실질적 전략으로 전환하는 데 필수적입니다.
4. 토론
국제암연구소(IARC)의 최신 통계에 따르면, 2022년에 약 2천만 건의 새로운 암 환자가 발생할 것이며, 이 중 약 50%는 결국 암이나 그 합병증으로 사망할 것입니다. IARC 전망에 따르면 2050년에는 연간 신규 암 환자 수가 3,500만 명을 초과할 것으로 보입니다. 따라서 암은 전 세계적으로 주요 공중보건 문제이며, 전세계 질병 부담에 크게 기여하는 주요 원인 중 하나입니다. 암에 대한 새로운 치료법(예: 표적 치료, 면역치료)이 계속 연구되고 개발되고 있지만, 화학요법은 여전히 암 치료에서 중심적인 역할을 합니다. CIPN은 화학요법의 흔한 부작용으로, 치료 과정과 효능에 영향을 미칩니다. 그러나 CIPN의 발병 기전은 명확하지 않으나, 미토콘드리아 기능 장애, 산화 스트레스, 면역계 이상, 이온 채널 조절 이상, DRG 뉴런 손상과 관련이 있을 수 있습니다. 현재 ASCO에서는 CIPN 환자의 통증 관리를 위해 둘록세틴만을 권고하고 있습니다. 진통 효과가 입증되었음에도 불구하고, 둘록세틴의 전반적인 임상적 이점은 중간 정도로, CIPN 예방이나 근본적인 병리적 변화 역전보다는 주로 증상 완화를 제공하기 때문입니다. 따라서 CIPN의 잠재적 표적을 탐구하는 것은 신약 개발과 정밀 치료에 중요합니다.
통각 신호의 핵심 매개체인 TRP 채널은 CIPN 치료 개발 맥락에서 점점 더 주목받고 있습니다. TRP 채널 중에서 TRPA1은 다양한 화학요법제에 의한 통증 과민증 유발의 핵심 요인으로 제안되었습니다131. 따라서 본 연구는 TRPA1이 CIPN 발병기전에서 어떤 역할을 하는지에 초점을 맞추고, 그림 8에 나타난 것처럼 TRPA1이 신경병성 통증을 매개하는 메커니즘을 더욱 명확히 합니다. 이 채널은 산화 스트레스에 의해 활성화되어 비정상적인 기계적 통증과 냉기 과민성을 유발하며(61,70,71), 면역 세포를 조절하여 신경 염증을 매개함으로써 염증성 통각수용에 관여합니다(62,72,73,74,75). 또한 TRPA1 채널은 TRPV1, TRPM8, 그리고 Ca2+, Nav1.7, Zn2+, Kv7과 같은 전압 게이트 채널과 상호작용합니다. 이러한 상호작용은 신경병성 및 염증성 통증 반응을 증폭시킵니다 76,77,78,79,80,81. 이러한 시너지 조절은 임상적으로 중요한 시사점을 가집니다. TRPA1, TRPV1, TRPM8은 감각 뉴런에서 공동 발현되어 서로의 활성을 상호 조절할 수 있기 때문에, 이중 또는 다중 표적 억제제는 TRPA1만 표적으로 하는 억제제보다 더 뚜렷한 진통 효과를 낼 수 있습니다. 더불어, 이러한 시너지 상호작용은 각 화합물이 낮은 용량에서도 유사한 진통 효과를 달성하여 잠재적 부작용을 줄여줍니다. 마찬가지로, CIPN 신경독성의 표적인 DRG도 TRPA1의 영향을 받습니다. TRPA1의 활성화는 DRG 뉴런의 흥분성을 증강시키고, 이는 DRG에서 신경전달물질의 방출을 촉진하여 통각수용 증상에 대한 과민성을 증가시킵니다82,83. 결론적으로, TRPA1은 신경염증성 연쇄반응을 유도하여 CIPN 환자의 신경병성 통증을 악화시킬 수 있습니다. 따라서 TRPA1을 길항시키는 것은 CIPN의 염증과 통증 증상을 효과적으로 완화할 수 있으며, 이는 TRPA1 길항제와 천연 약초의 적용이 매우 중요함을 시사합니다.
TRPA1 길항제의 효능은 동물 모델에서 효과적으로 입증되었습니다. 예를 들어, TRPA1 KO 마우스와 TRPA1 길항제(예: HC-030031)를 적용했을 때, 화학요법 약물로 인한 신경병증성 통증 증상이 유의미하게 완화됩니다86,89. 그러나 CIPN 환자를 대상으로 한 임상 시험이 아직 진행되지 않아 TRPA1 길항제 적용에는 여전히 한계가 있어, 인간에서 TRPA1 길항제의 안전성과 효능에 대해 추가 평가와 확정이 필요함을 시사합니다. 예를 들어, 설치류와 인간 간 TRPA1 발현 패턴과 길항제 민감도의 차이는 전임상 결과 결과 간에 불일치를 초래할 수 있습니다. 또한, 동물에서 인간으로의 실험 용량 전환 여부는 여전히 불확실하여 약물 개발의 복잡성을 더욱 높입니다.
또한, TRPA1이 CIPN에서 치료 표적으로 작용하는 정확한 메커니즘은 아직 완전히 밝혀지지 않았으며, 조직 특이적 역할에 대해서는 추가 연구가 필요합니다. TRPA1이 감각 신경세포, 슈반 세포, 면역 세포에서 광범위하게 발현되는 점을 고려할 때, 다양한 세포 맥락에서 그 구체적 기능을 구분하는 것은 여전히 도전적입니다. 대부분의 기존 연구는 전신 TRPA1 길항제에 의존하여 관찰된 효과를 특정 세포 구획에 정확히 귀속시키기 어렵습니다. 감각 뉴런에서 발현되는 TRPA1은 통각 수용 신호를 직접 매개하는 반면, 슈반 세포와 면역세포의 TRPA1은 주로 염증 및 미세 환경 과정을 조절하여 통증 민감도를 2차적으로 조절한다는 점을 강조해야 합니다. 따라서 조직 특이적 결실은 TRPA1의 중요한 기전적 통찰을 제공할 것입니다. TRPA1의 신경 특이적 손실은 통각수용체 흥분성과 통증 전달에 직접적인 역할을 명확히 할 수 있으며, 슈반 세포 특이적 결실은 TRPA1 주도적 산화 스트레스와 교모-신경 상호작용이 지속적인 신경염증을 촉진하는 방식을 밝힐 수 있습니다. 중요한 점은, 면역세포 특이적 TRPA1 녹아웃 모델(예: 대식세포 또는 T 세포)은 CIPN에서 면역 TRPA1 신호가 신경면역 교차 및 염증 조절에 기여하는 바를 정의하는 데 도움을 줄 것입니다. 이러한 접근법은 조직 및 세포 특이적 TRPA1 기능에 대한 이해를 크게 심화시키고 보다 정밀한 치료 전략 개발을 촉진할 것입니다. 한편, CIPN 치료에서 TRPA1 길항작용의 여러 측면은 아직 더 탐구되어야 합니다. 예를 들어, TRPA1이 서로 다른 화학요법제에 의해 유도되는 CIPN에서 차별화된 기능 역할을 보이는지, 그리고 최적의 치료 효과를 달성하기 위해 그 활성을 어떻게 더 정밀하게 조절할 수 있는지는 여전히 중요한 미해결 질문으로 남아 있습니다.
이와 관련해 TRPA1 길항제를 천연 한방 화합물 또는 전통 중의학 제형과 병용하는 것은 유망한 치료적 접근법을 나타냅니다. 이러한 병용 요법은 약물 관련 독성을 줄일 뿐만 아니라 다표적 시너지 효과를 통해 효능을 높일 수 있습니다. 전반적으로 TRPA1을 길항하면 면역 반응을 조절하고 신경염증 연쇄반응을 차단하여 신경독성과 신경 손상을 효과적으로 완화하여 CIPN 임상 관리에 새로운 통찰과 잠재적 전략을 제시합니다.
결론
본 리뷰는 TRPA1과 CIPN 간의 복잡한 관계와 TRPA1 길항제가 치료에서 가질 수 있는 잠재적 항염증 효과를 포괄적으로 탐구합니다. 전임상 연구들은 TRPA1의 약리학적 억제 또는 유전적 결실이 신경염증을 억제하고 신경 흥분성을 감소시키며 신경독성을 완화함으로써 항염증 및 진통 효과를 발생시켜 CIPN 증상 완화에 도움이 될 수 있음을 보여주었습니다. 하지만 현재 연구에는 여전히 몇 가지 한계가 있습니다. 향후 연구들은 TRPA1이 CIPN에 관여하는 구체적인 분자 기전을 더 깊이 탐구하고, 표적 전략을 최적화하며, TRPA1 길항제의 안전성과 효능을 검증하기 위한 대규모 임상시험을 실시해야 합니다. 이를 통해 CIPN 환자에게 보다 정확하고 효과적인 치료 옵션을 제공할 것입니다.
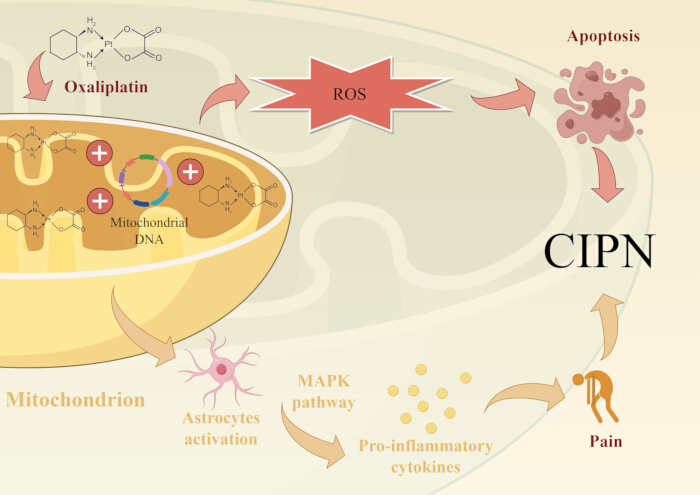
그림 1: 미토콘드리아 기능 장애와 산화 스트레스 유발 CIPN 기전. 백금 기반 화학요법제는 DRG에 축적되는 백금 DNA 부가물을 형성하여 nDNA와 mtDNA에 결합합니다. 이로 인해 DNA/미토콘드리아 손상이 유도되고, ROS 생성이 증가하며, 신경세포 세포자멸사를 유도합니다. 또한 OXA가 MAPK 경로에서 성상교세포를 활성화하고 염증성 사이토카인을 상향 조절하여 신경병증성 통증을 유발한다는 증거도 있습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
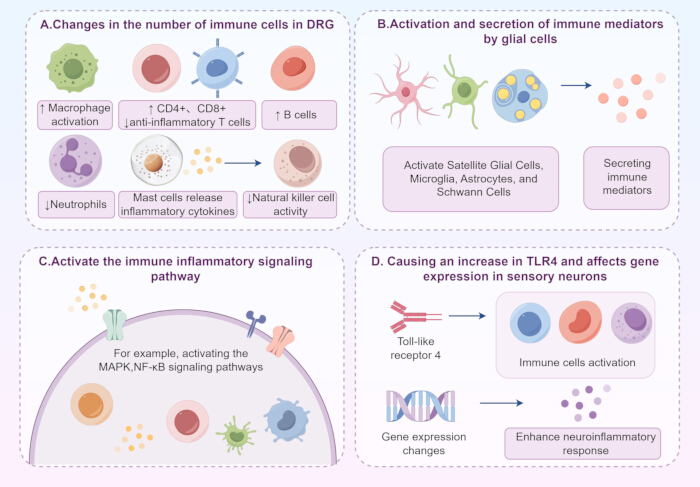
그림 2: 면역계 이상에 의한 CIPN 유도 기전. (A) 화학요법제는 대식세포 활성화, DRG 내 T 림프구(CD4+), 세포독성 T 세포(CD8+), B 세포 수 증가, 항염증 T 세포 및 호중구 수 감소를 초래합니다. MCs는 면역 세포를 모집하고 CIPN에서 다양한 염증성 사이토카인을 방출함으로써 CIPN의 진행에 기여하며, 이로 인해 NK 세포의 활동을 감소시키고, 이는 신경 염증과 산화 스트레스를 악화시킵니다. (B) 화학요법제는 DRG의 SGCs, 척수의 미세아교세포와 성상교세포, 축삭의 슈반 세포를 통해 활성화 및 면역 매개체 분비를 조절하여 감각 신경세포의 흥분성을 증가시키고 CIPN의 통증 과민증을 심화시킵니다. (C) MAPK와 NF-κB와 같은 면역염증 신호 경로의 활성화도 신경염증 반응을 악화시키는 데 중요한 역할을 합니다. (D) 화학요법제는 TLR4를 증가시키고 관련 유전자 조절 이상을 유발하여 면역 세포를 활성화하고 신경염증 반응을 증진시킬 수 있습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
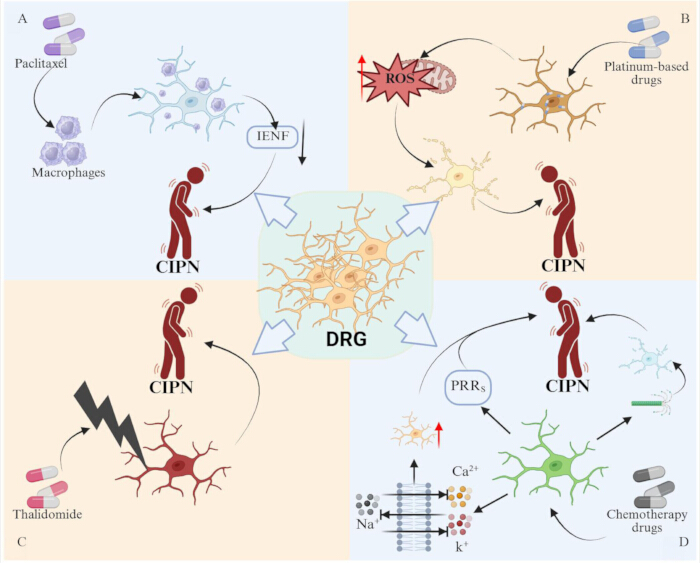
그림 3: DRG는 화학요법제가 CIPN을 유발하는 주요 표적입니다. (A) PTX는 대식세포가 DRG로 침투하여 IENF 수를 감소시키는 결과를 초래할 수 있습니다. (B) 백금 약물이 DRG에 축적되어 미토콘드리아 기능 장애와 ROS 수치 증가를 초래하고, 이는 다시 신경세포 세포자멸을 촉진합니다. (C) 탈리도마이드는 DRG에 직접적인 손상을 줄 수 있습니다. (D) 화학요법제는 또한 나트륨, 칼륨, 칼슘 이온 채널을 변화시키고, 미세소관 구조를 파괴하며, PRR을 활성화함으로써 DRG 뉴런을 손상시킬 수 있습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭해 주세요.
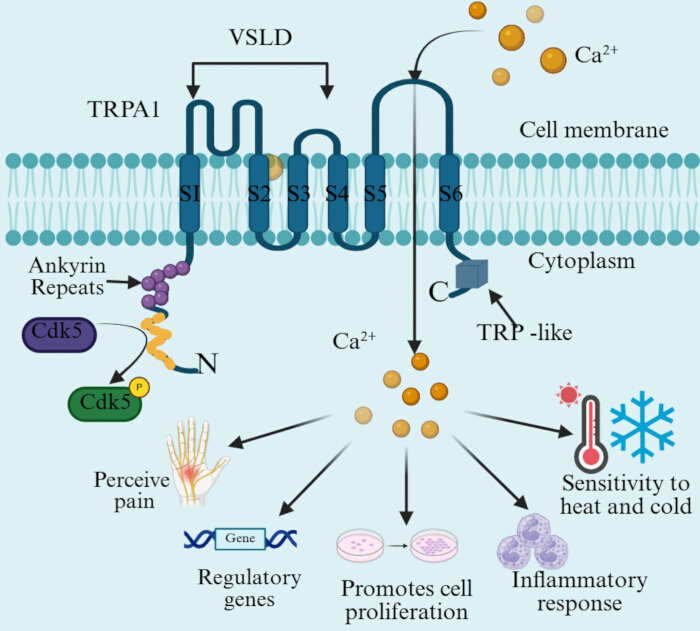
그림 4: TRPA1의 화학요법제 활성화와 관련된 주요 구조 도메인. TRPA1 채널에는 6개의 막관통 α나선 조각(S1-S6)이 포함되어 있습니다. 그중 S1-S4는 VSLD를 구성하며, S5와 S6는 오목한 기공 루프 구조를 형성합니다. TRPA1 채널의 NH2와 COOH 두 끝 모두 세포질 내에 위치해 있습니다. NH2의 긴 말단 중 하나는 ARD와 Cdk5 부위를 포함하며, TRPA1의 C-말단은 TRP 유사 도메인을 포함하며 막 관통 구조 도메인과 연결되어 있습니다. 채널 활성화는 Ca2+ 유입을 유발할 수 있으며, 이는 유전자 발현을 조절하고 세포 증식을 촉진하며 염증 반응을 유도하는 일련의 세포 신호 경로들을 촉발합니다. TRPA1의 구조는 통증과 열/냉 민감성 감지 기능을 결정합니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
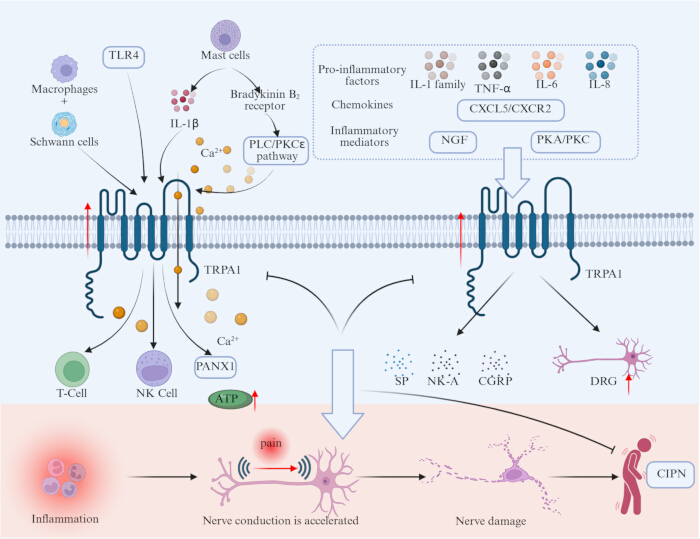
그림 5: TRPA1은 면역 세포 매개 신경염증 통각수용을 조절합니다. 면역 세포(대식세포, 슈반 세포, MC), 염증 촉진 인자(IL-1 계열, TNF-α, IL-6, IL-8), 케모카인(CXCL5/CXCR2), 염증 매개체(NGF, PKA/PKC), 그리고 TLR4가 TRPA1 채널을 활성화할 수 있습니다. TRPA1 채널의 활성화는 세포 내Ca2+ 농도를 증가시켜 SP, NK-A, CGRP의 분비를 촉진하고, 면역 세포(T 세포, NK 세포)에 영향을 미치며, 염증 관련 경로(PANX1 경로)를 조절하여 DRG 뉴런의 흥분성을 높이고 신경염증과 지속적인 통증을 유지합니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
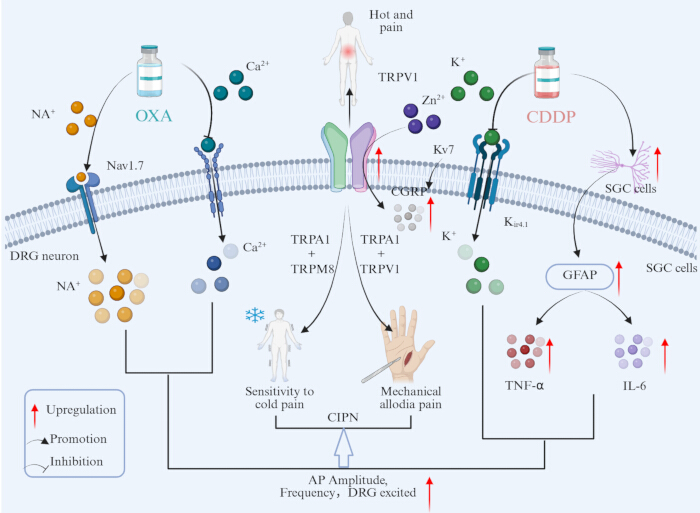
그림 6: TRPA1은 이온 채널을 조절하여 통증 신호를 가속화합니다. TRPA1과 TRPM8은 냉 과민증에 관여하며, TRPA1과 TRPV1은 기계적 동감각증에 관여합니다. 또한, 전압 게이트 Ca2+, Nav1.7, Zn2+, Kv 7, Kir4.1 채널을 가진 TRPA1 채널은 염증 매개체(예: CGRP, GFAP)와 염증 유발 인자(예: TNF-α, IL-6)의 방출을 촉진하여 DRG 뉴런의 과흥분성을 유발하고, 이는 신경병성 및 염증성 통증을 악화시키는 시너지 효과를 발휘합니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
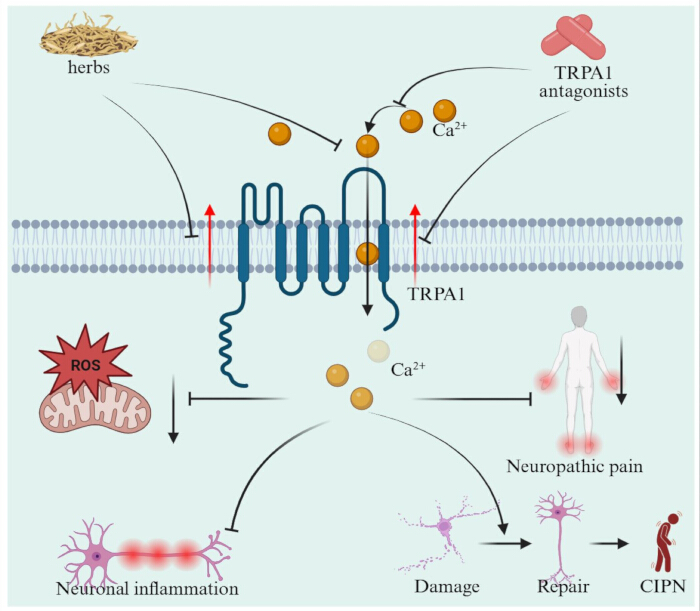
그림 7: CIPN 치료를 위한 TRPA1 표적 가능성. TRPA1 길항제와 천연 허브의 사용은 TRPA1 채널 활동을 억제하여 Ca2+ 플럭스와 산화 스트레스를 감소시키고, 이는 신경염증 반응을 억제하고 신경병성 통증을 줄여 궁극적으로 신경 손상을 줄이고 CIPN 관련 증상을 개선합니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
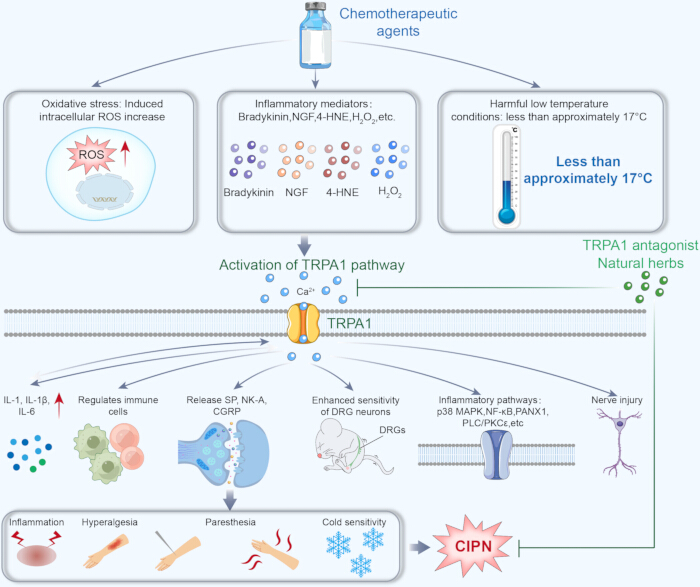
그림 8: TRPA1 억제. CIPN을 위한 치료 전략. TRPA1 활성화는 CIPN에서 염증과 과민증을 유발합니다; 길항제나 약초에 의한 억제는 신경성 염증, 통각 감각성 민감, CIPN 증상을 줄일 수 있습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
표 1: CIPN의 잠재적 기전. 화학요법제는 미토콘드리아 기능 장애와 산화 스트레스, 면역계 이상, 이온 채널 조절 장애, DRG 신경 손상, 신경 세포골격 교란 등 다양한 병리학적 경로를 통해 CIPN에 기여합니다. 이러한 기전들은 신경염증, 신경독성, 신경병성 통증을 유발합니다. 이 표를 다운로드하려면 여기를 클릭해 주세요.
표 2: TRPA1과 관련된 CIPN 기전. TRPA1은 산화 스트레스 유발 활성화, 면역 조절 및 염증, 이온 채널 상호작용, DRG 신경 손상 등 여러 병리학적 과정을 통해 CIPN에 기여합니다. 이러한 기전들은 신경 세포의 흥분성을 함께 증가시키고 신경병성 통증과 과민성을 촉진합니다. 이 표를 다운로드하려면 여기를 클릭해 주세요.
표 3: 대표적인 TRPA1 길항제의 현재 개발 상태 및 임상 적응증. 이 표는 전임상 및 임상 연구에서 조사된 주요 TRPA1 길항제들을 요약하며, 작용 기전, 치료 적응증, 약물 개발 단계를 포함합니다. 이 약물들은 TRPA1 채널 활동을 억제하여 CIPN 및 기타 병리학적 상태와 관련된 산화 스트레스, 염증, 신경병성 통증을 감소시킵니다. 이 표를 다운로드하려면 여기를 클릭해 주세요.
표 4: TRPA1 리간드의 천연 허브 공급원과 CIPN 완화에 대한 잠재적 메커니즘. 이 표는 TRPA1 활성을 조절하는 대표적인 천연 화합물과 허브 추출물, 그 출처, 화학 종류, 실험 조건, 분자 표적을 요약합니다. 이 천연 물질들은 TRPA1과 관련 신호 경로를 조절하여 CIPN과 관련된 산화 스트레스, 신경염증, 신경 과흥분성을 완화하여 신경 보호 및 항염증 효과를 발휘합니다. 이 표를 다운로드하려면 여기를 클릭해 주세요.
공개 사항
공개해야 할 재정적 이해 상충은 없습니다.
감사의 글
저자들은 밍주 리 그룹 모든 구성원들의 지원과 도움에 깊은 감사를 표합니다. 이 원고는 중국국가자연과학기금(82104838), 중국진흥기금 스파크 프로그램(XH-D001), 그리고 랴오닝성 중점연구개발 프로그램(2024JH2/102500062)의 지원을 받았으며, 이에 대해 깊이 감사드립니다. 그림 1 과 그림 2 는 FigDraw를 사용해 그렸습니다.
참고문헌
- Bray, F., et al. Global cancer statistics 2022: Globocan estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 74 (3), 229-263 (2024).
- Chinese expert consensus on the diagnosis and treatment of chemotherapy-induced peripheral neuropathy (2022 edition). Zhonghua Zhong Liu Za Zhi. 44 (9), 928-934 (2022).
- Preti, K., Davis, M. E. Chemotherapy-induced peripheral neuropathy: Assessment and treatment strategies for advanced practice providers. Clin J Oncol Nurs. 28 (4), 351-357 (2024).
- Bae, E. H., Greenwald, M. K., Schwartz, A. G. Chemotherapy-induced peripheral neuropathy: Mechanisms and therapeutic avenues. Neurotherapeutics. 18 (4), 2384-2396 (2021).
- Lemanska, A., et al. The association of clinical and patient factors with chemotherapy-induced peripheral neuropathy (CIPN) in colorectal cancer: Secondary analysis of the Scot trial. ESMO Open. 8 (6), 102063(2023).
- Loprinzi, C. L., et al. Prevention and management of chemotherapy-induced peripheral neuropathy in survivors of adult cancers: ASCO guideline update. J Clin Oncol. 38 (28), 3325-3348 (2020).
- Smith, E. M., et al. Effect of duloxetine on pain, function, and quality of life among patients with chemotherapy-induced painful peripheral neuropathy: A randomized clinical trial. Jama. 309 (13), 1359-1367 (2013).
- Jordan, B., et al. Systemic anticancer therapy-induced peripheral and central neurotoxicity: ESMO-EONS-eano clinical practice guidelines for diagnosis, prevention, treatment and follow-up. Ann Oncol. 31 (10), 1306-1319 (2020).
- Hu, S., Huang, K. M., Adams, E. J., Loprinzi, C. L., Lustberg, M. B. Recent developments of novel pharmacologic therapeutics for prevention of chemotherapy-induced peripheral neuropathy. Clin Cancer Res. 25 (21), 6295-6301 (2019).
- Chen, X., Gan, Y., Au, N. P. B., Ma, C. H. E. Current understanding of the molecular mechanisms of chemotherapy-induced peripheral neuropathy. Front Mol Neurosci. 17, 1345811(2024).
- Goel, Y., Fouda, R., Gupta, K. Endoplasmic reticulum stress in chemotherapy-induced peripheral neuropathy: Emerging role of phytochemicals. Antioxidants (Basel). 11 (2), 265(2022).
- Doyle, T. M., Salvemini, D. Mini-review: Mitochondrial dysfunction and chemotherapy-induced neuropathic pain. Neurosci Lett. 760, 136087(2021).
- Trevisan, G., et al. Trpa1 mediates trigeminal neuropathic pain in mice downstream of monocytes/macrophages and oxidative stress. Brain. 139 (Pt 5), 1361-1377 (2016).
- Yao, K., et al. Inflammation: The role of TRPA1 channel. Front Physiol. 14, 1093925(2023).
- Trevisani, M., et al. 4-hydroxynonenal, an endogenous aldehyde, causes pain and neurogenic inflammation through activation of the irritant receptor TRPA1. Proc Natl Acad Sci U S A. 104 (33), 13519-13524 (2007).
- Andersson, D. A., Gentry, C., Moss, S., Bevan, S. Transient receptor potential A1 is a sensory receptor for multiple products of oxidative stress. J Neurosci. 28 (10), 2485-2494 (2008).
- Zhao, M., et al. Acute cold hypersensitivity characteristically induced by oxaliplatin is caused by the enhanced responsiveness of TRPA1 in mice. Mol Pain. 8, 55(2012).
- Nativi, C., et al. A TRPA1 antagonist reverts oxaliplatin-induced neuropathic pain. Sci Rep. 3, 2005(2013).
- Moccia, F., Montagna, D. Transient receptor potential ankyrin 1 (TRPA1) channel as a sensor of oxidative stress in cancer cells. Cells. 12 (9), 1261(2023).
- Faris, P., et al. Transient receptor potential ankyrin 1 (TRPA1) mediates reactive oxygen species-induced Ca (2+) entry, mitochondrial dysfunction, and caspase-3/7 activation in primary cultures of metastatic colorectal carcinoma cells. Cell Death Discov. 9 (1), 213(2023).
- Bessac, B. F., et al. Trpa1 is a major oxidant sensor in murine airway sensory neurons. J Clin Invest. 118 (5), 1899-1910 (2008).
- Logashina, Y. A., Korolkova, Y. V., Kozlov, S. A., Andreev, Y. A. TRPA1 channel as a regulator of neurogenic inflammation and pain: Structure, function, role in pathophysiology, and therapeutic potential of ligands. Biochemistry (Mosc). 84 (2), 101-118 (2019).
- Moparthi, L., Zygmunt, P. M. Human TRPA1 is an inherently mechanosensitive bilayer-gated ion channel. Cell Calcium. 91, 102255(2020).
- Naert, R., López-Requena, A., Talavera, K. TRPA1 expression and pathophysiology in immune cells. Int J Mol Sci. 22 (21), 11460(2021).
- Marini, M., et al. Antinociceptive action of leonurine through TRPA1 and TRPV4 channels modulation. Br J Pharmacol. 182 (22), 5469-5488 (2025).
- Sánchez, J. C., Muñoz, L. V., Galindo-Márquez, M. L., Valencia-Vásquez, A., García, A. M. Paclitaxel regulates TRPA1 function and expression through PKA and PKC. Neurochem Res. 48 (1), 295-304 (2023).
- Li, C., Deng, T., Shang, Z., Wang, D., Xiao, Y. Blocking TRPA1 and tnf-α signal improves bortezomib-induced neuropathic pain. Cell Physiol Biochem. 51 (5), 2098-2110 (2018).
- Nassini, R., et al. Oxaliplatin elicits mechanical and cold allodynia in rodents via TRPA1 receptor stimulation. Pain. 152 (7), 1621-1631 (2011).
- Koivisto, A., Jalava, N., Bratty, R., Pertovaara, A. TRPA1 antagonists for pain relief. Pharmaceuticals (Basel). 11 (4), 117(2018).
- Areti, A., Komirishetty, P., Kalvala, A. K., Nellaiappan, K., Kumar, A. Rosmarinic acid mitigates mitochondrial dysfunction and spinal glial activation in oxaliplatin-induced peripheral neuropathy. Mol Neurobiol. 55 (9), 7463-7475 (2018).
- Xu, Z., et al. Chemotherapy for pain: Reversing inflammatory and neuropathic pain with the anticancer agent mithramycin a. Pain. 165 (1), 54-74 (2024).
- Lees, J. G., et al. Immune-mediated processes implicated in chemotherapy-induced peripheral neuropathy. Eur J Cancer. 73, 22-29 (2017).
- Leo, M., Schmitt, L. I., Kutritz, A., Kleinschnitz, C., Hagenacker, T. Cisplatin-induced activation and functional modulation of satellite glial cells lead to cytokine-mediated modulation of sensory neuron excitability. Exp Neurol. 341, 113695(2021).
- Singh, R., Adhya, P., Sharma, S. S. Redox-sensitive trp channels: A promising pharmacological target in chemotherapy-induced peripheral neuropathy. Expert Opin Ther Targets. 25 (7), 529-545 (2021).
- Zhang, H., et al. Dorsal root ganglion infiltration by macrophages contributes to paclitaxel chemotherapy-induced peripheral neuropathy. J Pain. 17 (7), 775-786 (2016).
- Omran, M., et al. Review of the role of the brain in chemotherapy-induced peripheral neuropathy. Front Mol Biosci. 8, 693133(2021).
- Boyette-Davis, J. A., Hou, S., Abdi, S., Dougherty, P. M. An updated understanding of the mechanisms involved in chemotherapy-induced neuropathy. Pain Manag. 8 (5), 363-375 (2018).
- Spera, M. C., Cesta, M. C., Zippoli, M., Varrassi, G., Allegretti, M. Emerging approaches for the management of chemotherapy-induced peripheral neuropathy (CIPN): Therapeutic potential of the C5a/C5ar axis. Pain Ther. 11 (4), 1113-1136 (2022).
- Araldi, D., et al. Role of pattern recognition receptors in chemotherapy-induced neuropathic pain. Brain. 147 (3), 1025-1042 (2024).
- Au, N. P., Fang, Y., Xi, N., Lai, K. W., Ma, C. H. Probing for chemotherapy-induced peripheral neuropathy in live dorsal root ganglion neurons with atomic force microscopy. Nanomedicine. 10 (6), 1323-1333 (2014).
- Chine, V. B., Au, N. P. B., Ma, C. H. E. Therapeutic benefits of maintaining mitochondrial integrity and calcium homeostasis by forced expression of hsp27 in chemotherapy-induced peripheral neuropathy. Neurobiol Dis. 130, 104492(2019).
- Pero, M. E., et al. Pathogenic role of delta 2 tubulin in bortezomib-induced peripheral neuropathy. Proc Natl Acad Sci U S A. 118 (4), e2012685118(2021).
- Trecarichi, A., Flatters, S. J. L. Mitochondrial dysfunction in the pathogenesis of chemotherapy-induced peripheral neuropathy. Int Rev Neurobiol. 145, 83-126 (2019).
- Canta, A., Pozzi, E., Carozzi, V. A. Mitochondrial dysfunction in chemotherapy-induced peripheral neuropathy (CIPN). Toxics. 3 (2), 198-223 (2015).
- Waseem, M., Kaushik, P., Tabassum, H., Parvez, S. Role of mitochondrial mechanism in chemotherapy-induced peripheral neuropathy. Curr Drug Metab. 19 (1), 47-54 (2018).
- Chine, V. B., Au, N. P. B., Kumar, G., Ma, C. H. E. Targeting axon integrity to prevent chemotherapy-induced peripheral neuropathy. Mol Neurobiol. 56 (5), 3244-3259 (2019).
- Zheng, H., Xiao, W. H., Bennett, G. J. Mitotoxicity and bortezomib-induced chronic painful peripheral neuropathy. Exp Neurol. 238 (2), 225-234 (2012).
- Moraes, T. R., et al. Spinal HMGB1 participates in the early stages of paclitaxel-induced neuropathic pain via microglial TLR4 and rage activation. Front Immunol. 15, 1303937(2024).
- Sekiguchi, F., Kawabata, A. Role of HMGB1 in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 22 (1), 367(2020).
- Babu, N., et al. TLR-4: A promising target for chemotherapy-induced peripheral neuropathy. Mol Biol Rep. 51 (1), 1099(2024).
- Tong, S. H., et al. Activation of TLR4/CCl2 in intact neurons drives radicular injury-induced global nerve trunk hypersensitivity in radiculopathy preclinical models. J Pain Res. 18, 3903-3918 (2025).
- Yun, H. D., Goel, Y., Gupta, K. Crosstalk of mast cells and natural killer cells with neurons in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 24 (16), 12543(2023).
- Starobova, H., Mueller, A., Deuis, J. R., Carter, D. A., Vetter, I. Inflammatory and neuropathic gene expression signatures of chemotherapy-induced neuropathy induced by vincristine, cisplatin, and oxaliplatin in C57BL/6j mice. J Pain. 21 (1-2), 182-194 (2020).
- Fumagalli, G., Monza, L., Cavaletti, G., Rigolio, R., Meregalli, C. Neuroinflammatory process involved in different preclinical models of chemotherapy-induced peripheral neuropathy. Front Immunol. 11, 626687(2020).
- Meng, J., et al. Duloxetine, a balanced serotonin-norepinephrine reuptake inhibitor, improves painful chemotherapy-induced peripheral neuropathy by inhibiting activation of p38 MAPK and nf-κb. Front Pharmacol. 10, 365(2019).
- Klein, I., Lehmann, H. C. Pathomechanisms of paclitaxel-induced peripheral neuropathy. Toxics. 9 (10), 229(2021).
- Zhou, L., et al. The therapeutic potential of chemokines in the treatment of chemotherapy- induced peripheral neuropathy. Curr Drug Targets. 21 (3), 288-301 (2020).
- Chen, L. H., et al. Targeting interleukin-20 alleviates paclitaxel-induced peripheral neuropathy. Pain. 161 (6), 1237-1254 (2020).
- Zhang, J., Ma, J., Trinh, R. T., Heijnen, C. J., Kavelaars, A. An HDAC6 inhibitor reverses chemotherapy-induced mechanical hypersensitivity via an IL-10 and macrophage-dependent pathway. Brain Behav Immun. 100, 287-296 (2022).
- Akhilesh Singh, A. K., Tiwari, V. TRPA1 siRNA-loaded nanoformulation ameliorates chemotherapy-induced peripheral neuropathy. ACS Chem Neurosci. 16 (11), 2060-2075 (2025).
- De Logu, F., et al. Oxidative stress mediates thalidomide-induced pain by targeting peripheral TRPA1 and central TRPV4. BMC Biol. 18 (1), 197(2020).
- Iannone, L. F., Nassini, R., Patacchini, R., Geppetti, P., De Logu, F. Neuronal and non-neuronal TRPA1 as therapeutic targets for pain and headache relief. Temperature (Austin). 10 (1), 50-66 (2023).
- Wang, W., Halasz, E., Townes-Anderson, E. Actin dynamics, regulated by rhoa-limk-cofilin signaling, mediates rod photoreceptor axonal retraction after retinal injury. Invest Ophthalmol Vis Sci. 60 (6), 2274-2285 (2019).
- Carozzi, V. A., Canta, A., Chiorazzi, A. Chemotherapy-induced peripheral neuropathy: What do we know about mechanisms. Neurosci Lett. 596, 90-107 (2015).
- Moparthi, L., et al. The human TRPA1 intrinsic cold and heat sensitivity involves separate channel structures beyond the N-ard domain. Nat Commun. 13 (1), 6113(2022).
- Jardín, I., et al. Trps in pain sensation. Front Physiol. 8, 392(2017).
- Sulak, M. A., Ghosh, M., Sinharoy, P., Andrei, S. R., Damron, D. S. Modulation of TRPA1 channel activity by cdk5 in sensory neurons. Channels (Austin). 12 (1), 65-75 (2018).
- Koldsø, H., Jensen, M., Jogini, V., Shaw, D. E. Functional dynamics and allosteric modulation of TRPA1. Structure. 31 (12), 1556-1566.e3 (2023).
- Wei, Y., et al. Function and therapeutic potential of transient receptor potential ankyrin 1 in fibrosis. Front Pharmacol. 13, 1014041(2022).
- Oehler, B., Brack, A., Blum, R., Rittner, H. L. Pain control by targeting oxidized phospholipids: Functions, mechanisms, perspectives. Front Endocrinol (Lausanne). 11, 613868(2020).
- Miyake, T., et al. Distinct mechanism of cysteine oxidation-dependent activation and cold sensitization of human transient receptor potential ankyrin 1 channel by high and low oxaliplatin. Front Physiol. 8, 878(2017).
- De Logu, F., et al. Macrophages and Schwann cell TRPA1 mediate chronic allodynia in a mouse model of complex regional pain syndrome type I. Brain Behav Immun. 88, 535-546 (2020).
- De Logu, F., et al. Peripheral nerve resident macrophages and Schwann cells mediate cancer-induced pain. Cancer Res. 81 (12), 3387-3401 (2021).
- Scopelliti, F., Dimartino, V., Cattani, C., Cavani, A. Functional TRPA1 channels regulate CD56 (dim)CD16(+) NK cell cytotoxicity against tumor cells. Int J Mol Sci. 24 (19), 14736(2023).
- Silverman, H. A., et al. Transient receptor potential ankyrin-1-expressing vagus nerve fibers mediate il-1β induced hypothermia and reflex anti-inflammatory responses. Mol Med. 29 (1), 4(2023).
- Wang, C., et al. TRPV1 and TRPA1 channels interact to mediate cold hyperalgesia in mice. Br J Anaesth. 131 (5), e167-e170 (2023).
- Qi, Y., et al. TRPM8 and TRPA1 are ideal targets for treating cold-induced pain. Eur J Med Chem. 282, 117043(2025).
- Sekiguchi, F., Tsubota, M., Kawabata, A. Sulfide and polysulfide as pronociceptive mediators: Focus on ca(v)3.2 function enhancement and trpa1 activation. J Pharmacol Sci. 155 (3), 113-120 (2024).
- Deng, L., et al. Nav1.7 is essential for nociceptor action potentials in the mouse in a manner independent of endogenous opioids. Neuron. 111 (17), 2642-2659.e13 (2023).
- Betrie, A. H., et al. Zinc drives vasorelaxation by acting in sensory nerves, endothelium, and smooth muscle. Nat Commun. 12 (1), 3296(2021).
- Citak, A., et al. The effects of certain TRP channels and voltage-gated KCNQ/Kv7 channel opener retigabine on calcitonin gene-related peptide release in the trigeminovascular system. Cephalalgia. 42 (13), 1375-1386 (2022).
- Wu, L. Y., et al. Deficiency of kif15 contributes to oxaliplatin-induced cold hypersensitivity by limiting annexin A2 and enhancing TRPA1 localization in DRG neuronal membrane. Neuropharmacology. 269, 110343(2025).
- Zhang, Z., et al. Action potential-independent spontaneous microdomain Ca (2+) transients-mediated continuous neurotransmission regulates hyperalgesia. Proc Natl Acad Sci U S A. 122 (3), e2406741122(2025).
- Perillo, B., et al. Ros in cancer therapy: The bright side of the moon. Exp Mol Med. 52 (2), 192-203 (2020).
- Zhang, Y., et al. Intraganglionic reactive oxygen species mediate inflammatory pain and hyperalgesia through TRPA1 in the rat. Front Pain Res (Lausanne). 4, 1204057(2023).
- Nakatomi, C., et al. Cisplatin induces TRPA1-mediated mechanical allodynia in the oral mucosa. Arch Oral Biol. 133, 105317(2022).
- Riva, B., et al. Oxaliplatin induces pH acidification in dorsal root ganglia neurons. Sci Rep. 8 (1), 15084(2018).
- Cherradi, S., et al. Improving the response to oxaliplatin by targeting chemotherapy-induced cldn1 in resistant metastatic colorectal cancer cells. Cell Biosci. 13 (1), 72(2023).
- Marcotti, A., et al. TRPA1 modulation by sigma-1 receptor prevents oxaliplatin-induced painful peripheral neuropathy. Brain. 146 (2), 475-491 (2023).
- Bellantoni, E., et al. Schwann cell transient receptor potential ankyrin 1 (TRPA1) ortholog in zebrafish larvae mediates chemotherapy-induced peripheral neuropathy. Br J Pharmacol. 181 (23), 4859-4873 (2024).
- Landini, L., et al. TRPA1 role in inflammatory disorders: What is known so far. Int J Mol Sci. 23 (9), 4529(2022).
- Szabó, K., et al. Presence of TRPA1 modifies CD4+/CD8+ t lymphocyte ratio and activation. Pharmaceuticals (Basel). 15 (1), 57(2022).
- Nassini, R., Materazzi, S., Benemei, S., Geppetti, P. The TRPA1 channel in inflammatory and neuropathic pain and migraine. Rev Physiol Biochem Pharmacol. 167, 1-43 (2014).
- Liu, X., Gong, R., Peng, L., Zhao, J. Toll-like receptor 4 signaling pathway in sensory neurons mediates remifentanil-induced postoperative hyperalgesia via transient receptor potential ankyrin 1. Mol Pain. 19, 17448069231158290(2023).
- Sahoo, S. S., et al. Transient receptor potential ankyrin1 channel is endogenously expressed in T cells and is involved in immune functions. Biosci Rep. 39 (9), BSR20191437(2019).
- Zeng, D., et al. TRPA1 deficiency alleviates inflammation of atopic dermatitis by reducing macrophage infiltration. Life Sci. 266, 118906(2021).
- Mukherjee, T., Tung, K. S., Jena, P., Goswami, C., Chattopadhyay, S. Upregulation, functional association, and correlated expressions of TRPV1 and TRPA1 during telmisartan-driven immunosuppression of T cells. Immunol Invest. 53 (4), 622-639 (2024).
- Yin, C., et al. CXCL5 activates CXCR2 in nociceptive sensory neurons to drive joint pain and inflammation in experimental gouty arthritis. Nat Commun. 15 (1), 3263(2024).
- Yin, C., et al. IL-33/ST2 induces neutrophil-dependent reactive oxygen species production and mediates gout pain. Theranostics. 10 (26), 12189-12203 (2020).
- Schumacher, M. A. Peripheral neuroinflammation and pain: How acute pain becomes chronic. Curr Neuropharmacol. 22 (1), 6-14 (2024).
- Koivisto, A., et al. TRPA1: A transducer and amplifier of pain and inflammation. Basic Clin Pharmacol Toxicol. 114 (1), 50-55 (2014).
- Chen, C., et al. TRPA1 triggers hyperalgesia and inflammation after tooth bleaching. Sci Rep. 11 (1), 17418(2021).
- Becker, G., Fialho, M. F. P., Brum, E. S., Oliveira, S. M. K. Kinin B (2) receptor mediates cisplatin-induced painful peripheral neuropathy by intracellular kinase pathways and TRPA1 channel sensitisation. Pharmaceuticals (Basel). 16 (7), 959(2023).
- Gadepalli, A., et al. Loperamide, a peripheral mu-opioid receptor agonist, attenuates chemotherapy-induced neuropathic pain in rats. Int Immunopharmacol. 124 (Pt B), 110944(2023).
- Gadepalli, A., et al. Peripheral mu-opioid receptor activation by dermorphin [d-arg2, lys4] (1-4) amide alleviates behavioral and neurobiological aberrations in rat model of chemotherapy-induced neuropathic pain. Neurotherapeutics. 21 (1), e00302(2024).
- Giniatullin, R. Ion channels of nociception. Int J Mol Sci. 21 (10), 3553(2020).
- Martínez-Rojas, V. A., et al. Interaction of NHE1 and TRPA1 activity in DRG neurons isolated from adult rats and its role in inflammatory nociception. Neuroscience. 465, 154-165 (2021).
- Ummadisetty, O., et al. Dermorphin [d-arg2, lys4] (1-4) amide alleviates frostbite-induced pain by regulating TRP channel-mediated microglial activation and neuroinflammation. Mol Neurobiol. 61 (8), 6089-6100 (2024).
- Vitale, R. M., De Petrocellis, L., Amodeo, P. An updated patent review of TRPA1 antagonists (2020 - present). Expert Opin Ther Pat. 34 (5), 315-332 (2024).
- Balestrini, A., et al. A TRPA1 inhibitor suppresses neurogenic inflammation and airway contraction for asthma treatment. J Exp Med. 218 (4), e20201637(2021).
- Gupta, R., et al. Structural basis of TRPA1 inhibition by hc-030031 utilizing species-specific differences. Sci Rep. 6, 37460(2016).
- Mukhopadhyay, I., et al. Transient receptor potential ankyrin 1 receptor activation in vitro and in vivo by pro-tussive agents: Grc 17536 as a promising anti-tussive therapeutic. PLoS One. 9 (5), e97005(2014).
- Bamps, D., et al. TRPA1 antagonist ly3526318 inhibits the cinnamaldehyde-evoked dermal blood flow increase: Translational proof of pharmacology. Clin Pharmacol Ther. 114 (5), 1093-1103 (2023).
- Terrett, J. A., et al. Discovery of TRPA1 antagonist gdc-6599: Derisking preclinical toxicity and aldehyde oxidase metabolism with a potential first-in-class therapy for respiratory disease. J Med Chem. 67 (5), 3287-3306 (2024).
- Chen, J., et al. Selective blockade of TRPA1 channel attenuates pathological pain without altering noxious cold sensation or body temperature regulation. Pain. 152 (5), 1165-1172 (2011).
- Chen, H., Terrett, J. A. Transient receptor potential ankyrin 1 (TRPA1) antagonists: A patent review (2015-2019). Expert Opin Ther Pat. 30 (9), 643-657 (2020).
- Mesch, S., et al. Discovery of bay-390, a selective CNS penetrant chemical probe as transient receptor potential ankyrin 1 (TRPA1) antagonist. J Med Chem. 66 (2), 1583-1600 (2023).
- Sałat, K., Filipek, B. Antinociceptive activity of transient receptor potential channel trpv1, trpa1, and trpm8 antagonists in neurogenic and neuropathic pain models in mice. J Zhejiang Univ Sci B. 16 (3), 167-178 (2015).
- Gyamfi, O. A., Bortey-Sam, N., Donkor, A. B., White, C. W., Logue, B. A. Analysis of TRPA1 antagonist, a-967079, in plasma using high-performance liquid chromatography tandem mass-spectrometry. J Pharm Anal. 10 (2), 157-163 (2020).
- Trevisan, G., et al. Novel therapeutic strategy to prevent chemotherapy-induced persistent sensory neuropathy by TRPA1 blockade. Cancer Res. 73 (10), 3120-3131 (2013).
- Liu, Z., et al. Liquiritin, a novel inhibitor of TRPV1 and TRPA1, protects against LPS-induced acute lung injury. Cell Calcium. 88, 102198(2020).
- Hernández-Cruz, E. Y., Silva-Islas, C. A., Maldonado, P. D., Pedraza-Chaverri, J., Carballo-Villalobos, A. I. Antinociceptive effect of garlic, garlic preparations and derivative compounds. Eur J Pain. 26 (5), 947-964 (2022).
- Petitjean, H., et al. Trp channels and monoterpenes: Past and current leads on analgesic properties. Front Mol Neurosci. 15, 945450(2022).
- Xiang, L., et al. Network pharmacology-based research uncovers cold resistance and thermogenesis mechanism of Cinnamomum cassia. Fitoterapia. 149, 104824(2021).
- Wang, P., et al. Cinnamaldehyde ameliorates vascular dysfunction in diabetic mice by activating Nrf2. Am J Hypertens. 33 (7), 610-619 (2020).
- Zou, B., et al. Berberine alleviates gastroesophageal reflux-induced airway hyperresponsiveness in a transient receptor potential A1-dependent manner. Evid Based Complement Alternat Med. 2022, 7464147(2022).
- Yu, M., et al. Ligustrazine mitigates chronic venous disease-induced pain hyperalgesia through desensitization of inflammation-associated TRPA1 activity in DRG. J Ethnopharmacol. 298, 115667(2022).
- Lee, G., et al. Identification and characterization of saikosaponins as antagonists of transient receptor potential A1 channel. Phytother Res. 34 (4), 788-795 (2020).
- Ruan, Y., et al. Water extract of Notopterygium incisum alleviates cold allodynia in neuropathic pain by regulation of TRPA1. J Ethnopharmacol. 305, 116065(2023).
- Fallon, M. T., et al. Cancer treatment-related neuropathic pain: Proof of concept study with menthol--a TRPM8 agonist. Support Care Cancer. 23 (9), 2769-2777 (2015).
- Chukyo, A., et al. Oxaliplatin-induced changes in expression of transient receptor potential channels in the dorsal root ganglion as a neuropathic mechanism for cold hypersensitivity. Neuropeptides. 67, 95-101 (2018).