Tijd cursussen voor de glycosylase activiteit van 8-oxoguanine DNA glycosylase zijn bifasisch vertonen een uitbarsting van de productie, en een lineaire steady-state fase. Met behulp quench-waardeberekening, de burst en steady-state prijs kan worden gemeten, die overeenkomen met excisie van 8-oxoguanine en afgifte van de glycosylase uit het product DNA, respectievelijk.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Steady-state, Pre-steady-state, en Single-omzet Kinetic Meting voor DNA Glycosylase Activiteit
In dit artikel
Samenvatting
Samenvatting
Human 8-oxoguanine DNA glycosylase (OGG1) snijdt de mutagene oxidatieve DNA letsel 8-oxo-7 ,8-dihydroguanine (8-oxoG) uit DNA. Kinetische karakterisering van OGG1 wordt ondernomen om de tarieven van de 8-oxoG excisie en release van een product te meten. Wanneer de OGG1 concentratie minder dan substraat DNA, tijdsverloop van productvorming zijn bifasisch een snelle exponentiële fase (dwz burst) van productvorming wordt gevolgd door een lineaire steady-state fase. De initiële uitbarsting van productvorming overeen met de enzymconcentratie goed gesloten het substraat en de burst amplitude afhankelijk van de enzymconcentratie. De eerste-orde snelheidsconstante van de burst overeenkomt met de intrinsieke frequentie van 8-oxoG excisie en de lage steady-state snelheid meet de snelheid van product afgifte (product DNA dissociatiesnelheidsconstante, koff). We beschrijven hier steady-state, pre-steady-state, en single-omzet benaderingen te isoleren en te meten specifieke stappen tijdens OGG1 katalytische fietsen. Een fluorescent gelabelde laesie-bevattende oligonucleotide en gezuiverd OGG1 worden gebruikt om nauwkeurige kinetische metingen te vergemakkelijken. Aangezien lage enzymconcentraties worden gebruikt om steady-state metingen, handmatig mengen van reagentia en afschrikken van de reactie te maken kan worden uitgevoerd om de steady-state rate (k off) vast te stellen. Bovendien, extrapolatie van de steady-state rate naar een punt op de Y-as op nul moment geeft aan dat een uitbarsting van de productie, zich tijdens de eerste omzet (dwz de y-as is positief). De eerste-orde snelheidsconstante van de exponentiële burst fase kan worden gemeten met een snelle menging en uitdovingstechniek die de hoeveelheid gevormd product op korte tijdsintervallen (<1 sec) voor de steady-state fase onderzoekt en komt overeen met de snelheid van 8 -oxoG excisie (dwz chemie). De chemische stap kan ook worden gemeten met behulp van een enkel-omzet benadering waarbij katalytische fietsen isvoorkomen door verzadigen substraat met het enzym DNA (E> S). Deze benaderingen kunnen meten elementaire snelheidsconstantes die invloed hebben op de efficiëntie van de verwijdering van een DNA letsel.
Inleiding
Een aëroob milieu haast genomische instabiliteit. Een belangrijke promutagene DNA letsel als gevolg van oxidatieve stress is 7,8-dihydro-8-oxoguanine (8-oxoG). Dit komt door de dubbelzinnige codering potentieel van 8-oxoG. Human 8-oxoguanine DNA glycosylase (OGG1) is verantwoordelijk voor het initiëren base excisie reparatie van 8-oxoG. De glycosylase activiteit van OGG1 snijdt de 8-oxoG base resulteert in product-DNA met een apurinische website (AP-site). Een zwakke lyase activiteit van OGG1 kan de AP-plaats incisie in sommige gevallen.
Kinetische karakterisering van DNA glycosylases wordt algemeen gesteld dat ze vertonen bifasische tijd cursussen. Na een eerste snelle fase van de vorming van product (ie burst), wordt een lineaire steady-state fase waargenomen 1-3. Dit gedrag is een indicatie van een stap na chemie (dwz vormverandering of release van een product) worden snelheidsbeperkende tijdens het lineaire gedeelte van de tijd natuurlijk, terwijl de boore fase, vaak aangeduid als de aanloopfase overeenkomt met productvorming aan het enzym actieve plaats tijdens de eerste cyclus van de reactie. Wanneer het product release is snelheidsbeperkende tijdens de steady-state fase, activiteit metingen wordt een kwalitatieve maatstaf van product DNA bindingsaffiniteit, maar bieden geen kinetische informatie over gebeurtenissen in het enzym actieve plaats (dwz chemie). Dienovereenkomstig worden methoden om de exponentiële pre-steady-state salvofase isoleren en te meten die nodig is om gebeurtenissen tijdens de eerste enzymatische omzet aan het enzym actieve plaats 4 sonde.
Er zijn drie standaard kinetische benaderingen van de katalytische gedrag van OGG1 karakteriseren, (1) steady-state, (2) pre-steady-state, en (3) single-omzet. Deze benaderingen verschillen van elkaar door de enzymconcentratie in het reactiemengsel en de enzym substraat verhouding gebruikt in elke benadering. In een typisch steady-state benadering,soms aangeduid als meerdere omzet kinetiek, zijn lage concentraties enzym om de vorming te volgen. Het substraat concentratie veel groter is dan het enzym concentratie zodat meerdere enzymatische omzet hebben geen significante invloed substraat concentratie. In deze situatie dient een cursus lineair zijn en het is vaak moeilijk om te onderscheiden of een burst tijdens de eerste omzet door de lage concentratie enzym in deze benadering, Burst-amplitude is gelijk aan de enzymconcentratie. Dit kan worden ondervangen door een hogere enzymconcentratie en lineaire extrapolatie van de tijdsduur tot nul tijd te detecteren of de eerste enzymatische omzet zich snel. Het snijpunt langs de ordinaat (y-as) moet evenredig met de enzymconcentratie zijn en verschaft een maat voor het actief enzym met substraat. Hoewel deze benadering kan in beginsel bewijs voor het bestaan van een burst fase een diflende benadering vereist de kinetica van de salvofase meten. In veel gevallen de salvofase te snel te meten door handmatige vermenging en afschrikken technieken. In deze situatie, pre-steady-state en single-omzet kinetische (dwz transiënte kinetische) zal vaak een snel mengen en afschrikken instrument vroege tijdstippen van reactie 5 volgen. In een pre-steady-state benadering hoge concentraties enzym worden gebruikt, zodat een aanzienlijke hoeveelheid product wordt gevormd tijdens de eerste omzet. Aangezien meerdere omzet gevolgd voor katalytische fietsen (de lineaire fase die de volgende burst) observeren substraatconcentratie hoger is dan de enzymconcentratie ([enzyme] <[substraat]). Om gebeurtenissen te isoleren op de actieve plaats van het enzym zonder katalysator fietsen, zijn single-omzet condities benut. In dit geval is verzadigd met substraat-enzym (E >> S) zodat al het substraat i deelnemenn de 'single omzet' en zal vertonen typisch een enkel-exponentiële tijdsverloop.
Zoals hierboven is opgemerkt voor enzymen die een uitbarsting fase, product release (k off) vertonen vaak beperkt de snelheid van de steady-state fase van het tijdsverloop. De snelheid van product afgifte (v ss, conc. / Tijd) kan worden bepaald uit de helling van de lineaire steady-state fase. De actieve enzymconcentratie (E) is nodig om de snelheid van product afgifte converteren een intrinsieke snelheidsconstante waarbij koff = v ss / [E]. Belangrijk is dat de actieve enzymconcentratie doorgaans lager is dan de eiwitconcentratie gemeten door verontreinigingen, inactieve enzym, niet-productief gebonden aan substraat, en de methode voor eiwitconcentratie te bepalen. De actieve enzymconcentratie kan worden bepaald uit de burst amplitude als product release traag. Zo extrapoleren een steady-state tijdsverloop aanzero tijd geeft een schatting van actief enzym nodig om te berekenen k off (product release) van de waargenomen steady-state rate.
Om de kinetiek van de burst te meten, een pre-steady-state benadering is noodzakelijk om de vorming product volgen gedurende de eerste omzet die optreedt voorafgaand aan de lineaire steady-state fase. De burst kinetiek volgt de vorming van enzym-intermediair product. Nadat de reactie wordt gestart door het mengen van enzym met substraat, de hoeveelheid enzym-product snel toe totdat het reactiemengsel een stationaire fase bereikt. Als katalyse veel sneller dan product release, de amplitude van de burst gelijk is aan actief enzym en de waargenomen exponentiële benadering van evenwicht (k obs) overeenkomt met de snelheid van chemische omzetting waarmee het substraat in product, ervan uitgaande dat de snelheid van omgekeerde chemie is verwaarloosbaar.
In sommige gevallen katalytische cyvastklampen interfereert met een pre-steady-state-analyse, zoals wanneer de grootheden van de tarieven voor de chemie en de release van een product zijn niet significant verschillend. In dit geval, gebruik overmaat enzym ten opzichte van substraat voorkomt katalytische fietsen en beperkingen substraat gebonden enzym met een enkele omzet. Dienovereenkomstig kan de eerste chemische reactiestap als de eerste-orde snelheidsconstante (k obs) worden geïsoleerd en nauwkeurig bepaald. Dit percentage moet constant zijn vergelijkbaar met k obs bepaald uit de pre-steady-state benadering hierboven beschreven.
Hier beschrijven we hoe deze kinetische benaderingen kunnen worden gebruikt om de glycosylase activiteit van OGG1 analyseren.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. Bereiding van enzym en DNA Substrate
- Overexpressie OGG1 als een GST-fusie-eiwit in E. coli, gebruik maken van de GST-tag voor zuivering, en verwijder vervolgens de GST-tag door splitsing met HRV-3C protease (figuur 1) 6.
- Koop de chemisch gesynthetiseerde 5'-6-carboxyfluoresceïne (6-FAM) gelabelde oligonucleotide met een enkele 8-oxoG residu en de complementaire niet-gemerkte oligonucleotide streng. De 34-meer oligonucleotiden bevatten een 8-oxoG op positie 17 van het 5'-uiteinde. Zuiver deze oligonucleotiden door polyacrylamide gelelektroforese.
- Bereid dubbelstrengs DNA-substraat met 8-oxoG door mengen van 5'-6-FAM gemerkte oligonucleotide met zijn complementaire streng met een molaire verhouding van 1:1,2 bij gloeien buffer (10 mM Tris-HCl, pH 7,5, 50 mM NaCl, 1 mM EDTA) in een 1,5 ml microcentrifugebuis. Plaats de buis in een vlotter in kokend water gedurende 5 minuten. Laat de buis op zijn plaats en laat het water afkoelen langzaam aan room temperatuur (dit duurt ongeveer 2 uur).
- Voer monstervoorbereiding en het experiment onder lage of minimale lichtomstandigheden om zo te minimaliseren fotobleken van de fluorescent label.
2. Meting van Steady-State Tijdcurve en Active Site titratie van OGG1
2.1. Monstervoorbereiding en steady-state tijdsverloop
- Bereid DNA substraat en OGG1 oplossingen afzonderlijk reactiebuffer (50 mM HEPES, pH 7,5, 20 mM KCl, 0,5 mM EDTA en 0,1% runderserumalbumine) in 1,5 ml microfuge buizen op ijs. De concentratie van DNA is 400 nM en de schijnbare concentratie OGG1 is 30, 60, 90, of 120 nM zoals bepaald door een Bradford eiwitbepaling. Plaats de reageerbuisjes in een verwarmingsblok ingesteld op 37 ° C. Pre-incubeer enzym en DNA-substraat oplossingen afzonderlijk bij 37 ° C gedurende 1 minuut.
- Start de reactie door gelijke volumes van de OGG1 en DNA substraatoplossingen door pipetteren. Na mengen van deze oplossingenties 01:01 (v / v), de eindconcentraties zijn 200 nM DNA en 15, 30, 45, of 60 nM OGG1 respectievelijk. Verwijder porties (10 pl) en tijdsintervallen en doof de reactie door te mengen met 1 ui 1 M NaOH. Bepaalt de het tijdsverloop, 10 ul van het reactiemengsel zonder enzym wordt gemengd met 1 ui 1 M NaOH.
- Plaats de reactie monsters in een 90 ° C warmteblok gedurende 5 min voor het splitsen van het verkregen product AP-plaats. Na verwarmen, voeg 1 pl 1 M HCl aan elk monster te neutraliseren.
- Voeg een gelijk volume (12 pl) van gelbeladingsbuffer (95% formamide, 20 mM EDTA, 0,02% broomfenol, en 0,02% xyleencyanol) aan elke reactie monster, en plaats vervolgens het mengsel in een op 95 ° C warmteblok gedurende 2 minuten, dan onmiddellijk plaats de buis op ijs.
- Plaats de monsters (5 pl) op een 15% denaturerende polyacrylamidegel met 8 M ureum in 89 mM Tris-HCl, pH 8,8, 89 mM boorzuur en 2 mM EDTA. Het substraat en de gesplitste producten zijn goed gescheiden nauitvoeren van de gel.
2.2. Beeldvorming van de gel
- Scan de gel met een beeldvormer die de fluorescerend gemerkte DNA kan detecteren en het substraat en productbanden visualiseren.
- Kwantificeren van de banden na de belichting van de gel. Merk op dat sommige splitsing achtergrond worden waargenomen na behandeling van het substraat zelf met NaOH (Figuur 2A). Trek deze achtergrond uit de gemeten hoeveelheid van elk reactieproduct.
2.3. Data-analyse
- Zet de hoeveelheid product gevormd bij elke reactietijd (t) (Figuur 2B). Analyseer de ruwe data met Vergelijking 1 de amplitude van de reeks (A 0, y-as) en de helling van de lineaire steady-state fase (v ss) te bepalen.
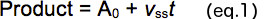
- Plotde y-as ten opzichte van de totale eiwitconcentratie (dwz duidelijk enzymconcentratie, figuur 2C), die een maat voor de actieve fractie enzym. Gebruik een lineaire fit met nul intercept de correctiefactor voor het bepalen van de fractie actief enzym.
- Plot de steady-state rate ten opzichte van het actieve enzym concentratie (figuur 2D), het verstrekken van het product dissociatiesnelheidsconstante (dwz helling van de gepaste lijn).
3. Meting van pre-steady-state Time Cursus
Zoals getoond in figuur 2, productvorming tijdens de salvofase te snel te meten door handmatige vermenging en afschrikken. Zo kan een snelle quench-stroommeter een krachtige methode om snelle reacties die op de milliseconde tijdschaal (figuur 3) 5 meten. Het instrument maakt gebruik van een computer-gestuurde aandrijfmotor om snel te mengen eennd blussen reacties na opgegeven reactietijden. Gebruik bijvoorbeeld een Kintek Instrument RQF-3 Rapid Quench-Flow om de eerste uitbarsting fase en de daaropvolgende steady-state fase van produktvorming gekatalyseerd door OGG1 meten. Rapid Quench-Flow Instrumenten zijn beschikbaar van verschillende fabrikanten.
3.1. Voorbehandeling van het monster
Afzonderlijk bereid DNA-substraat en OGG1 oplossingen in 1,5 ml buizen zoals beschreven in 2-1. De concentraties van DNA en actieve OGG1 zijn 400 nM en 80 nM. Dit resulteert in uiteindelijke concentraties van 200 nM en 40 nM DNA actieve OGG1 na menging 01:01 (v / v).
3.2. Voorbereiding van snelle demping-flow instrument
- Sluit een circulerend waterbad om de snelle quench-flow instrument voor temperatuurregeling (37 ° C).
- Pas de parameters instrument en selecteer de juiste reactie lus voor de gewenste tijd wijst volgens de instructies van de fabrikantties. De reactie lussen van verschillende lengten om alternatieve reactietijden leveren.
- Bereid reactie buffer en NaOH blussen oplossingen in 10 ml Luer Lock wegwerpinjectiespuiten en bevestig deze spuiten om de Drive-poorten en laad de schijf Reservoirs met reactiebuffer (injectiespuiten B) en 142 mM NaOH (spuit Q) (Spuit Load Ventielen in LOAD positie) . om de luchtbellen uit de spuit te verwijderen, werkt de oplossing heen en weer meerdere malen.
- Laat de stappenmotor tot het de top van de spuit (spuit Load kleppen en monster Load kleppen in brand gestoken positie).
- Spoel de Sample Loops, de Reaction Loop, en de Exit Line met water en methanol. Droog de gespoelde gebieden volledig (kleppen in FLUSH positie).
3.3. Pre-steady-state tijdsverloop
- Maak een gat in de bovenkant van een capped 1,5 ml buis met een 16-gauge naald. Bevestig een slang aan de afrit Line naar de gedoofde reactie verzamelen.
- Stel de gewenste reaction tijd (in seconden) in met het toetsenbord. De stappenmotor wordt een back-up aan te passen voor lus volume om zo constant blusvolume behouden. Positie plunjers voor spuit B tegen de stappenmotor-platform door het toevoegen van buffer met de beschikbare spuiten aan de Drive Ports.
- Vul 1 ml Luer Lock wegwerpinjectiespuiten met DNA-substraat en OGG1 oplossingen, respectievelijk (monster kleppen in LOAD positie). Bevestig spuiten met DNA-substraat en OGG1 oplossingen voor elk van de Sample Load Ports, en vul dan de Sample Loops met DNA-substraat en OGG1 oplossingen, respectievelijk (Sample Load Ventielen in LOAD positie).
- Zet alle Spuit Load Afsluiters en Sample Load kleppen aan de FIRE positie. Start de reactie door een toetsenbord beroerte (bijvoorbeeld druk van "G" of de toets "START"). DNA-substraat en OGG1 oplossingen (18 pi elk) worden onmiddellijk gemengd in de Reaction Loop.
- Wacht tot de reactie automatisch wordt gestopt op het gewenste reactietijd door mengen 36 pl van de reaction mengsel met 86 ul van 142 mM NaOH. Na het blussen van de reactie, wordt het monster afgevoerd uit de Exit Line.
- Stel de spuit Load Valves aan de LOAD positie en de Sample Load Valves aan de FLUSH positie. Spoel de Sample Loops, de Reaction Loop, en de Exit Line met water en methanol en drogen zoals beschreven in 3.2. Herhaal de bovenstaande procedure voor elk tijdstip.
- Uitvoeren van een controle-experiment zonder enzym een achtergrond correctie, die handmatig of met de snelle-afschrik-instrument kan worden gedaan bepalen. Om een controle met de snelle-demping instrument uit te voeren, vul de Sample Loop voor DNA met DNA-substraat maar houd de Sample Loop voor OGG1 leeg. Stel de reactietijd, voeren de mix en doof zoals beschreven in 3.3.4-3.3.6.
- Was de Sample Loops en de reactie Loop met 2 M NaOH, 2 M HCl, water en methanol en droog de gewassen lijnen. Na het instellen van de stappenmotor naar huis positie, zet de spuit Load Valves aan de LOAD position en was de drive Reservoirs met water.
- Behandel de gebluste reactie monsters met warmte, en vervolgens gescheiden substraat en product-DNA met 15% denaturerende polyacrylamidegelelektroforese zoals beschreven in 2.1.
- Visualiseren en kwantificeren van de banden op de gel zoals beschreven in 2.2.
3.4. Data-analyse
Breng het tijdsverloop van productvorming door niet-lineaire regressieanalyse een vergelijking met een stijgende lineaire en exponentiële termen (Vergelijking 2) die de eerste-orde snelheidsconstante (k obs), de amplitude van de reeks (A 0) en een lineaire snelheid (v ss).
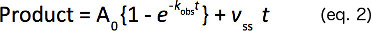
4. Single-omzet Tijdcurve
- Bereid DNA substraat en OGG1 in afzonderlijke 1,5 ml buizen zoals beschreven in 2-1. De concentratiesgen van DNA en actieve OGG1 zijn 100 nM en 500 nM, levert dit eindconcentratie van 50 nM en 250 nM DNA OGG1 na menging 01:01 (v / v).
- Bereid de snelle afschrik-flow instrument en bereiden de reactie monsters zoals beschreven in 3.2 en 3.3.
- Behandel het afgeschrikte reactiemengsel monsters met warmte om deze aan 15% denaturerende polyacrylamide gel electroforese scheiden substraat en producten beschreven in 2.1.
- Visualiseren en kwantificeren van de banden op de gel zoals beschreven in 2.2.
- Breng het tijdsverloop van de productie, om een exponentieel de eerste-orde snelheidsconstante (k obs) bepalen, zoals gegeven in vergelijking 3.
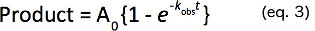
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Steady-state kinetische analyse werd uitgevoerd met 200 nM DNA-substraat en vier verschillende schijnbare concentraties OGG1 (15, 30, 45, en 60 nM), zoals bepaald door een Bradford eiwitbepaling 2. Het tijdsverloop van productvorming geschikt waren om een lineaire vergelijking met de y-as, waarvan 2,2 waren, 11, 15, en 26 nM, respectievelijk, ten opzichte van elkaar eiwitconcentratie (figuur 2B) te bepalen. De y-onderschept werden verder uitgezet ten opzichte van iedere gemeten eiwitconcentra...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
De kinetische benaderingen die hier beschreven schetsen methoden om elementaire kinetische constanten definiëren. Als een tijdsverloop van formatie product is bifasisch met de eerste enzymatische omzet snel optredende, dan is een stap na de chemie is snelheidsbeperkende tijdens de daaropvolgende katalytische omzet. Bij OGG1, kan de eerste omzet gemeten met behulp van hoge concentraties enzym met hetzij beperkt (S E) DNA concentraties. In het eerste geval wordt de reactie beperkt tot 'single-omz...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
Auteurs hebben niets te onthullen.
Dankbetuigingen
Wij danken dr. Julie K. Horton voor kritische lezing van het manuscript en Dr Rajendra Prasad voor nuttige suggesties en discussies. Delen van dit onderzoek werden oorspronkelijk gepubliceerd in The Journal of Biological Chemistry, Sassa A et. al. 'DNA Sequence Context Effecten op de Glycosylase activiteit Menselijke 8-oxoguanine DNA Glycosylase. "J Biol Chem. 287, 36.702-36.710 (2012) 2. Dit werk werd ondersteund, in zijn geheel of gedeeltelijk, door de National Institutes of Health Research Project Grant Z01-ES050158 in de Intramurale Research Program, NIEHS.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Reagens/Materiaal | |||
| 5’-6-FAM gelabelde oligonucleotiden met een enkele 8-oxoG | Eurofins MWG Operon | 5’-P32 radioactief gelabelde oligonucleotiden kunnen ook worden gebruikt. Polyacrylamide gel zuiveringsgraad wordt aanbevolen. | |
| Ongelabelde oligonucleotiden (complementaire streng) | Eurofins MWG Operon | Polyacrylamide gel zuiveringsgraad wordt aanbevolen. | |
| 1 ml BD Luer Lock wegwerpspuit | BD Medical | 309628 | Luer Lock wegwerpspuit van andere leveranciers kan ook worden gebruikt. |
| 10 ml BD Luer Lock wegwerpspuit | BE Medical | 309604 | Luer Lock wegwerpspuit van andere leveranciers kan ook worden gebruikt. |
| Apparatuur | |||
| Circulerend waterbad | Elke verkoper | ||
| RQF-3 Rapid Quench-Flow Instrument | KinTek Corporation | Rapid Quench-Flow Instrument van andere leveranciers kan ook worden gebruikt. | |
| Typhoon Phosphorimager 8600 | GE Healthcare Life Sciences | Imager van andere leveranciers kan ook worden gebruikt. | |
| KaleidaGraph | Synergy Software |
Referenties
- Porello, S. L., Leyes, A. E., David, S. S. Single-turnover and pre-steady-state kinetics of the reaction of the adenine glycosylase MutY with mismatch-containing DNA substrates. Biochemistry. 37, 14756-14764 (1998).
- Sassa, A., Beard, W. A., Prasad, R., Wilson, S. H. DNA sequence context effects on the glycosylase activity of human 8-oxoguanine DNA glycosylase. The Journal of Biological Chemistry. 287, 36702-36710 (2012).
- Wong, I., Lundquist, A. J., Bernards, A. S., Mosbaugh, D. W. Presteady-state analysis of a single catalytic turnover by Escherichia coli uracil-DNA glycosylase reveals a "pinch-pull-push" mechanism. The Journal of Biological Chemistry. 277, 19424-19432 (1074).
- Johnson, K. A. Advances in transient-state kinetics. Current Opinion in Biotechnology. 9, 87-89 (1998).
- Johnson, K. A. Rapid kinetic analysis of mechanochemical adenosinetriphosphatases. Methods in Enzymology. 134, 677-705 (1986).
- Kovtun, I. V., et al. OGG1 initiates age-dependent CAG trinucleotide expansion in somatic cells. Nature. 447, 447-452 (2007).
- Hill, J. W., Hazra, T. K., Izumi, T., Mitra, S. Stimulation of human 8-oxoguanine-DNA glycosylase by AP-endonuclease: potential coordination of the initial steps in base excision repair. Nucleic Acids Research. 29, 430-438 (2001).
- Zharkov, D. O., Rosenquist, T. A., Gerchman, S. E., Grollman, A. P. Substrate specificity and reaction mechanism of murine 8-oxoguanine-DNA glycosylase. The Journal of Biological Chemistry. 275, 28607-28617 (2000).
- Waters, T. R., Swann, P. F. Kinetics of the action of thymine DNA glycosylase. The Journal of Biological Chemistry. 273, 20007-20014 (1998).
- Nilsen, H., et al. Excision of deaminated cytosine from the vertebrate genome: role of the SMUG1 uracil-DNA glycosylase. The EMBO Journal. 20, 4278-4286 (2001).
- Gill, S. C., von Hippel, P. H. Calculation of protein extinction coefficients from amino acid sequence data. Analytical Biochemistry. 182, 319-326 (1989).
- Van de Berg,, Beard, B. J., A, W., Wilson, S. H. DNA structure and aspartate 276 influence nucleotide binding to human DNA polymerase beta. Implication for the identity of the rate-limiting conformational change. The Journal of Biological Chemistry. 276, 3408-3416 (2001).
- Krishnamurthy, N., Haraguchi, K., Greenberg, M. M., David, S. S. Efficient removal of formamidopyrimidines by 8-oxoguanine glycosylases. Biochemistry. 47, 1043-1050 (2008).
- Leipold, M. D., Muller, J. G., Burrows, C. J., David, S. S. Removal of hydantoin products of 8-oxoguanine oxidation by the Escherichia coli DNA repair enzyme, FPG. Biochemistry. 39, 14984-14992 (2000).
- Zhao, X., Krishnamurthy, N., Burrows, C. J., David, S. S. Mutation versus repair: NEIL1 removal of hydantoin lesions in single-stranded, bulge, bubble, and duplex DNA contexts. Biochemistry. 49, 1658-1666 (2010).
- Leipold, M. D., Workman, H., Muller, J. G., Burrows, C. J., David, S. S. Recognition and removal of oxidized guanines in duplex DNA by the base excision repair enzymes hOGG1, yOGG1, and yOGG2. Biochemistry. 42, 11373-11381 (2003).
- Robey-Bond, S. M., Barrantes-Reynolds, R., Bond, J. P., Wallace, S. S., Bandaru, V. Clostridium acetobutylicum 8-oxoguanine DNA glycosylase (Ogg) differs from eukaryotic Oggs with respect to opposite base discrimination. Biochemistry. 47, 7626-7636 (2008).
- Jarem, D. A., Wilson, N. R., Delaney, S. Structure-dependent DNA damage and repair in a trinucleotide repeat sequence. Biochemistry. 48, 6655-6663 (2009).
- Livingston, A. L., Kundu, S., Henderson Pozzi, M., Anderson, W. D., David, S. S. Insight into the roles of tyrosine 82 and glycine 253 in the Escherichia coli adenine glycosylase MutY. Biochemistry. 44, 14179-14190 (2005).
- Kundu, S., Brinkmeyer, M. K., Livingston, A. L., David, S. S. Adenine removal activity and bacterial complementation with the human MutY homologue (MUTYH) and Y165C, G382D, P391L and Q324R variants associated with colorectal cancer. DNA Repair. 8, 1400-1410 (2009).
- Zharkov, D. O., Rosenquist, T. A. Inactivation of mammalian 8-oxoguanine-DNA glycosylase by cadmium(II): implications for cadmium genotoxicity. DNA Repair. 1, 661-670 (2002).
- Jarem, D. A., Wilson, N. R., Schermerhorn, K. M., Delaney, S. Incidence and persistence of 8-oxo-7,8-dihydroguanine within a hairpin intermediate exacerbates a toxic oxidation cycle associated with trinucleotide repeat expansion. DNA Repair. 10, 887-896 (2011).
- Mokkapati, S. K., Wiederhold, L., Hazra, T. K., Mitra, S. Stimulation of DNA glycosylase activity of OGG1 by NEIL1: functional collaboration between two human DNA glycosylases. Biochemistry. 43, 11596-11604 (2004).
- Sidorenko, V. S., Nevinsky, G. A., Zharkov, D. O. Mechanism of interaction between human 8-oxoguanine-DNA glycosylase and AP endonuclease. DNA Repair. 6, 317-328 (2007).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
