De genetische reportertest is een goed gevestigd en krachtig hulpmiddel voor het ontleden van de relatie tussen DNA-sequenties en hun gen-regulerende activiteiten. Het koppelen van kandidaat-regulerende elementen aan reportergenen die identificerende sequentietags dragen, maakt massale parallelisatie van deze tests mogelijk.
Methodenartikel
Massively Parallel Reporter Testen in gekweekte zoogdiercellen
In dit artikel
Erratum-melding
Important: There has been an erratum issued for this article. View Erratum Notice
Samenvatting
Samenvatting
De genetische reporter-assay is een goed gevestigd en krachtig hulpmiddel voor het ontleden van de relatie tussen DNA-sequenties en hun gen-regulatorische activiteiten. Het potentiële rendement van deze assay is echter beperkt geweest door de noodzaak om individueel te klonen en de activiteit van elke interessant sequentie te meten met behulp van eiwitfluorescentie of enzymatische activiteit als een proxy voor regulatorische activiteit. Recente vorderingen in high-throughput DNA-synthese en sequentietechnologieën hebben het mogelijk gemaakt om deze beperkingen te overwinnen door de constructie en ondervraging van grote bibliotheken van reporter-constructies te multiplexen. Dit protocol beschrijft de implementatie van een Massively Parallel Reporter Assay (MPRA) die directe vergelijking van honderdduizenden vermeende regulatorische sequenties in een enkele celkweekschaal mogelijk maakt.
Inleiding
Massively Parallel Reporter assays (MPRA) laten multiplex-meting van de transcriptie regulerende activiteiten van duizenden tot honderdduizenden DNA-sequenties 1-7. In hun meest algemene uitvoering wordt multiplexing bereikt door koppeling elke sequentie van belang een synthetisch reportergen dat een identificerende sequentie tag stroomafwaarts van een open leesraam bevat (ORF Figuur 1). Na transfectie RNA isolatie en sequentie-analyse van de 3 'einden van het reporter gen transcripten, kan de relatieve activiteiten van de gekoppelde sequenties worden afgeleid uit de relatieve abundantie van de identificatie markeringen.

Figuur 1 Overzicht van MPRA. Een bibliotheek van MPRA reporterconstructen geconstrueerd door het koppelen putatieve regulerende sequenties synthetischereportergenen die bestaan uit een "inert" ORF (zoals GFP of luciferase) gevolgd door een identificatienummer sequence tag. De bibliotheek wordt getransfecteerd en masse in een populatie van gekweekte cellen en getranscribeerd reporter mRNA wordt vervolgens hersteld. Deep sequencing wordt gebruikt om het aantal keren dat elk label onder de reporter mRNA en de getransfecteerde plasmiden tellen. De verhouding van mRNA telt dan plasmide tellingen kan worden gebruikt om de activiteit van de overeenkomstige regulerende sequentie afgeleid. Aangepast met toestemming van Melnikov, ea 2.
MPRA kan worden aangepast om een groot aantal experimentele modellen, waarbij 1) omvattende mutagenese van afzonderlijke genreguleringselementen 2) scannen naar nieuwe regulerende elementen in een locus plaats, 3) het testen van het effect van natuurlijke genetische variatie in een aantal vermeende promoters, enhancers of geluiddempers, en 4) semi-rationele engineering van synthetische regulerende elementen. Libraries sequentie varianten kunnen worden gegenereerd met behulp van verschillende methoden, waaronder oligonucleotide bibliotheek synthese (OLS) programmeerbaar microarrays 2,3,6,7, assemblage gedegenereerde oligonucleotiden 1,4 combinatorische ligatie 8 en fragmentatie van genomisch DNA 5.
Dit protocol beschrijft de bouw van een bibliotheek van promotor varianten met behulp van OLS en de pMPRA1 en pMPRAdonor1 vectoren (Addgene id 49349 en 49352, respectievelijk; http://www.addgene.org), transiënte transfectie van deze bibliotheek in gekweekte zoogdiercellen en de daaropvolgende kwantificering van de promotor activiteiten door diepe sequencing van de bijbehorende labels (Tag-Seq). Eerdere versies van dit protocol werden gebruikt in het onderzoek gerapporteerd in Melnikov et al. Nature Biotechnology 30, 271-277 (2012) en in Kheradpour e.a.. Genome Research 23, 800-811 (2013).
Protocol
1 Sequence Design en Synthese
- Begin MPRA met het ontwerpen en synthetiseren van sequenties te testen voor regulerende activiteit. Voor compatibiliteit met de pMPRA vector reeks ontwerpen elke sequentie met het volgende model: 5'-ACTGGCCGCTTCACTG- var -GGTACCTCTAGA- tag -AGATCGGAAGAGCGTCG-3 'waarbij var geeft de sequentie te testen en tag duidt een of meer labels identificeren.
- De twee variabele gebieden (var en tag) worden gescheiden door een paar Kpnl (GGTACC) en XbaI (TCTAGA) restrictieplaatsen gerichte ligatie van een reportergen fragment tussen bedrijven. Daarnaast zullen twee verschillende SfiI (GGCCNNNNNGGCC) gebieden worden toegevoegd door PCR om gerichte ligatie toe in de pMPRA backbone. De variabele regio's moeten niet extra exemplaren van een van deze restrictie sites bevatten. Indien nodig, een of meer van deze restrictie-enzymen kunnen worden vervangenZolang de vervangingen 1) toelaten efficiënt snijden nabij de uiteinden van DNA-moleculen, en 2) niet elders gesneden in de vector sequentie. Zie Discussie voor meer informatie.
- Verkrijg de in tabel 1 van een commerciële verkoper vereist primers.
| MPRA_SfiI_F | GCTAAGGGCCTAACTGGCCGCTTCACTG |
| MPRA_SfiI_R | GTTTAAGGCCTCCGTGGCCGACGCTCTTC |
| TAGseq_P1 | AATGATACGGCGACCACCGAGATCTACACT CTTTCCCTACACGACGCTCTTCCGATCT |
| TAGseq_P2 | CAAGCAGAAGACGGCATACGAGAT [index] GT GACTGGAGTTCAGACGTGTGCTCTTCCGATCTCGAGG |
Tabel 1 Primer sequenties. [Index] duidt op een 6-8 nt index sequentie die wordt gebruikt voor multiplex-sequencing. Verkrijgen van ten minste 8 TagSeq-P2 primers met verschillende indices. Allevan de primers gezuiverd met HPLC of PAGE.
- Oligonucleotide bibliotheken kunnen worden verkregen van een commerciële verkoper of kern faciliteit of gegenereerd door een programmeerbare-microarray gebaseerde oligonucleotide synthesizer zoals beschreven door de fabrikant. Resuspendeer de OLS producten in 100 ul TE 0,1 buffer.
- Voer de oligonucleotide bibliotheken op een 10% TBE-ureum denaturerende polyacrylamide gel. Laad ongeveer 1 pmol per rijstrook en vlek met ssDNA- gevoelige fluorescerende vlek om hun kwaliteit (Figuur 2A) te beoordelen.
- Indien een afzonderlijke band die overeenkomt met de volledige lengte oligonucleotiden kunnen worden gevisualiseerd (Figuur 2A, banen 1 en 2), te snijden de overeenkomstige acrylamide gel slice en elueer oligonucleotiden in 100 pi TE 0,1 overnacht bij kamertemperatuur onder schudden. Anders gaat u met behulp van de ruwe OLS schorsing.
- Amplify en voeg Sfil staarten aan het oligonucleotide bibliotheek met emulsie PCR 9 sup>.
- Zet 50 pi PCR reactiemengsels zoals aangegeven in tabel 2. Vervolgens gecombineerd met 300 pi olie en oppervlakteactieve mengsel van de emulsie en Micellula DNA Purification kit en vortex gedurende 5 min bij 4 ° C.
| Reagens | 1x Volume (pl) |
| Herculase II Fusion DNA Polymerase | 0.5 |
| 5x Herculase II Reaction Buffer | 10 |
| dNTP (10 mM elk) | 1.25 |
| BSA (20 mg / ml) | 1.25 |
| Primer MPRA_SfiI_F (25 uM) | 0.25 |
| Primer MPRA_SfiI_R (25 uM) | 0.25 |
| OLS template (1-10 attomol) | varieert |
| Nucleasevrij water | 50 |
- Gebruik de concentratie die de maximale opbrengst van de versterking producten geeft, zonder het uiterlijk van artefacten (zie paragraaf 1.12).
- Breng de verkregen emulsie in PCR buizen en uitvoeren 20 cycli van PCR (2 min bij 95 ° C, 20 x [20 sec bij 95 ° C, 20 seconden bij 55 ° C, 30 seconden bij 72 ° C], 3 min bij 95 ° C).
- Pool en breek elke 350 ul emulsie PCR reactie door toevoeging van 1 ml isobutanol en kort vortexen en vervolgens zuiveren het amplificatieproduct met een DNA-zuiveringskolom.
- Run een hoeveelheid van 2% of 4% agarose gel om artefactvrij amplificatie (Figuur 2B) verifiëren.

Figuur 2 Bereiding van bibliotheken oligonucleotide synthese. A) Drie verschillende bibliotheken rauwe oligonucleotidesynthese (OLS) draaien op denaturerende 10% TBE-Urea polyacrylamidegelen. Banden overeenkomend met volledige lengte oligonucleotiden (*) worden gevisualiseerd en uitgesneden uit bibliotheken 1 en 2 Library 3 bevat verontreinigingen die interfereren met PAGE zuivering. Als dit het geval is, ga PCR amplificatie. B) Producten van open en emulsie PCR amplificatie van hetzelfde oligonucleotide bibliotheek over agarose gel. PCR-amplificatie van complexe oligonucleotide bibliotheken creëert vaak chimeer en andere effecten die kunnen als hogere en lagere banden. Emulsie PCR kunnen deze artefacten te minimaliseren.
2 Bibliotheek Bouw
- Bereid een gelineariseerde plasmide backbone vector door digestie met Sfil pMPRA1 bij 50 ° C gedurende 2 uur lopen op een 1% agarosegel te snijden de backbone band (in dit geval 2,5 kb) en zuiveren met behulp van een gel-zuivering spinkolom.
- Digestde emulsie PCR producten van stap 1.4 met Sfil bij 50 ° C gedurende 2 uur en zuiveren met behulp van DNA zuivering kolommen.
- Aan de promotor-tag library afbinden in de gelineariseerde vector backbone, het opzetten van reacties die 100 ng van het geknipte PCR product, 50 ng van gelineariseerde vector backbone en T4 DNA ligase. Incubeer overnacht bij 16 ° C en vervolgens warmte bij 65 ° C gedurende 20 minuten om het ligase te inactiveren.
- Transformeren E. coli met de ligatiereactie. Om bibliotheek complexiteit behouden, streven naar minstens 10x meer kve krijgen dan zijn er verschillende promotor-tag combinaties in de ontworpen bibliotheek.
- Wanneer het totale aantal markeringen is ongeveer 100.000, kan het doel cfu typisch bereikt door het uitvoeren 6-8 parallelle transformaties per bibliotheek.
- Voor elke transformatie, combineer 50 pi elektrocompetente E. coli cellen met 2 pi ligatiemengsel op ijs. Transformeren door elektroporatie, herstellen de cellen in 800 ul SOCmedium door schudden bij 37 ° C gedurende 1 uur, en vervolgens combineren cellen van de parallelle transformaties.
- Om de transformatie-efficiëntie te evalueren plaat seriële verdunningen van een alinquot van teruggewonnen cellen op LB agar platen met 50-100 ug / ml carbenicilline en incubeer overnacht bij 37 ° C. Schatting totale cfu als (waargenomen cfu) x (verdunningsfactor) x (V - v) / v, waarbij V het totale volume van teruggewonnen cellen en V het volume van het monster genomen voor de seriële verdunningen.
- Tegelijkertijd, gebruikt de rest van de teruggewonnen cellen te inoculeren 200 ml LB aangevuld met 100 ug / ml carbenicilline. Kweek cellen bij 37 ° C geïncubeerd in een shaker incubator en vervolgens isoleren het plasmide-DNA volgens standaardprocedures.
- Digest een hoeveelheid van het geïsoleerde plasmide bibliotheek met Sfil bij 50 ° C gedurende 2 uur en lopen op een 1% agarosegel om de aanwezigheid van inserts bevestigen.
- Lineariseren het plasmide-verzameling uit door cUtting tussen de promotor varianten en labels met Kpnl en Xbal. Om de spijsvertering efficiëntie te maximaliseren, uit te voeren seriële ontsluitingen:
- Eerst verteren met Kpnl bij 37 ° C gedurende 1 uur en zuiveren via magnetische partikels. Tweede verteren met XbaI met toevoeging van 1 U Shrimp Alkaline fosfatase bij 37 ° C gedurende 2 uur, warmte geïnactiveerd bij 65 ° C gedurende 5 min en vervolgens zuiveren via magnetische partikels.
- Run een hoeveelheid op een 1% agarose gel om volledige linearisatie verifiëren. Als ongesneden plasmide zichtbaar is, moet het gelineariseerde fragment gel gezuiverd.
- Om een MPRA bibliotheek geschikt voor transfectie in zoogdiercellen te genereren, afbinden een ORF met Kpnl / Xbal compatibele uiteinden in de gelineariseerde tussenliggende bibliotheek.
- Een compatibele luc2 ORF-fragment van pMPRAdonor1 bereiden, verteren dit plasmide met KpnI en XbaI bij 37 ° C gedurende 1 uur en lopen op een 1% agarose gel. Accijnzen het ORF-fragment (1,7 kb in dit geval) en zuiveren met behulp van een gel zuivering spinkolom.
- Kloon de ORF-fragment in de gelineariseerde tussenliggende bibliotheek, zoals beschreven in de stappen 2,3-2,8.
- Digest een hoeveelheid (overeenkomend met 1-2 ug) van de MPRA bibliotheek met KpnI bij 37 ° C gedurende 1 uur en lopen op een 1% agarose gel. Als de gedigereerde bibliotheek uitgevoerd als een enkele band door naar Sectie 3 Als aanvullende banden waargenomen (meestal overeenkomend met overdracht van tussenproduct constructen), de bibliotheek verder gezuiverd als volgt:
- Digest 3-5 ug van het verontreinigde bibliotheek met KpnI bij 37 ° C gedurende 1 uur en lopen op een 0,8% agarose gel overnacht bij 4 ° C.
- Accijnzen de juiste bibliotheek band, zuivert het DNA met een gel zuivering rotatie kolommen en zelf-ligatie met hoge concentraties T4 DNA ligase bij 37 ° C gedurende 1 uur. Herhaal vervolgens de transformatie en de uiteindelijke bibliotheek DNA-isolatie zoals beschreven in stap 2.8.
3 Transfection, Perturbation en RNA isolatie
- Voor elke onafhankelijke transfectie, kweek het vereiste aantal cellen (volgens de MPRA complexiteit bibliotheek, zie bespreking) in geschikt medium. Bijvoorbeeld, cultuur HEK293T / 17 cellen in DMEM gesupplementeerd met 10% FBS en L-glutamine / penicilline / streptomycine. Kweekcellen voor ten minste twee onafhankelijke transfecties van elke bibliotheek en experimentele conditie.
- Transfecteren van de gekweekte cellen met MPRA plasmiden. De transfectie werkwijze en voorwaarden worden geoptimaliseerd voor elk celtype. Voor elk getransfecteerd monster, behouden een hoeveelheid (50-100 ng) van het plasmide-DNA als een controlegroep.
- Bijvoorbeeld transfecteren 0,5 x 10 7 HEK293T / 17 cellen gekweekt tot -50% confluentie in een 10 cm kweekschaal met 10 ug plasmide DNA in 1 ml Opti-MEM I Reduced Serum Medium met 30 pi Lipofectamine LTX en 10 pi Plus reagens. Verwijder de transfectie mengsel na 5 uur en laat hetcellen herstellen gedurende 24-48 uur.
- Optioneel uit te voeren elke verstoring nodig om context-of signaal-afhankelijke regulerende sequenties in het ontworpen bibliotheek activeren.
- Oogst de cellen en isoleren poly (A) + mRNA middels standaard oligo (dT) cellulose kolommen of korrels met instructies van de fabrikant.
- Zorg ervoor dat de maximale bindingscapaciteit van de kolommen of kralen groter zijn dan de totale hoeveelheid mRNA verwacht van de geoogste cellen. Bijvoorbeeld, de verwachte opbrengst uit paragraaf 3.3 is ongeveer 0,5-2,5 ug mRNA.
4 Tag-Seq
- Om overdracht van vector-DNA te verwijderen uit de getransfecteerde cellysaten behandelen elke 20 pl mRNA monster met 1 pi Turbo DNase (2, U) en 2,3 pl 10x Turbo DNase buffer bij 37 ° C gedurende 1 uur, voeg 2,4 pl Turbo DNase Inactivering Reagens op RT gedurende 5 min onder mengen centrifuge bij 10.000 g gedurende 90 seconden, en breng de oplossing naar een nieuwe buis.
- Verifiëren zuiverheid uitvoeren van PCR zoals beschreven in sectie 4.6 van 60-100 ng van elk mRNA monster, en vervolgens uitvoeren van de producten op een agarose gel. Indien specifieke amplicons zichtbaar zijn (0,25 kb bij gebruik pMPRA1 met luc2), kolom zuiveren de behandelde mRNA en herhaal de DNase behandeling.
- Om Tag-Seq sequencing bibliotheken te genereren, zet reporter mRNA naar cDNA en voeg sequencing adapters met PCR.
- Stel mRNA / RT primer mengsels zoals beschreven in Tabel 3. Incubeer bij 65 ° C gedurende 5 minuten en plaats op ijs. In parallel hiermee, cDNA synthese reacties zoals beschreven in Tabel 4.
| Reagens | 1x Volume (pl) |
| mRNA monster (400-700 ng totaal) | 8 |
| Oligo-0DT (50 uM) | 1 |
| dNTP (10 mM elk) | 1 |
| Reagens | 1x Volume (pl) |
| 10x SuperScript III RT Buffer | 2 |
| MgCl2 (25 mM) | 4 |
| DTT (0,1 M) | 2 |
| RNaseOut (40 U / pl) | 1 |
| SuperScript III (200 U / pl) | 1 |
Tabel 4 cDNA synthese reactiemengsel.
- Zachtjes combineren mRNA / RT primer mengt met cDNA synthese mixen. Incubeer bij 50 ° C gedurende 50 min, 85 ° C gedurende 5 minuten en plaats op ijs. Tenslotte incubeer 2 U van ribonuclease H bij 37 ° C gedurende 20 minuten.
- Opgezet PCR-reacties, zoals beschreven in tabel 5 met 4-6 picDNA reactiemengsel of 50 ng reporter plasmide als templates. Voer daarna PCR-amplificatie (95 ° C gedurende 2 min, 26 x [95 ° C gedurende 30 seconden, 55 ° C gedurende 30 seconden, 72 ° C gedurende 30 seconden], 72 ° C gedurende 3 min).
| Reagens | 1x Volume (pl) |
| 2x PfuUltra II HotStart PCR Master Mix | 25 |
| Primer TagSeq_P1 (25 uM) | 0.5 |
| Primer TagSeq_P2 (25 uM) | 0.5 |
| Sjabloon (mRNA, cDNA mix of plasmide-DNA) | varieert |
| Nucleasevrij water | 50 |
Tabel 5 Tag-Seq PCR-mix.
- Voer de PCR producten via een 2% agarose gel, accijns band van de Tag-Seq library amplicons (0,25 kb bij gebruikpMPRA1 met luc2) en zuiveren met behulp van deze gel zuivering spinkolommen.
- Zwembad, denatureren en volgorde het gezuiverde Tag-Seq ampliconen direct met een Illumina sequencing instrument.
- Filter lage kwaliteit leest door het verwijderen van al die a) een of meer posities met een Phred kwaliteit scoren minder dan 30 in de opeenvolgende tag of b) niet exact overeenkomt met een ontworpen label. Tel het aantal keren dat elke resterende tag verschijnt in elke bibliotheek. Normaliseren van de etiketgetallen TPM (markeringen per miljoen sequentie-tags) en bereken de verhouding van mRNA-afgeleide tag tellingen over-plasmide afgeleide etiketgetallen voor elk paar sequencing bibliotheken. Als er meerdere verschillende labels werden gekoppeld aan elke sequentie variant, gebruiken hun mediane ratio's voor downstream-analyse.
Resultaten
MPRA vergemakkelijkt hoge-resolutie, kwantitatieve dissectie van de sequence-activiteit relaties van transcriptie-regulerende elementen. Een succesvolle MPRA experiment zal typisch opbrengst zeer reproduceerbare metingen van de meerderheid van sequenties in de getransfecteerde bibliotheek (Figuur 3A). Bij slechte reproduceerbaarheid wordt waargenomen (figuur 3B), is indicatief voor een te lage concentratie reporter mRNA in de teruggewonnen RNA monsters door ofwel 1) lage absolute activiteit onder de sequenties bepaald, of 2) lage transfectie efficiëntie.
Figuur 4 toont een representatieve "informatie footprint" 1,2 gegenereerd door het testen ~ 37.000 willekeurige varianten van een 145 bp sequentie stroomopwaarts van het humane gen IFNB in HEK293 cellen met of zonder blootstelling aan Sendai virus. De promotor TATA-box en bekende proximale versterker 10 kan duidelijk worden geïdentificeerd als informatie-rijke regions in een virus-afhankelijke wijze.
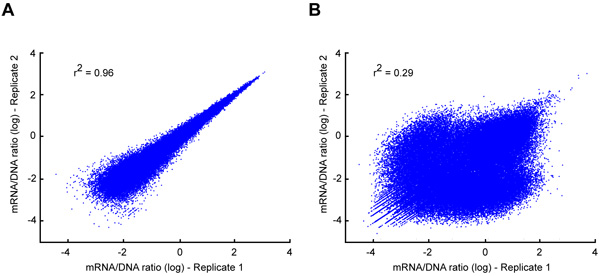
Figuur 3 Tag-Seq reproduceerbaarheid. Puntgrafieken tonen voorbeelden van Tag-Seq data van twee onafhankelijke herhaalde transfecties met een hoge (A) en laag (B) reproduceerbaarheid. Deze grafiek toont veel outlier tags met hoge mRNA telt in slechts een van de twee herhalingen. Dergelijke artefacten typisch aan dat de concentraties van reporter mRNA waren te laag voor kwantitatieve PCR amplificatie, hetzij vanwege lage absolute activiteiten tussen de reporter constructen of lage transfectie efficiëntie.
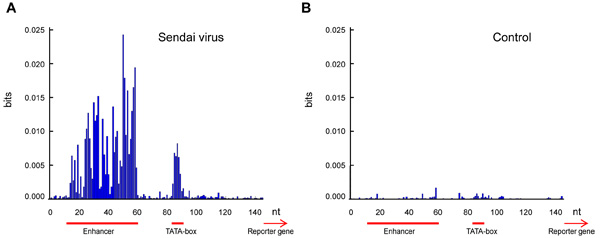
Figuur 4 Informatie voetafdruk van de mens IFNB transcriptie start site en proximale enhancer. Ongeveer 37.000 willekeurige varianten van een 145 nucleotide (nt) stroomopwaarts van de menselijke IFNB-gen werden getest middels MPRA in HEK293 cellen met (A) en zonder (B) blootstelling aan Sendai virus. De blauwe balken tonen de wederzijdse informatie tussen de verslaggever output en de nucleotide op elke positie. De proximale enhancer en TATA-box springen als gebieden met hoge informatie-inhoud op virale infectie.
Discussie
MPRA is een flexibel en krachtig hulpmiddel voor de dissectie van sequentie-activiteitrelaties in genregulatorische elementen. Het succes van MPRA-experimenten hangt af van ten minste drie factoren: 1) zorgvuldige ontwerp van de sequentiebibliotheek, 2) minimalisering van artefacten tijdens amplificatie en klonen, en 3) hoge transfectie-efficiëntie.
De mogelijke lengtes van de variabele regio's in de reporterconstructies worden grotendeels bepaald door de gebruikte synthese- of kloontetechnologie. Standaard OLS is over het algemeen beperkt tot ongeveer 200 nt, maar dit protocol is compatibel met inserts tot minimaal 1.000 nt. Merk op dat variabele regio's die zeer repetitief zijn of sterke secundaire structuren bevatten, mogelijk ondervertegenwoordigd zijn vanwege PCR- en kloonbuiging. De lengte van de tags die elk van de variabele regio's identificeren, moet 10-20 nt zijn en de verzameling tags moet idealiter zodanig worden ontworpen dat er ten minste twee nucleotideverschillen tussen elk paar zijn. Tags die de zaadsequenties bevatten van bekende microRNA of andere factoren die de mRNA-stabiliteit kunnen beïnvloeden, moeten ook zoveel mogelijk worden vermeden.
Een sleutelparameter bij het ontwerpen van MPRA-experimenten is het totale aantal verschillende reporterconstructies dat in de bibliotheek moet worden opgenomen (de ontwerpcomplexiteit, aangeduid met CD). In de praktijk wordt CD beperkt door het aantal gekweekte cellen dat kan worden getransfecteerd. Als vuistregel geldt dat het totale aantal getransfecteerde cellen minstens 50-100 keer groter moet zijn dan CD. Als er bijvoorbeeld 20 miljoen cellen kunnen worden getransfecteerd met een transfectie-efficiëntie van 50%, dan mag CD niet meer zijn dan ~200.000. Merk op dat CD gelijk is aan het aantal verschillende regulatorische sequentievarianten vermenigvuldigd met het aantal verschillende tags per sequentie. Hoe meer verschillende tags aan elke regulatorische sequentie zijn gekoppeld, hoe nauwkeuriger de schatting van de activiteit van die sequentie kan worden gemaakt (omdat metingen van verschillende tags kunnen worden gemiddeld), maar hoe minder verschillende varianten kunnen worden onderzocht in één experiment. De optimale keuze hangt af van het experimentele ontwerp. In een eenvoudig “promoter bashing” experiment, waarbij een wiskundig model zal worden aangepast aan de geaggregeerde metingen, is een enkele tag per variant meestal voldoende. In een screen voor single-nucleotide polymorfismen die veranderingen in regulatorische activiteiten veroorzaken, kan het nodig zijn om 20 of meer tags per allel te gebruiken om statistisch robuuste resultaten te verkrijgen, omdat het vergelijken van elk paar allelen een afzonderlijke hypothesetest vereist.
Als de sequenties die moeten worden onderzocht niet worden verwacht transcriptiestartplaatsen te bevatten, kan ook een constante promotor in hetzelfde fragment worden toegevoegd. Bijvoorbeeld, pMPRAdonor2 (Addgene ID 49353) bevat een minimale TATA-box-promotor die nuttig is wanneer de bovenstroomse variabele regio wordt verwacht aanzienlijke enhanceractiviteit te hebben, terwijl pMPRAdonor3 (Addgene ID 49354) een gemodificeerde, sterke SV40 virale promotor bevat die nuttig is wanneer de variabele regio wordt verwacht silenceractiviteit of andere negatieve regulatorische elementen te bevatten.
Ruwe OLS-producten bevatten vaak een significant deel van afgeknotte oligonucleotiden. Deze kunnen interfereren met nauwkeurige PCR-amplificatie van de ontworpen sequenties, vooral wanneer er significante homologie tussen hen is. Het gebruik van PAGE-zuivering om afgeknotte syntheseproducten te verwijderen en emulsie-PCR om amplificatie-artefacten te minimaliseren, zijn effectieve technieken om een hoge bibliotheekkwaliteit te garanderen. Als een van beide stappen onpraktisch is, is het noodzakelijk om het aantal PCR-cycli dat bij elke amplificatiestap wordt gebruikt, tot een minimum te beperken. Selectie en uitbreiding van de gekloonde bibliotheek in vloeibaar medium is over het algemeen voldoende om de ontwerpcomplexiteit te behouden, maar als recombinatie-gevoelige vectoren worden gebruikt of significant representatiebias wordt waargenomen, kunnen de herstelde cellen in plaats daarvan direct op grote LB-agarplaten worden geplaat, als individuele kolonies worden uitgebreid en vervolgens worden afgeschraapt voor DNA-isolatie. Het is ook belangrijk om rekening te houden met de potentiële impact van synthesefouten, die doorgaans worden gevonden in een verhouding van 1:100-500 in OLS. Volledige sequentiebepaling van de reporterconstructies vóór transfectie wordt aanbevolen om dergelijke fouten te identificeren en te corrigeren.
Het is niet nodig om reporterconstructies in elke cel in de getransfecteerde cultuur te introduceren, maar transfectie-efficiënties onder de ~50% kunnen leiden tot slechte signaal-ruisverhoudingen. Het is raadzaam om de transfectieomstandigheden te optimaliseren voordat MPRA-experimenten in een nieuw celtype worden uitgevoerd. Bij het werken met moeilijk te transfecteren celtypen kunnen MPRA-signalen worden versterkt door getransfecteerde cellen voor te selecteren. De pMPRA-vectorserie bevat varianten die constitutief een afgeknot cellijvlakmarker uitdrukken die kan worden gebruikt om getransfecteerde cellen fysiek te verrijken vóór RNA-isolatie (bijvoorbeeld, Addgene IDs 49350 en 49351).
Openbaarmakingen
De auteurs verklaren dat zij geen concurrerende financiële belangen.
Dankbetuigingen
Dit werk werd ondersteund door de National Human Genome Research Institute van de National Institutes of Health Award onder nummer R01HG006785.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Oligonucleotide library synthesis | Agilent, CustomArray, of andere OLS-leveranciers | custom | Als u de OLS-constructiemethode gebruikt |
| pMPRA1 | Addgene | 49349 | MPRA-plasmide ruggengraat |
| pMPRAdonor1 | Addgene | 49352 | luc2 ORF donor plasmide |
| TE 0,1-buffer (10 mM Tris-HCl, 0,1 mM EDTA, pH 8,0) | Generic | n/a | OLS-buffer |
| Novex TBE-Urea Gels, 10% | Life Technologies | EC6875BOX | PAGE-zuivering van OLS-producten |
| Novex TBA-Urea Sample Buffer | Life Technologies | LC6876 | PAGE-zuivering van OLS-producten |
| SYBR Gold Nucleic Acid Gel Stain | Life Technologies | S-11494 | PAGE-zuivering van OLS-producten |
| Micellula DNA Emulsion & Purification Kit | EURx/CHIMERx | 3600-01 | Bibliotheekversterking door emulsie-PCR |
| Herculase II Fusion DNA Polymerase | Agilent | 600675 | Polymerase voor emulsie-PCR |
| SfiI | New England Biolabs | R0123S | Bibliotheekklonen met pMPRA-vectoren |
| KpnI-HF | New England Biolabs | R3142S | Bibliotheekklonen met pMPRA-vectoren |
| XbaI | New England Biolabs | R0145S | Bibliotheekklonen met pMPRA-vectoren |
| T4 DNA Ligase (2.000.000 eenheden/ml) | New England Biolabs | M0202T | Bibliotheekklonen met pMPRA-vectoren |
| One Shot TOP10 Electrocomp E. coli | Life Technologies | C4040-50 | Bibliotheekklonen met pMPRA-vectoren |
| LB-agar en vloeibaar medium met carbenicilline | Generic | n/a | Groeimedium voor klonen |
| E-Gel EX Gels 1% | Life Technologies | G4010-01 | Bibliotheekverificatie en -zuivering |
| E-Gel EX Gels, 2% | Life Technologies | G4010-02 | Bibliotheekverificatie en -zuivering |
| MinElute Gel Extraction Kit | Qiagen | 28604 | Bibliotheek- en ruggengraatzuivering |
| EndoFree Plasmid Maxi Kit | Qiagen | 12362 | Bibliotheek-DNA-isolatie |
| Celkweekmedium | n/a | n/a | Experimentspecifiek |
| Transfectiereagentia | n/a | n/a | Experimentspecifiek |
| MicroPoly(A)Purist Kit | Life Technologies | AM1919 | mRNA-isolatie |
| TURBO DNA-free Kit | Life Technologies | AM1907 | Verwijdering van plasmide-DNA |
| SuperScript III First-Strand Synthesis System | Life Technologies | 18080-051 | cDNA-synthese |
| PfuUltra II Hotstart PCR Master Mix | Agilent | 600850 | Polymerase voor Tag-Seq PCR |
| Primers (zie tekst) | IDT | custom | PAGE-zuivering van Tag-Seq-primers |
Referenties
- Kinney, J., Murugan, A., Callan, C. G., Cox, E. C. Using deep sequencing to characterize the biophysical mechanism of a transcriptional regulatory sequence. Proceedings of the National Academy of Sciences USA. 107 (20), 9158-9163 (2010).
- Melnikov, A., et al. Systematic dissection and optimization of inducible enhancers in human cells using a massively parallel reporter assay. Nature Biotechnology. 30 (3), 271-277 (2012).
- Patwardhan, R. P., Lee, C., Litvin, O., Young, D. L., Pe’er, D., Shendure, J. High-resolution analysis of DNA regulatory elements by synthetic saturation mutagenesis. Nature Biotechnology. 27 (12), 1173-1175 (2009).
- Patwardhan, R. P., et al. Massively parallel functional dissection of mammalian enhancers in vivo. Nature Biotechnology. 30 (3), 265-270 (2012).
- Arnold, C. D., Gerlach, D., Stelzer, C., Boryń, ŁM., Rath, M., Stark, A. Genome-wide quantitative enhancer activity maps identified by STARR-seq. Science (New York, N. Y.). 339 (6123), 1074-1077 (2013).
- Kheradpour, P., et al. Systematic dissection of regulatory motifs in 2000 predicted human enhancers using a massively parallel reporter assay. Genome Research. 23 (5), 800-811 (2013).
- White, M. A., Myers, C. A., Corbo, J. C., Cohen, B. A. Massively parallel in vivo enhancer assay reveals that highly local features determine the cis -regulatory function of ChIP-seq peaks. Proceedings of the National Academy of Sciences USA. 110 (29), 11952-11957 (2013).
- Mogno, I., Kwasnieski, J. C., Cohen, B. A. Massively parallel synthetic promoter assays reveal the in vivo effects of binding site variants. Genome Research. 23 (11), 1908-1915 (2013).
- Schütze, T., et al. A streamlined protocol for emulsion polymerase chain reaction and subsequent purification. Analytical Biochemistry. 410 (1), 155-157 (2011).
- Panne, D., Maniatis, T., Harrison, S. C. An atomic model of the interferon-beta enhanceosome. Cell. 129 (6), 1111-1123 (2007).
Herprints en machtigingen
Erratum
Formal Correction: Erratum: Massively Parallel Reporter Assays in Cultured Mammalian Cells
Posted by JoVE Editors on 3/01/2015. Citeable Link.
null
