In hartspiercellen vormen tubulaire membraanstructuren intracellulaire netwerken. We beschrijven geoptimaliseerde protocollen voor i) isolatie van myocyten uit muizenhart inclusief kwaliteitscontrole, ii) live celkleuring voor state-of-the-art fluorescentiemicroscopie, en iii) directe beeldanalyse om de componentcomplexiteit en de plasticiteit van intracellulaire membraannetwerken te kwantificeren.
Methodenartikel
Analyse van buisvormig membraan Netwerken in hartspiercellen van boezems en kamers
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
In hartmyocyten bestuurt een complex netwerk van membraanbuizen - het transversaal-axiale tubulussysteem (TATS) - diepe intracellulaire signaalfuncties. Hoewel het buitenoppervlak van het membraan en de bijbehorende TATS-membraancomponenten continu lijken te zijn, zijn er aanzienlijke verschillen in lipide- en eiwitgehalte. In ventriculaire myocyten (VM's) zijn bepaalde TATS-componenten zeer overvloedig en dragen ze bij aan rechtlijnige tubulusnetwerken en regelmatige vertakkingen van 3D-architecturen. Er wordt aangenomen dat perifere TATS-componenten actiepotentialen voortplanten van het celoppervlak naar duizenden verre intracellulaire sarco-endoplasmatisch reticulum (SER) membraancontactdomeinen, waardoor intracellulaire Ca2+-afgifte-eenheden (CRU's) worden geactiveerd. In tegenstelling tot VM's is de organisatie en functionele rol van TATS-membranen in atriale myocyten (AM's) aanzienlijk anders en veel minder begrepen. Samengevat is kwantitatieve structurele karakterisering van TATS-membraannetwerken in gezonde en zieke myocyten een essentiële voorwaarde voor een beter begrip van functionele plasticiteit en pathofysiologische herorganisatie. Hier presenteren we een strategische combinatie van protocollen voor directe kwantitatieve analyse van TATS-membraannetwerken in levende VM's en AM's. Hiervoor begeleiden we primaire celisolaties van muis VM's en/of AM's met kritieke kwaliteitscontrolestappen en directe membraansteekproeven voor fluorescentiebeeldvorming van TATS-membranen. Met behulp van een geoptimaliseerd werkstroom voor confocale of superresolutie TATS-beeldverwerking, worden gebinariseerde en geskeletoniseerde gegevens gegenereerd voor kwantitatieve analyse van het TATS-netwerk en zijn componenten. In tegenstelling tot eerder gepubliceerde indirecte regionale aggregate beeldanalysestrategieën, maken onze protocollen directe karakterisering van specifieke componenten mogelijk en leiden ze complexe fysiologische eigenschappen van TATS-membraannetwerken in levende myocyten af met hoog doorvoer en open access softwaretools. Samenvattend kan de gecombineerde protocolstrategie gemakkelijk worden toegepast voor kwantitatieve TATS-netwerkstudies tijdens fysiologische myocytaanpassing of ziekteveranderingen, vergelijking van verschillende cardiale of spierceltypen, fenotypering van transgene modellen en farmacologische of therapeutische interventies.
Inleiding
In gezonde dwarsgestreepte spiercellen, buisvormige membraan structuur met "dwars" oriëntaties (T-tubuli) loodrecht op de hoofdleiding cel as zijn overvloedig. Dientengevolge hebben T-tubuli gekenmerkt als continue uitbreidingen van de spiercel main "lateraal" oppervlak membraan (sarcolemma), die diep doordringen in de cytosol naar het celcentrum. De fysiologische rol van T-tubuli continu met het buitenoppervlak membraan snelle elektrische koppeling van externe intracellulaire compartimenten gevormd door SER organel contact domeinen gehele relatief grote hartspiercel volume nanometrische nabijheid koppeling van voltage-geactiveerde L-Ca2 + kanalen (Cav1.2) naar binnen (I Ca) activeren van aangrenzende ryanodinereceptor (RyR2) SER Ca 2 + releases. In hartspiercellen (VM's), de niet-continue membraan contacten ("knooppunten") tussen de junctionele SER domeinen en T-tubules wordt gedacht dat duizenden individuele intracellulaire Ca2 + afgifte nanodomains controle in elke cel 1.
Voor elk contact domein, de naast elkaar geplaatste gedeelten membraan elk van de T-tubuli en perifere (junction) SER ongeveer 15 nm dicht bij elkaar, dus gedefinieerd als nanodomain. Daarbij worden zeer kleine individuele cytoplasma deelruimten gescheiden die quasi-cel-autonome compartiment gedrag mogelijk te maken. Bij een inkomende actiepotentiaal activeert Cav1.2 kanalen in de T-tubuli van VM's, een relatief kleine Ca 2 + naar binnen lopende zal snel toenemen de deelruimte Ca 2 +-concentratie [Ca 2 +] S in de attoliter formaat nanodomain 1. Vervolgens wordt de [Ca 2 +] S toename activeert Ca 2 + -Gated ryanodine receptoren (RyR2) binnen nanometer nabijheid in het naast elkaar SER membraan knooppunt, en deze koppeling proces gebeurt in alle elektrisch paard myocyte nanodomains. RyR2s voorkomen als dichte multikanaals clusters voor een stoïchiometrie van 1 Cav1.2 kanaal 5-10 RyR2 kanalen 2. Aangezien de SER naar cytosol [Ca2 +] gradiënt zeer steil (10 verhouding 4: 1) en RyR2s gefunctioneerd als high-geleiding Ca2 + afgifte kanalen functioneel gekoppelde clusters, RyR2 activatie resulteert in een kwantitatief grote Ca2 + los stroom van T-tubulus gekoppeld junctional SER domeinen toenemende lokale deelruimte [Ca 2 +] S tot 100 uM of hoger binnen 1-2 msec 3,4. Dit cardiale signaal amplificatie gedrag wordt ook wel Ca2 + geïnduceerde Ca2 + afgifte (CICR). Samen genomen, de T-tubuli zijn essentieel membraan structuur die snel activeren Ca 2 + vrijlating signalen via junctional nanodomain SER contacten en cel-breed CKP tijdens excitatie-contractie (EC) koppeling.
Naast T-tubuli axiaal buisjes (A-tubules) met een significant verschillende oriëntatie parallel aan de hoofd (langs) as cellen werden gedocumenteerd door elektronenmicroscopie (EM), confocale en 2-foton microscopie studies. Bijvoorbeeld, een cel gehele continue rooster van A-tubules tussen myofibrils verbonden met T-tubuli dichtbij sarcomeer Z-lijnen werd getoond door extracellulaire tracers en EM beeldvorming van vaste cavia VM 5. Met behulp van extracellulaire-dextran gekoppeld fluoresceïneverkleuring en live 2-foton beeldvorming van rat VM's, werd een complex reticular 3D tubulus netwerk gevisualiseerd bestaande uit ~ 60% T-tubuli en ~ 40% A-buisjes 6. Deze studie niet alleen geleid tot 3D visualisatie van overvloedige A-tubules, maar ook tot het besef dat snijden voor EM visualisatie is inherent beperkt de analyse van complexe en dynamische membraan netwerken zoals de dwarse coaxiale tubulus systeem (TATS). Bijgevolg confocale live cell imaging van TATS membranen direct gekleurd met di-8-ANNEPS werd ontwikkeld. Als levende cellenTATS netwerken worden geanalyseerd door Fourier transformatie, wordt de regelmatige verschijning van T-tubulus componenten in de ruimte in de buurt van sarcomeer Z-lijnen weerspiegeld door het ensemble vermogensspectrum van een regio van dwarsgestreepte signalen 7. Deze indirecte analyse strategie werd gebruikt om cel-grote regionale veranderingen in TATS component regelmatigheid detecteren ziektemodellen 7. Zo shRNA gemedieerde junctophilin-2 afbraakprijzen veroorzaakt hartfalen en de isovorm specifiek eiwit tekort resulteerde in T-tubulus reorganisatie met nanodomain Ca 2 + vrijlating dysfunctie 8. We hebben onlangs uitgebreid de analyse van TATS membraan netwerken door middel van directe kwantitatieve benaderingen en verder door levende cellen superresolutiemicroscopie van individuele TATS componenten in de muis VM's met behulp van gestimuleerde emissie uitputting (STED) nanoscopie 9. Nanometrische beeldresolutie toegestaan voor een directe analyse van kleinere individuele TATS componenten, die een 50:50 verdeling van transversale benaderingversus axiale tubulus oriëntaties, kwantitatief bevestigen twee overvloedige nog verschillend georiënteerde individuele TATS componenten in gezonde muizen harten 9. Deze strategieën zullen verder worden beschreven in de rubriek onderstaande protocol.
Terwijl de fysiologische rol van de overvloedige A-tubulus componenten in het volwassen hart raadselachtig is gebleven, hebben EM studies SER membraan structuren geassocieerd met A-buisjes suggereert endogene Ca 2 + vrijlating nanodomains in cavia en rat VMs 5,10 gedocumenteerd. Confocale analyse van Cav1.2 en RyR2 vond een hoge colocalization op A-tubulus kruispunten 10. Aangezien ~ 20% spontane Ca2 + vonken in rat VM ontstaan relatief ver van Z-lijn strepen waarbij T-tubuli typisch voorkomen, is een argument is dat A-tubulus geassocieerde nanodomains inderdaad bestaan en functioneren als Ca 2 + versieplaatsen 11,12. Interessant is dat T-tubulus vorming en rijping occurs pas na de geboorte en loopt parallel met de groei van cardiale cellen, bijvoorbeeld door het kiemen van voorloper sarcolemmale invaginations op P5 en onvolwassen vertakt TATS netwerk samenstellingen bij een P10 bij muizen 13. Het blijkt dat Junctophilin-2 is bijzonder belangrijk voor postnatale maturatie TATS netwerk aangezien shRNA neerhalen verhinderde de verankering van T-tubuli membranen SER knooppunten leidt tot vertraagde Ca2 + afgifte en pathologische TATS organisatie overeenstemming met onrijpe A-tubulus gedomineerd architecturen VM 13. Deze waarnemingen kunnen uiteindelijk leiden tot proof-of-concept dat T-buisjes te vormen door middel van membraan invaginatie processen, terwijl A-buisjes kan morph door aanvullende of zelfs alternatieve intracellulaire mechanismen 14.
Karakterisering van TATS membraan veranderingen in hart-en vaatziekten is uitgegroeid tot een belangrijk onderzoeksgebied voor pathofysiologische vragen. De eerste berichten in een hond model van pacing-geïnduceerde hart failure toonde een verlies van T-tubuli en Cav1.2 (I Ca) 15. Een varken van ischemische cardiomyopathie vertoonden verminderde T-tubulus dichtheden en een verminderd synchronie van intracellulaire Ca 2 + los 16. Met behulp van een spontaan hypertensieve rat (SHR) van hartfalen, een verlies van T-tubuli werd geassocieerd met een verminderde nanodomain koppeling van Cav1.2 en RyR2 door het voorgestelde mechanisme van "RyR2 orphaning" 7. Een verlies van T-tubuli is ook aangetoond in humane VM ischemische, verwijde, en hypertrofische cardiomyopathie monsters 17. Bovendien, een toename A-buisjes werd gerapporteerd in weefselcoupes van menselijke gedilateerde cardiomyopathie 18. Na een myocardinfarct, toonden we een differentiële mechanisme van TATS reorganisatie in muis VM's met een significante afname van de T-tubuli in tegenstelling tot een toename van de A-tubulus onderdelen 9. Belangrijker nog, verbeterde lokale membraan contrast bereikt door levende cellen superreoplossing STED microscopie ingeschakeld gedetailleerde kwantitatieve elementanalyse door directe metingen, die aanzienlijke proliferatie van de A-tubuli met de algemene toename van de TATS netlengte en vertakking complexiteit 9 is. Bovendien werd aangetoond dat de training mag de T-tubulus remodeling in ratten te keren na een hartinfarct 19 en dat cardiale resynchronisatietherapie kan leiden tot een herinrichting van de T-tubuli te keren bij honden met atriale tachypacing geïnduceerd hartfalen 20. Samen genomen, zullen studies zowel in de zieke mens en dier VMs alsook mogelijke therapeutische interventies misschien wel profiteren van hoge kwaliteit celisolatie procedures en gedetailleerde kwantitatieve analyse strategieën zoals beschreven in het protocol en de resultaten hieronder secties.
Zoals onlangs aangetoond door mantelvlak versus TATS membraantransport van KATP kanaal isovormen 21, is het belangrijk om atriale m overwegenyocytes (AMS) als biologisch te onderscheiden, alsmede vergelijkende cardiale cel model versus VM's. T-buisjes werden onlangs gedocumenteerd bij schapen en menselijke AMs 22. Huidige gegevens wijzen erop dat enkele T-tubuli bestaan in AM cellen en meestal in grotere zoogdieren als schapen en mensen, maar niet in de kleine knaagdieren 23. In tegenstelling tot VM, in AMs intracellulaire Ca2 + afgifte blijkt plaats te vinden van het celoppervlak teeltmateriaal door diffusie naar het celcentrum waardoor aangegeven ruimtelijke en temporele Ca2 + gradiënten 23. In dit kader lijkt het van belang om de mechanismen van intracellulaire Ca 2 + signalering instabiliteit voor veel voorkomende ziekte vormen verhelderen zoals atriumfibrilleren 24. Samengevat, zijn zowel AM VM celisolatie en elk voor gezonde en zieke harten algemeen gebruikt protocollen. Alleen als celisolatie goed uitgevoerd zoals beoordeeld door microscopische documentatie voldoende cel kwaliteit, moet AM en VM monsters ca zijnrried voorwaarts voor kwantitatieve TATS analyse. Bijgevolg is de volgende protocol secties sterk afhankelijk zijn van hoge kwaliteit mobiele isolaten van muis of andere soorten, gevolgd door live-cell microscopie intact TATS membranen te analyseren. Zoals reeds eerder op gewezen, karakterisering van TATS membranen is een uitdagend onderzoeksgebied met een neiging tot fixatie en voorbereiding artefacten 6, membraan veranderingen als gevolg van osmotische veranderingen, en resolutie beperkingen van conventionele lichtmicroscopie 9. We merken op dat de recente state-of-the-art-protocollen voor de isolatie van de mens AMs voor Ca 2 + imaging en patch-clamp en rat VMs voor celkweek zijn eerder gepubliceerd in dit tijdschrift 25,26.
Protocol
OPMERKING: Alle dierlijke procedures werden beoordeeld en door de Institutional Animal Care en gebruik Comite van het Universitair Medisch Centrum Göttingen goedgekeurd in overeenstemming met de humane zorg en het gebruik van proefdieren.
1 Isolatie van atriale en ventriculaire Myocyten van de Muis van het Hart
- Handvat dieren zo voorzichtig mogelijk en volgens de goedgekeurde protocollen om stress te minimaliseren in het algemeen en in het bijzonder om potentiële krachtige onbedoelde effecten van neuro-hormonale excessen op geïsoleerde cardiale cellen voorkomen. Bovendien injecteren elke muis met heparine (500 IU / kg lichaamsgewicht sc) ten minste 20 min voor hart winning tot bloedstolling en micro emboli die aanzienlijk kunnen compromitteren de opbrengst en integriteit van hartcellen tijdens isolatie te voorkomen.
- Verdoven muizen 12 weken of ouder door isofluraan inademing jaar, bevestigen afwezigheid van pijn terugtrekking reflexen, en euthanaseren dieren door cervicale dislocatie.
- Pak het hart snel na eerder vastgestelde deskundige protocollen (bijvoorbeeld, zie Kaestner et al. 26 en Louch et al. 27). Vermijd onbedoelde schade aan de boezems door onnodige knijpen of uit te rekken.
- Zorgvuldig behouden het weefsel van de proximale aorta ascendens met een paar pincetten stomp en rechte schaar om een doorlopende transversale snijrand via aorta vaatwand, wat belangrijk is voor succesvolle infusen en perfusie van het hart vast.
- Breng het uitgesneden hart onmiddellijk in ijskoude Ca2 +-vrije nominaal perfusiebuffer (oplossingen zie tabel 1). De grote vaten geklemd tijdens de overdracht via de lucht in de buffer te houden om onbedoelde luchtembolie te voorkomen totdat het hart volledig is ondergedompeld. Gebruik BDM in de buffer en ijsgekoelde oplossing cardiale contractie te remmen.
- Gebruik een verrekijker zoom microscoop met voldoende 3D Illumnatie.
- Canule de aorta onder panoramische StereoVision van het hart met een glad, gepolijst oppervlak 21 G canule (buitendiameter 0,81 mm, voor een normale muis hart gewicht) die volledig moeten worden ingevuld met buffer. Zorg ervoor dat er geen luchtbellen in de canule door een proximale oplossing reservoir (bijvoorbeeld een injectiespuit) verbinden door middel van een 2-weg Luer klep om snelle oplossing flow control.
- Bevestigen onder verrekijker vergroting dat de canule correct is geplaatst in de aorta, dat is ongeveer 1 mm boven de aortaklep en coronaire takken. Absoluut te vermijden elke passage door of onbedoelde perforatie van de aortaklep met de canule (dit zal permanent aorta klep sluiting verstoren en daardoor verstoren cardiale perfusie).
- Bind de aorta zachtjes maat omtreksrichting gerichte anti-slip groeven nabij het uiteinde van de canule met twee zijden hechtdraden. Niet spoelen van de coronaire arteries krachtig op elk punt. Sluit de oplossing gevuld canule gebonden aan de aorta en het hart van een goed sluitend uitstroom connector van een op maat gemaakte en vooraf gekalibreerd perfusiesysteem, aka de gewijzigde Langendorff setup (hetzij met behulp van constante druk of constant debiet, zie ook bespreking hieronder).
- Perfuseren het hart zo spoedig mogelijk 4 min met zuurstof perfusie buffer bij 37 ° C (termijn perfusiesnelheid: 4 ml / min). Start de digestie door het schakelen van de perfusie met collagenase digestie buffer (600 U / ml collagenase type II) gedurende 8-10 minuten bij 37 ° C. Bewaken van de voortgang van het weefsel spijsvertering door te bevestigen soortgelijke veranderingen weefsel waaronder toenemende ondoorzichtigheid, zachtheid en slapheid in het hele zichtbare hart oppervlak.
- Ontleden de hartkamers indien nodig na digestie. Plaats de gecannuleerd hart onder een binoculair microscoop en visualiseren de achterste hartwand. Ontleden resterende niet-hartweefsel bijvoorbeeld een longnd delen verblijf verontreiniging cel in de digestiebuffer middels micro schaar voorkomen (bijvoorbeeld spring schaar met 8 mm rechte bladen) zoals getoond in figuur 1.
- Volg een checklist die bijzonder kamers, gebieden en / of cellen van de collagenase digestie hart worden geoogst (figuur 1): linker en / of rechter atrium, vrij linker en / of rechter ventrikel wand, en / of ventriculaire septum.
- Voor dissectie specifieke hartweefsel, in een relatief breed en vlak dissectie bad bekleed met een enkele mm dikke silicone elastomeer. Bevestig de apex van het hart met een fijne insect stalen pin onderaan elastomeerlaag.
- Afleiden rechts hartoor en ontleden het rechter atrium boven de atrioventriculaire kleppen. Ga door de dissectie met het linker atrium. Ontleden en de vezelachtige klep apparaat weggooien. Tot slot, ontleden het links en rechts vrij ventriculaire wanden en het septum en / of kleineer weefsel zonodig onderdelen.
- Opmerking alleen voor stagiairs: naar de praktijk te krijgen, te beginnen met de niet-verteerde muis harten. Voor het gemak van anatomische oriëntatie, oefenen de tissue handling inclusief alle opeenvolgende dissectie stappen onder binoculair zicht, zoals weergegeven in figuur 1. Zodra de 3D anatomie, manueel hanteren onder de binoculair zicht, en dissectie stappen zijn voldoende vertrouwd, ga verder met de collagenase verteerde muis harten als hierboven beschreven.
- Voor ventriculaire myocyte (VM) celisolatie: breng het ventriculaire weefsel in 2,5 ml vers spijsvertering buffer. Indien gelijktijdige cel isolaties uit verschillende organen, bijv, atria en ventrikels wordt geprobeerd kan een tweede persoon via een been van de cel dissociatie procedure nemen zowel te minimaliseren en een optimaal gebruik van muizen door gecoördineerde hanteren van meerdere hartweefsel. Ga door met stap 1.9.1-1.9.4, daarna 1.10.
- Ontleden ofwel de gehele ventriculaire weefselof specifieke delen daarvan (bijvoorbeeld LV, RV, vrij wanden en / of septum) in bij benadering 1 mm 3 stuks in 2,5 ml digestiebuffer met scherpe schaar (bijvoorbeeld spring schaar met 8 mm rechte bladen) in een 60 mm petrischaal .
- Zachtjes distantiëren VMs in celsuspensie door langzame wrijven van het weefsel stukken met een transfer pipet. Vermijd luchtbellen in celsuspensie.
- Voeg 8 ml stopbuffer de VM celsuspensie en breng de celsuspensie in een 15 ml conische buis. Laat het restmateriaal stukken bezinken op de bodem gedurende ongeveer 15 seconden, maar kort genoeg om geïsoleerde cellen in suspensie blijven. Vervolgens oogsten de VM schorsing via overdracht van het volume supernatant naar een nieuwe buis van 15 ml. Als er te veel weefsel stukken aanwezig zijn, gebruik als alternatief een minimaal 200 urn afstand nylon mesh om het weefsel stukken scheiden van de celsuspensie.
- Laat de VM celsuspensie naar de bodem van een 15 ml cosche buis door de zwaartekracht gedurende 8 minuten.
- Wasstap: verwijder het supernatant en voorzichtig resuspendeer de resterende VM pellet in 10 ml perfusiebuffer. Herhaal wasstap 1.9.5 (optioneel: voeg extra wasbeurt stappen om geleidelijk verhogen van de Ca 2 +-concentratie als nodig).
- Resuspendeer de vaste VM pellet in 10 ml perfusie buffer en de resterende celsuspensie volume in 1,5 ml microcentrifugebuizen (ongeveer 50.000 VM cellen per buis) te verdelen.
- Voor atriale myocyte (AM) celisolatie: breng het verteerd / ontleed atriale weefsel in 1 ml vers spijsvertering buffer.
- Snijd het gedeeltelijk verteerde atriale weefsel in ongeveer 1 mm 3 stuks in 1 ml spijsvertering buffer met behulp van micro schaar in een kleine petrischaal (bv 60 mm diameter). Zachtjes distantiëren AM cellen uit de verteerde weefsel stukjes in celsuspensie met wrijven met een 1 ml plastic pipet met een cut tip om schadelijke fluïdumstralen voorkomen. Tijdensaanwrijven strikt voorkomen dat luchtbellen in celsuspensie. Na mechanisch roeren, voeg 4 ml stop buffer (50 uM CaCl2; 10% BCS) om alle resterende collagenase activiteit in celsuspensie arresteren.
- Breng de AM celsuspensie in een 15 ml conische buis. Laat het restmateriaal stukken bezinken op de bodem gedurende ongeveer 15 seconden, maar kort genoeg om de geïsoleerde cellen in suspensie blijven. Oogst volume supernatant dat de vrije AM cellen via oplossing overplaatsing naar een 15 ml buis.
- Centrifugeer de AM celsuspensie, bijvoorbeeld, 2 min bij 20 xg bij kamertemperatuur of - bij voorkeur voor membraan studies - laat de cellen tot rust komen langzaam door de zwaartekracht gedurende 20 minuten in een 15 ml conische buis.
- Wasstap: de bovenstaande vloeistof en voorzichtig resuspendeer de pellet in AM 5 ml perfusiebuffer. Herhaal 1.10.4.
- Hersuspenderen AM cellen zachtjes in 5 ml perfusie buffer. Verdeel de celsuspensie volume in 1,5 ml microcentrifuge tubes (ongeveer 1000 AM cellen per buis).
- Te analyseren en documenteren van de geïsoleerde kwaliteit mobiele populatie voor elk hart, waaronder de celopbrengst behulp trypaanblauw vlekken.
- Hiervoor verdun 500 ui van de celsuspensie met 1: 1 vol / vol met trypan blauwe oplossing (eindconcentratie 0,02%) met 1 ml Uiterste pipetpunten. Meng de cellen en de trypan blauwe licht door zeer langzaam op / neer pipetteren. Breng onmiddellijk de trypan blauwe celsuspensie met een Neubauer type cytometer verbeterd en tel de intacte myocyten behulp van een omgekeerde microscoop.
- Uitsluiten alle cellen met zichtbare schade membraan blebs, onderbroken strepen, contracturen en cellen accumuleren intracellulaire trypan blauw (figuur 2). Ook uitsluiten spontaan samentrekkende cellen, die gevoelig zijn voor de daaropvolgende celdood zijn. Om de telling van intacte cellen in suspensie te beoordelen, alleen gebruiken hartspiercellen met regelmatige strepen die hele trypaanblauw sluitenhet celvolume.
- Oordelen over de integriteit van individuele atriale en ventriculaire myocytes door doorgelaten licht microscopie. Afbeelding opslaan de heldere veld als een TIF-bestand voor de documentatie en verdere analyse.
- Gebruik de volgende criteria voor de analyse van cardiale celintegriteit:
- bevestigen de aanwezigheid van regelmatige strepen over het gehele zichtbare cel volume;
- bevestigen de voortdurende integriteit van het mantelvlak membraan aan beide zijden cel parallel aan de myofilamenten;
- visualiseren scherpe vertanding bij de ingelaste schijven aan beide zijden cel die de integriteit van de specifieke oppervlakte membraan structuur weer te geven; en
- visualiseren de fluorescerende signalen van TATS membranen (of immunolabeled caveolin-3-eiwit of een ander membraan markers) zoals beschreven in hoofdstuk 3 voor lokalisatie correlatie naast de onderliggende cel-specifieke helder beeldveld morfologie (bijvoorbeeld, combineer beide beelden met ImageJ als overlay verbinding IMAGe).
- Bepaal de sarcomeer lengte van de helderveld beelden. Voor gemiddelde sarcomeer lengte, meet de afstand van elkaar uitgelijnd sarcomeer strepen, en verdeel de afstand door het aantal sarcomeren. Meet minstens twee locaties per cel. Voer de analyse uit met commerciële software of offline met ImageJ.
OPMERKING: Als behandeld met ontkoppeling agenten, intact ontspannen VM uit muis hart tonen een gemiddelde sarcomeer lengte van ~ 1,9 micrometer 28.
- Gebruik de volgende criteria voor de analyse van cardiale celintegriteit:
- Kwantificeren van de morfologie en de afmetingen van de individuele atriale en hartspiercellen van de verzonden afbeelding lichtmicroscopie. Bedenk dat AM en VM cellen aanzienlijk verschillen in grootte. Meet de cel lengte, breedte, en het gebied, en het berekenen van de lengte: breedte verhouding.
- Analyseer de 2D cel afmetingen van het doorgelaten licht afbeelding in ImageJ met de opdrachten polygoon selectietool en toe te voegen aan ROI manager, analoog aan Figuur 3. Indien morfologische cijzigingen worden verwacht binnen specifieke studie contexten ander document voor alle cellen de specifieke muizenstam, leeftijd, geslacht, hartgrootte en eventuele maatregelen voor daaropvolgende data classificatie.
2 Kleuring van TATS Membranen in Living atriale en ventriculaire Myocyten
- Laad de beeldvorming kamer (bijvoorbeeld POC-R2) met een 42 mm glas dekglaasje. Voor stabiele myocyten bevestiging aan het dekglaasje bereiden 20 ul van laminine oplossing 1:10 verdunning van de laminine voorraad in fysiologische perfusie buffer (eindconcentratie 0,2 mg / ml). Spreid 20 ul van de laminine oplossing gelijkmatig over de glazen dekglaasje.
- Bereid 800 pi van een 50 pM di-8-ANEPPS oplossing perfusiebuffer. Hiervoor Verdun 20 ui 2 mM di-8-ANEPPS voorraadoplossing in 780 gl fysiologische buffer.
- VM's vlekken, laat de cellen af te wikkelen door de zwaartekracht gedurende 8 min in een 1,5 ml reageerbuis. AMS vlek, ofwel gebruik maken van de zwaartekracht sedimentatie of spin de celsuspensie gedurende 2 min (zie 1.10.3). Voor beide amendementen en VM's, verwijder voorzichtig de bovenstaande vloeistof, terwijl het vermijden van onnodige onrust van de cel pellet en voorzichtig resuspendeer de cel pellet in 800 ul van di-8-ANEPPS bevattende oplossing (50 uM). Onmiddellijk over te dragen van de di-8-ANEPPS / myocyt ophanging op de-laminin gecoate dekglaasje in de beeldvorming kamer.
- Vlekken op de VM suspensie voor 15 min bij kamertemperatuur in het donker.
- Verwijder langzaam overtollige volume via de opwaartse vloeistof meniscus aan de zijkanten van de beeldvorming kamer met een manuele pipet. Bevestigen dat de meerderheid van de di-8-ANEPPS gekleurd myocytes stevig blijft verbonden aan de-laminin gecoate dekglaasje en niet worden blootgesteld aan lucht. Vervolgens was de bijgevoegde myocyten suspensie eenmaal door langzaam toevoegen van 1 ml van perfusie buffer gevolgd door het verwijderen van overtollige vloeistof met inbegrip van niet-hechtende cellen.
- Overlay voorzichtig bevlekt en oppervlak bevestigd myocyten met 1 ml perfusiebuffer langzaam van de kant van thij beeldvorming kamer. Plaats de beeldvorming kamer op de microscoop podium.
3 Beeldvorming van TATS Membraanstructuren in Living atriale en ventriculaire Myocyten
- In het algemeen, kies zorgvuldig de best mogelijke fluorescentiemicroscoop optie (s) beschikbaar voor TATS membraan beeldvorming. Voor confocale beeldvorming, overweeg recente generatie, moderne fluorescentie microscopen met geoptimaliseerde PMT serie detectoren en foton recycling routes die fluorescerende intensiteit van het signaal te maximaliseren. Voor confocale beeldvorming van kleinere details van TATS membraanstructuren gebruik een objectief 63X 1,4 NA olie of - afhankelijk van de beschikbaarheid - gebruik een STED superresolutie microscoop voor kleinste TATS informatie zoals beoordeeld voor myocyt- specifieke toepassingen door Kohl et al 34 Voor algemene beginselen van het hoog. resolutie fluorescentie microscopie, verwezen naar de paragraaf discussie.
- Stel de imaging parameters op te sporen de meeste, idealiter alle di-8-ANEPPS gekleurd intracellulaire membranen in een bepaalde myocyte beeldvlak. Gebruik de volgende parameters als uitgangspunt voor confocale laser scanning microscopie: excitatie 458 nm bv bij 3% van de maximale laservermogen; detecteert het uitgezonden signaal tussen 550 nm en 740 nm; detector te krijgen (bijvoorbeeld, meester commando 800); en pinhole 1 AU voor een optische schijfje dikte van 900 nm. Pas deze parameters de signaal-ruis te optimaliseren.
- Gebruik helderveld mode om een intacte AM of VM cel geval (figuren 4A en 4B) selecteren. Zie punt 1.12 van relevante criteria hoe celintegriteit oordelen aan cellen te selecteren als samengevat: cel-brede regelmatige strepen en gelijke sarcomeer afstand, scherpe oppervlak randen en ribbels aan alle vier zijden cel, continue integriteit van de laterale oppervlak membraan, en de afwezigheid van elk membraan blaasjes.
- Neem een monster beeld van een centrale intracellulaire myocyte sectie. Aan te passen de ROI gebruik van de "oogst" functie →, Passen het gewas venster → de uiteindelijke pixelgrootte meet 100 nm x 100 nm. Stel de x-as van het gewas venster te corresponderen met de grote (axiaal / lengte-as) van de myocyten.
- Selecteer de uiteindelijke beeldvlak. Gebruik enkele beeldframes de juiste beeldvlak handmatig in de z-richting. Bevestigen dat de TATS membranen, waaronder T-tubulus en A-tubulus componenten, wel duidelijk zichtbaar in het brandvlak. Merk op dat een typische intracellulaire beeldvlak een kern als intracellulaire referentiepunt omvatten. Zie de voorbeelden in figuren 4A en 4B.
Opmerking: In het algemeen houden cel blootstelling aan laserlicht zo kort mogelijk. Indien mogelijk, gebruik maken van enkele foto frames om de optimale focal plane bepalen in hartspiercellen. - Stel de pixel verblijftijd ongeveer 0,5 usec. Selecteer 16x middeling en neem het beeld op als momentopname. Herhaal het beeld snapshot stap naar de juiste beeldvlak een vasts geschetste TATS membraanconstructies in 3.5 als nodig.
- Sla het uiteindelijke beeld en bevestigen dat het bestand in de doelmap werd gered. In het algemeen, slaat u alle beeldbestanden in hetzelfde formaat (bv LSM) voor een uniforme toepassing van analyse software. Voorafgaand aan een beeldanalyse, bevestigen nogmaals voldoende celintegriteit off-line (overwegen vermeld onder stap 1.12.1 criteria) en exclusief eventuele beschadigde cellen uit de analyse. Zie de voorbeelden in figuren 4C en 4D.
4 Analyse van de TATS Membraan netwerk en zijn componenten
De volgende beeldverwerking stappen voor een directe analyse van TATS membraan componenten worden samengevat als top-down workflow diagram in de figuren 5A en 5B.
- Open het beeld van een di-8-ANEPPS gekleurd myocyt in Fiji (http://fiji.sc/), een vrij beschikbare variant van ImageJ die analyse plugins essentieel voor bevatbeeldverwerking. Voor verdere informatie verwijzen wij u naar Schindelin et al 29.
- Sla de afbeelding op → Bestand → Opslaan als → Tif.
- Om de TATS membraan componenten analyseren, selecteert u de juiste ROI exclusief de buitenkant membraan signaal, gebruik dan de "polygon selection" tool om de ROI grens met uitzondering van het buitenste oppervlak membraan (sarcolemma) en met inbegrip van de intracellulaire gedeelten van TATS membranen af te bakenen, zoals weergegeven in Figuur 5A (ROI). Voeg de geselecteerde ROI aan de "ROI Manager" door het toepassen van Analyze → Extra → ROI Manager.
- Om een specifieke ROI voor de oriëntatie analyse van TATS componenten selecteren, plaatst u de belangrijkste longitudinale cel-as en de x-as parallel. Als de cel is licht gebogen, selecteer meerdere ROI's en lijn elke ROI individueel. Sluiten alle kernen van de analyse. Uitsluiten geen overmatig gebogen cellen uit de analyse, omdat nauwkeurige uitlijning van ROis zal steeds moeilijker worden en het verhogen van oriëntatie fouten tijdens de analyse.
- Verwijder alle ongewenste signaal informatie uit het buitenste oppervlak membraan: Bewerken → Wis Buiten aan de "geselecteerde ROI" (figuur 5A) te genereren. Zorg ervoor dat het geselecteerde ROI bevat alleen de intracellulaire membraan delen, die overeenkomen met de TATS netwerk.
- Voer de volgende keten van beeldverwerking stappen (commando's) voor de daaropvolgende kwantitatieve analyse zoals beschreven in figuur 5A.
- Klik op → Proces → Aftrekken Achtergrond. Stel de Rolling bal straal tot 5 pixels.
OPMERKING: Stel de rollende bal straal tot 5 pixels als het beeld te analyseren heeft een pixelgrootte van 100 nm x 100 nm. Voor andere pixelgroottes stellen de rollende bal radius het aantal pixels die ongeveer overeenkomt met een fysieke straal van 500 nm. - Klik op → Proces → Verbeter Local Contrast (ClahE). Stel de blokgrootte tot 49, het histogram bakken tot 256, de maximale helling naar 3, en het masker op "none".
- Klik op → Proces → Smooth.
- Klik op → Plugins → Segmentatie → Statistische Gewest samenvoegen. Stel de parameters voor Q100 → klik op Toon Gemiddelden.
- Bevestig volledige verwerking van de statistische regio fusie aangaan aangegeven met automatische presentatie van een nieuw image frame en bevestigen dat het label "SRM Q = 100" verschijnt. Ga verder met de volgende stappen met dit beeldbestand. Klik op → Beeld → Type → 8-bit.
- Klik op → Afbeelding → Aanpassen → Drempel. Kies de drempel laag genoeg om de meeste sporen, idealiter alle TATS structuren, vermijdt in het bijzonder de uitsluiting van TATS componenten met een lage signaal intensiteit (gebruik een drempel van 40 als uitgangspunt). Raadpleeg de "Representatieve resultaten" sectie voor gedetailleerde data-uitgang en de voorbeelden in figuur 6(Bovenste drempel van 255). Documenteer de uiteindelijke keuze van de drempel parameters. Merk op dat de juiste keuze van de drempel alleen specifieke TATS membraanstructuren vals positieve signalen als gevolg van achtergrondgeluiden mag produceren, maar niet.
- Bevestig correct superpositie van TATS beelddetails versus geëxtraheerd skelet gegevens, met name voor gemiddelde en hoge fluorescentie signaalniveaus, waarbij de (display) continuïteit van de skeletstructuur overeenkomen. Zodra een passende drempel is vastgesteld, gelden dezelfde drempel om alle beelden tijdens de analyse en herhaal de overlay vergelijking van het oorspronkelijke signaal versus skelet gegevens om consequent deze potentiële bron van vertekening te minimaliseren.
- Klik op → Apply: de beeldgegevens wordt binair zoals weergegeven in figuur 5 onder "Threshold".
- Klik op → Plugins → Skeleton → schets maken (2D / 3D). Sla het skelet 2D-afbeelding (zoals weergegeven in figuur 5) als TIF-bestand doorop → Bestand → Opslaan als → Tif klikken. Analyseer het skelet beeldbestand voor kwantitatieve data-uitgang door op → Plugins klikken → Analyseer Skeleton (2D / 3D). Kies Prune cyclus methode: geen. Bevestig het automatisch genereren van de resulterende gegevens tabel.
- Sla de automatisch gegenereerde data tabel als txt-bestand. Selecteer de gewenste kwantitatieve parameters, zoals het aantal vertakkingspunten en de gemiddelde scheutlengtes zoals blijkt uit voorbeeldgegevens in figuur 7. Bestudering van verdere gegevensanalyse met aanvullende / ondersteunende software tools zoals Excel en passend.
- Klik op → Proces → Aftrekken Achtergrond. Stel de Rolling bal straal tot 5 pixels.
- Overwegen om geautomatiseerde beeldverwerking routines gebruiken waar mogelijk met inbegrip van alle nodige stappen onder 4.5 beschreven aan de analyse tussen de afzonderlijke beelden en / of afbeelding batches te harmoniseren. Gebruik het voorbeeld Aanvullende Code bestand met een beeldverwerking Macro geprogrammeerd voor Fiji (aanpassen van de programmering als nodig).
- Analyseer de individu oriëntaties van alle of selecteer TATS netwerkcomponenten van het skelet beeldgegevens door de Fiji-plugin "Directionality". Genereer een richtingsgevoeligheid histogram waarbij de respectievelijke axiaal georiënteerde A-buisje of dwars georiënteerd T-tubuli componenten worden vertegenwoordigd door de 0 ° of 90 ° bakken. Let op de juiste referentie van beeldoriëntatie en dat het belangrijk is voor de x-as van het beeld nauw overeen met de belangrijkste (longitudinale) 0 °-as van de VM cel zoals getoond in figuur 8 en Representatieve resultaten.
- Klik op → Analyseren → Directionality → opgeven Methode: Fourier componenten, Nbins 180, Histogram beginnen -45 → klik op Beeldscherm tafel.
- Sla de nieuw gegenereerde en weergegeven resultaten tafel inclusief bijbehorende histogram gegevens als txt-bestand. Overweeg een nadere analyse van het txt-bestand gegevens door gratis software tools zoals Excel en als dat nodig is.
- Om subklassen van het genererengegevens als gegroepeerd datasets bijvoorbeeld voor alle cellen behandeld onder dezelfde voorwaarde (en mogelijk andere voorwaarden), herhaal dan de analyse stappen 4,1-4,7 voor alle relevante afbeeldingen waar nodig. Importeer de skeletonized data parameters van alle beelden in een gecombineerd Excel-bestand met het oog op de gemiddelde waarden af te leiden. Daarnaast importeert alle gerichtheid histogram gegevens uit dezelfde gegroepeerde data tot een gecombineerd Excel-bestand te berekenen en genereren van de gemiddelde gerichtheid histogram. Overweeg verdere verwerking van gegroepeerde datasets om extra TATS netwerk parameters van belang voor individuele of tussen de verschillende behandelgroepen analyseren als dat nodig is.
Resultaten
Naast de analyse van het TATS-membraannetwerk zijn een aantal veelgebruikte celbiologische technieken, zoals intracellulaire Ca2+-imaging, patch-clamp elektrofysiologie of farmacologische dosis-responsstudies, kritisch afhankelijk van hoogwaardige isolatie van primaire cellen uit de atria, ventricels of specifieke delen van hartweefsel om karakterisering van volgroeide, gedifferentieerde, structureel en fysiologisch intacte cardiomyocyten mogelijk te maken. Daarom zijn de isolatie en kwaliteitsbeoordeling voor AM- en VM-cellen, zoals beschreven in sectie 1, uiteindelijk nuttig voor veel verschillende vraagstukken, waaronder de hier beschreven TATS-netwerkanalyse, die kritisch afhankelijk is van een intact membraan en celintegriteit.
Figuur 1 biedt een stapsgewijze handleiding met afbeeldingen over hoe de dissectie van het hartweefsel moet worden uitgevoerd, beginnend bij de atriale kamers in het muizenhart. Vervolgens worden de ventriculaire kamers en het septum voorbereid en naar behoefte gedissecteerd. Precieze selectie en preparatie van de juiste weefseldelen is essentieel om betrouwbaar AM- en VM-isolaties met voldoende celzuiverheid te verkrijgen. Na collagenase-digestie kan het relatief moeilijk zijn om de juiste dissectielijn tussen het atriale en ventriculaire weefsel te identificeren, maar zodra AM- en VM-cellen ongecontroleerd gemengd zijn in de celsuspensie, is het onmogelijk om de gemengde celpopulatie ongedaan te maken. Daarom zullen anatomische oriëntatie, 3D-weefselvisualisatie, voldoende ervaring met de hantering van gedigesteerd weefsel, correcte identificatie van specifieke weefseldelen en hun dissectielijnen allemaal bijdragen aan het succes van de celisolatie.
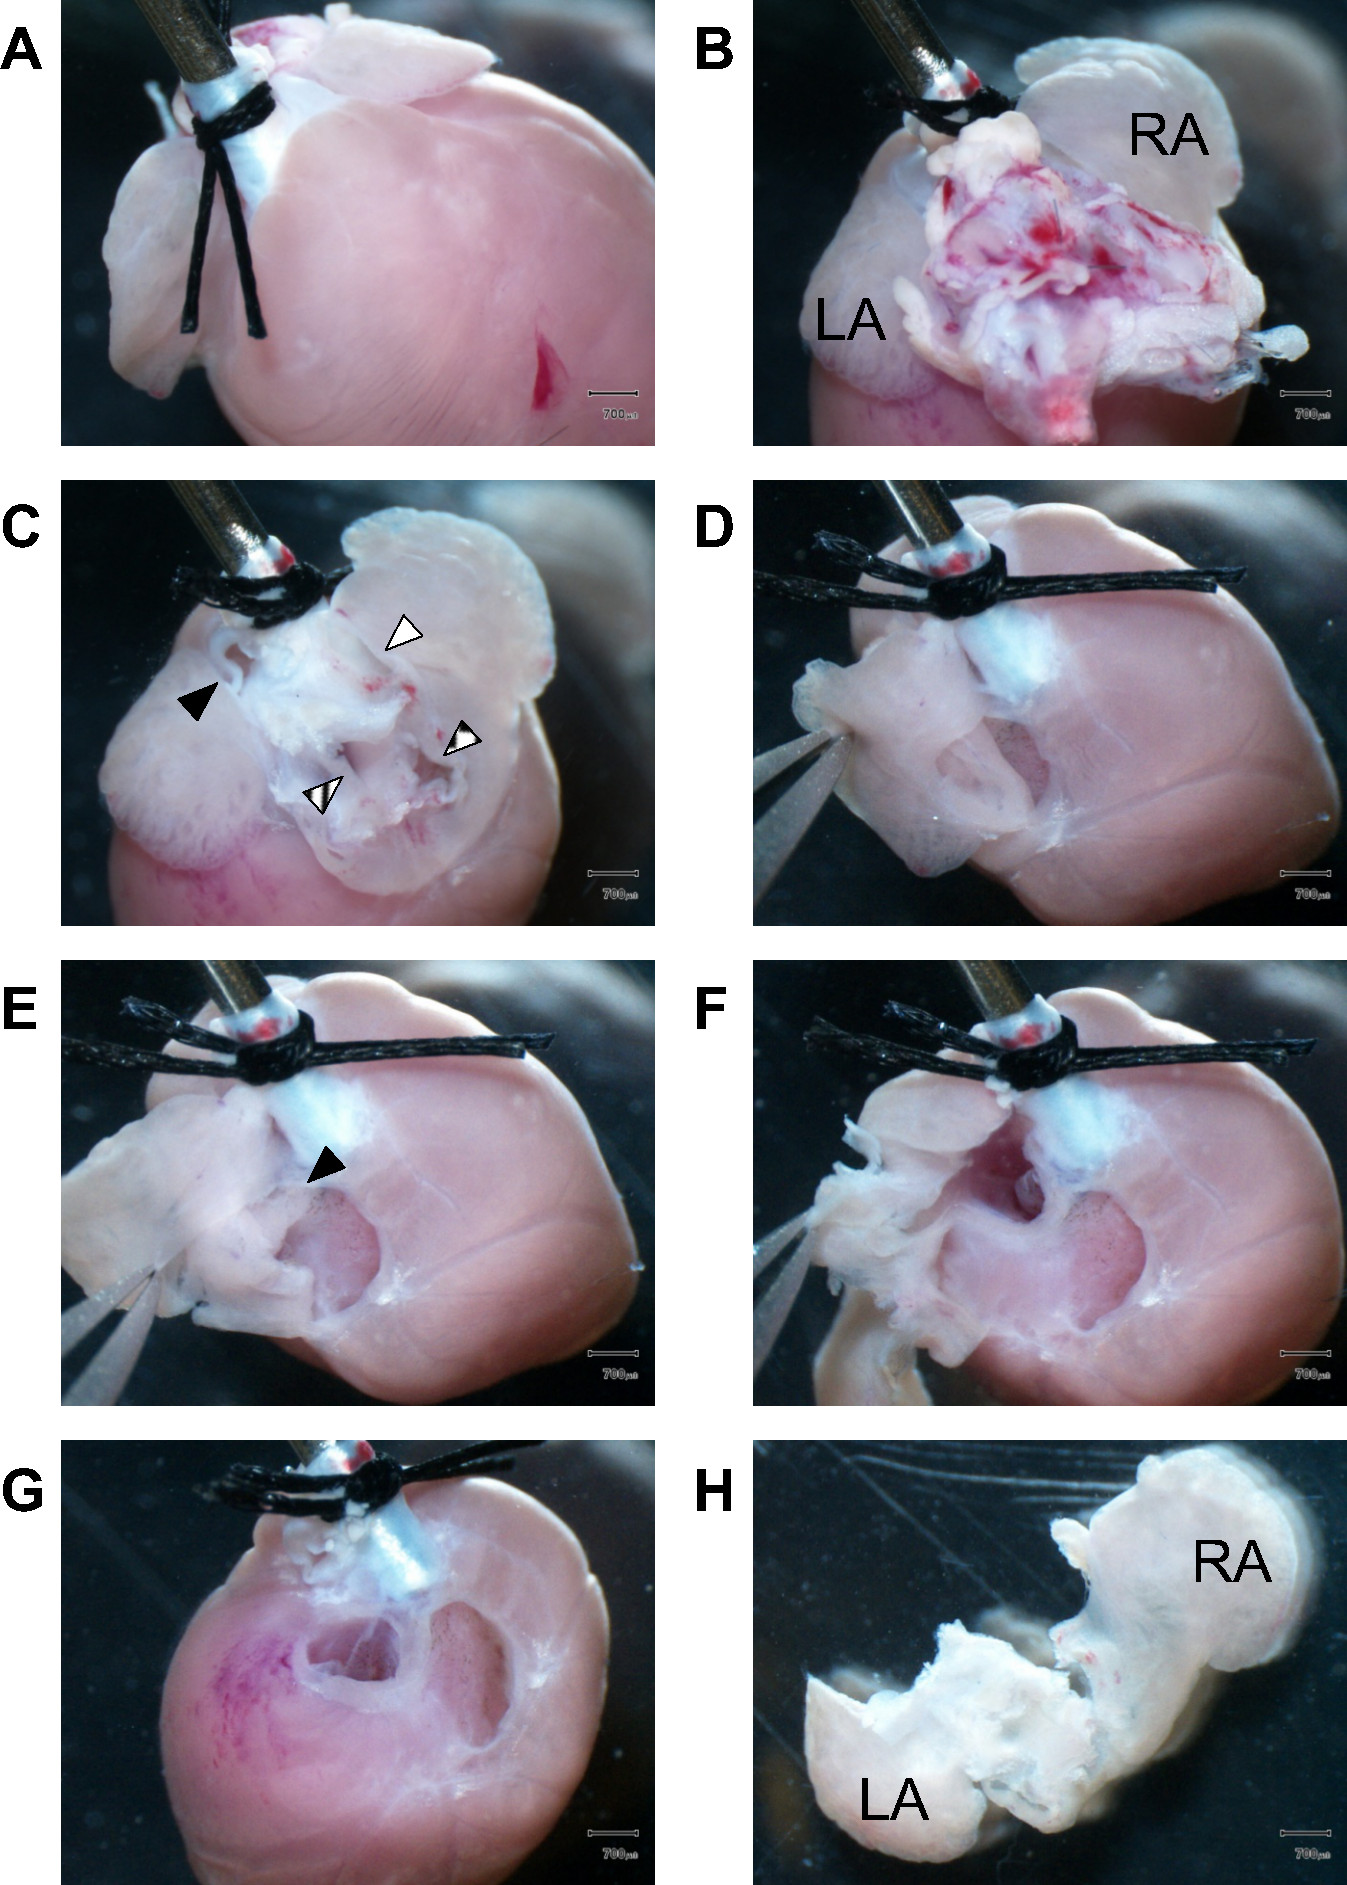
Figuur 1. Dissectie van atriumweefsel. (A) Gezien vanuit het anterieure gedeelte van het hart, fixeren twee chirurgische hechtingen de proximale aorta aan het stompende uiteinde van een 21 G stalen canule. (B) Uitzicht richting de basis van het hart laat zien dat resterend longweefsel het zicht op de atriumkamer tijdens de dissectie belemmert. LA, linker atrium; RA, rechter atrium. (C) Resterend longweefsel en de grote vaten werden verwijderd om toegang te krijgen tot de atriumkamers. Gevulde zwarte driehoek, longslagader; gestreepte driehoek, longaders; gevulde witte driehoek, bovenste holle ader; omkaderde driehoek, onderste holle ader. (D) Eerst wordt de wand van het rechter atrium gedisseceerd terwijl de pincet het atriumappendage vasthoudt. (E) Uitzicht in de holte van de rechter atriumkamer. De zwarte driehoek markeert het intacte interatriale septum. (F) De dissectie wordt voortgezet om de holte van de linker atriumkamer te betreden. (G) Na volledige dissectie van de linker en rechter atria worden de atrioventiculaire kleppen zichtbaar. Het vezelige klepapparaat wordt gedisseceerd en weggegooid om vervolgens uitsluitend ventriculaire spierweefsel te oogsten. (H) Posterieur uitzicht van de geïsoleerde linker en rechter atria. LA, linker atrium; RA, rechter atrium.Schaalbalken: 700 µm.
Om de kwaliteit van de celisolaties te bepalen, biedt Figuur 2 typische celvoorbeelden tijdens de beoordeling van de opbrengst en levensvatbaarheid van typische staaf- of baksteenvormige, gestreepte intacte myocyten, zowel voor AM's als VM's. Licht beschadigde, visueel onopvallende cellen alsof zwaar beschadigde cellen met abnormale, overmatig gekromde morfologieën, of abnormale sferisch gevormde cellen kunnen gemakkelijk worden geïdentificeerd, inclusief trypaanblauw-uitsluiting zoals beschreven in sectie 1.11. Terwijl intacte myocyten helder en homogeen gestreept blijven wanneer ze worden blootgesteld aan extracellulair trypaanblauw, vertonen beschadigde cellen doorgaans meerdere membraanblaasjes en/of accumuleren ze snel intracellulair trypaanblauw, wat duidt op membraanschade. Echter, trypaanblauw kan op zichzelf cellen beschadigen door onnodig lange incubatie, waardoor onmiddellijke beoordeling van de celkwaliteit verplicht is. Voorbeelden van meer evidente vormen van celschade, zoals myofilamentcontractuur of grove oppervlakschade die de celintegriteit aantast, worden getoond in Figuren 4C en 4D. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 2.Celkleuring via trypaanblauw-exclusie. Geïsoleerde (A) AM- en (B) VM-cellen zijn in suspensie gemengd met trypaanblauw en gevisualiseerd met een omgekeerde lichtmicroscoop bij een vergroting van 40X. Let op dat abnormale bolvormige cellen in (A) en (B) trypaanblauw opnemen, wat duidt op membraanlekkage en structurele schade. In contrast hiermee sluiten de centrale AM- en VM-cellen met intacte membranen trypaanblauw uit, zoals hier getoond. Let daarnaast op dat intacte AM- en VM-cellen sarcomere striaties vertonen over hun gehele celvolume, geen membraanblaasjes (blebs) hebben en scherpe randen vertonen aan zowel de laterale zijden als beide intercalaire schijven. Schaalbalken: 20 µm.
Na een succesvolle isolatie kan er van een enkele digestie van een muizenhart een celopbrengst van VM's van 5 x 10⁵ tot 106 worden verwacht. De opbrengst van AM's is aanzienlijk lager, in de orde van 3 x 10³ tot 3 x 10⁴ staafvormige, trypaanblauw-uitsluitende cellen. In tegenstelling tot VM mislukken AM-isolaties af en toe, zelfs door ervaren handen. Stap 1.11 vat de procedures samen om de opbrengst van geïsoleerde gezonde cellen in suspensie te schatten. Bepaal daarnaast de gemiddelde celafmetingen via stap 1.13, zoals getoond in Figuur 3, voor individuele AM- of VM-celisolaten of om AM- versus VM-celpopulaties naast elkaar te vergelijken (indien nodig). Klik hier om een grotere versie van deze figuur te bekijken.
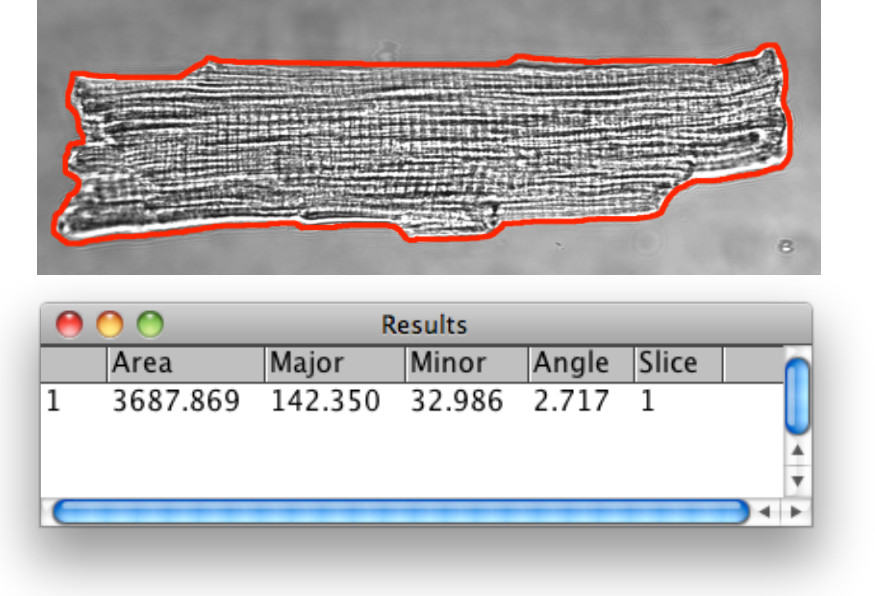
Figuur 3. Brightfield morfometrische analyse van hartmyocyten. De VM-contour werd gedetecteerd met de beeldanalyse-instrumenten die beschreven zijn onder stap 1.13. Gebruik de polygoon-selectietool om de extracellulaire grens van de cel, gedefinieerd door het buitenste oppervlaktemembraan, visueel te markeren en te definiëren voor analyse. Voeg het geselecteerde interessegebied (ROI) toe aan de ROI-manager, gevolgd door 1D-afstandmetingen. Voor vergelijkende studies van AM- versus VM-afmetingen is het nuttig om de cellengte, breedte en oppervlakte te documenteren en de lengte-breedteverhouding te berekenen.
Om TATS-membranen in zowel AM- als VM-cellen fluorescent te kleuren, wordt de integrale membraankleurstof di-8-ANEPPS gebruikt zoals beschreven in sectie 2, gevolgd door confocale microscopie, wat resulteerde in de representatieve afbeeldingen van TATS-netwerken getoond in Figuren 4A en 4B. Daarnaast toont Figuur 4A de bijbehorende transmissielichtafbeelding van een intacte AM naast de confocale TATS-afbeelding (zie sectie 3 voor beeldacquisitie). Zoals beschreven in stap 1.12, wordt de morfologische en oppervlaktemembraanintegriteit van levende myocyten beoordeeld via de transmissielichtafbeeldingen. Het vergrote gebied van het di-8-ANEPPS-signaal accentueert de onderliggende morfologie van het TATS-netwerk in AM's, gekenmerkt door overvloedige axiale (longitudinale) membraantubuli. In tegenstelling hiermee wordt de TATS-morfologie van gezonde VM's, zoals getoond in Figuur 4B, gekenmerkt door ongeveer gelijke aantallen axiale en transversale componenten. Daarentegen tonen Figuren 4C en 4D voorbeelden van beschadigde hartmyocyten die uit verdere analyse moeten worden uitgesloten. In het bijzonder is de AM-cel in Figuur 4C gecontracteerd, wat blijkt uit een abnormaal korte sarcomeerlengte van 1,2 µm en een onregelmatig, vervormd TATS-netwerk, terwijl de VM-cel in Figuur 4D meerdere membraanblebs vertoont (sommigen gemarkeerd met rode driehoeken), wat wijst op membraanrupturen, die kunnen voorkomen aan het buitenste oppervlaktemembraan maar ook aan de TATS-membranen. Klik hier om een grotere versie van deze figuur te bekijken.

Figuur 4. Live membraankleuring van intacte atriale en ventriculaire myocyten. Overeenkomstige doorlaatlicht- en confocale beelden van levende, met di-8-ANEPPS gekleurde intacte (A) AM- en (B) VM-cellen. In contrast wordt in (C) een gedeeltelijk gecontracteerde en potentieel beschadigde AM getoond met een sarcomerlengte van 1,2 µm. Gecontracteerde myocyten vertonen doorgaans abnormaal verkorte en vervormde TATS-structuren en werden daarom uitgesloten van verdere analyse. Een andere belangrijke indicator voor defecten in het celmembraan zijn membraanblebs (rode driehoeken), zoals getoond in een VM in (D). Membraanblebs vertegenwoordigen beschadigde oppervlaktemembraanstructuren; cellen met blebs moeten worden uitgesloten van verdere TATS-analyse. Bovendien vertoont de VM grove schade, waarbij schijnbaar een geheel deel van het linkerondergedeelte ontbreekt (gemarkeerd met een asterisk). Samenvattend wordt door het vergelijken van doorlaatlicht- en confocale beelden de celmorfologie en oppervlakte-integriteit gedocumenteerd en gecombineerd met fluorescentiesignaalinformatie. ‘N’ markeert celkernen die zijn weggelaten uit de analyse van de TATS-membraankleuring. Gele balken geven vergrote ROI's aan uit hetzelfde confocale beeld dat hierboven wordt gepresenteerd. Schaalbalken: 10 µm. Klik hier om een grotere versie van deze figuur te bekijken.
Confocale beelden van TATS-membranen met een voldoende signaal-ruisverhouding, zoals weergegeven in Figuren 4A en 4B, worden geaccepteerd voor verdere kwantitatieve analyse. De analyse van het TATS-membraan is gebaseerd op geskeletiseerde gegevens afgeleid van de fluorescente rectilineaire signaalcomponenten. Figuur 5 toont het workflowdiagram van de individuele bewerkingsstappen van de beelden, die in detail worden beschreven in stappen 4.3 tot 4.5. Deze stappen produceren geskeletiseerde beelden die de rectilineaire TATS-membraannetwerken representeren, zoals getoond voor elke geïsoleerde VM (Figuur 5A) en AM-cellen (Figuur 5B).
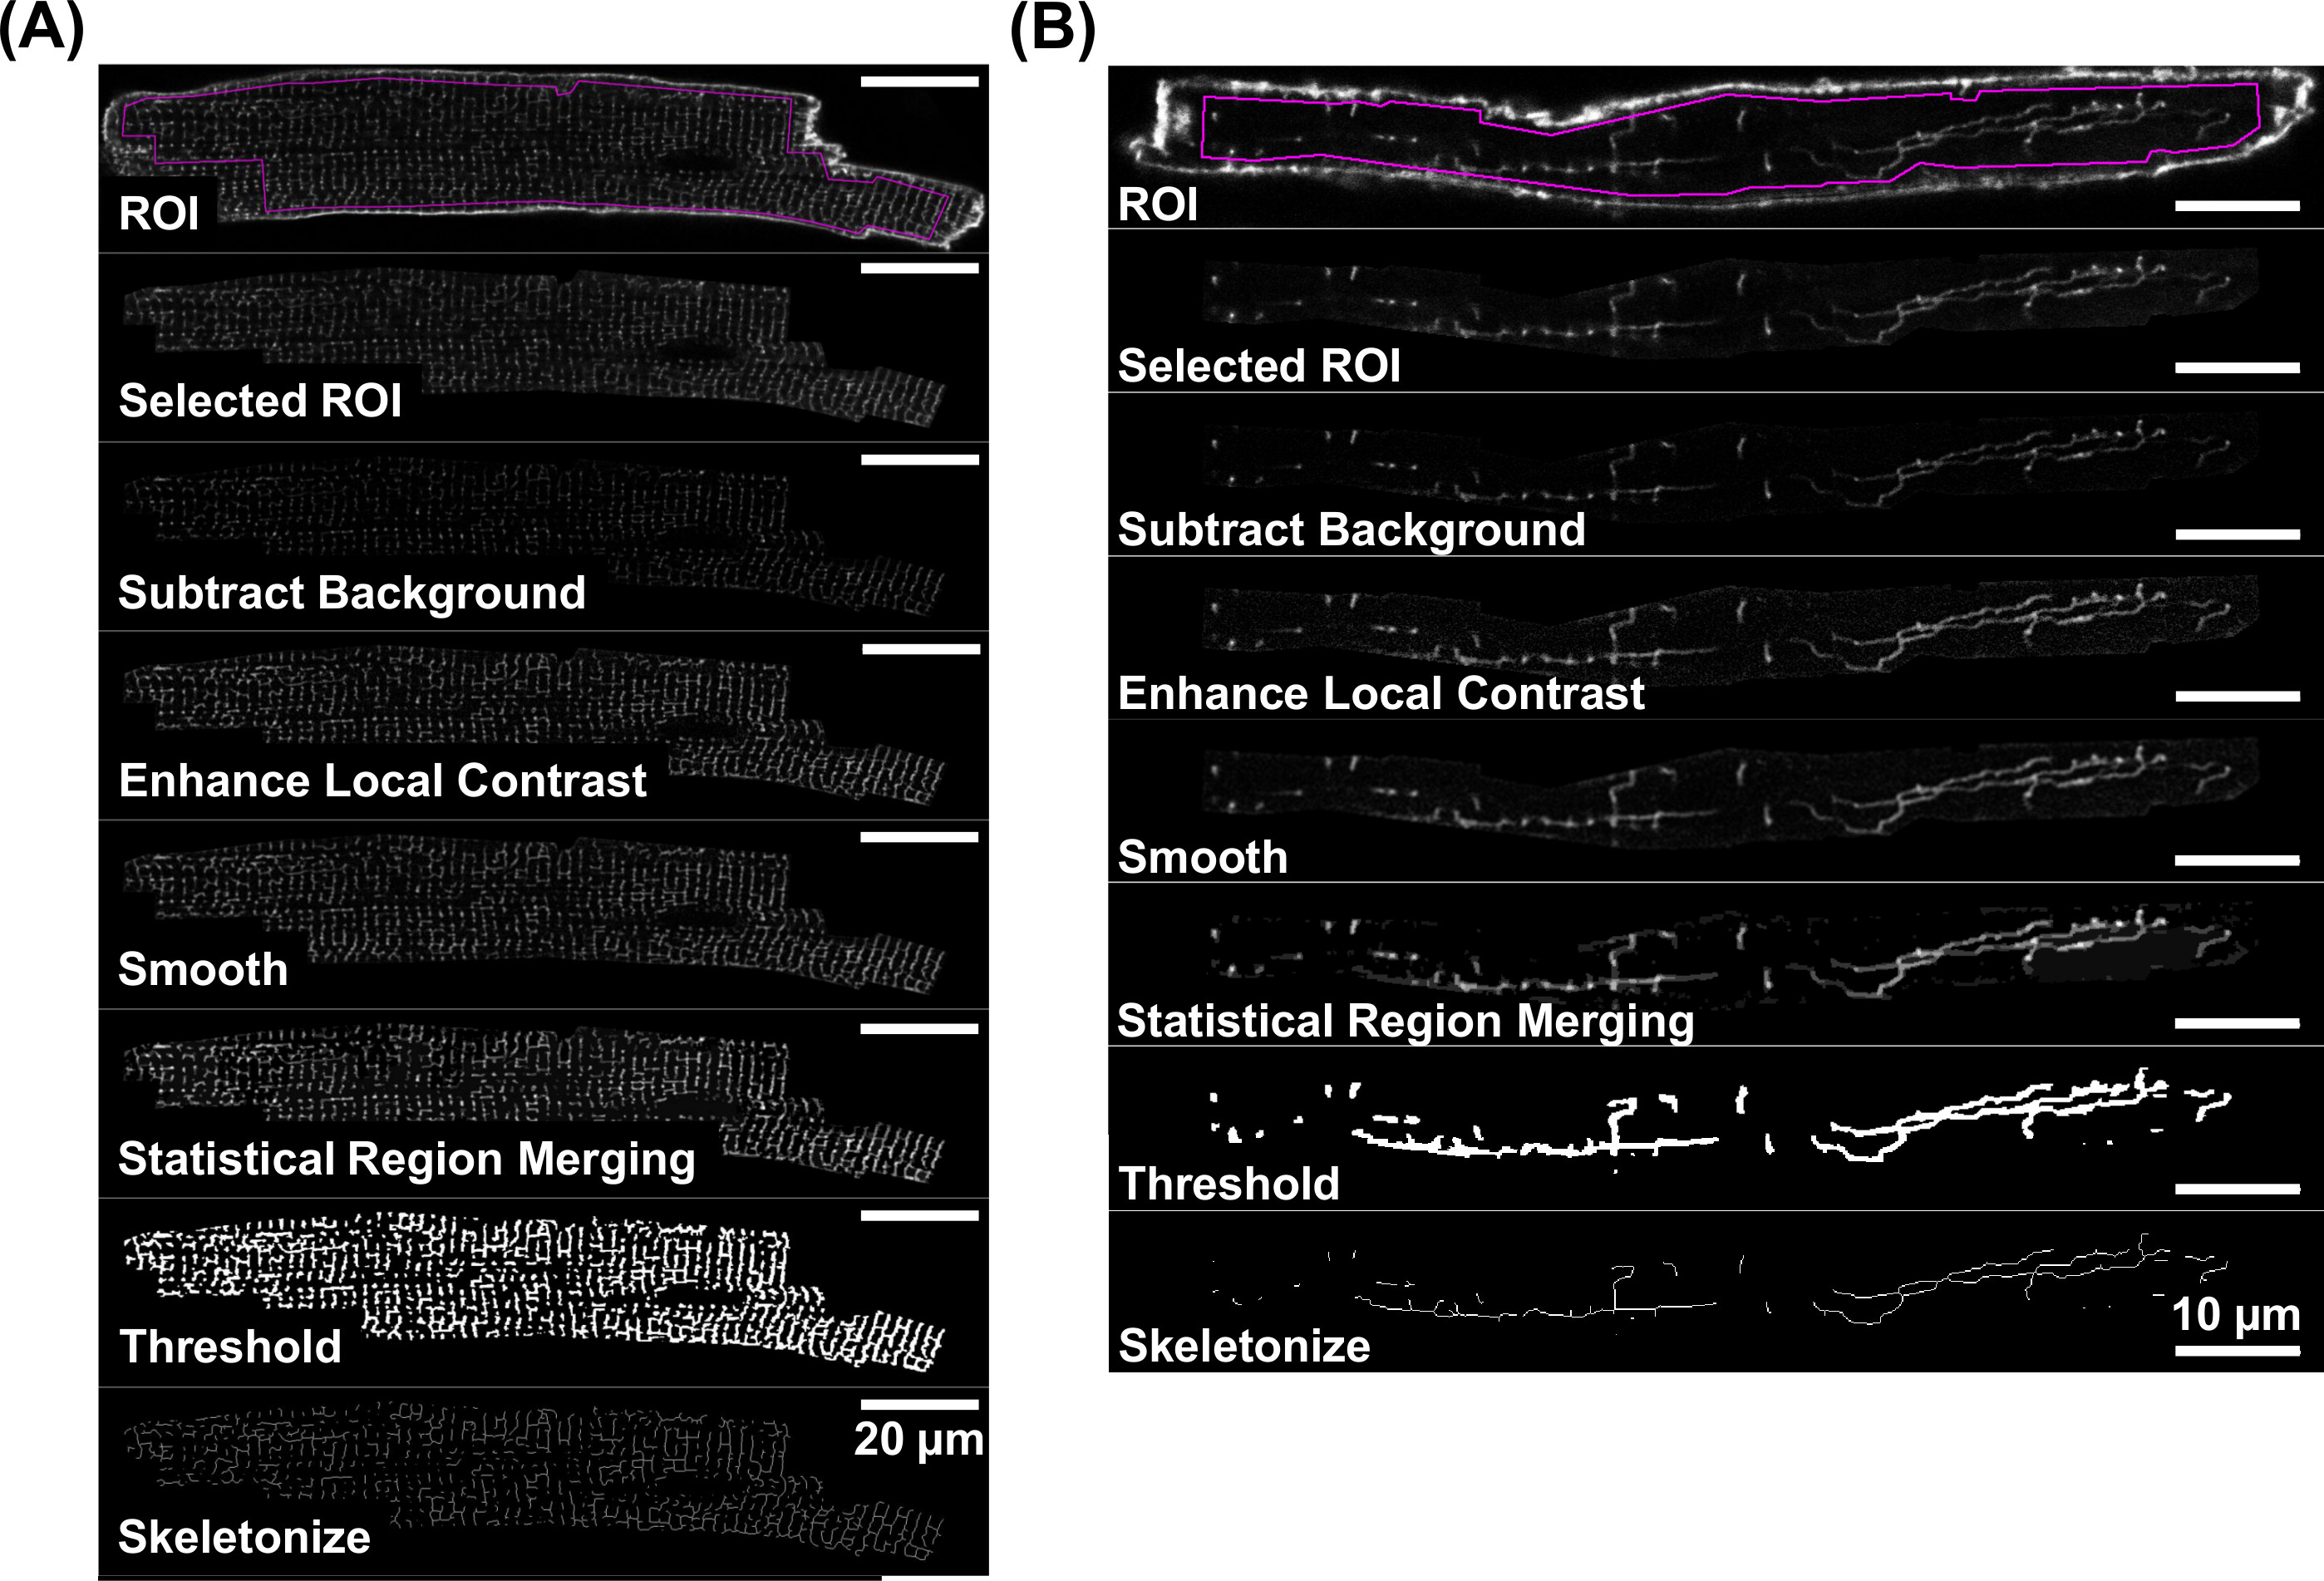
Figuur 5. Workflow voor skeletonisatie van fluorescente TATS-beelden. Beeldverwerkingsstappen die leiden tot een geskeletoniseerd beeld van het TATS-netwerk worden weergegeven door individuele stapsgewijze beeldvoorbeelden, zowel voor een di-8-ANEPPS-gekleurde VM (A) als AM (B). Raadpleeg voor elke individuele beeldverwerkingsstap sectie 4. Let op de verschillen in schaalbalken: 20µm (A) en 10µm (B). Klik hier om een grotere versie van deze figuur te bekijken.
Een cruciale stap tijdens de beeldverwerking is het bepalen van de juiste drempelwaarde voor data-binarisatie, zoals beschreven in sectie 4.5.6. Het resulterende binaire beeld moet uitsluitend echte membraansignalen van het TATS-netwerk bevatten en geen valse structuren die voortkomen uit foutieve drempelwaarde-instellingen van de achtergrondruis. Tegelijkertijd is het belangrijk dat de drempelwaarde laag genoeg is om alle echte TATS-structuren te detecteren, zodat werkelijke TATS-componenten niet onterecht verloren gaan tijdens de beeldanalyse. Figuur 6 illustreert het proces voor het selecteren van de drempelwaarde tijdens de data-binarisatie. Hoewel een drempelwaarde van 40, zoals getoond in Figuren 6B en 6C, geschikt lijkt om alle echte TATS-structuren individueel te detecteren, detecteert het kiezen van een hogere drempelwaarde, bijv. 60, zoals getoond in Figuur 6A, zwakkere axiale membraanstructuren (AT's) niet, zoals aangegeven door de gele driehoeken. Omgekeerd leidt het kiezen van een lagere drempelwaarde, bijv. 20, zoals getoond in Figuur 6D, tot een onjuiste detectie van achtergrondruis als vals-positieve TATS-structuren, zoals aangegeven door de gele driehoeken.
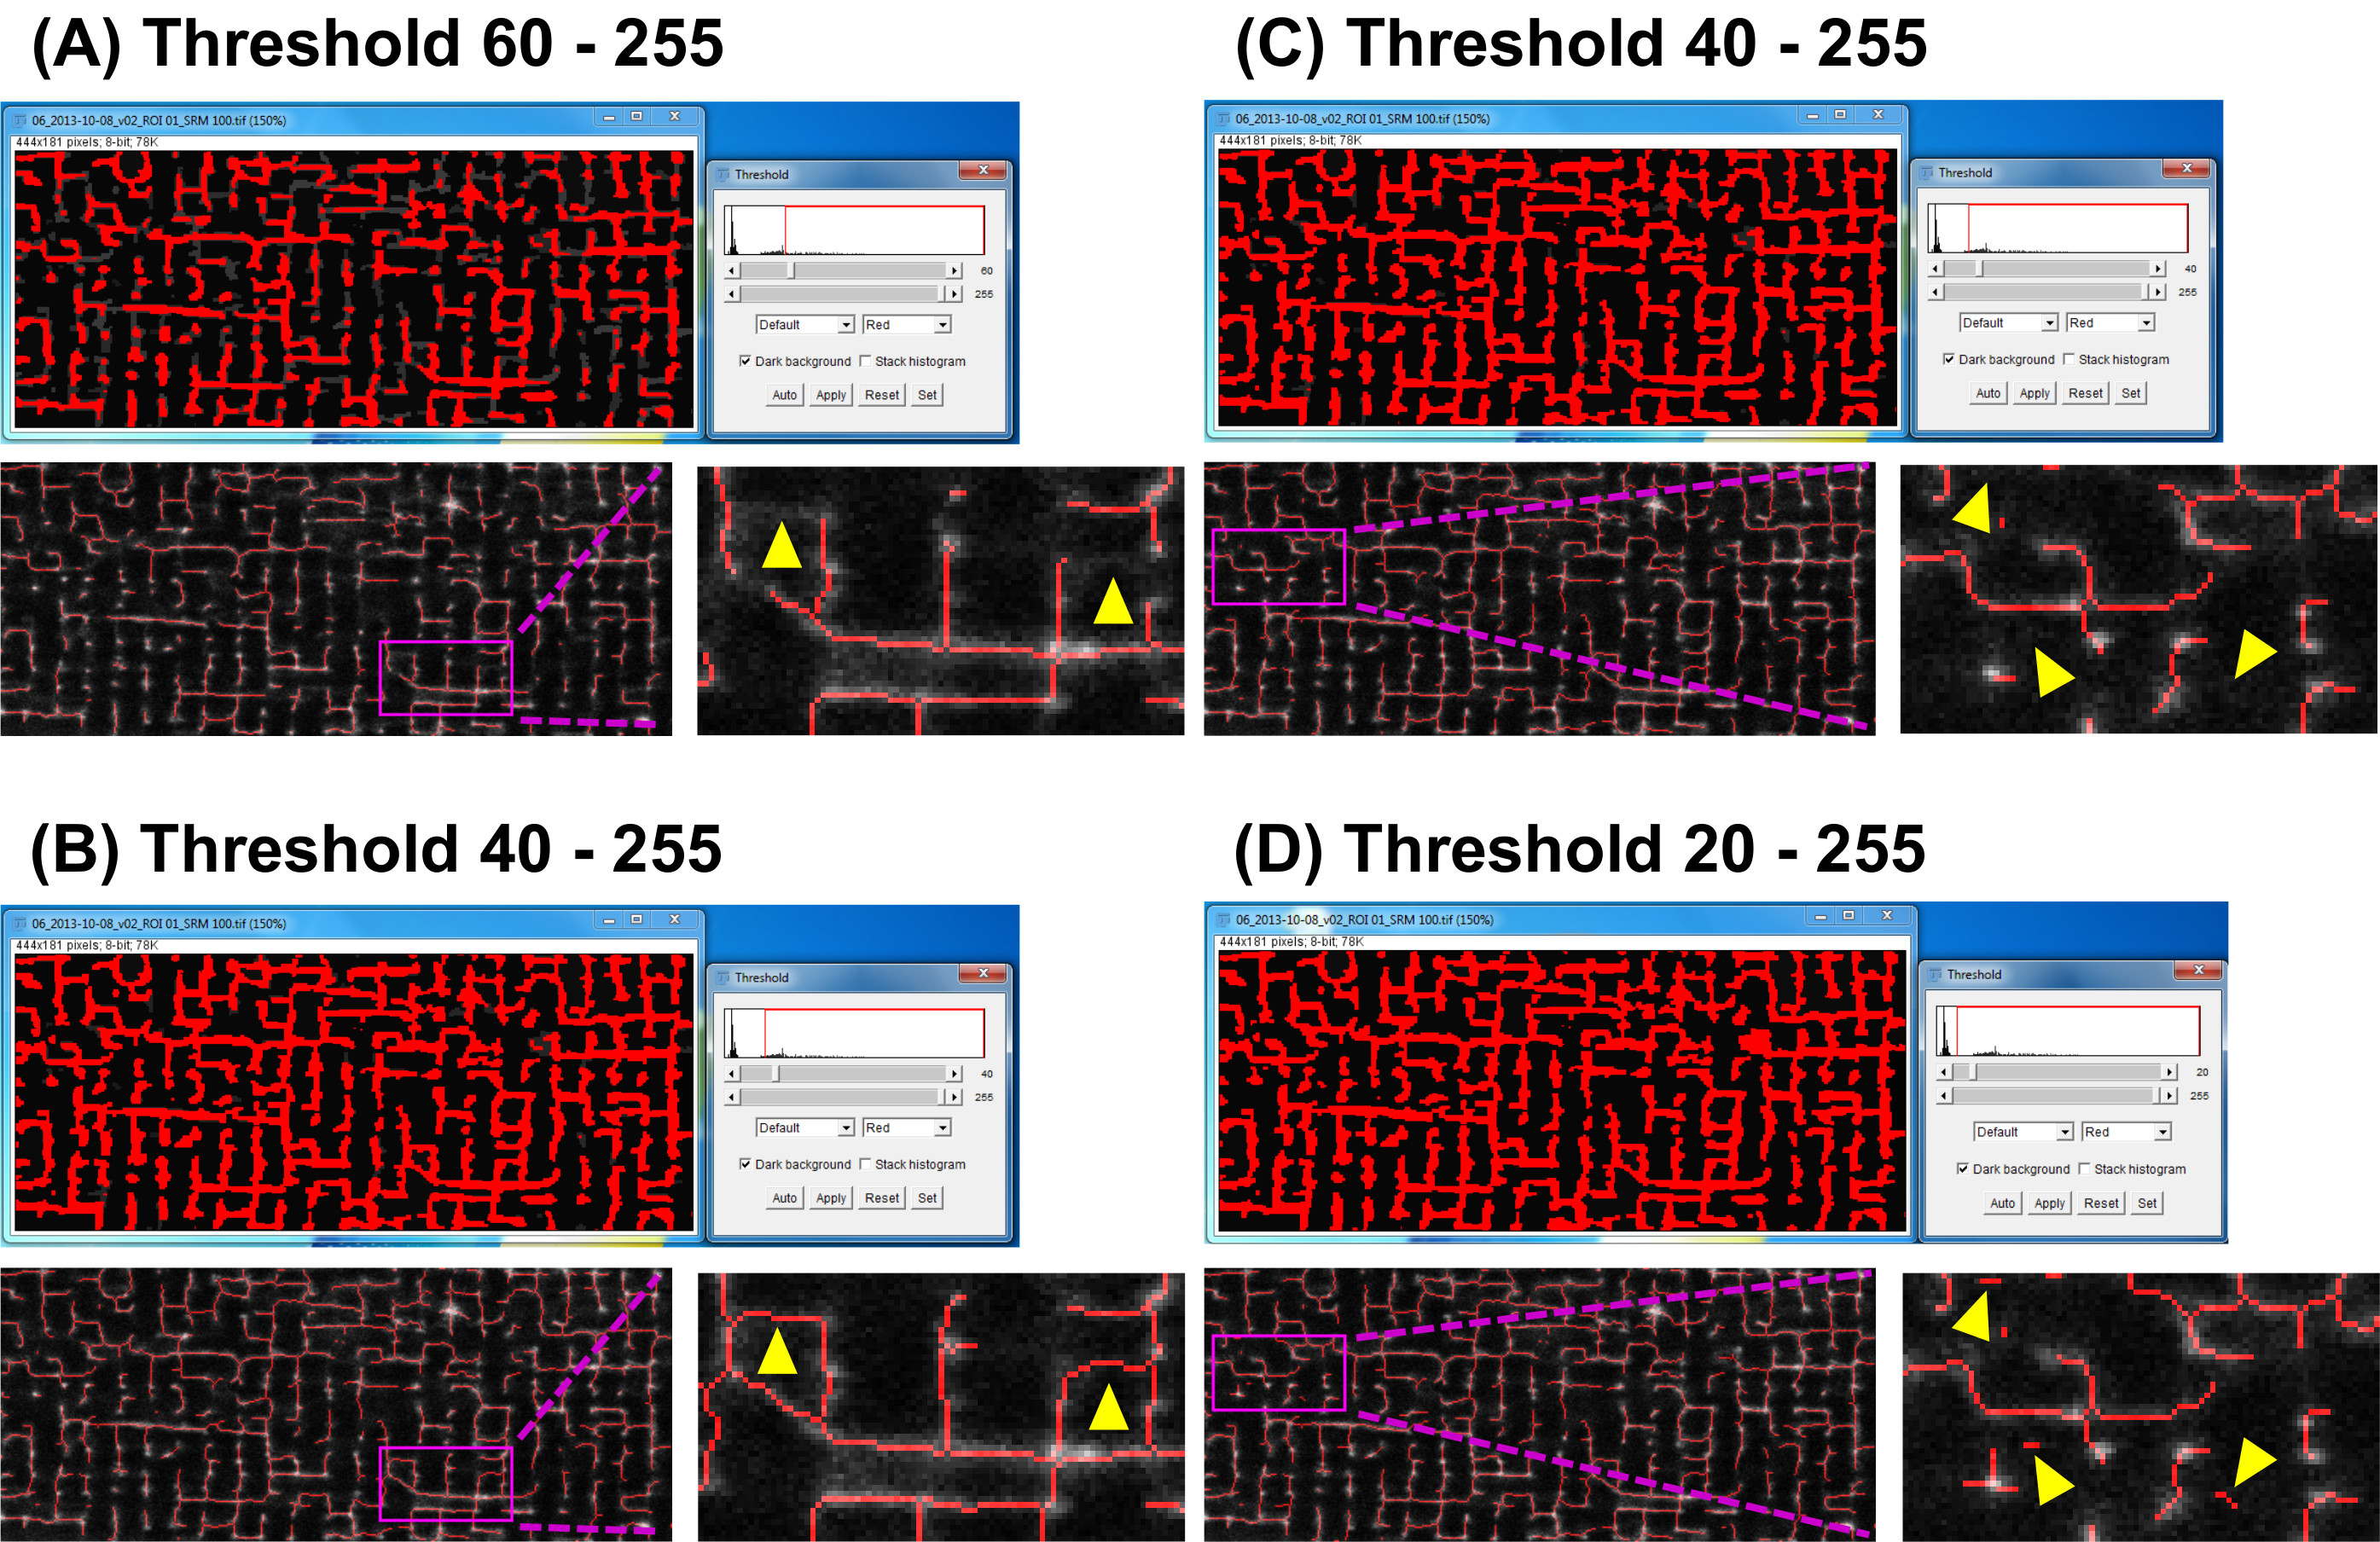
Figuur 6. Bepaling van de signaaldrempelwaarde tijdens het skeletoniseren van TATS-beeldgegevens.De voorbeelden tonen TATS-skeletten die elk zijn gegenereerd voor verschillende drempelwaarden tijdens de binarisatie van gegevens (beschreven in stap 4.5). Bovenste afbeeldingen: tonen de aanpassingen van de drempelwaarde met behulp van Fiji. Onderste afbeeldingen: overlay van geskeletoniseerde beelden met het corresponderende input-fluorescentiebeeld en vergrote regio's zoals aangegeven. Een hoge drempelwaarde, bijv. 60, toegepast in (A), is schijnbaar niet geschikt om alle werkelijke TATS-structuren te detecteren, zoals aangegeven door de gele driehoeken in het vergrote gedeelte. Een drempelwaarde van 40, toegepast in (B) en (C), detecteert alle TATS-structuren en detecteert correct geen achtergrondruis, terwijl een lage drempelwaarde, bijv. 20 in (D), achtergrondruis onterecht identificeert als TATS-structuren en daarmee vals-positieve signalen van niet-bestaande membraanstructuren produceert. Vals-positieve signalen worden aangegeven door gele driehoeken in de vergrote inzet. Klik hier om een grotere versie van deze figuur te bekijken.
De plugin “Analyze Skeleton (2D/3D)” ondersteunt de gedetailleerde analyse van geskeletiseerde TATS-structuren. Na uitvoering genereert de plugin een datatabel met de volgende skeletparameters: #branches, #junctions, #end-point voxels, gemiddelde taklengte, #triple points, #quadruple points en maximale taklengte. Raadpleeg voor een gedetailleerde beschrijving van alle mogelijke outputparameters http://fiji.sc/wiki/index.php/AnalyzeSkeleton en gerelateerde artikelen29-31. Een typische output van de datatabel is weergegeven in Figuur 7A.
De parameters kunnen verder worden gebruikt om de totale skeletlengte per oppervlakte of het aantal juncties per oppervlakte af te leiden. Een voorbeeldcalculatie waarbij het aantal vertakkingen wordt vermenigvuldigd met de gemiddelde vertakkingslengte geeft de totale lengte van het continue skelet in 2D:
Totale skeletlengte per ROI:
∑ (#takken x gemiddelde taklengte) = 5155 px = 515.5 µm
De totale lengte van het skelet kan worden genormaliseerd naar het beeldoppervlak. Voor het voorbeeld getoond in Figuur 7 zijn de genormaliseerde skeletlengte van 0,64µm/µm2 en de som van alle juncties als volgt berekend:
Genormaliseerde skeletlengte:
515.5 µm / 803.6 µm2= 0.64 µm/µm2
Genormaliseerd aantal juncties:
155 verbindingen / 803,6 µm2= 0,19 verbindingen/µm2
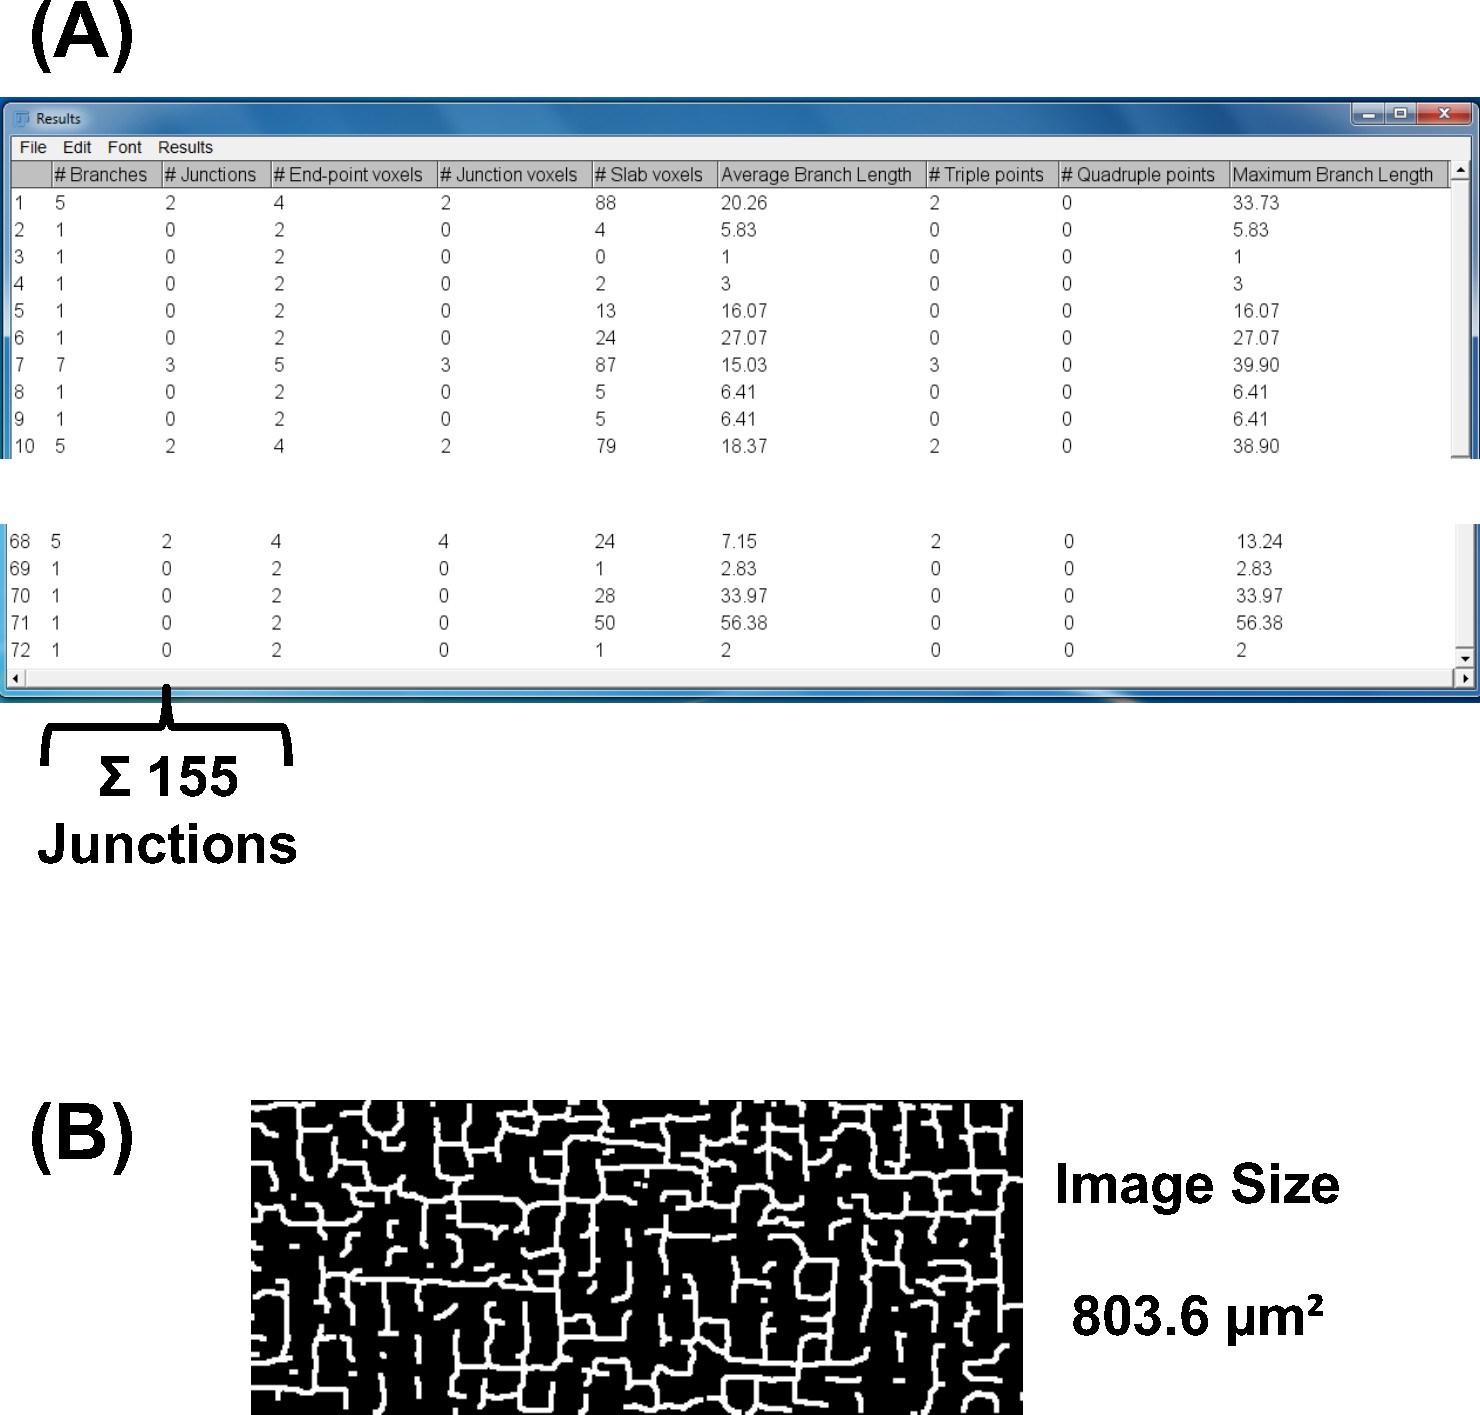
Figuur 7. Geautomatiseerde data-output uit geskeletiseerde beelden. (A) Een typisch dataspreadsheet gegenereerd door de 'Analyze Skeleton (2D/3D)'-plugin van het geskeletiseerde beeld getoond in (B). Raadpleeg voor een gedetailleerde beschrijving van mogelijke outputparameters http://fiji.sc/wiki/index.php/AnalyzeSkeleton. Klik hier om een grotere versie van deze figuur te bekijken.
De beeldbewerkingsstappen beschreven onder 4.5 en geïllustreerd in Figuur 5 kunnen worden geautomatiseerd met behulp van een Fiji-macro, die is bijgevoegd als Supplementary Code File. De commando's definiëren herhalingen van de beeldbewerking via iteratieve stappen. De macro kan worden toegepast op volledige stacks van inputbeelden die zijn gegenereerd via stappen 4.3 en 4.4. De macro kan voordelig zijn voor de analyse van volledige datasetgroepen, bijvoorbeeld door individuele inputbeeldstacks voor te bereiden voor elke onafhankelijke behandelgroep voor geautomatiseerde analyse met behulp van de macrocommando's.
De beschreven softwarestrategie maakt vervolgens de TATS-netwerkorientatieanalyse voor alle componenten mogelijk. Gebruik hiervoor de “Directionality”-plugin (http://fiji.sc/Directionality)29,31, die histogramgegevens produceert die de orientatieverdeling van alle TATS-componentorientaties tonen. Als de x-as van de invoerafbeelding overeenkomt met de hoofdaxis van een gegeven AM- of VM-cel, worden de axiale (longitudinale) TATS-componenten weergegeven door de 0°-bak, terwijl de transversale componenten worden weergegeven door de 90°-bak. Figuur 8 toont voorbeeldhistogrammen van de directionaliteit uit geskeletiseerde TATS-afbeeldingen voor een VM (8A) versus een AM-cel (8B). Hoewel het directionaliteitshistogram van een typische VM een dubbele piekverdeling vertoont bij 0° en 90°, vertoont het AM-histogram één enkele dominante piek bij 0°. Deze voorbeelden komen overeen met eerdere waarnemingen dat individuele TATS-componenten van VM's bijna gelijkmatig zijn verdeeld tussen T-tubuli en A-tubuli, terwijl de TATS-componenten in AM's voornamelijk uit A-tubuli kunnen bestaan.
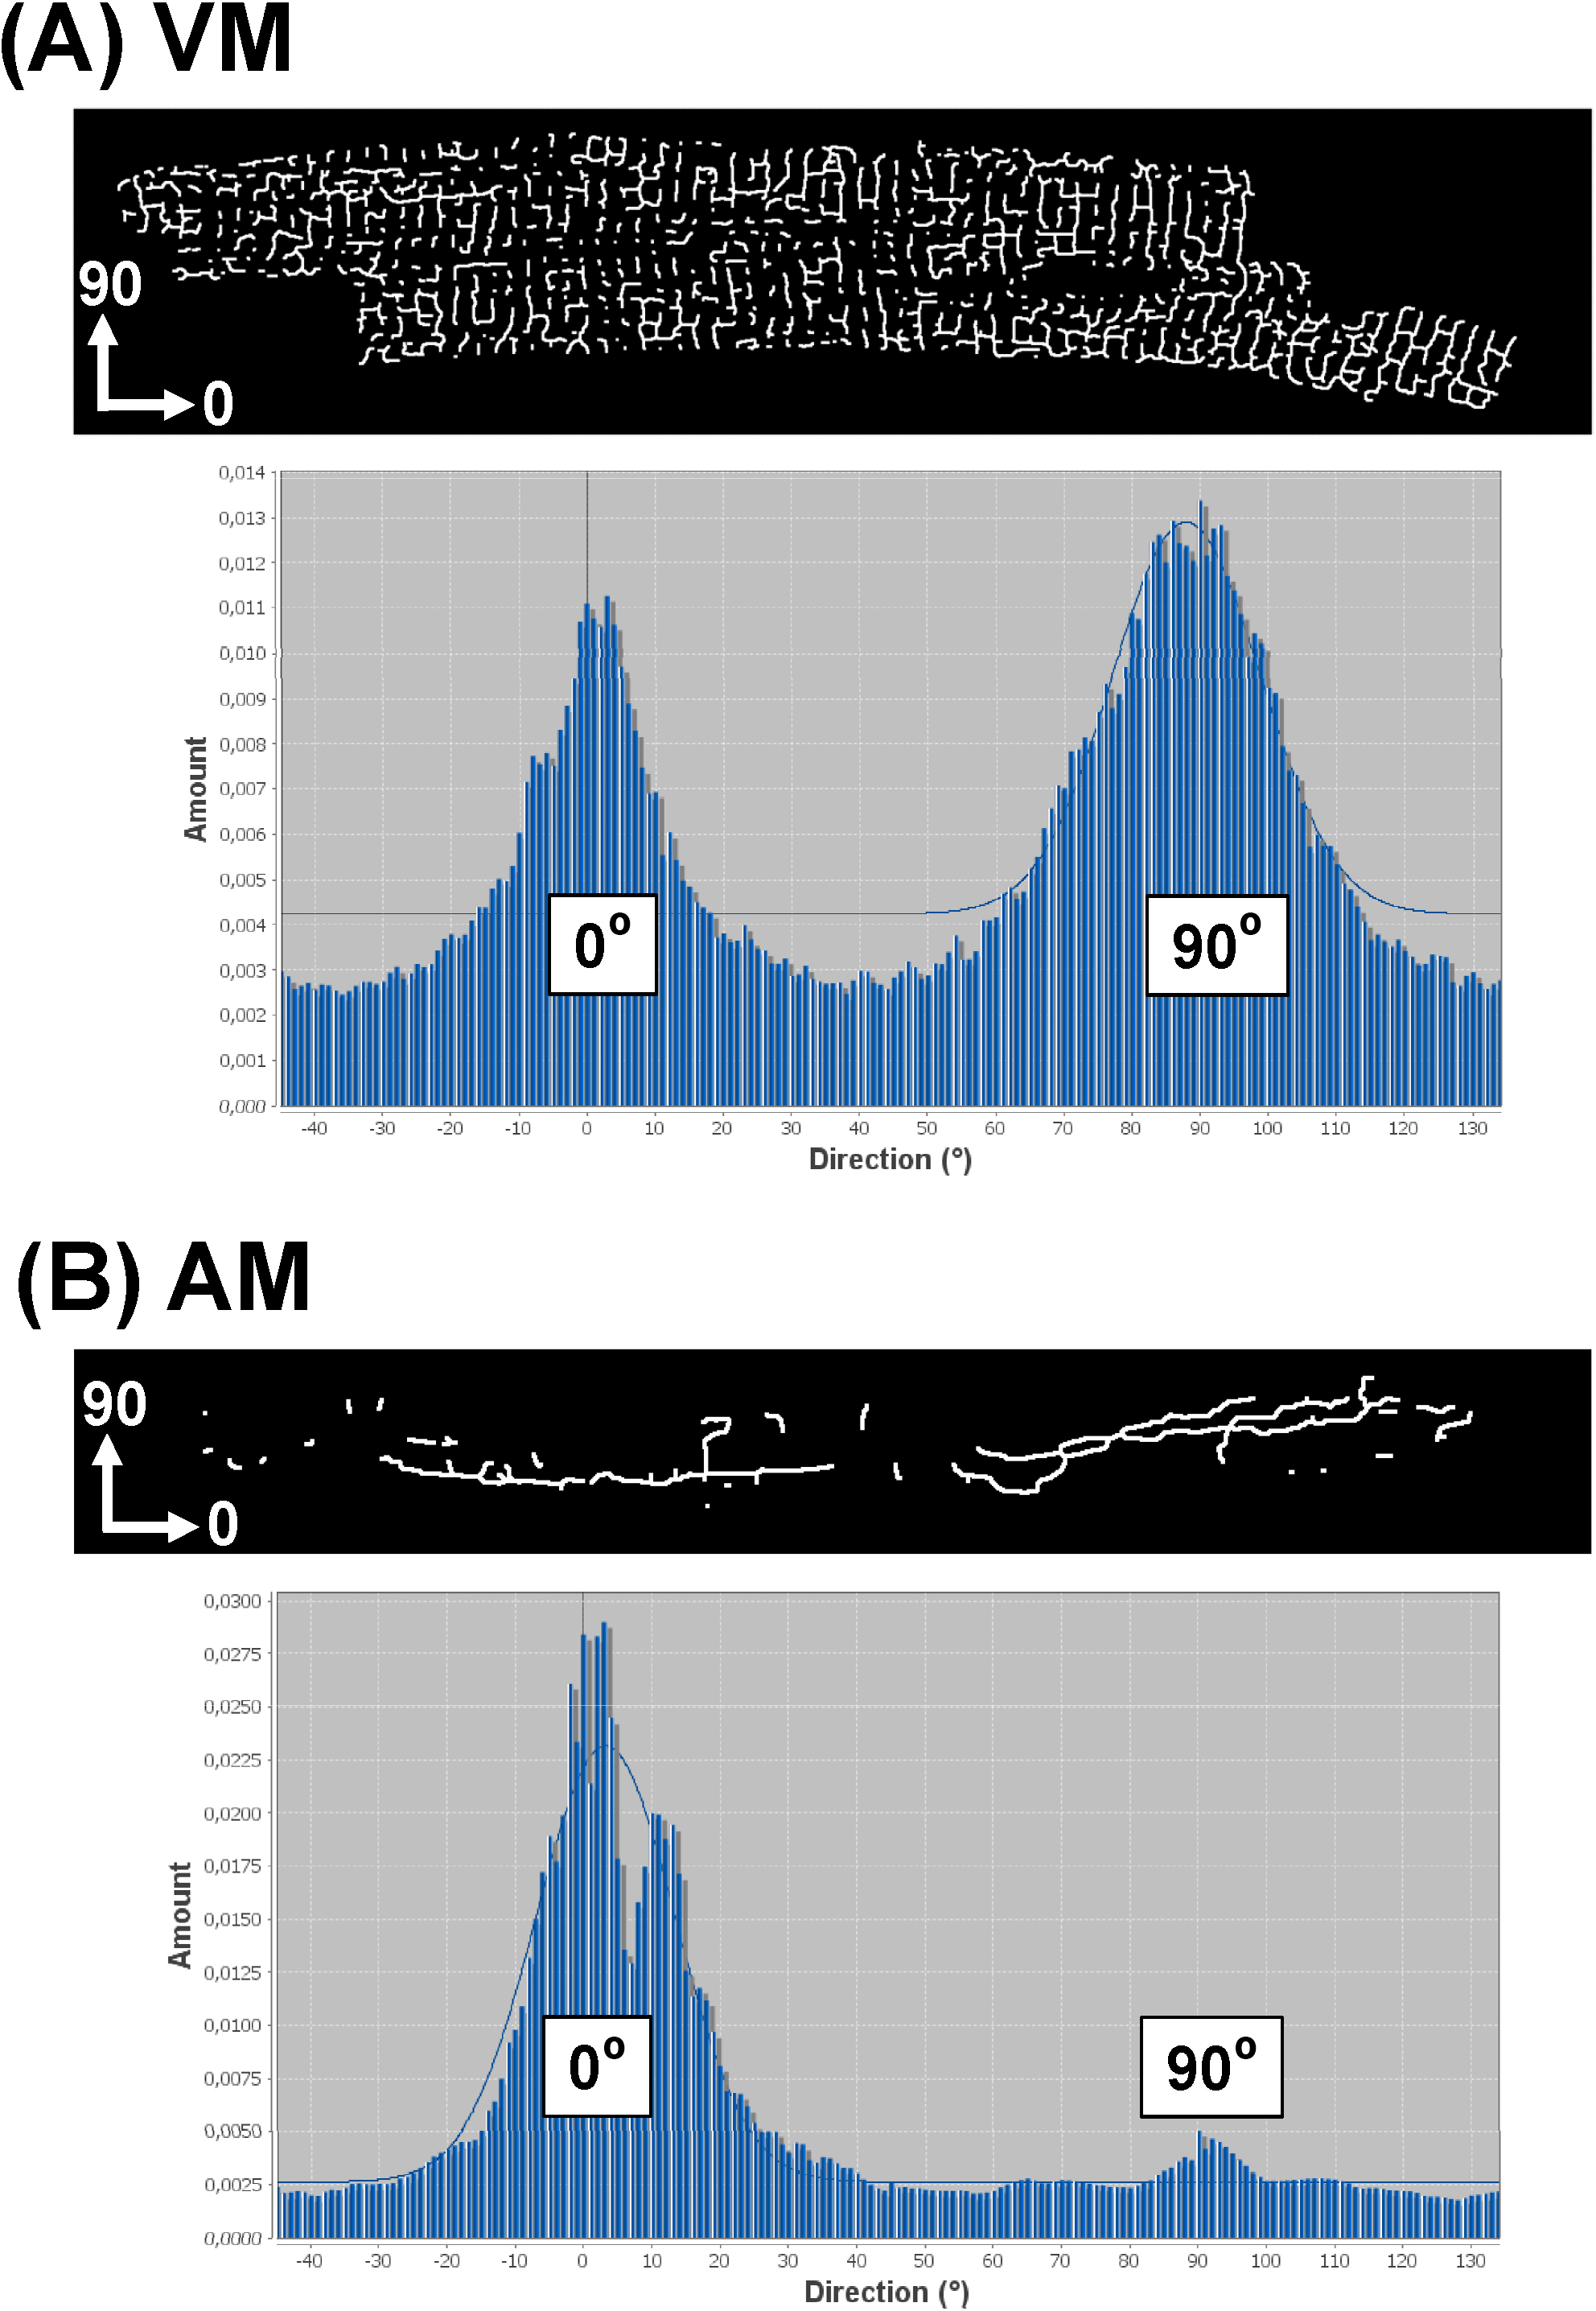
Figuur 8. Representatief directionaliteitshistogram van TATS-netwerken van individuele cellen. Directionaliteitshistogrammen werden gegenereerd uit geskeletiseerde beelden van individuele VM (A) versus AM (B) TATS-netwerken. Aangezien de x-as van het geanalyseerde beeld overeenkomt met de hoofd- (longitudinale) as van de myocyt zoals getoond, worden A-tubule componenten weergegeven door de 0°-bin, terwijl T-tubule componenten worden weergegeven door de 90°-bin. Gauss-fits zijn alleen toegepast op de belangrijkste histogrampiek, weergegeven als achtergrondgrafiek. Klik hier om een grotere versie van deze figuur te bekijken.
| Perfusiebuffer | mM |
| NaCl | 120.4 |
| KCl | 14.7 |
| KH2PO4 | 0.6 |
| Na2HPO4 | 0.6 |
| MgSO4 | 1.2 |
| HEPES | 10 |
| NaHCO3 | 4.6 |
| Taurine | 30 |
| 2,3-butaandioon-monoxime | 10 |
| Glucose | 5.5 |
| pH 7.4 | |
| Digestiebuffer | mM (tenzij anders vermeld) |
| NaCl | 120.4 |
| KCl | 14.7 |
| KH2PO4 | 0.6 |
| Na2HPO4 | 0.6 |
| MgSO4 | 1.2 |
| HEPES | 10 |
| NaHCO3 | 4.6 |
| Taurine | 30 |
| 2,3-butaandioon-monoxime | 10 |
| Glucose | 5.5 |
| Collagenase type II | 600 U/ml |
| pH 7.4 | |
| Stopbuffer | mM (tenzij anders vermeld) |
| NaCl | 120.4 |
| KCl | 14.7 |
| KH2PO4 | 0.6 |
| Na2HPO4 | 0.6 |
| MgSO4 | 1.2 |
| HEPES | 10 |
| NaHCO3 | 4.6 |
| Taurine | 30 |
| 2,3-butaandioon-monoxime | 10 |
| Glucose | 5.5 |
| CaCl2 | 0.0125 |
| runderkalfserum | 10% |
| pH 7.4 | |
Tabel 1. Buffersoplossingen. De samenstelling van drie verschillende fysiologische buffersoplossingen voor celisolatie en imaging is hier samengevat.
Discussie
Hoewel cardiale myocyten al decennialang zijn geïsoleerd en bestudeerd32, concludeerde een recente review dat consistente isolaties van hoge kwaliteit van myocyten nog steeds een uitdaging zijn27. Dit weerspiegelt relatief complexe protocollen voor het isoleren van primaire cardiale myocyten ten opzichte van een gebrek aan gemeenschappelijke standaard benaderingen, gedeelde metadata en transparante documentatie over de kwaliteit van cellen. Protocollen voor celisolatie worden meestal aangepast door individuele groepen, produceren variabele resultaten van celisolaten, zijn afhankelijk van individuele modelinstellingen (bijv. soort, leeftijd, bestaande hartaandoeningen) en worden meestal aangepast voor specifieke experimentele omstandigheden. Binnen de context van de kwantitatieve TATS membraanstudies en protocollen die hier worden gepresenteerd, betreft een essentieel niveau van kwaliteitsbeoordeling en documentatie de confocale of superresolutie microscopie van individuele celmembraanstructuren die vatbaar zijn voor metabolische en isolatieprotocolafhankelijke veranderingen, zowel in AM als in VM. Belangrijk is dat, zelfs als hoge opbrengsten van celisolaten op gezonde intacte myocyten duiden, onderzoekers elke individuele cel zorgvuldig moeten documenteren en kritisch moeten beoordelen op morfologische criteria van oppervlakte en TATS-membraanintegriteit versus niet-specifiek schade door isolatieprocedures versus specifieke veranderingen door verschillende soorten interventies in vergelijking met controleomstandigheden. Een belangrijke variabele tijdens de isolatie van hartcellen is de specifieke activiteit van een bepaalde collagenase batch. Om een nieuwe batch collagenase te selecteren, moet de enzymatische activiteit van verschillende collagenasemonsters tegen elkaar worden getest door de opbrengst en kwaliteit van cardiale myocyten te evalueren, en volgens de instructies van de fabrikant. Idealiter wordt een nieuwe batch collagenase geïdentificeerd met een collagenase-activiteit die vergelijkbaar is met eerder succesvol gebruikte batches (voor uitgebreide evaluatie van mogelijke enzymactiviteiten verwijzen naar de “collagenase batch selectietool” in de tabel met materialen en methoden). Gezamenlijk afhankelijk zijn kwantitatieve benaderingen van TATS-membraanvisualisatie van de kwaliteit van celisolatie en omgekeerd moeten hartcelisolaties die leiden tot onspecifieke membraanschade, zoals gedocumenteerd door TATS-microscopie, een kritische herziening en correctie van de isolatieprocedures veroorzaken. Aangezien de kwaliteit van celisolatie en TATS-membraanvisualisatie en -kwantificering intrinsiek met elkaar verbonden zijn, bestrijken de protocollen die in dit artikel worden besproken alle belangrijke aspecten als een continue strategie.
Een extra uitdaging en veelvoorkomend probleem in hartstudies, celschade en/of celverlies, treedt op als gevolg van metabolisch belastende interventies, bijv. na een hartinfarct9, maar moet worden beoordeeld tegen potentiële onbedoelde schade, bijv. na een onopgemerkte luchtembolie tijdens celisolatie. Isolatie van cardiale myocyten uit zieke harten kan leiden tot aanvullende, significante celverliezen en verminderde celopbrengsten. Daarom kan vergelijking van het totale aantal geïsoleerde intacte cellen tussen controle- en zieke harten zinvol zijn als celisolatie en -telling consistent worden toegepast via gestandaardiseerde protocollen. Bijgevolg is het van cruciaal belang om de celintegriteit te beoordelen aan de hand van een geschikte controlegroep, die de best mogelijke kwaliteit van myocytencelisolatie weerspiegelt. Belangrijk is dat de kwaliteit van individuele cellen en levende celmicroscopie van gezonde versus zieke versus myocyten die onbedoeld zijn beschadigd door de isolatieprocedure de analyse van TATS-membraannetwerken aanzienlijk kunnen beïnvloeden. De hier gepresenteerde protocollen benadrukken daarom de integriteit en stabiliteit van fysiologische membraancomponenten tijdens celisolatie en levende celmicroscopie van intacte membranen. De volledige workflow is ontworpen als een continue strategie om intacte TATS-membraancomponenten te bereiken en te behouden, terwijl beschadigde cellen worden uitgesloten, omdat deze isolatieafhankelijke membraanartefacten zoals verbroken membraanbuisjes, membraanblaasjes en veranderde TATS-netwerken onterecht onder controleomstandigheden zullen vertonen en verdere kwantitatieve analyse zullen beïnvloeden. Vice versa zijn dezelfde strategieën cruciaal voor interventiestudies met het potentieel om TATS-membranen te verstoren, die kritisch afhankelijk zijn van zinvolle vergelijkingscontroles tussen echte gezonde versus echte zieke cellen met TATS-membraanveranderingen.
Daarnaast richten we ons op procedures om de technisch veel uitdagendere isolatie van AM-cellen te bereiken. Ondanks vooruitgang en verbeterde protocollen, is het belangrijk om te benadrukken dat het niet triviaal is om hoogwaardige celisolaties van VM's te reproduceren en zelfs minder betrouwbaar voor AM's. Dit komt door de algemeen lagere opbrengst van AM-cellen waarbij zelfs kleine fouten of variaties tijdens celisolatie kunnen leiden tot volledig falen van AM-celisolatie, terwijl een lichte mate van VM-celbeschadiging minder duidelijk kan zijn in celsuspensie vanwege relatief hoge celaantallen vergeleken met AM. Aangezien AM-cellen na isolatie gekromd kunnen raken, kan analyse via meerdere ROI's voordelig zijn zoals beschreven onder stap 4.3. Na een gedetailleerd proces van celisolatie stappen, bieden we een protocol voor directe integrale membraankleuring en confocale of STED superresolutie beeldvorming van TATS-netwerken voor zowel VM's als AM's. Deze protocollen maken zowel kwantitatieve analyse als differentiatie van selecte componenten van TATS-membranen mogelijk via eerder gevestigde parameters. In vergelijking met VM's, zijn de 3D-organisatie en functionele gedragingen van het atriale TATS-netwerk in AM's momenteel minder begrepen.
De procedures om TATS-membranen in levende cellen te beeldvormen (stappen 3.1 tot 3.7) zijn ontwikkeld met commerciële confocale (Tabel met materialen/apparatuur) en op maat gemaakte STED-fluorescentiemicroscopen9. Om de microscoopinstellingen te optimaliseren voor fluorescente beeldgeneratie en kwantitatieve TATS-analyse, zijn de volgende punten van algemeen belang:
- Objectief
Om kleine details van TATS-membra
Openbaarmakingen
De auteurs verklaren dat er geen belangenconflict bestaat.
Dankbetuigingen
Dit werk ontving ondersteuning via Deutsche Forschungsgemeinschaft SFB 1002 (subprojecten A05 en B05 voor S.E.L.) en KFO 155 (subproject 4 voor S.E.L.), een Halbach Foundation-award voor S.E.L. die E.W. ondersteunt; een subsidie van de Duitse Cardiologische Vereniging voor S.B.; en een DAAD-uitwisselingsprogramma dat T.K. ondersteunt als bezoeker aan de Universiteit van Maryland. Het onderzoek dat tot deze resultaten heeft geleid, heeft financiering ontvangen uit het Zevende Kaderprogramma van de Europese Gemeenschap FP7/2007-2013 onder subsidieovereenkomst nr. HEALTH-F2-2009-241526, EUTrigTreat (voor S.E.L.). S.E.L. is een hoofdonderzoeker van het Duitse Centrum voor Cardiovasculair Onderzoek (DZHK).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Chemicals and Enzymes | |||
| 2,3-Butanedione monoxime | Sigma-Aldrich, Munich, Germany | B0753 | |
| Bovine calf serum | Thermo Scientific, Schwerte, Germany | SH30073 | Triple 0.1 µm sterieel gefilterd. |
| CaCl2 | Sigma-Aldrich, Munich, Germany | 21115 | Verdund 1:10 in MQ-water om 100 mM CaCl2 voorraadconcentratie te verkrijgen. |
| Collagenase type II | Worthington via Cell Systems, Troisdorf, Germany | op aanvraag | Enzymatische activiteit is afhankelijk van individuele collagenase-batches. Collagenase II en andere enzymactiviteiten (Caseinase, Clostripain, Tryptic) kunnen worden beoordeeld in de "collagenase lot selection tool". Bepaal de celopbrengst en kwaliteit individueel voor elke nieuwe batch collagenase. |
| Glucose | Carl Roth, Karlsruhe, Germany | HN06.1 | |
| Heparine | Rotexmedica, Trittau, Germany | PZN-03862340 | Verdund in 0,9% NaCl en subcutaan geïnjecteerd in de buikhuid. |
| HEPES | Carl Roth, Karlsruhe, Germany | 9105.4 | |
| Forene 100% (V/V) | Abbott, Libertyville, IL, USA | B506 | Actief ingrediënt: isofluraan, 250 ml. Gebruik ongeveer 2 Vol% in lucht/zuurstof dispenser instrument. |
| KCl | Carl Roth, Karlsruhe, Germany | 6781.3 | |
| KH2PO4 | Carl Roth, Karlsruhe, Germany | 3904.2 | |
| Laminine (2 mg/ml) | BD Biosciences, Heidelberg, Germany | 354232 | Laminering wordt beschreven onder stap 2.1. |
| MgCl2·6H2O | Carl Roth, Karlsruhe, Germany | 2189.2 | |
| MgSO4·7H2O | Carl Roth, Karlsruhe, Germany | 8283.2 | |
| Na2HPO4·2H2O | Carl Roth, Karlsruhe, Germany | 4984.2 | |
| NaHCO3 | Carl Roth, Karlsruhe, Germany | HN01.1 | |
| Taurine | Carl Roth, Karlsruhe, Germany | 4721.2 | |
| Dyes | |||
| Di-8-ANEPPS | Molecular Probes, Life Technologies, Darmstadt, Germany | D-3167 | Stockoplossing 2 mM in DMSO |
| Trypanblauw | Sigma-Aldrich, Munich, Germany | T8154 | Trypanblauw wordt voorzichtig 1:1 gemengd via tip-cut 1 ml plastic pipet met celsuspensie voorafgaand aan celtelling in Neubauer cytometer. |
| Langendorff Perfusie Setup | |||
| Circulatiethermostaat | Lauda, Lauda-Königshofen, Germany | Zie Louch et al. (JMCC 2011). Thermostaat en buffers in perfusieslang verwarmen tot 37 °C 15 min voor gebruik. | |
| Flexibele siliconen slang Tygon voor peristaltische pomp | VWR, Darmstadt, Germany | 224-2252 | Slang moet regelmatig worden vervangen. |
| Flexibele siliconen slang Tygon voor thermostaat | VWR, Darmstadt, Germany | 228-4340 | |
| Verwarmingsspiraal om perfusieslang | Rettberg, Göttingen, Germany | op maat | Verwarmingsspiraal en slang moeten na gebruik grondig worden gereinigd met MQ-water. Gebruik geen detergenten. Glascomponenten moeten regelmatig worden geweekt in 10 mM NaOH. |
| Peristaltische pomp | Ismatec, Wertheim, Germany | ISM830 | |
| Drieweg stopcock Discofix C Luer Lock 10 cm | Braun, Melsungen, Switzerland | 16500C | |
| Drieweg stopcock Discofix 3SC | Braun, Melsungen, Switzerland | 4095146 | |
| Instrumenten | |||
| 42 mm glazen dekglasjes | Menzel Gläser via Thermo Scientific, Schwerte, Germany | op aanvraag | 0,13-0,16 mm dikte |
| Canule 21 G | Becton, Dickinson and Company, Franklin Lake, NY, USA | 304432 | Op lengte van ~5 mm gesneden, ruw gemaakt met schuurpapier. |
| Dekglasjes voor Neubauer cytometer 24 x 24 mm | Menzel Gläser via Thermo Scientific, Schwerte, Germany | op aanvraag | 0,38-0,42 mm dikte |
| Graefe pincet, 0,5 mm tips, licht gebogen | Fine Science Tools, Heidelberg, Germany | 11151-10 | |
| LSM 710 NLO | Carl Zeiss, Jena, Germany | 63X 1,4 NA olie objectief | |
| Neubauer verbeterde cytometer | Labor Optik, Friedrichsdorf, Germany | 1100000 | Tellprocedure: Veeg cytometer en dekglas met de meetkamer met 70% ethanol. Druk het dekglas voorzichtig op de meetkamer zodat de twee glasoppervlakken in contact zijn en Newton's ringen kunnen worden waargenomen. Vervolgens kan 10-20 µl celsuspensie worden aangebracht op de rand van het dekglas om het door capillaire actie in het lege te zuigen. Tel de intacte versus defecte myocyten met behulp van de vierkantjes van het cytometer raster dat 100 nl reflecteert. Herhaal de telprocedure op het tweede raster dat op de cytometer wordt geleverd. Bereken de dichtheid van cellen in uw oorspronkelijke celsuspensie door rekening te houden met eventuele verdunnings- en telverkortingen. |
| POC-R2 Imaging Chamber | Pecon, Erbach, Germany | Celsuspensievolume: 800 µl; gewenste plateringdichtheid: ~1.000 AM en ~10.000 VM | |
| Verenschaar, 8 mm bladen recht, stomp | Fine Science Tools, Heidelberg, Germany | 15025-10 | |
| Student dumont #7 pincet, inox | Fine Science Tools, Heidelberg, Germany | 91197-00 | |
| Student iris schaar, gebogen, 11,5 cm | Fine Science Tools, Heidelberg, Germany | 91461-1 | |
Referenties
- Prosser, B. L., Ward, C. W., Lederer, W. J. Subcellular Ca2+ signaling in the heart the role of ryanodine receptor sensitivity. J Gen Physiol. 136 (2), 135-142 (2010).
- Wehrens, X. H., Lehnart, S. E., Marks, A. R. Intracellular calcium release and cardiac disease. Annu Rev Physiol. 67, 69-98 (2005).
- Cheng, H., Cannell, M. B., Lederer, W. J. Propagation of excitation-contraction coupling into ventricular myocytes. Pflugers Arch. 428 (3-4), 415-417 (1994).
- Williams, G. S., Chikando, A. C., Tuan, H. T., Sobie, E. A., Lederer, W. J., Jafri, M. S. Dynamics of calcium sparks and calcium leak in the heart. Biophys J. 101 (6), 1287-1296 (2011).
- Sperelakis, N., Rubio, R. orderly lattice of axial tubules which interconnect adjacent transverse tubules in guinea-pig ventricular myocardium. J Mol Cell Cardiol. 2 (3), 211-220 (1971).
- Soeller, C., Cannell, M. B. of the transverse tubular system in living cardiac rat myocytes by 2-photon microscopy and digital image-processing techniques. Circ Res. 84 (3), 266-275 (1999).
- Song, L. S., et al. et al. ryanodine receptors in the failing heart. Proc Natl Acad Sci USA. 103 (11), 4305-4310 (2006).
- Oort, R. J., et al. Disrupted junctional membrane complexes and hyperactive ryanodine receptors after acute junctophilin knockdown in mice. Circulation. 123 (9), 979-988 (2011).
- Wagner, E., et al. Stimulated emission depletion live-cell super-resolution imaging shows proliferative remodeling of T-tubule membrane structures after myocardial infarction. Circ Res. 111 (4), 402-414 (2012).
- Asghari, P., Schulson, M., Scriven, D. R., Martens, G., Moore, E. D. Axial tubules of rat ventricular myocytes form multiple junctions with the sarcoplasmic reticulum. Biophys J. 96 (11), 4651-4660 (2009).
- Lukyanenko, V., Ziman, A., Lukyanenko, A., Salnikov, V., Lederer, W. J. Functional groups of ryanodine receptors in rat ventricular cells. J Physiol. 583 (Pt 1), 251-269 (2007).
- Shacklock, P. S., Wier, W. G., Balke, C. W. Local Ca2+ transients (Ca2+ sparks) originate at transverse tubules in rat heart cells. J Physiol. 487 (Pt 3), 601-608 (1995).
- Reynolds, J. O., et al. Junctophilin-2 is necessary for T-tubule maturation during mouse heart development. Cardiovasc Res. 100 (1), 44-53 (2013).
- Di Maio, A., Karko, K., Snopko, R. M., Mejia-Alvarez, R., Franzini-Armstrong, C. T-tubule formation in cardiac myocytes two possible mechanisms. J Muscle Res Cell Motil. 28 (4-5), 231-241 (2007).
- He, J., et al. Reduction in density of transverse tubules and L-type Ca(2+) channels in canine tachycardia-induced heart failure. Cardiovasc Res. 49 (2), 298-307 (2001).
- Heinzel, F. R., et al. Remodeling of T-tubules and reduced synchrony of Ca2+ release in myocytes from chronically ischemic myocardium. Circ Res. 102 (3), 338-346 (2008).
- Lyon, A. R., et al. Loss of T-tubules and other changes to surface topography in ventricular myocytes from failing human and rat heart. Proc Natl Acad Sci USA. 106 (16), 6854-6859 (2009).
- Crossman, D. J., Ruygrok, P. N., Soeller, C., Cannell, M. B. Changes in the organization of excitation-contraction coupling structures in failing human heart. PLoS One. 6 (3), e17901(2011).
- Kemi, O. J., et al. The effect of exercise training on transverse tubules in normal, remodeled, and reverse remodeled hearts. J Cell Physiol. 226 (9), 2235-2243 (2011).
- Sachse, F. B., et al. Subcellular structures and function of myocytes impaired during heart failure are restored by cardiac resynchronization therapy. Circ Res. 110 (4), 588-597 (2012).
- Arakel, E. C., et al. Tuning the electrical properties of the heart by differential trafficking of KATP ion channel complexes. J Cell Sciences. 127 (Pt 9), 2106-2119 (2014).
- Richards, M. A., et al. Transverse tubules are a common feature in large mammalian atrial myocytes including human. Am J Physiol Heart Circ Physiol. 301 (5), H1996-H2005 (2011).
- Trafford, A. W., Clarke, J. D., Richards, M. A., Eisner, D. A., Dibb, K. M. Calcium signalling microdomains and the t-tubular system in atrial mycoytes potential roles in cardiac disease and arrhythmias. Cardiovasc Res. 98 (2), 192-203 (2013).
- Greiser, M., Schotten, U. Dynamic remodeling of intracellular Ca2+ signaling during atrial fibrillation. J Mol Cell Cardiol. 58, 134-142 (2013).
- Voigt, N., Zhou, X. B., Dobrev, D. Isolation of human atrial myocytes for simultaneous measurements of Ca2+ transients and membrane currents. J Vis Exp. (77), 10-3791 (2013).
- Kaestner, L., et al. Isolation and genetic manipulation of adult cardiac myocytes for confocal imaging. J Vis Exp. (31), (2009).
- Louch, W. E., Sheehan, K. A., Wolska, B. M. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 51 (3), 288-298 (2011).
- King, N. M., et al. Mouse intact cardiac myocyte mechanics cross-bridge and titin-based stress in unactivated cells. J Gen Physiol. 137 (1), 81-91 (2011).
- Schindelin, J., et al. Fiji, an open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Arganda-Carreras, I., Fernandez-Gonzalez, R., Munoz-Barrutia, A., Ortiz-De-Solorzano, C. 3D reconstruction of histological sections Application to mammary gland tissue. Microsc Res Tech. 73 (11), 1019-1029 (2010).
- Liu, Z. Q. Scale space approach to directional analysis of images. Appl Opt. 30 (11), 1369-1373 (1991).
- Powell, T., Twist, V. W. A rapid technique for the isolation and purification of adult cardiac muscle cells having respiratory control and a tolerance to calcium. Biochem Biophys Res Commun. 72 (1), 327-333 (1976).
- Watanabe, Y., et al. Inhibitory effect of 2,3-butanedione monoxime (BDM) on Na(+)/Ca(2+) exchange current in guinea-pig cardiac ventricular myocytes. Br J Pharmacol. 132 (6), 1317-1325 (2001).
- Kohl, T., Westphal, V., Hell, S. W., Lehnart, S. E. Superresolution microscopy in heart - cardiac nanoscopy. J Mol Cell Cardiol. 58, 13-21 (2013).
Herprints en machtigingen
