Een hele cel bioreporter test met Burkholderia sartisoli RP037-mChe is ontwikkeld om fracties van een organische verontreiniging (dwz fluoreen-) beschikbaar voor bacteriële degradatie na actief transport door mycelium overbruggen met lucht gevulde poriën in een water onverzadigd modelsysteem detecteren.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
A Whole Cell Bioreporter Aanpak Verkeer en biologische beschikbaarheid van organische stoffen te evalueren in Water Onverzadigde Systems
In dit artikel
Samenvatting
Samenvatting
De biologische beschikbaarheid van contaminanten is een voorwaarde voor hun effectieve biodegradatie in de bodem. De gemiddelde bulkconcentratie van een contaminant is echter geen geschikte maatstaf voor de beschikbaarheid ervan; de biologische beschikbaarheid hangt eerder af van de dynamische interactie van het potentiële massatransport (flux) van een verbinding naar een microbiële cel en de capaciteit van de laatste om de verbinding af te breken. In waterverzadigde delen van de bodem is aangetoond dat mycelia de beperkingen van de biologische beschikbaarheid kunnen overwinnen door organisch materiaal actief te transporteren en te mobiliseren over een afstand van centimeters. Terwijl de omvang van mycelia-gebaseerd transport gemakkelijk kan worden gekwantificeerd door chemische middelen, vereist verificatie van de beschikbaarheid van contaminanten voor bacteriële cellen een biologische methode. Om deze beperking aan te pakken, kozen we het PAK fluoreen (FLU) als modelverbinding en ontwikkelden een waterverzadigd modelmicrocosme dat een ruimtelijk gescheiden FLU-puntbron en de FLU-afbrekende bioreporterbacterie Burkholderia sartisoli RP037-mChe koppelt door een myceliale netwerk van Pythium ultimum. Aangezien de bioreporter eGFP tot expressie brengt als reactie op de PAK-flux naar de cel, kon de blootstelling van bacteriën aan FLU en de afbraak ervan direct in de microcosmen worden gemonitord via confocale laserscanningmicroscopie (CLSM). CLSM en beeldanalyses toonden een significante toename van de eGFP-expressie in aanwezigheid van P. ultimum in vergelijking met controles zonder mycelia of FLU, wat FLU-beschikbaarheid voor bacteriën aangeeft na transport door mycelia. De CLSM-resultaten werden ondersteund door chemische analyses in identieke microcosmen. Het ontwikkelde microcosme bleek geschikt om de beschikbaarheid van contaminanten te onderzoeken en tegelijkertijd de betrokken bacteriën-myceliale interacties te visualiseren.
Inleiding
Grond wordt dichtbevolkt door een groot aantal micro-organismen zoals bacteriën 1,2. Echter, omstandigheden in deze habitat zijn uitdagend, vooral in termen van de beschikbaarheid van water 3. Bacteriën permanent te zoeken naar optimale omstandigheden in heterogene omgevingen 4, maar de afwezigheid van continue water films resulteert in beperkte mobiliteit 5 belemmeren hen om vrij te verspreiden. Ook diffusiesnelheden van opgeloste stoffen (bijv nutriënten) verlaagd onder onverzadigde omstandigheden 6. Aldus bacteriën en voedingsstoffen worden vaak fysiek gescheiden en toegankelijkheid nutriënt beperkt 3. Bijgevolg kan een transport vector chemische verbindingen die een continue waterfase niet vereist helpen om deze beperkingen te overwinnen. In feite hebben vele micro- organismen zoals schimmels en Oomycetes een filamenteuze groeivorm waarmee zij groeien door met lucht gevulde poriën waardoor het bereiken mobi ontwikkeldlizing ook fysiek gescheiden voedingsstoffen 7 en 8 koolstofhoudende stoffen over lange afstanden. Ze kunnen zelfs fungeren als biologische vervoer vectoren die suikers en andere energiebronnen om bacteriën 9 leveren. Opname en transport in mycelium organismen is ook aangetoond voor hydrofobe organische verontreinigingen zoals polycyclische aromatische koolwaterstoffen (PAK's) in Pythium ultimum 10 of arbusculaire mycorrhiza 11. Aangezien PAK zijn alomtegenwoordig en slecht in water oplosbare verontreinigingen 12 in de bodem, zou-mycelium gemedieerd transport helpen om verontreiniging biobeschikbaarheid voor potentiële bacteriële afbrekers verhogen. Dat de totale hoeveelheid verontreinigingen transport direct kunnen worden met chemische middelen 10, biobeschikbaarheid van verontreinigingen met mycelia vervoerd afbrekende bacteriën en andere organismen kunnen niet gemakkelijk worden beoordeeld.
Het volgende protocol toont een werkwijze om de invloed van myce evaluerenlia op verontreiniging biobeschikbaarheid om bacteriële afbrekers op een directe manier; staat het verzamelen van informatie over de spatiotemporele invloed van verontreinigingen op de microbiële ecosystemen. We beschrijven hoe het opzetten van een uitgebreid onverzadigd microkosmos systeem nabootsen van lucht-water-interfaces in de bodem door het koppelen van een fysiek gescheiden PAK puntbron met PAK-afbrekende bioreporter bacteriën via mycelial vervoer vectoren. Omdat de lucht vervoer is uitgesloten, kan het effect van mycelium vervoer op basis van PAK biobeschikbaarheid voor bacteriën worden bestudeerd in een geïsoleerde manier. Meer in detail werden drierings PAK fluoreen, het mycelium organisme Pythium ultimum en bioreporter bacterie Burkholderia sartisoli RP037-mChe 13 toegepast in de beschreven microkosmos setups. De bacterie B. sartisoli RP037-mChe werd oorspronkelijk gebouwd om fenantreen stromen naar de cel 14 bestuderen en tot expressie versterkt groen fluorescent proteïne (eGFP) als gevolg van de PAH fluxde cel, terwijl de rode fluorescerende mCherry constitutief wordt uitgedrukt. Gedetailleerde informatie over de verslaggever bouw wordt gegeven door Tecon et al. 13 In voorproeven, de bacterie bleek geen zwemmen en slechts zeer langzaam zwermen vermogen. Het kon langzaam migreren op hyfen van Pythium ultimum wanneer toegepast als een dichte suspensie bovenop de hyfen. Aangezien bacteriën werden ingebed in agarose in het volgende protocol leverde migratie hyfen optreden.
Met behulp van confocale laser scanning microscopie (CLSM), kan de bioreporter bacteriën direct gevisualiseerd in de microkosmossen en expressie van eGFP kan worden gekwantificeerd in verhouding tot het aantal cellen (evenredig met de mCherry signaal) met behulp van de software ImageJ. Dit maakt vergelijking biobeschikbaarheid kwalitatief verschillende scenario (dwz hoger of lager). FLU werd gevonden biologisch beschikbaar na het mycelium vervoer door P. te zijn ultimum (dat wil zeggen, hethoger dan in een negatieve controle). Bovendien is het protocol wordt beschreven hoe u het totale bedrag van-mycelium gemedieerd transport via chemische middelen te kwantificeren en verontreiniging biologische beschikbaarheid controleren met behulp van silicium gecoate glasvezels (SPME vezels) in identieke microkosmos. Resultaten van deze microcosm ingesteld zijn gepubliceerd en besproken voor de combinatie van P. ultimum, fluoreen en B. sartisoli RP037-mChe 15. Hier ligt de focus op een gedetailleerde beschrijving methode en de identificatie van mogelijke valkuilen van het protocol bij deze kennis bieden voor mogelijke verdere toepassingen. Verdere toepassingen kunnen diverse schimmels, bacteriële soorten (bijvoorbeeld van verontreinigde locaties) te betrekken, en andere verontreinigingen (bijvoorbeeld pesticiden) of verontreiniging-aanbod (bv leeftijd bodems).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. Voorbereiding van de gerechten, dia's en Incubation Chambers
- Bereid het volgende materiaal voor elke microkosmos: één grote plastic petrischaal bodem (d = 10 cm), een gewijzigd (zie stap 1.2) kleine plastic petrischaal bodem (d = 5 cm) met deksels en een telkamer glijbaan met drie gaatjes.
- Neem het gewenste aantal petrischaal onderste delen (d = 5 cm). Verwijder een deel van de rand met een zaag precies past een dia (26 mm rand lengte). Om het systeem te steriliseren, geniet petrischaal bodems en deksels in 70% ethanol O / N en drogen gedurende minstens 2 uur in een flowkast onder UV-licht. Bewaar de petrischalen in een goed afgesloten plastic container, die tevens waren blootgesteld aan UV-licht gedurende 2 uur.
- Veeg het gewenste aantal dia's met 70% ethanol en air-droog ze. Wikkel dia's in aluminiumfolie en leg ze in een moffeloven gedurende 5 uur bij 450 ° C om eventuele verontreinigingen te verwijderen.
- Bereid glas incubatie kamers met deksels. Reinigen met 70% ethanol en een open kamers blootstellen aan UV-licht gedurende minstens 2 uur in een stroom kast.
OPMERKING: Large exsiccatoren (diameter ongeveer 30 cm) met een deksel kan worden gebruikt voor dit doel; elke exsiccator kan huis tot tien microkosmos setups.
2. Voorbereiding van Media en Cultuur
- Aan 20 parallel microkosmossen werking verkrijgen 100 ml gemodificeerde trypton gist medium (MTY) 14 150 ml 21C minimaal medium 16 (MM), 5 ml minimaal medium agar (MMA, 0.5%, w / v), drie aardappel dextrose agar platen (PDA, 1,5% w / v) voor P. ultimum, vier lege platen, een PDA plaat met 2 mg L -1 cycloheximide, vier agarose platen (3% w / v) die 0,3 ml -1 g actieve kool en 40 mg FLU in 2 mg porties.
- Bereid MTY met 50 mg L -1 van kanamycine (kanamycine is required het eGFP reporterplasmide) en MM dat 10 mM acetaat voor bacteriële kweek behouden. Gebruik MM zonder acetaat voorbereiden 0,5% MMA voor de immobilisatie van bacteriën in de microkosmossen en giet platen (elk 20 ml) van 1,5% PDA teelt van Pythium ultimum en microkosmos opstellingen.
- Te enten sommige hyfen van P. ultimum drie verse PDA platen en incubeer in het donker bij 25 ° C gedurende ongeveer 72 uur. Zorgen dan dat de platen zijn overwoekerd volledig door verse en pluizige mycelium.
- Start twee culturen van B. sartisoli RP037-mChe in 50 ml Mty uit een glycerol voorraad. Incubeer bij 30 ° C met 230 rpm roterende kolf beweging O / N.
- Meet cultuur optische dichtheid (OD) bij 578 nm en centrifugeer bij 1000 xg gedurende 10 min (voor B. sartisoli RP037-mChe, de verwachte OD 578 is ongeveer 1,0 en cellen in exponentiële fase). Gooi supernatant en resuspendeer de celleneen geschikte hoeveelheid MM om een OD 578 van 0,4 te bereiken. Inoculeer 20 ml MM dat 50 mg L -1 kanamycine met 400 ul van de geresuspendeerde cellen. Incubeer bij 30 ° C met 230 rpm roterende kolf beweging O / N.
- Meet OD 578 van de cultuur in MM (voor B. sartisoli RP037-mChe, de verwachte OD 578 is ongeveer 0,2 en cellen zijn in het begin van exponentiële fase). Centrifugeer kweken bij 2000 xg gedurende 10 min en resuspendeer de cellen in een geschikte hoeveelheid van MM om een OD van 0,4 te bereiken. Meng 50 pi van de celsuspensie met 500 pl warm, vloeibaar MMA in 2 ml buizen en opslag bij 50 ° C tot gebruik. Gebruik 150 ul cellen in MMA per microkosmos.
- Giet platen agarose gel met actieve kool. Smelt agarose (3%, w / v) met tweemaal gedestilleerd water. Meng grondig met actieve kool (0,3 g ml -1) en giet het mengsel in plastic petrischaaltjes(D = 10 cm).
3. microkosmos Montage
Opmerking. Het volledige microcosm setup is schematisch weergegeven in figuur 1, zie figuur 1 voor volgende stappen. De volgende stappen beschrijven de bereiding van een monster (SAM) met mycelium transport vectoren en drie verschillende control instellingen (CON AIR CON NEG, CON POS). Een overzicht van alle verschillende setups zijn te vinden in tabel 1.
- Neem gewenste aantal petrischalen en dia's en hen blootstellen aan UV-licht onder een stroom kast voor 30 min.
- Plaats de kleine petrischaal in de grote en past de dia door de opening van de kleine petrischaal. Neem een monster van de warme celsuspensie in MMA en voeg 150 ul in de middelste holte van een glijbaan. Herhaal deze stap totdat het midden holten van alle dia's zijngevuld met MMA. Wacht 5 minuten voor MMA stollen.
- Gebruik een 1 cm kurkboor om punch-out ronde patches van een lege PDA plaat. Plaats een pleister op een afstand van 2 mm naast het MMA in de kleine petrischaal. Voeg dit myceliumgroei in de setup (PDA 3 in figuur 1) te bevorderen.
- Snijd gebogen PDA patches mechanische barrières. Gebruik een schone en steriele kleine petrischaal onderste deel en druk het in een PDA plaat. Gebruik een spatel om een kleinere ring gesneden op een afstand van 0,5 cm in de agar waardoor een PDA-ring.
- Snijd een stuk, die precies past in de opening van de kleine petrischaal in de microkosmos setup en plaats deze in het gat boven op de slede. Controleer of de afstand tussen MMA en de ronde PDA barrière ongeveer 2 mm. Sluit het deksel van de kleine petrischaal voorzichtig drukken in de PDA barrière.
- Herhaal de stappen 3.4 en 3.4.1 met een PDA plaat met 2 gram L -1cycloheximide.
LET OP: Dit is de controle setup voor lucht transport (CON AIR) naar de bioreporter cellen, omdat mycelium worden geremd door cycloheximide en niet overwoekeren MMA.
- Gebruik een 1 cm kurkboor om punch-out ronde vlekken van een lege PDA plaat. Gebruik een andere 0,5 cm kurkboor te snijden uit het midden van de eerste patch. Plaats de resulterende kleine PDA-ring op een afstand van 1 mm naast de barrière PDA (PDA 1 in Figuur 1).
- Voeg 2 mg GRIEP in het gat van de PDA 1. Gebruik een 1 cm kurkboor uit te snijden ronde patches van PDA-platen begroeid met P. ultimum en plaats een patch (PDA 2 in figuur 1) onderkant naar beneden op de PDA ring zodat het mycelium mat wordt geconfronteerd met de FLU kristallen.
- Herhaal de vorige stap zonder FLU kristallen toe te voegen.
LET OP: Dit is de negatieve controle setup (CON NEG) naar de achtergrond te bepalenfluorescentie van bioreporter cellen.
- Herhaal de vorige stap zonder FLU kristallen toe te voegen.
- Gebruik een 1 cm kurkboor om punch-out ronde patches van de agar met actieve kool. Plaats vier plekken in elke microkosmos setup om de gasvormige FLU concentratie (Figuur 1) verder te verlagen.
- Bereid een positieve controle (CON POS). Voeg wat FLU kristallen tot 200 ul van MMA celsuspensie en zet het in een holte van een lege dia.
- Plaats een petrischaal (d = 10 cm) met een aantal poeder van actieve kool op de bodem van de incubatiekamer gasvormig FLU concentratie in de kamer te minimaliseren. Plaats bovendien 04:56 50 ml bekers met steriel water op de bodem te hoge luchtvochtigheid in de kamer te handhaven.
- Overdracht microcosm opstellingen in incubatie kamers en incubeer bij 25 ° C gedurende 96 uur. Leg monsters willekeurig in de verschillende groeikamers om locatie-effecten uit te sluiten.
LET OP: Deze incubatietijd aplagen de oomyceet P. ultimum. Het kan verschillend zijn voor andere organismen.
- Overdracht microcosm opstellingen in incubatie kamers en incubeer bij 25 ° C gedurende 96 uur. Leg monsters willekeurig in de verschillende groeikamers om locatie-effecten uit te sluiten.
4. confocale laser scanning microscopie
- Idealiter gebruik een CLSM setup met rechtopstaande microscoop.
NB: Het kan worden uitgerust met conventionele lasers aanbieden bv 488, 561 en 633 nm lijnen voor excitatie of met een regelbaar wit laserbron. - Gebruik de volgende instellingen voor het verzamelen van beelden: excitatie: 490 nm (eGFP) en 585 nm (mCherry) op de juiste laserintensiteit (gelijktijdige excitatie); emissie bereik: 500-550 nm (eGFP) en 605-650 nm (mCherry); objectief lens: 63x NA 0,9 water dompelpompen (wegens zijn lange werkafstand); stapgrootte voor z-stacks: 0,5 urn.
- Open microkosmos setup en gebruik een scalpel om PDA 1, 2, 3 en de PDA barrière te verwijderen. Zet een glazen deksel slip op de top van de MMA en druk deze voorzichtig om luchtbellen te verwijderen. Mount dia op microscoop podium. Voeg een druppel water op de top van the dekglas en gebruik mCherry instellingen bioreporter cellen in het monster te vinden.
- Hier krijg je een snel overzicht van het monster en de signaal-ruisverhouding te optimaliseren met behulp van een gloed-over-under opzoektabel voor rood (mCherry) en groen (eGFP) kanaal. Kies een willekeurige positie op de steekproef naar bioreporter fluorescentie analyseren.
OPMERKING: hyfen kunnen autofluorescentie vertonen in het traject van bioreporter emissie (bijvoorbeeld groen autofluorescentie) 17. Zorg ervoor dat u gebieden selecteren zonder schimmeldraden als dit het geval is. - Definiëren en op te nemen z-stacks voor elke positie in de groene (eGFP) en de rode (mCherry) kanaal. Vermijd bleken van het monster door langdurige blootstelling aan epifluorescentie licht of laserlicht.
- Herhaal de vorige stap voor tien willekeurig, gelijkmatig verdeeld posities.
- Herhaal alle stappen met dezelfde instellingen voor alle monsters van de testbaan (SAM), Con Air, CON NEG en CON POS.
5. Image Analysis
OPMERKING: Om rode (mCherry) en groen (eGFP) fluorescentie analyseren in de z-stacks opgenomen, onder andere opties de gratis software ImageJ 18 (http://rsb.info.nih.gov/ij/download.html) kan zijn gebruikt.
- Zorg ervoor dat u de logi_tool plugin (http://downloads.openmicroscopy.org/bio-formats/4.4.10/) te installeren.
- Open het bestand in ImageJ. Selecteer "split-kanalen" en dicht groene kanaal. Gebruik de macro 'mCherry gebied' verstrekt als aanvullende code bestand op gebied van rode fluorescentie te kwantificeren in z-stack. Pas de gewenste instellingen in de macro (vetgedrukt).
- Uitgang is een tafel met de gemeten pixels boven de drempel (en boven de gedefinieerde minimale grootte) in z-stack.
OPMERKING: De som van alle waarden is het totaal aantal rode pixels (gebied) in de stapel.
- Uitgang is een tafel met de gemeten pixels boven de drempel (en boven de gedefinieerde minimale grootte) in z-stack.
- Open het bestand in ImageJ. Selecteer "split-kanalen" en dicht rode kanaal. Gebruik de macro 216; eGFP int 'verstrekt als aanvullende code bestand naar intensiteit van de groene fluorescentie te kwantificeren in z-stack. Pas de gewenste instellingen in de macro (vetgedrukt).
- Uitgang is een tabel met de gemiddelde intensiteiten en de oppervlakte van alle groene objecten boven de drempel (en boven de gedefinieerde minimale grootte) in z-stack. Om de totale intensiteit van de groene pixels te berekenen in de stapel, vermenigvuldig elke gemiddelde intensiteit van het overeenkomstige gebied.
- Bereken de relatieve eGFP inductie (eGFP rel):
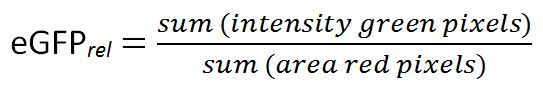 (1)
OPMERKING: Aangezien mCherry constitutief tot expressie wordt gebracht, de resulterende waarde van eGFP rel is een relatieve maat voor de hoeveelheid eGFP een bepaalde hoeveelheid cellen uitgedrukt. Zie ook tabel 3 voor meer informatie over de berekening van eGFP rel.
OPMERKING: Microcosm opstellingen kunnen ook worden gebruikt om de chemische kwantificering van translocatie FLU bedragen met of zonder abiotische verontreiniging wastafel voeren.
- Wikkel 15 ml glazen flesjes, 1 ml GC / MS flesjes en inzetstukken in aluminiumfolie. Vul verdampen gerechten met Na 2 SO 4; eerst alle in moffeloven gedurende 5 uur bij 450 ° C om eventuele verontreinigingen te verwijderen. Bewaar de Na 2 SO 4 binnenkant van een geactiveerde exsiccator.
- Snijd PDMS gecoate glasvezels in 0,5 cm lengte. Was vezels door schudden vier keer 2 uur in verse methanol. Herhaal het wassen van de stappen nog eens vier keer met ultrapuur water en winkel schoon vezels in ultrapuur water in een afgesloten glazen flesje.
- Bereid 1,5 liter tolueen / aceton (3: 1, v / v) bevattende 10 ug L -1 fenantreen-10 d.
- Voer stappen 1, 2 en 3 van het protocol. Bereid microkosmossen zonder bior(-) en Con Air (- SAM ()) eporter cellen om FLU transport te bestuderen en met bioreporter cellen (SAM) om FLU degradatie te controleren.
- Optioneel (zonder bioreporter cellen): Plaats drie PDMS gecoate glasvezels (meestal gebruikt voor SPME experimenten) als kunstmatige en kwantificeerbare verontreiniging gootsteen binnen MMA van SAM (-) met behulp van fijne pincet.
- Verwijder glasvezels met behulp van fijne pincet en breng een ieder in een GC / MS flacon met insert.
- Voeg 200 ul van tolueen en schud verticaal O / N en analyseren via GC / MS. Gebruik de instellingen in Tabel 2.
- Transfer MMA uit het midden holte in een 15 ml glazen flesje en voeg ongeveer drie spatels van Na 2 SO 4. Meng goed met een spatel en voeg 10 ml oplosmiddel. Vortex het mengsel en schud horizontaal O / N in het donker.
- Breng 1001; l van het monster in GC / MS flacon met insert. Voeg 10 ul van acenaftyleen-d 08 (10 mg L-1) en geanalyseerd via GC / MS met hetzelfde programma als beschreven in 6.4.3.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
De hier gepresenteerde resultaten zijn reeds eerder 15 gepubliceerd. Verwijzen wij u naar het artikel voor gedetailleerde mechanistische en milieu-discussie.
Na beeldopname via CLSM kan een maximum intensiteitsprojectie worden uitgevoerd met respectieve microscoop software of ImageJ een eerste visuele indruk van het monster en de controles (figuur 2) te verkrijgen. Later kunnen de gegevens anders worden geprojecteerd om betekenisvolle eigenschappen specifieke visu...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
De gepresenteerde microkosmos setup geschikt gebleken om de biologische beschikbaarheid van ruimtelijk gescheiden chemicaliën studeren aan een vernederende organismen na opname en transport door mycelium. Potentiële gasfase vervoer van gedeeltelijk vluchtige verbindingen wordt voorkomen en bacteriële bioreporter cellen kunnen worden gevisualiseerd zonder uitgebreide monstervoorbereiding en dus met een minimale verstoring van de gevoelige systeem. Tegelijkertijd, kan chemische analyse van het monster gemakkelijk worden u...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs verklaren dat ze geen concurrerende financiële belangen hebben.
Dankbetuigingen
De financiering door de Duitse Milieu Stichting (DBU) wordt op prijs gesteld. De auteurs danken Ute Kuhlicke voor technische hulp met CLSM-analyse en Birgit Würz, Rita Remer en Jana Reichenbach voor bekwame experimentele hulp. De auteurs willen in het bijzonder Prof. Jan Roelof van der Meer en Dr. Robin Tecon bedanken voor de vruchtbare discussie en het verstrekken van de bioreporterstam. Het draagt bij aan het onderzoeksprogramma 'Chemicaliën in het milieu' (CITE) van de Helmholtz Association.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Confocal Microscope | Leica | TCS SP5X, LAS AF - Version 2.6.1; or equivalent CLSM | |
| GC HP 7890 Series GC and Agilent 5975C MSD | Agilent | an equivalent GC/MS may be used | |
| GC capillary column J&W 121-5522 | Agilent | ||
| Cork borer | Fisher Scientific | 12863952 | or any other |
| Cover slips | Marienfeld | 107222 | High performance, No.1.5H |
| GC/MS insterts | WICOM | WIC 47080 | |
| GC/MS vials 2 ml | WICOM | WIC 41150 | |
| Lids / septa for screw cap vials | DIONEX | 49463 / 049464 | |
| Lids for GC/MS vials | WICOM | WIC 43948/B | |
| Objective Slides | Menzel | ordinary | |
| PDMS coated glass fibers | Polymicro Technologies, Inc. | V (PDMS) = 13.55 ± 0.02 µl m-1 | |
| Petri Dishes small / big | Greiner | 633-102 / 628-102 | |
| Screw cap vials 40 ml | DIONEX | 48783 | other glass vials may be used |
| Screw cap vials 60 ml | DIONEX | 48784 | other glass vials may be used |
| Acenaphthylene d08 | Dr. Ehrenstorfer | C 20510100 | |
| Acetone | Carl Roth | 9372.2 | |
| Activated carbon | Sigma-Aldrich | 242276-1kg | |
| Agarose | Carl Roth | 2267.4 | |
| Fluorene | Fluka | 46880 | |
| Kanamycin sulfate | Carl Roth | T832.2 | 50 mg L-1 |
| Methanol | Carl Roth | P7171 | |
| Minimal Medium: 100 ml Solution 1 + 25 ml Solution 2 + 5 ml Solution 3 ad. 1,000 ml aqua dest | |||
| Solution 1 | |||
| Ammonium sulfate | Carl Roth | 3746.1 | 5 g L-1 |
| Magnesium chloride x 6 H2O | Carl Roth | 2189.1 | 1 g L-1 |
| Calcium nitrate x 4 H2O | Carl Roth | P740.1 | 0.5 g L-1 |
| Solution 2 | |||
| Disodium phosphate | Carl Roth | P030.1 | 55.83 g L-1 |
| Monopotassium phosphate | Carl Roth | 3904.1 | 20 g L-1 |
| Solution 3 (pH 6.0) | |||
| Disodium EDTA | MERCK | 1084180250 | 0.8 g L-1 |
| Iron(II) chloride x 4 H2O | MERCK | 1038610250 | 0.3 g L-1 |
| Cobalt(II) chloride x 6 H2O | Carl Roth | T889.3 | 4 mg L-1 |
| Manganese(II) chloride x 1 H2O | Carl Roth | 4320.2 | 10 mg L-1 |
| Copper(II) sulfate | Carl Roth | P023.1 | 1 mg L-1 |
| Sodium molybdate x 2 H2O | Carl Roth | 0274.1 | 3 mg L-1 |
| Zinc chloride | MERCK | 1088160250 | 2 mg L-1 |
| Lithium chloride | Carl Roth | P007.1 | 0.5 mg L-1 |
| Tin(II) chloride x 2 H2O | Carl Roth | 4473.1 | 0.5 mg L-1 |
| Boric acid | Riedel-de-Haen | 11606 | 1 mg L-1 |
| Potassium bromide | Carl Roth | A137.1 | 2 mg L-1 |
| Potassium iodide | Carl Roth | 6750.1 | 2 mg L-1 |
| Barium chloride | Carl Roth | 4453.1 | 0.5 mg L-1 |
| MMA | Minimal medium + agarose 0.2% | ||
| Phenanthrene d10 | Dr. Ehrenstorfer | C 20920100 | |
| Potato Dextrose Agar: 24 g L-1 broth + bacto-agar 1.5%; pH 6.8 | |||
| Potato Dextrose broth | Difco/ Beckton Dickinson | 254920 | |
| Bacto-agar | Difco/ Beckton Dickinson | 214040 | |
| Sodium acetate x 3 hydr. | Carl Roth | 6779.1 | |
| Sodium sulfate | MERCK | 1066495000 | |
| Toluene | MERCK | 1083252500 | |
| mTY medium: 3 g L-1 yeast extract, 5 g L-1 bacto tryptone and 50 mM NaCl | |||
| Yeast extract | Merck | 1037530500 | |
| Tryptone | Serva | 4864702 | |
Referenties
- Holden, P. A., Fierer, N. Microbial processes in the vadose zone. Vadose Zone Journal. 4, 1-21 (2005).
- Whitman, W. B., Coleman, D. C., Wiebe, W. J. Prokaryotes: The unseen majority. Proceedings of the National Academy of Sciences. 95, 6578-6583 (1998).
- Kieft, T. L., et al. Microbial abundance and activities in relation to water potential in the vadose zones of arid and semiarid sites. Microbial ecology. 26, 59-78 (1993).
- Wang, G., Or, D. Aqueous films limit bacterial cell motility and colony expansion on partially saturated rough surfaces. Environ. Microbiol. 12, 1363-1373 (2010).
- Griffin, D. M. Water Potential Relations in Soil Microbiology SSSA Special Publication. Parr, J. F., Gardner, W. R., Elliott, L. F. , Soil Science Society of America. 141-151 (1981).
- Papendick, R. I., Camprell, G. S. Water Potential Relations in Soil Microbiology SSSA Special Publication. Parr, J. F., Gardner, W. R., Elliott, L. F. , Soil Science Society of America. 1-22 (1981).
- Boswell, G. P., Jacobs, H., Davidson, F. A., Gadd, G. M., Ritz, K. Functional consequences of nutrient translocation in mycelial fungi. J. Theor. Biol. 217, 459-477 (2002).
- Jennings, D. H. Translocation of solutes in fungi. Biol. Rev. Camb. Philos. Soc. 62, 215-243 (1987).
- Bais, H. P., Weir, T. L., Perry, L. G., Gilroy, S., Vivanco, J. M. The role of root exudates in rhizosphere interactions with plants and other organisms. Annu. Rev. Plant Biol. 57, 233-266 (2006).
- Furuno, S., et al. Mycelia promote active transport and spatial dispersion of polycyclic aromatic hydrocarbons. Environ. Sci. Technol. 46, 5463-5470 (2012).
- Gao, Y., Cheng, Z., Ling, W., Huang, J. Arbuscular mycorrhizal fungal hyphae contribute to the uptake of polycyclic aromatic hydrocarbons by plant roots. Bioresour. Technol. 101, 6895-6901 (2010).
- Semple, K. T., Morriss, A. W. J., Paton, G. I. Bioavailability of hydrophobic organic contaminants in soils: fundamental concepts and techniques for analysis. Eur. J. Soil. Sci. 54, 809-818 (2003).
- Tecon, R., Binggeli, O., vander Meer, J. R. Double-tagged fluorescent bacterial bioreporter for the study of polycyclic aromatic hydrocarbon diffusion and bioavailability. Environ. Microbiol. 11, 2271-2283 (2009).
- Tecon, R., Wells, M., vander Meer, J. R. A new green fluorescent protein-based bacterial biosensor for analysing phenanthrene fluxes. Environ. Microbiol. 8, 697-708 (2006).
- Schamfuss, S., et al. Impact of mycelia on the accessibility of fluorene to PAH-degrading bacteria. Environ. Sci. Technol. 47, 6908-6915 (2013).
- Smibert, R. M., Krieg, R. M., et al. Manual of methods for general bacteriology. Gerhardt, P., Murray, R. G. E., Costilow, R. N., Nester, E. W., Wood, W. A., Krieg, N. R., Phillips, G. B. 19, American Society for Microbiology. Washington, D.C. 409-443 (1981).
- Wu, C. H., Warren, H. L. Natural autofluorescence in fungi and its correlation with viability. Mycologia. 76, 1049-1058 (1984).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat. Methods. 9, 671-675 (2012).
- Pedersen, C., Sylvia, D. Ch. 8 Concepts in Mycorrhizal Research. Handbook of Vegetation Science. Mukerji, K. G. Vol. 19, Springer. Netherlands. 195-222 (1996).
- Furuno, S., et al. Fungal mycelia allow chemotactic dispersal of polycyclic aromatic hydrocarbon-degrading bacteria in water-unsaturated systems. Environ. Microbiol. 12, 1391-1398 (2010).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
