Dit protocol beschrijft NAME, een test die de snelle identificatie mogelijk maakt van moleculen die in vitro de chaperona-activiteiten van het HIV-1 nucleocapside-eiwit kunnen remmen.
Methodenartikel
Nucleocapsid Annealing-Mediated Elektroforese (NAAM) Assay Hiermee kan de snelle identificatie van HIV-1 nucleocapsid Remmers
In dit artikel
Samenvatting
Samenvatting
RNA of DNA gevouwen stabiele driedimensionale vouwing interessant doelen in de ontwikkeling van antitumor en antivirale geneesmiddelen. In het geval van HIV-1 virale eiwitten betrokken bij de regulatie van de virusactiviteit herkennen verschillende nucleïnezuren. De nucleocapside eiwit NCp7 (NC) is een belangrijk eiwit reguleren van verschillende processen tijdens virus replicatie. NC is in feite een chaperone destabiliseren van de secundaire structuur van RNA en DNA en de annealing vergemakkelijken. De inactivatie van NC is een nieuwe benadering en een interessant doelwit voor anti-HIV therapie. De N ucleocapsid Een nnealing- M ediated E lectrophoresis (NAAM) test is ontwikkeld om moleculen in staat om het smelten en gloeien van RNA en DNA opgevouwen in thermodynamisch stabiel tridimensional conformaties, zoals haarspeldstructuren van TAR en cTAR elementen van hiv remmen te identificeren, door het nucleocapside-eiwit van HIV-1. De nieuwe test maakt de heroverdrachtCombinant of synthetische eiwitten en oligonucleotiden zonder hun vroegere labeling. De analyse van de resultaten wordt bereikt met standaard polyacrylamide gelelektroforese (PAGE) gevolgd door gebruikelijke nucleïnezuur kleuring. Het protocol gemeld in dit werk wordt beschreven hoe u de naam test met de volledige lengte eiwit of haar ingekorte versie ontbreekt de basis-N-terminale domein uit te voeren, zowel bevoegde als nucleïnezuren chaperones, en hoe de remming van NC chaperone activiteit beoordelen door een threading intercalator. Bovendien kunnen NAME in twee verschillende modi, relevante indicaties over de vermeende werkingsmechanisme van de geïdentificeerde NC remmers verkrijgen.
Inleiding
Het nucleocapside eiwit NCp7 (NC) van humaan immunodeficiëntievirus type 1 (HIV-1) is een klein, basisch eiwit dat nauw geassocieerd is met genomisch RNA in het rijpe infectueuze virus, spelen een sleutelrol bij virusreplicatie als cofactor tijdens reverse transcriptie , genoom herkenning en verpakking. 1-3 NC fungeert als een nucleïnezuur chaperone katalyseert de destabilisatie van stabiele nucleinezuurstructuren en de annealing van complementaire sequenties. Het nucleïnezuur aggregerende activiteit voornamelijk bij de 11 aminozuren N-terminale domein, terwijl de duplex destabiliserende activiteit is toegewezen aan de zinkvinger structuren (12-55 peptide). 4. De positief geladen eiwit verlaagt de elektrostatische barrière van de annealing reactie en verhoogt de snelheid waarmee twee gescheiden complementaire sequenties samenkomen.
Nucleïnezuren gevouwen stabiele conformatie vereisen chaperon activiteiten van NC naar facilitate hun annealing 5 Dit is vooral belangrijk in reverse transcriptie, waarbij NC is cruciaal strand transfer gebeurtenissen. in de negatieve streng overdracht, de negatieve streng DNA halte, net retrotranscribed moeten worden overgebracht en gehybridiseerd aan een complementaire sequentie in het gebied R aan het 3 'uiteinde van het RNA-genoom template. 6 Hoewel thermodynamisch begunstigd deze reactie niet extensief voorkomt in afwezigheid van NC door de aanwezigheid van de stabiele structuur van de trans- activatie responsieve gebied (TAR) RNA in de R's, die moeten worden gekoppeld aan de DNA kopie (cTAR DNA). 7 cTAR en TAR zijn in feite zeer gestructureerd gebieden met een karakteristieke stamlus conformatie. NC eiwit denatureert deze haarspelden en minus-streng overdracht door het verhogen van de intermoleculaire hybridisatie tussen complementaire nucleïnezuurstrengen bevordert. Het mechanisme van NC gloeien van TAR en cTAR is grondig onderzocht en debeschreven als TAR gloeien test in verschillende research papers en de voorgestelde regeling is afgebeeld in uitstekende recensies. 8-11 Samenvattend, NC destabiliseert de secundaire structuur van stabiele RNA zoals TAR-RNA, destabiliseert de secundaire structuur van zijn complementaire sequentie, cTAR-DNA en bevordert de annealing reactie van RNA / DNA leidt TAR / cTAR heteroduplex vorming. 10,11 Hierdoor wordt de streng-overdracht stap tijdens de HIV replicatie begunstigd. 12
NC is een aantrekkelijk doelwit voor de ontwikkeling van nieuwe antivirale middelen aangezien de mogelijke interferentie veroorzaakt door kleine moleculen naar NC zou leiden tot een verlaging van de reverse transcriptie van het virale genoom als gevolg van een gecompromitteerde NC activiteit. 2,13 deze benadering uiteindelijk leiden tot de ontwikkeling van succesvolle anti-HIV-middelen. Tijdens gescreend NC remmers 14 we een test vertrouwen op de bekende eigenschappen ontwikkeldvan nucléocapside om efficiënt te destabiliseren en gloeien complementaire oligonucleotiden. 10,11 We noemden het N ucleocapsid Een nnealing- M ediated E lectrophoresis (NAAM) test. NAME assay gebruikt NC de annealing tussen stabiel gestructureerd exemplaren van complementaire nucleïnezuren bemiddelen, in ons geval het oligonucleotide overeenkomend met het apicale deel van een TAR-RNA-sequentie met de complementaire DNA-sequentie (cTAR) de hybride TAR / cTAR verkregen heteroduplex . De analyse van de TAR / cTAR gloeien reactie in aanwezigheid van NC kan worden onderzocht door native polyacrylamide gelelektroforese (PAGE).
Dit protocol laat zien hoe de NAME assay snel hybridiseren bij kamertemperatuur oligonucleotiden gevouwen stabiele haarspeldstructuren voeren, waarop resultaten van de reactie en mogelijke problemen van het experiment geanalyseerd. Radioactieve labeling van het nucleïnezuur is niet vereist, en detectibetreffende oligonucleotide banden kan worden uitgevoerd met gebruikelijke kleuringen. De test, die ofwel de recombinant eiwit van volledige lengte of afgeknotte synthetische versie van NC werken, maakt de identificatie van schroefdraad intercalatoren remmen NC, een activiteit correleert met de sterke binding aan RNA en DNA. 14
Protocol
1. Bereiding van materiaal, nucleïnezuren en eiwitten
- Nucleic Acids
- Autoclaaf de 1,5 ml buizen en bewaar ze in een steriele container. Voeren elke stap met steriele filter tips om te elimineren vervuilende agentia dwz nucleases uit laboratorium verbruiksartikelen.
- Bereid Tris-HCl 10 mM buffer pH 7,5 in DEPC-behandeld water en filtreer de oplossing met een 0,22 urn poriegrootte.
- OPMERKING: De oligonucleotide genaamd "TAR" correspondeert met de korte (29-mer) RNA sequentie 5'-GGCAGAUCUGAGCCUGGGAGCUCUCUGCC-3 '15, terwijl cTAR is zijn DNA complementaire sequentie 5'-GGCAGAGAGCTCCCAGGCTCAGATCTGCC-3'.
- Oplosbaar te maken zowel TAR en cTAR in de Tris buffer bovengenoemde (1.1.2.) Tot 100 uM voorraad oplossingen te maken. WINKEL cTAR stockoplossing bij -20 ° C (monsters worden bewaard maanden onder deze omstandigheden). Voor de lange termijn opslag van RNA, maken 20 pl fracties van de TARstock oplossing, drogen elk aliquot met een vacuümconcentrator centrifuge en bewaar ze bij -80 ° C. Vers voor het gebruik, resuspendeer elke TAR hoeveelheid wordt in 20 ul-DEPC behandeld water.
OPMERKING: Working TAR monsters kunnen worden opgeslagen bij -20 ° C gedurende twee weken.
- Oplosbaar te maken zowel TAR en cTAR in de Tris buffer bovengenoemde (1.1.2.) Tot 100 uM voorraad oplossingen te maken. WINKEL cTAR stockoplossing bij -20 ° C (monsters worden bewaard maanden onder deze omstandigheden). Voor de lange termijn opslag van RNA, maken 20 pl fracties van de TARstock oplossing, drogen elk aliquot met een vacuümconcentrator centrifuge en bewaar ze bij -80 ° C. Vers voor het gebruik, resuspendeer elke TAR hoeveelheid wordt in 20 ul-DEPC behandeld water.
- NC eiwit en (12-55) NC peptide
- Bereid de volledige lengte recombinant NC eiwit gerapporteerd. 16 Bewaar de voorraadoplossing in aliquots bij -20 ° C. Bepaal de exacte eiwitconcentratie met een UV-Vis spectrofotometer met behulp van een extinctiecoëfficiënt bij 280 nm van 6410 M -1 cm -1.
- Resuspendeer de synthetische (12-55) NC peptide in Tris-HCl 10 mM pH 7,5 en bewaar de voorraadoplossing in aliquots bij -20 ° C. Bepaal de juiste peptide concentratie op een UV-Vis spectrofotometer met behulp van een extinctiecoëfficiënt bij 280 nm van 5.700 M -1 cm -1.
OPMERKING: De (12-55) NC peptide werd verkregen HPLC gezuiverd en lyophilized uit een oplossing met twee equivalenten Zinkchloride.
- Verbinding 1
- Weeg ongeveer 1 mg van de gevriesdroogde verbinding 1 met een analytische balans en oplossen in 100 ul 100% DMSO, opportunely gewogen, een hoge concentratie (≈10 mmol) voorraadoplossing te verkrijgen. Bepaal de exacte concentratie van de verbinding op een UV-Vis spectrofotometer met behulp van de extinctiecoëfficiënt (bij 354 nm: 11.387 M -1 cm -1). Bewaar de voorraadoplossing in het donker bij -20 ° C vóór gebruik.
2. Het opzetten van Gel Apparaten en Gieten van het Gel
- Voor het instellen van de gel, spoel twee platen (één lange en één korter) met 70% ethanol, laat ze drogen en leg dan twee 1 mm spacers langs de lange kanten van de langere plaat; bedek het met de korte plaat, en zorg ervoor dat de twee platen af te stemmen op de bodem.
- Om de gel gegoten, volgt u de instructies van de Supplier (verschillende leveranciers gebruiken iets andere apparaten; sandwich klemmen en stapels worden geleverd door elke casting toestellen). In alle gevallen is er zeker van zijn dat klemmen, stacks en pakkingen zijn schoon, en sporen van acrylamide achtergelaten door vorige gebruikers te verwijderen.
- Plaats de gemonteerde gel-sandwich in de casting stand en volg specifieke instructies van de leverancier.
OPMERKING: Meestal een schone siliconenpakking onderaan het gietstuk sleuf zorgt voor een goede afdichting en helpt om lekkage te voorkomen bij het gieten van de gel. - Om te controleren op lekkages, giet gedestilleerd water met behulp van een pipet tussen de glasplaten. Water toe te voegen aan het opvullen van de sandwich en wacht enkele minuten om ervoor te zorgen dat er geen lekkages optreden. Als de sandwich correct is gemonteerd, verwijder het water en plaats een papieren filter tussen de twee glazen om de bril te drogen. Verwijder het papier en nu de sandwich klaar is voor gel gieten.
- Giet gel bij kamertemperatuur (RT, 25 ° C). Sinds polyacrylamide is zeer neurotoxisch, handschoenen dragen. Onse continue 12% polyacrylamidegelen in niet-denaturering (native) de voorwaarden voor NAAM analyse uit te voeren.
- Bereid de 12% gel oplossing: meng 12 ml van 40% acrylamide / bisacrylamide (19/1) oplossing, 4 ml TBE 10x buffer (10x: Tris-HCl 890 mM, Boraat 890 mM, EDTA 20 mm) en 24 ml MilliQ water . Voeg 400 ul APS en 50 pi direct TEMED voor gebruik. Meng de oplossing en snel gebruik van een pipet om de oplossing neer te stromen tussen de glasplaten. Introduceer de kam tussen de glasplaten, het vermijden van bubbels. Voeg gel oplossing voor de sandwich volledig te vullen.
- Laat de gel polymeriseren gedurende 45 minuten tot 1 uur. Onmiddellijk voor het monster laden, verwijder de kam langzaam en spoel putten grondig met gedestilleerd water.
- Na de polymerisatie en putten spoelstappen, volg de specifieke instructies van de leverancier aan de gel-sandwich plaatsen in de apparatuur voor verticale gelelektroforese. Als een koelsysteem aanwezig is, zorg ervoor dat de gel systeem in de correct positie van de koeling kern.
- Als het systeem is ontworpen om meer dan één gel verwerken, maar slechts een gel moet worden uitgevoerd, sluit een gel sandwich als buffer dam de koeling kern aan de andere kant het volledige bovenste bufferkamer vormen.
OPMERKING: als de dam niet correct is geplaatst, zal de bovenste buffer eventueel lekken stoppen van de gel run. - Bereid 2,5 L van TBE lopende buffer (1x: Tris-HCl 89 mM, Boraat 89 mM, EDTA 2 mM) in gedeïoniseerd water. Weerspiegelt ongeveer 500 ml TBE buffer voor de bovenste bufferkamer en giet de rest in de onderste bufferkamer. Giet de resterende 500 ml TBE buffer in de bovenste buffer kamer.
- Plaats de deksel op de bovenkant van de onderste bufferkamer, zodat de anode en kathode in de juiste positie.
- Sluit de koeling kern, indien aanwezig, aan een waterkraan met behulp van slangen. Vul de kern met leidingwater, die zal fungeren als een koellichaam tijdens de elektroforese, en laat kraanwater circuleren door de kern tijdens de uitverkorenenrophoresis.
3. nucleocapsid Annealing-gemedieerde Elektroforese (NAAM) Assay
- Bereiding van Buffers
- Bereid TNMg buffer (1x: Tris-HCl 10 mM, NaCl 20 mM, Mg (ClO4) 2 1 mM, pH 7,5) in DEPC-behandeld water en filtreer de oplossing met een 0,22 urn poriegrootte.
OPMERKING: TNMg buffer kan worden opgeslagen bij 4 ° C tot 7 dagen. Voor de beste vouwen en gloeien resultaten, raden wij het gebruik van vers gemaakt buffers. - Bereid de gel laadbuffer bevattende SDS (SDS GLB: Tris-HCl 100 mM EDTA 4 mM, 50% w / v glycerol, 2% w / v SDS, 0,05% w / v broomfenolblauw) in DEPC-behandeld water.
OPMERKING: GLB helpt te houden hoe ver de oligonucleotiden monsters lopen in het gelsysteem en laat de monsters zinken in de gel. Toevoeging van SDS tot de GLB is een kritische stap voor de optimale succes NAME assay. Als deze stap wordt gevolgd, is het niet mogelijk om nucleïnezuren band onderscheiden in de gel (zie figuur 2).
- Bereid TNMg buffer (1x: Tris-HCl 10 mM, NaCl 20 mM, Mg (ClO4) 2 1 mM, pH 7,5) in DEPC-behandeld water en filtreer de oplossing met een 0,22 urn poriegrootte.
- Controls voorbereiding
- Verdun serieel de oligonucleotiden voorraadoplossingen en gebruik vers 10 uM oplossingen 10 pl van een 1 uM oplossing van TAR bereiden. Bereid op dezelfde wijze afzonderlijk 10 pl van een 1 uM cTAR in TNMg 1x buffer. Verwarm elke buis tot 95 ° C gedurende 5 minuten en laat afkoelen tot kamertemperatuur zodat TAR en cTAR aan hun stam-bobbel-loop structuren aannemen.
- Bereid 1 uM oplossing van hybride TAR / cTAR als controle. Meng 1 ui 10 uM TAR met 1 ui 10 uM cTAR in TNMg 1x, in een totaal volume van 10 pl. Denatureren de oligonucleotiden door verwarmen van de buis tot 95 ° C gedurende 5 minuten en laat het langzaam afkoelen tot kamertemperatuur zodat TAR te hybridiseren met zijn complementaire sequentie cTAR en de dubbelstrengs hybride TAR / cTAR vormen.
- Bij de oplossingen afgekoeld tot kamertemperatuur, uitvoeren van een korte-rotatie centrifugatie. Voeg 3 ul van GLB SDS, pipet each oplossing in de buis 3 keer en zet de buis op ijs. Houd de controlemonsters gestage op ijs tot het laden stap.
- Monsters voorbereiding op NC-eiwit en (12-55) NC peptide activiteit te analyseren
- Gebruik 2,5 ul van vers bereide 4 pM oligonucleotide oplossing voor elk monster. Bereiden altijd een beetje te grote hoeveelheid van elke oplossing te pipetteren fouten te voorkomen. Vouw 32,5 ul van 4 uM oplossing van TAR en, afzonderlijk, van cTAR in TNMg 1x buffer zoals gerapporteerd voor de controles voorbereiding bovengenoemde (stap 3.2.1.).
- Verdun de voorraad oplossing van zowel NC eiwit en (12-55) NC peptide tot 80 uM oplossing met MilliQ water.
- Wanneer TAR en cTAR oplossingen worden afgekoeld tot kamertemperatuur, uitvoeren van een korte-rotatie centrifugeren van beide buizen en opzet van de stalen buizen.
- Bereid 12 lege 0,5 ml geautoclaveerd buizen. Plaats 3 rijen van 4 buizen in het rek voor lab monsters. Elke rij geeft aan respectievelijk de monsters naar e analyserene full-length NC eiwit monsters zonder eiwit en de monsters naar de (12-55) NC peptidenactiviteit analyseren.
- Vervang altijd tips op elk gewenst moment een andere oplossing wordt gebruikt.
- Voeg in elke buis 2,5 ul gevouwen TAR en 2,5 ul gevouwen cTAR. Voeg 4 pi DEPC-behandeld water aan de monsters voor de analyse van NC en (12-55) NC. Voeg 5 ul-DEPC behandeld water naar de andere monsters.
- Voeg 1 ul van 80 uM NC of 1 pl 80 pM (12-55) NC de monsters voor respectievelijk NC of (12-55) NC analyse.
- Voeg onmiddellijk 3 pl GLB SDS het tijdstip 0 min monsters (gerapporteerd als 0 in figuur 1), pipetteren de oplossing in elke buis 3 keer, en eindelijk de buis op ijs. Herhaal deze stap voor alle monsters en controles. Houd de monsters gestage op ijs tot het laden stap.
- Na 15 min, 30 min en 1 uur incubatie bij kamertemperatuur, voeg 3 pl GLB SDS, pipet de oplossing in each buis 3 keer en zet de buis op ijs. Herhaal deze stap voor alle monsters en controles, respectievelijk, en blijf op ijs tot het laden stap.
- Verwijder het deksel van de gel inrichting. Load 13 ul van elk monster in de putjes gevormd zoals eerder beschreven door gieten van de gel met een goed vormende kam. Plaats de monsters in de volgorde weergegeven in Figuur 1.
- Plaats het deksel van de gel apparaat. Bevestig de draden van de gel apparaat aan op de voeding. Controleer of de elektroden zijn aangesloten op de juiste sleuven in de voeding.
- Schakel de stroom en laat de gel gedurende 2 uur en 30 min bij een constante spanning van 200 V, totdat de kleurstof is gemigreerd tot 1,5 cm boven de bodem van de gel.
- Monstervoorbereiding tot anthraquinon activiteit te analyseren op NC en (12-55) NC
- Verdun de verbinding 1 stamoplossing. Bereid 10 pi van 500 uM, 250 uM, 50 uM, 5 uM verdunning van verbinding 1 in MilliQ water.
- Bereid controlemonsters zoals hierboven beschreven (paragraaf 3.2.).
- Gebruik 2,5 ul van vers bereide 4 pM oligonucleotide oplossing voor elk monster. Bereiden altijd een beetje te grote hoeveelheid van elke oplossing te pipetteren fouten te voorkomen. Vouw 27,5 ul van 4 uM oplossing van TAR en, afzonderlijk, van cTAR in TNMg 1x buffer zoals hierboven vermeld (stap 3.2.1.).
- Verdun de voorraad oplossing van zowel NC eiwit en (12-55) NC peptide tot 80 uM oplossing in water.
- Wanneer TAR en cTAR oplossingen worden afgekoeld tot kamertemperatuur, uitvoeren van een korte-rotatie centrifugeren van beide buizen en opzet van de monsters.
- Bereid 20 lege 0,5 ml geautoclaveerd buizen. Plaats 2 rijen van 10 tubes elk in het rek voor lab monsters.
- Vervang altijd tips op elk gewenst moment een andere oplossing wordt gebruikt.
- Voeg elke buis van de eerste rij met 2,5 pl gevouwen TAR. Voeg elke buis van de tweede rij met 2,5 ul van gevouwen cTAR.
- Voeg 2 pl van de geschikte verbinding 1 verdunning (toenemende concentratie van 5 uM tot 500 uM verdunning) aan TAR en cTAR. Vervang verbinding met water in de monsters voor de analyse van NC en (12-55) NC in afwezigheid van verbinding. Incubeer de monsters gedurende 15 minuten bij kamertemperatuur.
- Na 15 minuten incubatie, meng de cTAR monsters (buizen van tweede rij) met de correspondent TAR monsters (buizen van de eerste rij).
- Voeg 1 ul van 80 uM NC of 1 pl 80 pM (12-55) NC de monsters voor NC of (12-55) NC analyse, respectievelijk.
- Na 15 minuten incubatie, voeg 3 ul van GLB SDS, pipet elke buis 3 keer en zet de buis op ijs. Herhaal deze stap, respectievelijk met de monsters voor NC en (12-55) NC analyse. Houd de monsters gestage op ijs tot het laden stap.
- Verwijder het deksel van de gel inrichting. Plaats 13 gl van elk monster in de putjes. Laad de monsters in de volgorde vermeld in figuurure 3B.
- Plaats het deksel van de gel apparaat. Bevestig de draden van de gel apparaat aan op de voeding. Controleer of de elektroden zijn aangesloten op de juiste sleuven in de voeding.
- Schakel de stroom en laat de gel gedurende 2 uur en 30 min bij een constante spanning van 200 V, totdat de kleurstof is gemigreerd tot 1,5 cm boven de bodem van de gel.
- Monstervoorbereiding: Oligo-preïncubatie mode vs NC-preïncubatie modus
- Verdun de verbinding 1 stock oplossing. Bereid 10 pi van 500 uM, 250 uM, 50 uM, 5 uM verdunning van verbinding 1 in MilliQ water.
- Bereid controlemonsters zoals hierboven beschreven (paragraaf 3.2.).
- Gebruik 2.5 gl 4 pM oligonucleotide oplossing voor elk monster. Bereiden altijd een beetje te grote hoeveelheid van elke oplossing te pipetteren fouten te voorkomen. Vouw 27,5 ul van 4 uM oplossing van TAR en, afzonderlijk, van cTAR in TNMg 1x buffer zoals hierboven vermeld (stap 3.2.1.).
- Verdun de voorraad oplossing van zowel NC eiwit en (12-55) NC peptide tot 80 uM oplossing in water.
- Wanneer TAR en cTAR oplossingen worden afgekoeld tot kamertemperatuur, uitvoeren van een korte-rotatie centrifugeren van beide buizen en opzet van de monsters.
- Vervang altijd tips elke keer reagentia worden gewijzigd of een andere vloeistof of een oplossing in de reageerbuis wordt aangeraakt.
- Vanaf deze stap op zorg ervoor om duidelijk te labelen en te scheiden van de monsters voor de twee verschillende pre-incubatie procedures.
- Oligo-preïncubatie modus
- Bereid 10 lege 0,5 ml geautoclaveerd buizen. Plaats 2 rijen van 5 buizen in het rek voor lab monsters.
- Voeg in elke buis van de eerste rij 2,5 pl gevouwen TAR. Voeg in elke buis van de tweede rij 2,5 ul gevouwen cTAR.
- Voeg 2 pl van de geschikte verbinding 1 verdunning (toenemende concentratie van 5 uM tot 500 uM verdunning) aan TAR en cTAR.Vervang verbinding met water in de monsters voor de analyse van NC in afwezigheid van verbinding. Incubeer de monsters gedurende 15 minuten bij kamertemperatuur.
- Na 15 minuten incubatie, neem de cTAR monsters (tweede rij) en zet ze met de correspondent TAR monsters (eerste rij).
- Voeg 1 ul van 80 uM NC aan elk monster en incubeer de monsters gedurende 15 minuten bij kamertemperatuur.
- Na 15 minuten incubatie, voeg 3 ul van GLB SDS, pipet elke buis 3 keer en zet de buis op ijs. Houd de monsters gestage op ijs tot het laden stap.
- NC-preïncubatie modus
- Bereid 5 lege 0,5 ml geautoclaveerd buizen en plaats ze in het rek voor lab monsters.
- Voeg in elke buis 4 ui van de geschikte verbinding 1 verdunning (toenemende concentratie van 5 uM tot 500 uM verdunning). Vervang verbinding met water in de monsters voor de analyse van NC in afwezigheid van verbinding.
- Voeg in elke buis 1 pl 80 μ, M NC en incubeer de monsters gedurende 15 minuten bij kamertemperatuur.
- Meng 15 gl gevouwen TAR 15 gl gevouwen cTAR in een buis en deze TAR + cTAR oplossing in de volgende stap.
- Na 15 min incubatie, aan elk monster 5 pl van het TAR + cTAR mix oplossing en incubeer de monsters gedurende 15 minuten bij kamertemperatuur.
- Na 15 minuten incubatie, voeg 3 ul van GLB SDS, pipet elke buis 3 keer en zet de buis op ijs. Houd de monsters gestage op ijs tot het laden stap.
LET OP: Vanaf stap 3.5.8 op, kan de analyse worden uitgevoerd met alle monsters (CV van 3.5.7).
- Oligo-preïncubatie modus
- Verwijder het deksel van de gel inrichting. Plaats 13 gl van elk monster in de putjes. Plaats de monsters in de volgorde weergegeven in figuur 4.
- Plaats het deksel van de gel apparaat. Bevestig de draden van de gel apparaat aan op de voeding. Controleer of de elektroden zijn aangesloten op de juiste sleuven in de macht supply.
- Schakel de stroom en laat de gel gedurende 2 uur en 30 min bij een constante spanning van 200 V, totdat de kleurstof is gemigreerd tot 1,5 cm boven de bodem van de gel.
4. Het verwijderen van de gel en gelkleuring
- Na elektroforese, schakelt u de voeding en ontkoppel de elektrische leidingen. Schakel de waterkraan van het koelsysteem en koppel slangen uit de kern.
- Verwijder het deksel, en, als het systeem werd afgekoeld, de koeling kern en giet de buffer van beide kamers.
- Demonteer voorzichtig de gel-sandwich uit het apparaat en verwijder alle klemmen van de glasplaten. Om de gel uit de platen te verwijderen, duwt een van de afstandhouders uit naar de zijkant van de platen en draai het voorzichtig op te trekken en weg van de bovenste glasplaat. Pak twee hoeken van de gel en verwijder deze voorzichtig om het uit het glas te verwijderen.
- Plaats de gel in een geschikte houder met de gewenste nucleïnezuren kleuroplossing voor30-45 min onder roeren.
- Na het kleuren wordt de gel op een transilluminator beeldvormingssysteem nucleïnezuren fluorescentiesignaal te detecteren in het gelsysteem.
Resultaten
Figuur 1 toont een representatief resultaat van de nucleocapside Annealing Mediated Electrophoresis (NAAM) assay uitgevoerd i) met de volledige lengte recombinant eiwit, ii) zonder het eiwit, namelijk mengen cTAR + TAR en incuberen tot 1 uur bij kamertemperatuur, en iii ) dezelfde test uitgevoerd met (12-55) NC, een synthetisch peptide zonder de 11 aminozuren N-terminale domein. De voorgevouwen TAR en cTAR gemengd en de vorming van de gegloeide heteroduplex TAR / cTAR werd gevolgd in aanwezigheid van de volledige lengte recombinant NC (linker lanen van figuur 1), in afwezigheid van eiwit (centrale lanen in figuur 1 ), en in aanwezigheid van de afgeknotte (12-55) NC peptide (rechter lanen in figuur 1). Controles worden: gevouwen cTAR, gevouwen TAR, en getemperd hybride (TAR / cTAR), verkregen door middel van thermische denaturatie van het stabiel gevouwen structuren van TAR om cTAR gevolgd door hun trage annealing. 14
Het vermogen van NC twee stabiele nucleïnezuursequenties in het verlengde heteroduplex helix denatureren duidelijk zichtbaar: de volledige lengte NC eiwit leidt direct tot de vorming van de TAR / cTAR hybride: 0 "geeft de minimale tijd passeren tussen toevoeging van NC naar de monsters en de toevoeging van gel-laadbuffer, waarbij de reactie stopt; volledige vorming al na 15 'incubatietijd bereikt. De toename van de intensiteit van de gegloeide heteroduplex loopt parallel met de afname in de intensiteit van de gevouwen cTAR en TAR oligonucleotiden. De heteroduplex vorming wordt ook bereikt in aanwezigheid van de afgeknotte vorm, namelijk de (12-55) NC, bevestigt de biologische activiteit van het synthetische peptide. Bij afwezigheid van het eiwit of het peptide de heteroduplex vorming niet waargenomen en TAR en cTAR oligonucleotiden zal hechten bij kamertemperatuur in de heteroduplex (figuur 1). Inalle experimenten, de snelle vorming van instabiele intermediairen ("intermediaire complexen" in figuur 1) die afnamen in de tijd wordt waargenomen, consistent met de voorgestelde van strenguitwisseling door de haarspeldbochten van cTAR en TAR tot de juiste nucleïnezuren vouwmechanisme. 17
Een mogelijke oplossen van het experiment is het ontbreken van SDS in de gel laadbuffer. Bij afwezigheid van SDS in de GLB het resultaat van de reactie is weergegeven in figuur 2 en vergeleken met de resultaten met GLB + SDS. De voorgevouwen TAR en cTAR gemengd en gedurende 3 uur bij kamertemperatuur voor 3 uur bij 37 ° C met recombinant volledige lengte NC eiwit. Na incubatie werden de monsters in tweeën gesplitst: de helft gel loading buffer zonder SDS (GLB) werd toegevoegd, terwijl de andere helft GLB werd met SDS (GLB SDS). Monsters werden op de gel geladen en de positie van de nucleïnezuren banden werd zichtbaar gemaakt na het gel gerund doorkleurstof kleuring. Toen NC aanwezig maar de monsters werden geladen met GLB werden alle nucleïnezuren bands opgeschoven: dit wordt verwacht en geeft een sterke binding tussen het proteïne en nucleïnezuren. De resultaten GLB SDS worden in uiterst rechts van de gel: de toevoeging van SDS denatureert het eiwit vrijgeeft de nucleïnezuren uit het stabiel complex met het eiwit, waardoor de vergelijking met de controles.
De NAME test wordt gebruikt om het vermogen van threading intercalatoren dynamische nucleinezuurstructuren stabiliseren en remmen NC chaperone activiteit beoordelen. 14 inrijgen intercalatoren zijn planaire aromatische moleculen gesubstitueerd met volumineuze zijketens gelegen aan de andere plaatsen van het ringsysteem, zoals anthrachinon figuur 3A. 18 Deze intercalerende kunnen draad door de dubbele helix van nucleïnezuren, uiteindelijk vinden van hun zijketens in elke groef van de dubbelehelix. 19,20
Figuur 3B toont de resultaten van de assay NAME in aanwezigheid van verbinding 1, een bekende threading intercalator, 18 in aanwezigheid van volledige lengte NC of het afgeknotte peptide. In beide gevallen wordt de vorming van de TAR / cTAR hybride door NC verminderd door de concentratie van de intercalator, terwijl, tegelijkertijd, de hoeveelheid vrije TAR en cTAR toeneemt. De afgeknotte vorm van het eiwit die het N-terminale staart (12-55NC) gevoeliger voor de remming van de activiteit: dit verschil werd geverifieerd bij alle tot nu toe geteste verbindingen.
De NAME test kan worden uitgevoerd op twee manieren, hetzij door vooraf incuberen van de testverbinding met NC, gevolgd door toevoeging van de gevouwen oligonucleotiden (NC-voorincubatie modus) of door incuberen van de testverbinding gedurende 15 min met de gevouwen nucleïnezuur substraten , gevolgd door toevoeging van NC en een verdere incubatie gedurende 15 min (oligo-preincubation modus). Hoewel de totale incubatietijd is hetzelfde in de twee verschillende standen, de voorincubatie met gevouwen oligonucleotiden vóór toevoeging van de NC aan meer tijd voor het inrijgen van de intercalatoren in de gevouwen nucleïnezuur. Dit resulteert in een sterkere stabilisatie van hun dynamische structuren en tot een gemakkelijker remming van NC chaperonne activiteiten. De analyse van de NAME assay in twee modi verbetert derhalve verschillen in werkingsmechanisme van NC-remmers, zoals weergegeven in figuur 4: als verbinding 1 werd geanalyseerd door NAME in de oligo-preïncubatie stand (figuur 4, lanen links) toont krachtige remming van NC-gemedieerde annealing, terwijl veel lagere remming wordt waargenomen in de NC-preïncubatie stand (figuur 4, lanen rechts). Let voor de bepaling van remmende concentraties terwijl screening sets verwante verbindingen met deze assay en in deze omstandigheden elke experimentelement moet ten minste in drievoud met tussenruimte concentraties (vooral rond de IC50 waarde). 14
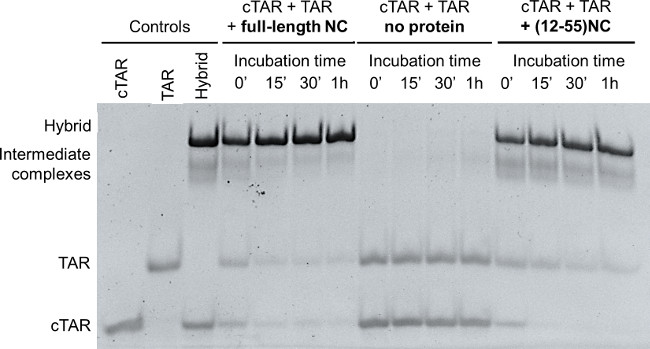
Figuur 1:. NAAM test met full-length NC en met de afgekapt (12-55) NC gevouwen TAR en cTAR, elk 1 uM, werden met recombinant NC of met (12-55) NC (oligo / NC = 1 / 8) voor 0 min, 15 min, 30 min en 1 uur. TAR en cTAR geïncubeerd in de afwezigheid van eiwit (0 min, 15 min, 30 min en 1 uur) werden gebruikt als negatieve controle. Gevouwen TAR, gevouwen cTAR en de hybride TAR / cTAR verkregen na thermische denaturatie gevolgd door in vitro annealing werden als controles. De reacties werden vervolgens gestopt met GLB SDS. Monsters werden gescheiden op een 12% polyacrylamide gel in TBE 1x; Na elektroforese nucleïnezuren op de gel werd gekleurd en gedetecteerd op een transilluminator.
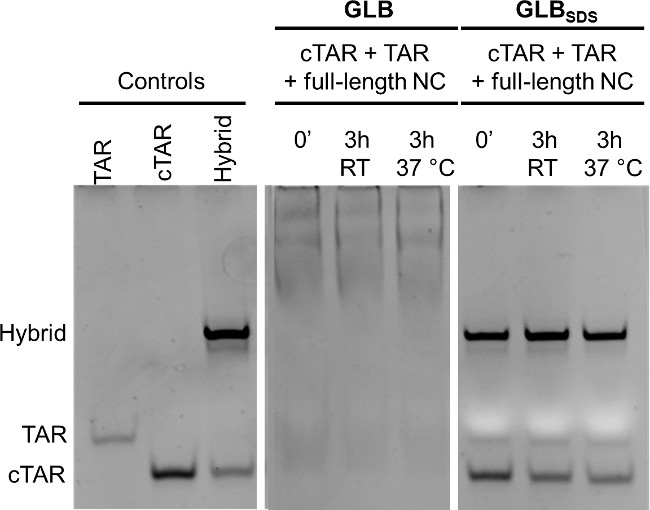
Figuur 2:. Effect van SDS in gelbeladingsbuffer (GLB) bij de analyse van TAR / cTAR gloeien door NC TAR en cTAR, voorgevouwen in TNMg 1x, werden met volledige lengte recombinant NC (oligo / NC = 1/8) voor 3 uur bij kamertemperatuur of bij 37 ° C. GLB of GLB SDS werden vervolgens naar het geïncubeerd met NC monsters toegevoegd. Controls: TAR, cTAR en de gegloeide hybride TAR / cTAR (elk 1 uM). Elektroforese werd uitgevoerd met een 12% polyacrylamide gel in TBE 1x; Na elektroforese nucleïnezuren op de gel werd gekleurd en gedetecteerd op een transilluminator. Dit cijfer is gewijzigd ten opzichte van Figuur S4 van:. Sosic, A. et al Ontwerp, MedChemComm 4, 1388-1393 synthese en biologische evaluatie van de TAR en cTAR bindmiddelen als HIV-1 nucleocapsid remmers, doi:. 10,1039 / c3md00212h (2013) .
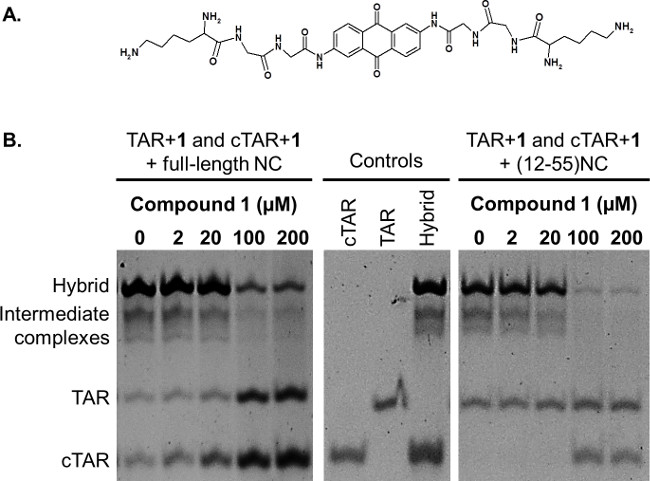
Figuur 3: (A) Chemische structuur van de schroefdraad intercalator 1. (B) Effect van threading intercalator 1 beoordeeld door NAME assay. Gevouwen TAR en cTAR, elk 1 uM, werden geïncubeerd in aanwezigheid van de aangegeven concentraties van de verbinding 1 met de volledige lengte NC of het (12-55) NC, elke 8 uM. Gevouwen TAR, gevouwen cTAR en de uitgebreide heteroduplex TAR / cTAR werden als controles. De reacties werden vervolgens gestopt met GLB SDS. Monsters werden gescheiden op een 12% polyacrylamide gel in TBE 1x; Na elektroforese nucleïnezuren op de gel werd gekleurd en gedetecteerd op een transilluminator.
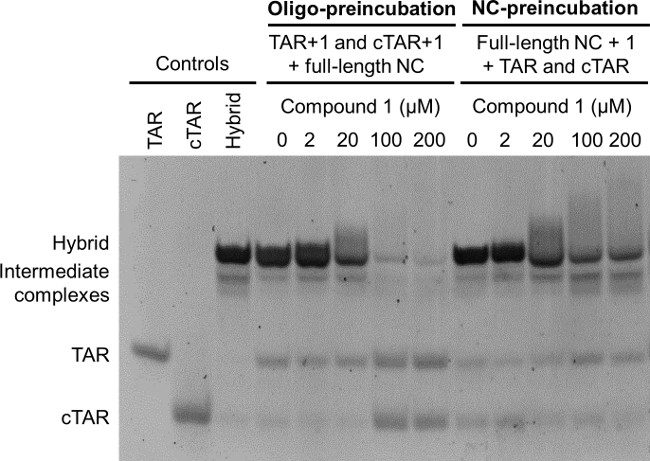
Figuur 4: Oligo-voorincubatie versus NC-voorincubatie modi: effecten op NAAM test voorincubatie Oligo-mod.e: TAR gevouwen en gevouwen cTAR, elk 1 uM, werden vooraf geïncubeerd met de aangegeven concentraties van de schroefdraad intercalator 1 gedurende 15 minuten en vervolgens nog 15 min in aanwezigheid van de volledige lengte NC (8 uM) NC-voorincubatie. mode: de aangegeven concentraties van de schroefdraad intercalator 1 gepreïncubeerd met de volledige lengte NC (8 uM) gedurende 15 minuten en vervolgens nog 15 minuten in de aanwezigheid van TAR gevouwen en gevouwen cTAR, elk 1 uM. Gevouwen TAR, gevouwen cTAR en de uitgebreide heteroduplex TAR / cTAR werden als controles. Alle reacties werden uiteindelijk gestopt met GLB SDS. Monsters werden gescheiden op een 12% polyacrylamide gel in TBE 1x; Na elektroforese nucleïnezuren op de gel werd gekleurd en gedetecteerd op een transilluminator.
Discussie
NAME is een test waarmee de remming van de chaperone activiteit van het nucleocapside-eiwit van HIV-1, een interessant doelwit bij het zoeken van nieuwe anti-HIV geneesmiddelen snelle beoordeling. NC bindt snel en bij kamertemperatuur nucleïnezuren waarvan stabiele vouwen anders thermische denaturatie bij hoge temperatuur, gevolgd door zorgvuldig uitgloeien vereisen. De test kan worden uitgevoerd met ofwel volledige lengte NC of de afgeknotte (12-55) NC: in beide gevallen de twee nucleïnezuren (RNA en zijn complementaire DNA kopie) snel gegloeid. Dit is consistent met de literatuur waarneming met het afgeknotte peptide NC: gloeien wordt geïnitieerd door de efficiënte smelten van de steel van cTAR gevolgd door de interactie van de complementaire apicale lus, die een zwak NC bindingsplaats, met de complementaire sequentie van TAR apicale lus, terechtkomen via verschillende instabiel tussenproducten bij het uitgebreid gegloeid hybride. 21
NC is een zeer stabiel protein en weinig problemen tijdens het uitvoeren van NAAM zou kunnen optreden. Het is echter belangrijk om vers SDS toe in de gelbeladingsbuffer toegepast om de reactie te stoppen: als dit niet wordt bereikt, wordt de gel niet het nucleïnezuur banden op de juiste posities tonen. In feite, NC is een nucleïnezuur bindend eiwit, zodat te kunnen visualiseren TAR / cTAR heteroduplex door gelelektroforese SDS moeten in de gelbeladingsbuffer het eiwit te denatureren en deze los van zijn strakke complex met nucleïnezuren. Dit is ook een mogelijke oplossen van problemen van het experiment, dat wil zeggen de vorming van verschoven bands tijdens de gel run. Dit effect is bijzonder duidelijk als de volle lengte NC werd gebruikt, zoals in figuur 2, en is gekoppeld aan de aanwezigheid van de sterk basische N-terminale staart heeft sterke aggregerende effect op nucleïnezuren.
De aanwezigheid van de terminale basische staart maakt de annealing reactie moeilijker worden geremd, zoals getoondn in figuur 3 met behulp van verbinding 1, een vertegenwoordiger threading intercalator, dwz een intercalator bijzonder efficiënt bij het stabiliseren van de stam-lus structuren van teer en van cTAR. In feite is dit soort interactie met nucleïnezuren voorkeur wanneer uitstulpingen en lussen onderbreken dubbele helix continuïteit, vereenvoudigen het schroefdraad van de volumineuze substituenten in de basenparen. Stabilisatie van TAR en cTAR door deze nucleïnezuur bindmiddelen is eerder geanalyseerd door bepaling van de verhoging van de smelttemperatuur van de twee oligonucleotiden. 14 Bovendien is de toename smelttemperatuur correleert met de remming van de annealing gekatalyseerd door HIV-1 NC, leidt de verminderde vorming van de heteroduplex TAR / cTAR en aangeeft dat threading intercalatoren zijn een interessante klasse van bindmiddelen voor dynamische structuren van RNA als de TAR-element. 14
Het werkingsmechanisme ingeroepen voor deze compounds kan verder worden bevestigd door het uitvoeren van de assay NAME in verschillende alternatieve formaten, zoals weergegeven in figuur 4: bij intercalatoren de remming versmolten heteroduplex wordt versterkt wanneer het geneesmiddel wordt geïncubeerd met de twee gevouwen oligo. Verbindingen handelen met ander werkingsmechanisme, zoals directe bindmiddelen van de NC eiwit, zou minder beïnvloed door de verschillende voorincubatie modus. NAME assay uitgevoerd in de twee werkwijzen kan daarom worden gebruikt om bibliotheken van verbindingen te screenen voor het identificeren van remmers NC, en ook de mogelijke werkingsmechanisme van de positieve treffers beoordelen terwijl voor anti-HIV geneesmiddelen gericht op NC. Is duidelijk dat de toepassing van deze technieken alleen toen roepen voor een specifiek werkingsmechanisme van geïdentificeerde NC remmers niet voldoende, en andere geschikte biochemische assays nodig zijn werkhypothese ondersteunen. 14
Ten slotte moet worden benadrukt dat NAAM maakt gebruik van zeergezuiverde enzymen, hetzij recombinant of synthetisch, waardoor waardevolle informatie over de "in vitro" remming van NC van de geteste verbindingen. Dit is de "kracht en zwakte" van de test: NAAM kan goed aanvullen virtuele screening en moleculaire modellering benaderingen in de voorbereidende stappen van drug discovery programma's, zodat snel op te bouwen en te analyseren structuur-activiteit relaties en uiteindelijk ombuigen de synthese en drug design. Zoals andere biochemische assays gebruikt geneesmiddelenontwikkeling projecten HIV, NAME geen gegevens over de effecten van vermeende remmers in virus geïnfecteerde cellen bevatten.
Openbaarmakingen
De auteurs verklaren dat ze geen concurrerende financiële belangen hebben.
Dankbetuigingen
Dit werk werd ondersteund door Ministero degli Affari Esteri (MAE, DRPG, Unità per la cooperazione scientifica e tecnologica, Grant: PGR Italy-USA) en door MIUR, Progetti di Ricerca di Interesse Nazionale (Grant: 2010W2KM5L_006).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| cTAR, 29-mer DNA oligo. Ontzilt. HPLC gezuiverd. | Metabion International AG | Bewaar de stock oplossing bij -20 °C | |
| TAR, 29-mer RNA oligo. Ontzilt. HPLC gezuiverd. | Metabion International AG | Bewaar de stock aliquot bij -80 °C | |
| (12-55)NC peptide | EspiKem srl | Bewaar de stock oplossing bij -20 °C | |
| 1,5 ml buisjes | Eppendorf | 0030 120 086 | Autoclaveer voor gebruik |
| 0,5 ml buisjes | Eppendorf | 0030 121 023 | Autoclaveer voor gebruik |
| Biosphere Filter Tips 0,1-10 µl | Sarstedt | 701,130,210 | |
| Biosphere Filter Tips 2-20 µl | Sarstedt | 70,760,213 | |
| Biosphere Filter Tips 200 µl | Sarstedt | 70,760,213 | |
| Spuitfilter 0,22 µm | Biosigma srl | 51,798 | |
| Ethanol | Carlo Erba | 414631 | |
| Natriumdodecylsulfaat | Sigma-Aldrich | 71725-50G | |
| Dimethylsulfoxide | Sigma-Aldrich | D8418-1L | |
| Natriumchloride | Sigma-Aldrich | 71376-1KG | |
| Boorzuur | Sigma-Aldrich | B0252-2.5KG | |
| Ethyleendiaminetetra-azijnzuur | Sigma-Aldrich | E5134-500G | |
| Magnesiumperchloraat | Sigma-Aldrich | 222283-100G | Bewaar de 1 M oplossing bij -20 °C |
| Glycerol | Sigma-Aldrich | 49770-1L | |
| Broomfenolblauw | GE Healthcare Life Sciences | 17-1329-01 | |
| N,N,N’,N’-Tetramethylethyleendiamine | Sigma-Aldrich | T9281-100ML | |
| Ammoniumpersulfaat | Sigma-Aldrich | A7460-500G | Bereid de 10% oplossing vers voor gebruik |
| Acrylamid-bis klaar voor gebruik oplossing 40% (19:1) | Merck Millipore | 1006401000 | Polyacrylamide is zeer neurotoxisch: draag handschoenen tijdens het giet van de gel |
| Tris ultrazuiver | Applichem | A1086,1000 | |
| DEPC-behandeld water | Ambion | AM9922 | |
| Centrifuge 5415R | Eppendorf | 22,621,408 | |
| NanoDrop 1000 spectrometer | Thermo Scientific | ||
| UV-VIS spectrometer Lambda 20 | Perkin Elmer | ||
| Protean II xi Cel | Bio-Rad | 165-1803 | |
| PowerPac Basic voeding | Bio-Rad | 164-5050 | |
| SybrGreen II RNA Gel Staining | Lonza | 50523 | Maak de 1/10.000 verdunning in TBE 1x. Bewaar deze in het donker bij 4 °C gedurende twee weken. |
| Geliance 600 Imaging System | Perkin Elmer |
Referenties
- Druillennec, S., et al. A mimic of HIV-1 nucleocapsid protein impairs reverse transcription and displays antiviral activity. Proc Natl Acad Sci USA. 96, 4886-4891 (1999).
- Darlix, J. L., Garrido, J. L., Morellet, N., Mely, Y., de Rocquigny, H. Properties, functions, and drug targeting of the multifunctional nucleocapsid protein of the human immunodeficiency virus. Adv Pharmacol. 55, 299-346 (2007).
- Thomas, J. A., Gorelick, R. J. Nucleocapsid protein function in early infection processes. Virus Res. 134, 39-63 (2008).
- Mirambeau, G., Lyonnais, S., Gorelick, R. J. Features, processing states, and heterologous protein interactions in the modulation of the retroviral nucleocapsid protein function. RNA Biol. 7, 724-734 (2010).
- Zeng, Y., et al. Probing nucleation, reverse annealing, and chaperone function along the reaction path of HIV-1 single-strand transfer. Proc Natl Acad Sci USA. 104, 12651-12656 (2007).
- Basu, V. P., et al. Strand transfer events during HIV-1 reverse transcription. Virus Res. 134, 19-38 (2008).
- Guo, J., Henderson, L. E., Bess, J., Kane, B., Levin, J. G. Human immunodeficiency virus type 1 nucleocapsid protein promotes efficient strand transfer and specific viral DNA synthesis by inhibiting TAR-dependent self-priming from minus-strand strong-stop DNA. J Virol. 71, 5178-5188 (1997).
- Godet, J., Mely, Y. Biophysical studies of the nucleic acid chaperone properties of the HIV-1 nucleocapsid protein. RNA Biol. 7, 687-699 (2010).
- Darlix, J. L., et al. Flexible nature and specific functions of the HIV-1 nucleocapsid protein. J Mol Biol. 410, 565-581 (2011).
- Lapadat-Tapolsky, M., Pernelle, C., Borie, C., Darlix, J. L. Analysis of the nucleic acid annealing activities of nucleocapsid protein from HIV-1. Nucleic Acids Res. 23, 2434-2441 (1995).
- Vo, M. -N., Barany, G., Rouzina, I., Musier-Forsyth, K. Mechanistic studies of mini-TAR RNA/DNA annealing in the absence and presence of HIV-1 nucleocapsid protein. J Mol Biol. 363, 244-261 (2006).
- Beltz, H., et al. Structural determinants of HIV-1 nucleocapsid protein for cTAR DNA binding and destabilization, and correlation with inhibition of self-primed DNA synthesis. J Mol Biol. 348, 1113-1126 (2005).
- Mori, M., et al. Nucleocapsid Protein: a Desirable Target for Future Therapies against HIV-1. Curr Top Microbiol Immunol. , Forthcoming Forthcoming.
- Sosic, A., et al. Design, synthesis and biological evaluation of TAR and cTAR binders as HIV-1 nucleocapsid inhibitors. MedChemComm. 4, 1388-1393 (2013).
- Tabarrini, O., et al. Studies of Anti-HIV Transcription Inhibitor Quinolones: Identification of Potent N1-Vinyl Derivatives. Chemmedchem. 5, 1880-1892 (2010).
- Hagan, N., Fabris, D. Direct mass spectrometric determination of the stoichiometry and binding affinity of the complexes between nucleocapsid protein and RNA stem-loop hairpins of the HIV-1 Psi-recognition element. Biochemistry. 42, 10736-10745 (2003).
- Ivanyi-Nagy, R., Davidovic, L., Khandjian, E. W., Darlix, J. L. Disordered RNA chaperone proteins: from functions to disease. Cell Mol Life Sciences: CMLS. 62, 1409-1417 (2005).
- Zagotto, G., et al. Tuning G-quadruplex vs double-stranded DNA recognition in regioisomeric lysyl-peptidyl-anthraquinone conjugates. Bioconjug Chem. 22, 2126-2135 (2011).
- Carlson, C. B., Vuyisich, M., Gooch, B. D., Beal, P. A. Preferred RNA binding sites for a threading intercalator revealed by in vitro evolution. Chem Biol. 10, 663-672 (2003).
- Gooch, B. D., Beal, P. A. Recognition of duplex RNA by helix-threading peptides. J Am Chem Soc. 126, 10603-10610 (2004).
- Kanevsky, I., et al. Structural determinants of TAR RNA-DNA annealing in the absence and presence of HIV-1 nucleocapsid protein. Nucleic Acids Res. 39, 8148-8162 (2011).
Herprints en machtigingen
