We presenteren een protocol om metatarsale botten op dag 15 (E15) van muizen te dissecteren en te kweken. Dit zeer fysiologische ex vivo model van endochondrale ossificatie biedt omstandigheden die dichter bij de in vivo situatie liggen dan cellen in monolaag of 3D-kweek en is een essentieel hulpmiddel voor het onderzoeken van botgroei en -ontwikkeling.
Methodenartikel
Cultuur van muizen embryonale Middenvoetsbeentjes: Een Fysiologische Model van endochondrale Verbening
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Het fundamentele proces van endochondrale ossificatie wordt bij een gezond individu strikt gereguleerd om verstoorde ontwikkeling en/of longitudinale botgroei te voorkomen. Daarom is het van essentieel belang dat we ons begrip van de onderliggende moleculaire mechanismen die bij dergelijke aandoeningen betrokken zijn, verder ontwikkelen om vooruitgang te boeken ten behoeve van menselijke en dierlijke patiënten. De muis metatarsale orgaan explantaatkweek is een zeer fysiologisch ex vivo model voor het bestuderen van endochondrale ossificatie en botgroei, aangezien de groeisnelheid van de botten in cultuur die in vivo waargenomen wordt, nabootst. Uniek is dat de metatarsale orgaankweek de mogelijkheid biedt om chondrocyten in verschillende fasen van chondrogenese te onderzoeken en cel-cel en cel-matrix interacties te behouden, waardoor omstandigheden worden gecreëerd die dichter bij de in vivo situatie liggen dan cellen in monolaag of 3D-kweek. Dit protocol beschrijft in detail de nauwgezette dissectie van embryonale metatarsalen uit de achterste ledemaat van E15 muis embryo's en de daaropvolgende analyses die kunnen worden uitgevoerd om endochondrale ossificatie en longitudinale botgroei te onderzoeken.
Inleiding
Het skelet is een zeer complexe, dynamische en complexe orgaan dat een scala aan functies variërend van motoriek heeft, om ion homeostase. Bestaande uit bot en kraakbeen, het skelet bestaat uit functioneel verschillende celpopulaties die werken handhaven het structurele, biochemische en mechanische integriteit 1. Een van de belangrijkste functies van het skelet een rol in de ontwikkeling en groei. Deze processen vereisen de orkestratie van meerdere cellulaire populaties die zijn geregeld door nauwe endocriene en genetische controle.
Met uitzondering van de platte botten zoals scapula, schedel en borstbeen, wordt de zoogdier skelet gevormd door het proces dat endochondrale ossificatie. Hierbij gereguleerd zowel moleculair als ruimtelijk begint met de condensatie van mesenchymale cellen hoofdzakelijk afkomstig van de mesoderm 2. Onder invloed van de transcriptiefactor SOX9 cellen in the inwendige van de verdichtingen differentiëren tot chondrocyten, uitdrukken en afscheiden kraakbeen specifieke extracellulaire matrix (ECM) bestanddelen zoals type II collageen en aggrecan. Cellen in de marge van de condensatie, drukken type I collageen en vormen de perichondrium, de afbakening van de aspirant-bot 3. Later, de osteoprogenitors van het perichondrium differentiëren in osteoblasten, gestuurd door de expressie van de transcriptiefactoren, Runx2 en osterix 4. Dit leidt tot een overwicht van osteoblasten en deze laag wordt De periosteum die een gemineraliseerd bot kraag rond het middelste gedeelte van het bot vormt. Vasculaire penetratie van het periosteum en invasie van het kraakbeenachtige skelet optreedt en dus ook, haematopoetically afgeleide botresorberende cellen, osteoclasten, chondrocyten die resten en veel van de kraakbeenmatrix 5 resorberen. De ruimten gevormd wordt voorzien door osteoprogenitors die tot het primaire ossificatiecentrum dat geleidelijk de kern van de diafyse inneemt en fuseert met het periosteum. Andere cellen geven aanleiding tot beenmerg. Rond de geboorte, bloedvaten en osteoprogenitors dringen het kraakbeen matrix rijk aan weerszijden (epifyse) van de ontwikkeling diafyse de secundaire botvormingscentrum vormen. Gelegen tussen de epifyse en diafyse aan beide uiteinden van de lange botten is een band van het kraakbeen - de epifyse groeischijf - die verantwoordelijk is voor de coördinatie van de lineaire groei van alle lange botten 6.
Chondrocyten in de groeischijf in eerste instantie laten groeien en vervolgens verder door morfologisch verschillende zones, gecoördineerd door sequentiële expressie van transcriptie en groeifactoren. Het hoogtepunt van deze gang van zaken is het verlaten van de celcyclus en hypertrofie van chondrocyten in het centrum van kraakbeen precursor. Hypertrofische chondrocyten sterk drukken het type X collageen en matrix metalloproteinase-13 (MMP13) en hun aanzienlijke uitbreiding volume richting lengtegroei levert de grootste bijdrage aan botgroei bij zoogdieren 7,8. Bovendien hypertrofe chondrocyten mineraliseren hun omgeving ECM door het vrijkomen van matrix vesicles, membraan gebonden structuur gespecialiseerd voor de productie van amorf calciumfosfaat en deze verwerkt van fosfatasen (weefsel niet-specifieke alkalische fosfatase (TNAP) en PHOSPHO1) en calcium kanaliseren eiwitten (annexinen ) 9-11. Deze verkalkte kraakbeen is binnengevallen door de bloedvaten van het onderliggende beenmerg als gevolg van osteoclasten werving en matrix resorptie. Dit wordt gevolgd door osteoblasten migratie en aanpassing aan het oppervlak van de verkalkte kraakbeen resten, waar ze voorzien in een laag van osteoid die snel gemineraliseerd. De geweven bot van de primaire spongiosa is later verbouwd tot lamellaire bot van de secundaire spongiosa 12. Epifyse fusie resultaten in destopzetting van endochondrale ossificatie 13.
Endochondrale ossificatie is onder strakke regulering door vele endocriene en paracriene hormonen en groeifactoren om verstoorde ontwikkeling en / of groei longitudinale been 14 voorkomen. Een beter begrip van de moleculaire en cellulaire mechanismen die ten grondslag liggen aan deze processen is daarom absoluut noodzakelijk in ons streven naar klinische vooruitgang in de richting van de menselijke voordeel. Eerder onderzoek naar de overeenkomsten en verschillen tussen de groei platen van verschillende leeftijden, locaties en soorten zijn sterk verbeterd ons begrip van de fysiologische mechanismen omliggende groeischijf dynamiek 15,16. De studie van geïsoleerde chondrocyten moeilijk, het verwijderen van chondrocyten uit hun omgeving kan leiden tot dedifferentiatie, vergezeld van het verlies van expressie van belangrijke merkers zoals COL2A1 17.
De muis middenvoetsbeentje orgel explantaatkweek, pioneered door Prof. Elisabeth Burger en zijn collega's in Nederland, is een sterk fysiologisch ex vivo model voor het bestuderen van endochondrale botvorming en botgroei als de groei van de botten in de cultuur na te bootsen, dat gezien in vivo 18. Uniek middenvoet orgelcultuur maakt het onderzoek van chondrocyten in verschillende fasen van chondrogenese en onderhoudt cel-cel en cel-matrix interacties, dus het verschaffen van omstandigheden dichter bij de in vivo situatie dan in kweek 19-21. Bovendien is dit model zorgt voor een rechtstreeks onderzoek van lineaire botgroei die in primaire chondrocyten culturen niet mogelijk is. Het staat ook voor de scheiding van systemische en lokale factoren waardoor derhalve de specifieke analyse van de lokale effecten op de groei plaat.
De cultuur van de middenvoetsbeentjes maakt het onderzoek van talrijke parameters. Dagelijkse metingen van de totale lengte van de gemineraliseerde regiode rudimenten kan worden uitgevoerd met standaard fasecontrast microscopie en beeldanalyse software. Histologische, in situ hybridisatie en immunohistologische kleuring kan gemakkelijk worden uitgevoerd op middenvoet gedeelten, waardoor de ruimtelijke resolutie van zowel cellulaire en moleculaire entiteiten, een groot voordeel boven traditionele celcultuur methoden. De immunohistochemische aanpak omvat de detectie en kwantificering van 5-broom-2'-deoxyuridine (BrdU) opname door prolifererende chondrocyten 22. Daarnaast kan verdere verwerking van metatarsale weefsels worden uitgevoerd om voor downstream analyse van mRNA expressie (RT-qPCR), eiwitten en intracellulaire signalering analyse (Western blotting) of lipidesamenstelling (massaspectrometrie). De meeste studies tot op heden gebruik van gekweekte embryonale middenvoetsbeentjes eerder dan middenvoetsbeentjes uit post-natale dieren. Hoewel beide modellen informatief kan zijn, de studie van de embryonale botten heeft een aantal voordelen: ze sneller groeien en kan explo zijnperkt de initiatie en progressie van de mineralisatie proces 23-25 bestuderen.
Dit protocol beschrijft in detail de ingewikkelde dissectie van de embryonale middenvoetsbeentjes uit de achterste ledematen van de embryonale dag 15 (E15) muizen embryo's. Bovendien is de groei en mineralisatie van anatomisch verschillende middenvoetsbeentjes getoond.
Protocol
Procedures waarbij proefdieren werden uitgevoerd in overeenstemming met de UK Animals (Scientific Procedures) Act 1986 en de dieren werden in overeenstemming met het ministerie van Binnenlandse Zaken gehouden gepubliceerd Code of Practice voor de huisvesting en verzorging van dieren die worden gefokt, geleverd of gebruikt voor wetenschappelijke doeleinden.
LET OP: het gebruik van wild-type C57BL / 6J muizen uitgevoerde experimenten zijn goed ingeburgerd en hieronder beschreven. Embryonale middenvoetsbeentjes van verschillende muizenstammen kunnen eveneens in vitro worden gekweekt, hoewel hun groei en mineraliseringssnelheid kunnen verschillen van die welke hierin beschreven.
1. Dissection Voorwaarden en voorbereiding van instrumenten
- Voer alle media voorbereiding, weefsels ontledingen en cultuur werken in een laminaire stroming kap om de steriliteit van de media en embryonale beginselen te waarborgen.
- Toestaan cultuur en dissectie media equilibreren gedurende ten minste 1 uur op 37 ° C, 5% CO2 incubator voor gebruik.
- steriliseren dissectieschaar, Dumont # 5 en Dumont # 4 pincet naast een paar superfijne Vannas micro schaar (8 cm recht, 3 mm lamellen) in de autoclaaf. Na autoclaveren dompel de dissectie materiaal in 70% ethanol voor gebruik.
2. Bereiding van Dissection en cultuurmedia
- Bereid dissectie medium
- Verdun α-Minimum Essential Media (zonder nucleosiden, aMEM) in fosfaatgebufferde zoutoplossing (PBS) (01:13) en resuspendeer runderserumalbumine (BSA) bij 2 mg / l voor m filtersteriliseren door een injectiespuit diameter 0,22 um, 33 mm filter.
OPMERKING: Dissection medium kan worden gemaakt, filter gesteriliseerd en bewaard in aliquots bij -20 ° C oneindig.
- Verdun α-Minimum Essential Media (zonder nucleosiden, aMEM) in fosfaatgebufferde zoutoplossing (PBS) (01:13) en resuspendeer runderserumalbumine (BSA) bij 2 mg / l voor m filtersteriliseren door een injectiespuit diameter 0,22 um, 33 mm filter.
- Bereid kweekmedium
- Cultuur embryonale middenvoetsbeentjes in 300 ul kweekmedium (in elk putje van een 24-well cultuur plaat). Bereid het kweekmedium door toevoeging van 0,2% w / v BSA; 5 ug / ml L-Ascorbic zuur fosfaat; 1 mM β-glycerofosfaat (βGP, optioneel - zie de resultaten sectie); 0,05 mg / ml gentamicine en 1,25 ug amfotericine B aMEM en filter gesteriliseerd door een 0,22 um, 33 mm spuitfilter.
3. Muizen Embryonale middenvoet Dissection en Cultuur
- Ruimen de zwangere muis, herbergen 15-dagen oude embryo's, door cervicale dislocatie in overeenstemming met kantoor aan huis richtlijnen in het Verenigd Koninkrijk
- Plaats het dier in rugligging en desinfecteer de huid door te besproeien met 70% ethanol. Gebruik dissectie schaar maken een grote incisie in de middellijn, doordringende zowel de huid als het buikvlies de buikholte bloot.
- Zoek de beide uterine hoorns van het dier in de dorsale regio van de lichaamsholte. Verwijder de baarmoeder horens door eerst te bevrijden elk baarmoeder van de mesometrium door zorgvuldige insnijdingen met dissectie schaar en dan eindelijk het snijden van de baarmoeder hoorns bij hun basis. Place baarmoederhoorns in dissectie medium.
- Scheid elk embryo door te snijden tussen implantatie plaatsen langs de baarmoeder hoorn en verwijder de embryo's uit hun eigen zakken met behulp van een tang. Cull embryo's door onthoofding in overeenstemming met kantoor aan huis richtlijnen in het Verenigd Koninkrijk
- Na desinfectie van de huid door besproeien met 70% ethanol, gebruiken Vannas micro schaar om de achterpoten van de embryo's te verwijderen door insnijden rond het proximale femur. Hierdoor zoveel mogelijk van de achterste ledematen mogelijk wordt verwijderd. Plaats de achterpoten in een petrischaal ondergedompeld in dissectie medium voordat metatarsale dissectie.
- Onder een microscoop ontleden, beginnen om de huid rond de embryonale voet te verwijderen, door te knijpen en te trekken uit met de # 5 pincet, terwijl het houden van de achterste ledematen gestage met behulp van de # 4 pincet. Dat het beste uitgevoerd door het grijpen van de huid rond het niveau van de tibia en trekken naar de vingerkootjes. Het gebruik van de schaar in dit stadium het knippenzeer dunne huid is niet vereist.
- Houd zorgvuldig de tarsals van de embryonale voet met # 4 pincet en verwijder de eerste en de vijfde middenvoetsbeentjes door knijpen uit in de nabijheid van de tarsals met behulp van # 5 pincet en gooi.
- Aan de voet gehouden in dezelfde positie, gebruikt u de # 5 pincet om het bindweefsel tussen de drie resterende vingerkootjes en middenvoetsbeentjes verstoren. Steek de punt van # 5 pincet bij de verbinding tussen de vingerkootjes en middenvoetsbeentjes naar de kootjes van de middenvoetsbeentjes te verwijderen.
- Tot slot, gebruik # 5 pincet om het bindweefsel tussen de tarsals en middenvoetsbeentjes verstoren. Opnieuw zet de punt van # 5 pincet in de gezamenlijke ruimte tussen de tarsals en middenvoetsbeentjes en voorzichtig gratis de middenvoetsbeentjes uit de tarsals.
- Voorzichtig pak de nu vrij middenvoetsbeentjes met # 4 pincet en plaats in vers dissectie medium.
OPMERKING: Zorgvuldige dissectie moet 6 middenvoetsbeentjes van elk embryo te bieden. - Wanneer alle benodigde middenvoetsbeentjes zijn ontleed, carefully plaats middenvoetsbeentjes afzonderlijk in de voorverwarmde 24-well platen met 300 pl kweekmedium. Middenvoetsbeentjes kweek bij 37 ° C in een 5% CO2 incubator gedurende maximaal 14 dagen.
LET OP: Laat de media van E15 culturen veranderen tot ten minste dag 5 van de cultuur, omdat dit invloed heeft op hun mineralisatie vermogen 26. De reden hiervoor is onduidelijk, maar lineaire groei en matrix mineralisatie kan afhankelijk zijn stimulering door groeifactoren losgelaten vanuit de middenvoetsbeentjes zijn.
4. Analyse en Manipulatie van Middenvoetsbeentje Cultures
- Op de dag van dissectie (dag 0) Initiële longitudinale metingen met behulp van een microscoop met een digitale camera verbonden en beeldanalyse software. Meet de lengte van de centrale mineralisatie, wanneer zij verschijnt na een paar dagen kweken.
- Van tijd tot tijd, zoals vereist, maken verdere metingen (meestal om de 2 e dag) tot de laatste dag van de cultuur op welk punt metatarsal botten zijn afhankelijk vereist uitkomsten (besproken in de inleiding) verwerkt.
- Supplement medium middenvoetsbeentje orgel culturen met verschillende exogene factoren, bijvoorbeeld groeifactoren, hormonen en farmacologische middelen vanaf dag 0 van de cultuur 22,24. In alle studies van deze aard, de controle onbehandelde middenvoetsbeentjes zijn vereist.
LET OP: Hoewel het raadzaam dat de controle botten zijn het equivalent rudiment uit de contralaterale been, zijn er geen verschillen in lineaire groei of mineralisatie potentieel van gekweekte E15 2e geweest, 3 e en 4 e middenvoetsbeentjes (zie hieronder, figuur 2) .
Resultaten
Het doel van deze werkwijze was embryonale middenvoetsbeentjes en cultuur isoleren voor onderzoek van longitudinale botgroei en mineralisatie ECM. Met behulp van onze protocol hierin beschreven, werden embryonale middenvoetsbeentjes succesvol ontleed, zoals gevisualiseerd door lichtmicroscopie. Metingen van middenvoetsbeentjes, uitgevoerd zoals aangegeven in figuur 1, toonden hun vermogen om te groeien in longitudinale lengte en mineraliseren ECM (figuren 2 en 3). Mineralisatie van de matrix wordt eerst opgemerkt in het midden-diafyse van het bot rudiment en is gemakkelijk waargenomen met lichtmicroscopie. Geen kleuring vereist, hoewel de opname van calceïne verbeterde visualisatie van nieuw gevormde mineralen kunnen aanbieden.
Studies met behulp van embryonale middenvoetsbeentjes tot op heden 22,27,28 hebben de ontleed 2e samengevoegd, 3 e en 4 e (centraal drie) middenvoetsbeentjes, uitgaande van in vitro groei en mineralisatie om vergelijkbaar zijn. In vivo ontwikkelingsstoornissen van muizen middenvoetsbeentjes, echter blijkt dat de 3 e en 4 e cijfers hebben het bewijs van mineralisatie voorafgaand aan alle andere middenvoetsbeentjes en vingerkootjes 29. Beoordeling van de groei en de mineralisatie potentieel van individueel geïsoleerd en gekweekt E15 2 e, 3 e en 4 e middenvoetsbeentjes toonde geen significante verschillen in het uiterlijk of de omvang van de mineralisatie na 7 dagen van de cultuur (figuur 2). Geen verschil in de procentuele stijging van de uitgangswaarde werd gevonden tijdens de kweekperiode. Aangezien er geen verschillen in mineralisatie potentiële werd gewezen op de standaard protocol van de bundeling van de 2 de 3 e en 4 e middenvoetsbeentjes blijkt geldig voor toekomstige studies.
Traditioneel zijn de onderzoekers βGP toegevoegd aan mediagebruikt om de cultuur embryonale middenvoetsbeentjes om ECM mineralisatie te promoten. In celkweek onderzoeken is gebleken dat indien TNAP enzym wordt toegevoegd aan osteogeen medium dat βGP Ectopische hydroxyapatiet minerale afzetting plaatsvindt nog zelfs in afwezigheid van cellen 30. Om de effecten van verschillende substraten en mineralisatie agonisten op middenvoet mineralisatie vermogen onderzoeken we gekweekt E15 middenvoetsbeentjes in kweekmedia die verschillende supplementen en afbeeldingen en lengtemetingen werden dagelijks geregistreerd. De resultaten gaven aan dat E15 middenvoetsbeentjes nog steeds groeien en mineraliseren hun ECM in de afwezigheid van βGP. E15 middenvoetsbeentjes gekweekt in media alleen ascorbinezuur in dezelfde mate toegenomen lengte mineralisatie als middenvoetsbeentjes gekweekt in aanwezigheid van βGP (figuur 3).
We hebben ook aangetoond dat lentivirus kan worden gebruikt om exogeen DNA te transfecteren in gekweekte metatarsals. Hier hebben we met succes getransfecteerde middenvoetsbeentjes op dag 0 van cultuur (ie dag van dissectie) met 2 x 10 6 groen fluorescerend eiwit (GFP) virusdeeltjes per middenvoetsbeentje. Om virus transductie mogelijk te maken, werd polybreen tegelijkertijd toegevoegd aan kweken op 1: 500. Kweken bleven gedurende 7 dagen, zonder media vereiste wijzigingen voor E15 metatarsale mineralisatie plaatsvindt, voordat ze geïncubeerd met 4 ', 6-diamidino-2-phenylindole (DAPI) kleuring gedurende 5 min en vervolgens direct gevisualiseerd met behulp van een confocale microscoop ( figuur 4). Onze proof of concept experimenten tonen duidelijk aan effectieve transductie. Toch zou het verstandig zijn om te delen in het hele geheel van de middenvoetsbeentje bot te onderzoeken om hun transfectie en effectieve genmanipulatie beoordelen.
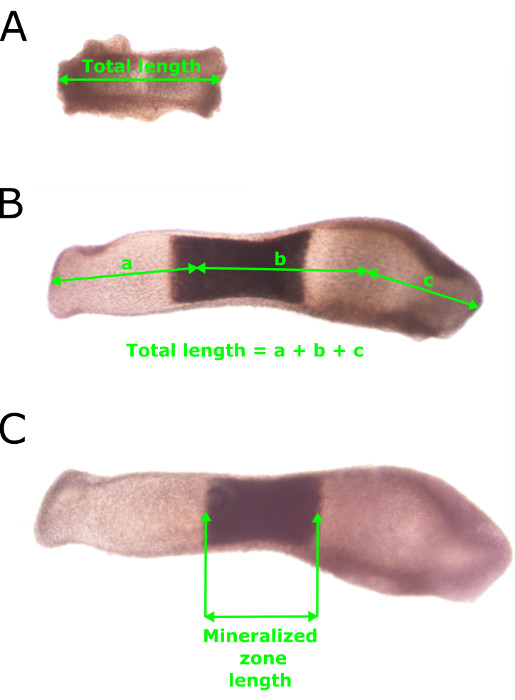
Figuur 1: Standard Methodologie gebruikt om t MeetHij Length en Mineralisering Zone van de embryonale Middenvoetsbeentjes. (A) Totale lengte metingen van E15 middenvoetsbeentjes op dag 0 van de cultuur (de dag van de dissectie) die door het centrum van het middenvoetsbeentje. (B) Metingen van de totale longitudinale lengte van een middenvoetsbeentje na zeven dagen in kweek. Let op de lichte kromming in de middenvoet. (C) Meting van de mineralisatie zone lengte na zeven dagen in de cultuur. Klik hier om een grotere versie van deze figuur te bekijken.
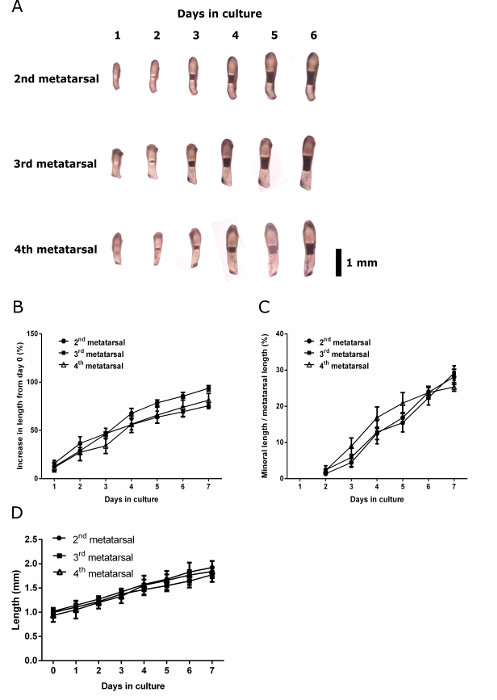
Figuur 2: Groei en Mineralisering Capaciteit van anatomisch verschillende E15 Middenvoetsbeentjes Imaging en meting van de 2e, 3e en 4e middenvoetsbeentjes uit de achterste ledematen van de E15 muizen w.zoals uitgevoerd. (A) Seriële beelden van de 2e, 3e en 4e middenvoetsbeentjes gedurende de kweekperiode. (B) Percentage toename in lengte van dag 0 op elke dag van de cultuur. (C) minerale lengte van de 2e, 3e en 4e middenvoetsbeentjes via kweekperiode uitgedrukt als percentage van de totale lengte middenvoetsbeentje. Gegevens zijn weergegeven als gemiddelde ± standaardfout van het gemiddelde (SEM), (n = 6). (D) C57BL / 6J middenvoetsbeentje lengtes op elke dag van de cultuur. Gegevens zijn weergegeven als gemiddelde ± standaardafwijking (n = 6). Black bar = 1 mm. Klik hier om een grotere versie van deze figuur te bekijken.
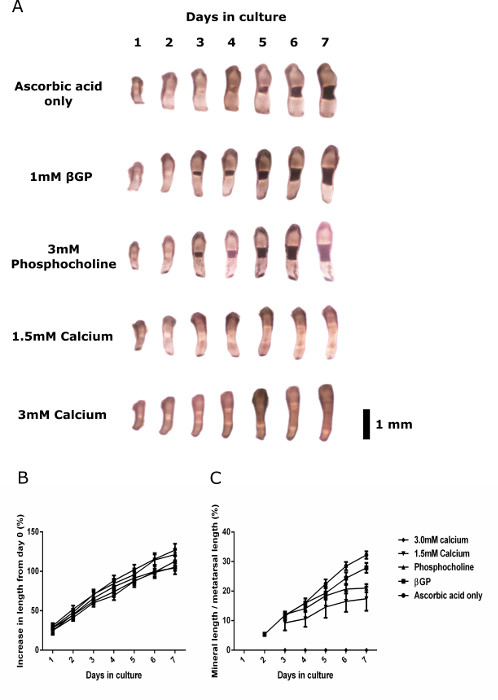
Figuur 3: Groei en mineralisatie capaciteit in het wild-typeE15 Middenvoetsbeentjes Gekweekte verschillende osteogeen Media. (A) Seriële afbeeldingen middenvoetsbeentjes gekweekt in alleen ascorbinezuur, 1 mM βGP, 3 mM fosfocholine, 1,5 mM calciumchloride of 3 mM calciumchloride bevattende media. (B) Procentuele toename in lengte van dag 0 van de middenvoetsbeentjes gekweekt met de verschillende supplementen. (C) minerale lengte van middenvoetsbeentjes gekweekt in diverse media, uitgedrukt als percentage van de totale lengte middenvoetsbeentje. Gegevens worden weergegeven als gemiddelde ± standaardfout van het gemiddelde (SEM), (n = 6). Black bar = 1 mm. Klik hier om een grotere versie van deze figuur te bekijken.
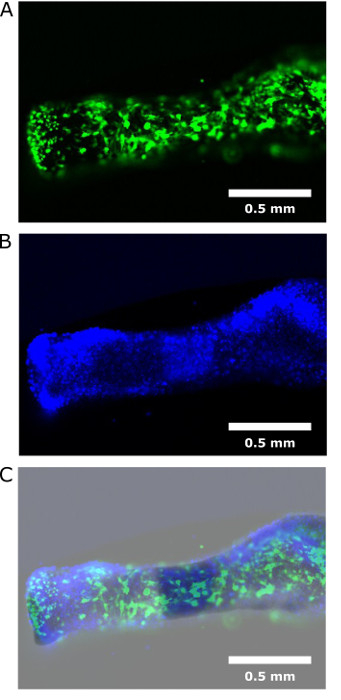
Figuur 4: Transfectie van E15 Middenvoetsbeentjes met GFP Virus Partikelen. (A) E15 middenvoetsbeentjes werden met GFP virusdeeltjes voor proof of concept. (B) Botten werden gekleurd met DAPI om DNA visualisering. (C) Dubbele aangegeven wordt succesvolle transfectie van GFP virus gedurende het geheel van de middenvoetsbeentjes. Witte balken = 0,5 mm. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
De cultuur van muizen embryonale middenvoetsbeentjes zorgt voor een zeer fysiologische model van endochondrale groei en mineralisatie. Vroege studies hebben bevestigd dat de E15 muis middenvoetsbeentjes ondergaan een normaal patroon van de groei van het skelet en differentiatie. Het kraakbeen (chondrocyten) en bot (osteoblasten en osteoclasten) cellen en hun collagene matrices niet te onderscheiden van die waargenomen in vivo. Er zijn echter een aantal erkende beperkingen van dit model. De snelheid van de differentiatie van osteoclasten wordt aangetast zoals botgroei (maar niet kraakbeen differentiatie). Botgroei is ongeveer 50% lager dan die waargenomen in vivo en kunnen door onvolkomenheden in systemische factoren die de productie van lokale factoren (bijvoorbeeld IGF-1, BMP, etc.) 31 beïnvloeden. Ook wordt algemeen erkend dat bot is gevoelig voor de mechanische omgeving en dit geldt ook voor gekweekte middenvoetsbeentjes, die reageren op cijzigingen in mechanische belasting 32,33. Daarom is in onbelaste situatie, zoals beschreven in dit protocol, mineralisatie en mineralen resorptie kunnen gecompromitteerd. Toch is de middenvoet model biedt de mogelijkheid om rechtstreeks te meten lineaire botgroei wat niet mogelijk via 2D en 3D in vitro kweeksystemen.
We hebben een uitgebreide beschrijving van de bij de dissectie en de cultuur van E15 muizen middenvoetsbeentjes en inderdaad, voor de eerste keer protocol, bevestigt de geldigheid van het bundelen van de 2 e, 3 e en 4 e middenvoetsbeentjes voor experimenten.
Middenvoetsbeentjes van E17 / E18 worden vaak gebruikt om de mechanismen van botgroei vanwege hun buitengewone mogelijkheden onderzoeken in ex vivo kweken gedurende langere tijd (dat wil zeggen na 14 dagen in kweek). Ze zijn een gevestigde model om de rol van groeifactoren onderzoek naar embryonale lengtegroei van het bot.Bovendien wordt de dissectie en cultuur van postnatale middenvoetsbeentjes gewoonlijk gebruikt om de mechanismen omringende postnatale botgroei af te bakenen wordt verstaan dat postnatale botgroei en foetale botgroei verschillend 21 worden geregeld. De botgroei waargenomen in gekweekte postnatale middenvoetsbeentjes echter aanzienlijk lager dan die waargenomen bij embryonale beginselen 25,34, beperken hun potentieel langdurig onderzoek en benadrukken de meer systemische invloed op de botgroei in dit postnatale fase. Inderdaad, 3 dagen oude postnatale middenvoetsbeentjes uit muizen meestal de laatste stand die kan worden gebruikt om meetbare groei 34 verkrijgen.
Hier beschrijven we ons protocol voor de isolatie van embryonale middenvoetsbeentjes op E15. Aangezien hydroxyapaptite mineraal in E15 middenvoetsbeentjes betekent dat zij een ongeëvenaarde model om niet alleen de mechanismen omringende lengtegroei van het bot te onderzoeken, maar ook de inleidingvan het skelet mineralisatie. De gemineraliseerde matrix van de terminal hypertrofische chondrocyten zone zorgt voor een steiger voor het binnenvallen van osteoblasten vast te stellen een bot specifieke matrix (osteoïd), die vervolgens wordt gemineraliseerd, en als zodanig deze eerste mineralisatie is van vitaal belang voor een succesvolle en functionele botvorming 35. Inderdaad een aantal recente rapporten het gebruik van E15 middenvoetsbeentjes hebben hun unieke mogelijkheid voor het onderzoek naar de mineralisatie proces 28,36,37 bevestigd. Daarnaast hebben onderzoekers het gebruik beschreven van E15 middenvoetsbeentjes als een model van angiogenese 38, wordt benadrukt dat embryonale middenvoetsbeentjes als model buiten de botgroei / mineralisatie instelling.
Het protocol beschrijven we vereist alleen standaard laboratorium apparatuur, waaronder een laminaire stroming kap, een dissectie microscoop voor het uitvoeren van de dissectie en een CO 2 incubator voor de cultuur van uitgesneden rudimenten. Bovendien is een zeer eenvoudige cultuur medium met aMEM, BSA, antibiotica, antimycotica en L-ascorbinezuur (a cofactor in de synthese van hydroxyproline en hydroxylysine, twee essentiële aminozuren voor de productie van collageen 39) vermijdt het gebruik van ongedefinieerde additieven, zoals dierlijke sera . Traditioneel hebben onderzoekers βGP media gebruikt voor kweken embryonale middenvoetsbeentje toegevoegd, maar zoals geopenbaard in onze resultaten, is het gebruik van een aanvullende fosfaatbron niet vereist voor een succesvolle mineralisatie in dit kweeksysteem. Dit is een belangrijke bevinding in ons streven naar het begrip van de mechanismen die ten grondslag liggen aan ECM mineralisatie.
Middenvoetsbeentjes eerder zijn geïnfecteerd met adenovirussen die dominant-negatieve vormen van Smad2 de rol van transformerende groeifactor β bij de regulering van lange botontwikkeling 40 staand. Hier hebben we ook onthullen de succesvolle transfectie van wild-type E15 middenvoetsbeentjes met GFP virusdeeltjes, wat aangeeft that lentivirale technieken kunnen gemakkelijk worden genomen om genexpressie te manipuleren in middenvoetsbeentje culturen. Ook de middenvoet orgaan kweeksysteem is een uitstekend model waarin de botgroei van genetisch gemanipuleerde muizen te vergelijken beter inzicht in de rol van een bepaald gen in het botgroei proces. Onze vorige studies hebben de middenvoet orgaan kweeksysteem om de rol van suppressor van cytokine signalerende 2 (SOCS2) in endochondrale botgroei bepalen benut. Gebruik middenvoetsbeentjes van muizen die SOCS2 hebben we aangetoond dat groeihormoon kunnen de lengtegroei onafhankelijk van insuline-achtige groeifactor simuleren (IGF-1), in tegenstelling tot wild-type middenvoetsbeentjes die niet reageren op behandeling met groeihormoon 34, 41. Dit illustreert de mate waarin metatarsale culturen gemanipuleerd zijn om de effecten van verschillende genen en / of exogene factoren op endochondrale botgroei onderzocht.
Kortom, we hebben detaileidde een werkwijze voor de succesvolle extractie en kweek van embryonale middenvoetsbeentjes die kunnen worden gemanipuleerd en onderzocht met verschillende analyses. Dit ex vivo model stelt cel-cel en cel-matrix interacties, alsmede bevat chondrocyten in verschillende fasen van chondrogenese derhalve een meer fysiologisch model dan cellen in monolaag of 3D cultuur. Middenvoetsbeentje orgel culturen zijn dan ook een uniek model voor het onderzoek naar de moleculaire mechanismen die verantwoordelijk zijn voor endochondrale botvorming, en zijn essentieel voor ons begrip van zowel bot fysiologie en pathofysiologie verder
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
We zijn dankbaar aan de Biotechnology and Biological Sciences Research Council (BBSRC) voor de financiering van DH (BB/J01446X/1), CF & VEM (Institute Strategic Programme Grant Funding BB/J004316/1). We danken ook Arthritis Research UK voor de financiering aan KAS (20413). We danken mevrouw Elaine Seawright voor haar hulp bij de beschreven experimenten, Dr. Neil Mackenzie voor zijn hulp bij de lentivirale technieken, en de heer Darren Smith en de heer Alex Robertson (Roslin Institute BRF) voor hun hulp bij de dierstudies.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Dissectie schaar | World Precision Instruments | 14393 | Autoclaaf steriliseren voor gebruik |
| Dumont #5 pincet | World Precision Instruments | 500342 | Autoclaaf steriliseren voor gebruik |
| Dumont #4 pincet | World Precision Instruments | 500339 | Autoclaaf steriliseren voor gebruik |
| SuperFine Vannas schaar | World Precision Instruments | 501778 | |
| Absoluut ethanol | Fisher Scientific | E/0650DF/17 | Verdunnen tot 70% v/v in dH2O |
| α-MEM zonder nucleosides | Thermo Fischer Scientific | 22561021 | |
| Bovine serum albumine | Sigma Aldrich | A3059 | |
| Spuitfilters (0,22 μm) 33 mm diameter | Merck Millipore | SLGP033RS | |
| Fosfocholinechloride calciumzout tetrahydraat | Sigma Aldrich | P0378 | Direct toevoegen aan het medium vóór experimenten |
| L-ascorbinezuur-2-fosfaat | Sigma Aldrich | A8960 | Stockoplossing aanmaken op 5mg/ml en aligoten bij -20 °C |
| Calciumchloride dihydraat | Sigma Aldrich | C5080 | Stockoplossing aanmaken op 150mM en aligoten bij -20 °C |
| β-glycerofosfaat dinatriumzout hydraat | Sigma Aldrich | G9422 | Stockoplossing aanmaken op 1mM en aligoten bij -20 °C |
| Gentamicine | Thermo Fischer Scientific | 15710049 | |
| Amphotericine B | Thermo Fischer Scientific | 15290018 | |
| Nunc celkweek behandelde 24-well platen | Thermo Fischer Scientific | 142475 | |
| Polybren | Sigma Aldrich | H9268 | |
| DAPI | Thermo Fischer Scientific | D3571 |
Referenties
- Farquharson, C., Staines, K. The skeleton: no bones about it. J. Endocrinol. 211, 107-108 (2011).
- Berendsen, A. D., Olsen, B. R. Bone development. Bone. 80, 14-18 (2015).
- Kronenberg, H. M. Developmental regulation of the growth plate. Nature. 423, 332-336 (2003).
- Komori, T. Regulation of bone development and extracellular matrix protein genes by RUNX2. Cell Tissue Res. 339, 189-195 (2010).
- de Crombrugghe, B., Lefebvre, W. Regulatory mechanisms in the pathways of cartilage and bone formation. Curr. Opin. Cell Biol. 13, 721-727 (2001).
- Hall, B. K. Bones and Cartilage: Developmental and Evolutionary Skeletal Biology. , Elsevier Academic Press. (2005).
- Farquharson, C., Jefferies, D. Chondrocytes and longitudinal bone growth: The development of tibial dyschondroplasia. Poult. Sci. 79, 994-1004 (2000).
- Cooper, K. L., et al. Multiple phases of chondrocyte enlargement underlie differences in skeletal proportions. Nature. 495, 375-378 (2013).
- Wuthier, R. E., Lipscomb, G. F. Matrix vesicles: structure, composition, formation and function in calcification. Front. Biosci. 16, 2812(2011).
- Roberts, S., Narisawa, S., Harmey, D., Millan, J. L., Farquharson, C. Functional involvement of PHOSPHO1 in matrix vesicle-mediated skeletal. J. Bone Miner. Res. 22, 617-627 (2007).
- Cui, L., Houston, D. A., Farquharson, C., MacRae, V. E. Characterisation of matrix vesicles in skeletal and soft tissue mineralisation. Bone. 87, 147-158 (2016).
- Brighton, C. T. Structure and Function of Growth Plate. Clin. Orthop. , 22-32 (1978).
- Shim, K. S. Pubertal growth and epiphyseal fusion. Annals of pediatric endocrinology & metabolism. 20, 8-12 (2015).
- Staines, K. A., Pollard, A. S., McGonnell, I. M., Farquharson, C., Pitsillides, A. A. Cartilage to bone transitions in health and disease. J. Endocrinol. 219, R1-R12 (2013).
- Hunziker, E. B., Schenk, R. K., Cruzorive, L. M. Quantitation of Chondrocyte Performance in Growth-Plate Cartilage During Longitudinal Bone-Growth. Journal of Bone and Joint Surgery-American. 69A, 162-173 (1987).
- Breur, G. J., Vanenkevort, B. A., Farnum, C. E., Wilsman, N. J. Linear Relationship Between The Volume Of Hypertrophic Chondrocytes And The Rate Of Longitudinal Bone-Growth In Growth Plates. J. Orthop. Res. 9, 348-359 (1991).
- Ma, B., et al. Gene expression profiling of dedifferentiated human articular chondrocytes in monolayer culture. Osteoarthritis Cartilage. 21, 599-603 (2013).
- Thesingh, C. W., Burger, E. H. The role of mesenchyme in embryonic long bones as early deposition site for osteoclast progenitor cells. Dev. Biol. 95, 429-438 (1983).
- Scheven, B. A., Hamilton, N. J. Longitudinal bone growth in vitro: effects of insulin-like growth factor I and growth hormone. Acta endocrinologica. 124, 602-607 (1991).
- Coxam, V., Miller, M. A., Bowman, M. B., Miller, S. C. Ontogenesis of IGF regulation of longitudinal bone growth in rat metatarsal rudiments cultured in serum-free medium. Archives of physiology and biochemistry. 104, 173-179 (1996).
- Andrade, A. C., Chrysis, D., Audi, L., Nilsson, O. Methods to study cartilage and bone development. Endocr Dev. 21, 52-66 (2011).
- Mushtaq, T., Bijman, P., Ahmed, S. F., Farquharson, C. Insulin-like growth factor-I augments chondrocyte hypertrophy and reverses glucocorticoid-mediated growth retardation in fetal mice metatarsal cultures. Endocrinology. 145, 2478-2486 (2004).
- Owen, H. C., Miner, J. N., Ahmed, S. F., Farquharson, C. The growth plate sparing effects of the selective glucocorticoid receptor modulator, AL-438. Mol. Cell. Endocrinol. 264, 164-170 (2007).
- MacRae, V. E., Farquharson, C., Ahmed, S. F. The restricted potential for recovery of growth plate chondrogenesis and longitudinal bone growth following exposure to pro-inflammatory cytokines. J. Endocrinol. 189, 319-328 (2006).
- Chagin, A. S., Karimian, E., Sundstrom, K., Eriksson, E., Savendahl, L. Catch-up growth after dexamethasone withdrawal occurs in cultured postnatal rat metatarsal bones. J. Endocrinol. 204, 21-29 (2010).
- Haaijman, A., et al. Inhibition of terminal chondrocyte differentiation by bone morphogenetic protein 7 (OP-1) in vitro depends on the periarticular region but is independent of parathyroid hormone-related peptide. Bone. 25, 397-404 (1999).
- Haaijman, A., Dsouza, R. N., Bronckers, A., Goei, S. W., Burger, E. H. OP-1 (BMP-7) affects mRNA expression of type 1, II, X collagen, and matrix Gla protein in ossifying long bones in vitro. J. Bone Miner. Res. 12, 1815-1823 (1997).
- Staines, K. A., et al. MEPE is a novel regulator of growth plate cartilage mineralization. Bone. 51, 418-430 (2012).
- Kaufman, M. The atlas of mouse development. , 3, Academic Press. (1992).
- Boskey, A. L., Roy, R. Cell Culture Systems for Studies of Bone and Tooth Mineralization. Chem. Rev. 108, 4716-4733 (2008).
- Minkin, C., et al. Skeletal development and formation of osteoclast-like cells from in situ progenitors in fetal mouse metatarsals cultured in chemically defined. Bone Miner. 12, 141-155 (1991).
- Kleinnulend, J., Veldhuijzen, J. P., Burger, E. H. Increased calcification of growth plate cartilage as a result of compressive force in vitro. Arthritis Rheum. 29, 1002-1009 (1986).
- Kleinnulend, J., Veldhuijzen, J. P., Vanstrien, M. E., Dejong, M., Burger, E. H. Inhibition of osteoclastic bone-resorption by mechanical stimulation in vitro. Arthritis Rheum. 33, 66-72 (1990).
- Dobie, R., et al. Increased linear bone growth by GH in the absence of SOCS2 is independent of IGF-1. J. Cell. Physiol. 230, 2796-2806 (2015).
- Heilig, J., Paulsson, M., Zaucke, F. Insulin-like growth factor 1 receptor (IGF1R) signaling regulates osterix expression and cartilage matrix mineralization during endochondral ossification. Bone. 83, 48-57 (2016).
- Huesa, C., et al. The functional co-operativity of tissue-nonspecific alkaline phosphatase (TNAP) and PHOSPHO1 during initiation of skeletal mineralization. Biochemistry and Biophysics Reports. 4, 196-201 (2015).
- Staines, K. A., et al. Endochondral Growth Defect and Deployment of Transient Chondrocyte Behaviors Underlie Osteoarthritis Onset in a Natural Murine Model. Arthritis & Rheumatology. 68, 880-891 (2016).
- Song, W., et al. The fetal mouse metatarsal bone explant as a model of angiogenesis. Nature Protocols. 10, 1459-1473 (2015).
- Libby, P., Aikawa, M. Vitamin C, collagen, and cracks in the plaque. Circulation. 105, 1396-1398 (2002).
- Alvarez, J., Serra, R. Unique and redundant roles of Smad3 in TGF-beta-mediated regulation of long bone development in organ culture. Dev. Dyn. 230, 685-699 (2004).
- Pass, C., MacRae, V. E., Huesa, C., Ahmed, S. F., Farquharson, C. SOCS2 is the critical regulator of GH action in murine growth plate chondrogenesis. J. Bone Miner. Res. 27, 1055-1066 (2012).
Herprints en machtigingen
