Synaptic vesikel endocytose is gedetecteerd door de lichte microscopie van pHluorin gefuseerd met synaptic vesikel eiwit en elektronenmicroscopie van vesikel opname.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Meten van Synaptic vesikel endocytose in gekweekte Hippocampal neuronen
In dit artikel
Samenvatting
Samenvatting
Tijdens endocytose, worden gesmolten synaptische vesikels opgehaald bij zenuw terminals, waardoor voor vesikel recycling en dus het onderhoud van synaptische transmissie tijdens herhaalde zenuw afvuren. Verminderde endocytose in pathologische omstandigheden leidt tot afname van de synaptische sterkte en hersenen functies. Hier beschrijven we methoden voor het meten van synaptic vesikel endocytose in de synaps zoogdieren hippocampal in neuronale cultuur. We synaptic vesikel eiwit endocytose gecontroleerd door het smelten van een synaptic vesiculaire membraan eiwit, inclusief synaptophysin en VAMP2/synaptobrevin, de vesiculaire lumenal kant, met pHluorin, een pH-gevoelige groen fluorescent proteïne dat verhoogt haar de intensiteit van de fluorescentie aangezien de pH stijgt. Tijdens exocytose, vesiculaire lumen pH verhoogt, terwijl tijdens endocytose vesiculaire lumen pH opnieuw aangezuurde is. Dus geeft een stijging van pHluorin fluorescentie intensiteit fusion, overwegende dat een daling endocytose van het gelabelde synaptic vesikel-eiwit blijkt. Naast het gebruik van de beeldvorming methode pHluorin opnemen endocytose, gecontroleerd we vesiculaire membraan endocytose door elektronenmicroscopie (EM) metingen van Horseradish peroxidase (HRP) opname door blaasjes. Tot slot, wij gecontroleerd de vorming van zenuw terminal membraan kuilen op verschillende tijdstippen na hoog kalium-geïnduceerde depolarisatie. Het tijdsverloop van de vorming van HRP opname en membraan pit geeft aan het tijdsverloop van endocytose.
Inleiding
Neurotransmitters zijn opgeslagen in synaptische vesikels en uitgebracht door exocytose. De synaptische vesikel membraan eiwit zijn geïnternaliseerd door endocytose en hergebruikt in de volgende ronde van exocytose. Endocytose van synaptische vesikels is belangrijk voor het behoud van synaptic vesikel zwembaden en uitstekende blaasjes verwijdert uit het plasma-membraan. De pH-gevoelige groen fluorescent proteïne pHluorin, die is uitgeblust in zure omstandigheden en dequenched in neutrale pH, is gebruikt om endocytose tijd cursussen in cellen1,2,3 levendete meten. Het pHluorin eiwit is meestal gekoppeld aan de lumenal kant van synaptic vesikel eiwitten, zoals synaptophysin of VAMP2/synaptobrevin. In rust, is de pHluorin in de 5,5 pH lumen van synaptische vesikels uitgeblust. Vesikel fusie aan het plasma-membraan blootstelt de vesiculaire lumen aan de extracellulaire oplossing waar de pH ~ 7.3 is, resulterend in een stijging in pHluorin fluorescentie. Na exocytose vervalt de verhoogde fluorescentie, als gevolg van endocytose van synaptic vesikel eiwitten gevolgd door vesikel opnieuw verzuring binnen deze herstelde blaasjes. Hoewel het verval zowel endocytose en vesiculaire opnieuw verzuring weerspiegelt, hierin meestal endocytose, omdat opnieuw verzuring sneller dan endocytose in de meeste omstandigheden1,4 is. De tijdconstante van opnieuw verzuring is 3-4-s of minder5,6, dat over het algemeen sneller dan de 10 is s of meer vereist voor vesikel endocytose4,5. Als experimenten nodig zijn voor het onderscheiden van endocytose van opnieuw verzuring, kunnen zuur blussen experimenten met behulp van de 4-Morpholineethanesulfonic (MES) zuuroplossing (25 mM) met een pH van 5.5 worden gebruikt om te bepalen of synaptic vesikel eiwitten worden opgehaald uit het plasma-membraan via endocytose1,3,4. Dus, de verhoging van de intensiteit van de fluorescentie van pHluorin weerspiegelt een balans van exo- en endocytose en de daling na zenuwstimulatie specifiek weerspiegelt endocytose.
pHluorin imaging mogen worden gebruikt niet alleen voor het meten van het tijdsverloop van endocytose, maar ook de grootte van synaptic vesikel zwembaden7,8, en de waarschijnlijkheid van evoked introductie en spontane release9. Vele factoren en eiwitten die betrokken zijn bij het reguleren van endocytose, zoals calcium, oplosbare NSF-gehechtheid eiwit receptor (SNARE) eiwitten, hersenen-afgeleide neurotrophic factor(BDNF) en calcineurin zijn geïdentificeerd met behulp van pHluorin imaging1 , 2 , 10 , 11 , 12 , 13 , 14 , 15 , 16. Bovendien, vrijlating van de neurotransmitter in niet alleen primaire neuronen maar in cellen van het neuroblastoom met TIRFM17kon worden opgespoord. Onlangs, pHluorin varianten, dsRed, mOrange en pHTomato werden ontwikkeld voor monitoring van gelijktijdige opnamen van meerdere factoren in een enkele synapse18,19. Bijvoorbeeld, is pHTomato gefuseerd met synaptophysin en gebruikt met een genetisch gecodeerde calcium indicator (GCaMP5K) voor het bewaken van de presynaptische vesikel fusion en Ca2 + toestroom in de postsynaptisch compartiment20. Daarom, pHluorin gekoppeld aan synaptic eiwitten biedt een handige methode voor het analyseren van de relatie tussen endocytose en exocytose.
EM is een andere methode gebruikt bij het bestuderen van endocytose, als gevolg van de hoge ruimtelijke resolutie waarin ultrastructurele wijzigingen tijdens endocytose. Twee algemene gebieden zijn de capaciteit om te visualiseren pathologische veranderingen binnen de neuronale cellen21 en bijhouden van vesikel eiwitten22. In het bijzonder, de waarneming van synaptic vesikel opname, membraan kromming bekleed door clathrin in de periactive zone en endosomal structuren zijn mogelijk met EM3,23,24,25 ,26,27,28. Terwijl EM potentiële artefacten, zoals fixeer-geïnduceerde misvormingen impliceert, die van invloed kunnen zijn op de endocytose en data-analyse is arbeidsintensief, dat de resolutie biedt een aantrekkelijke mogelijkheid om te visualiseren van cellulaire structuur. Potentiële kleefpoeders problemen en de beperking in EM temporele resolutie kunnen worden overwonnen door de hoge druk bevriezing, het verstrekken van een snelle en niet-chemische methode voor het stabiliseren van de delicate structuren aanwezig tijdens endocytose27.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Opmerking: het volgende protocol beschrijft de pHluorin imaging en EM methoden gebruikt bij gekweekte hippocampal neuronen. pHluorin monitoren synaptic vesikel eiwit opname in levende cellen en EM detecteert opname van synaptic blaasje en Ultrastructurele wijzigingen.
verzorging van de dieren en procedure zijn goedgekeurd door de NIH Animal Care en gebruik Comité NIH richtsnoeren gevolgd.
1. pHluorin Imaging
- Hippocampal neuron cultuur
- voorbereiden Hippocampus Buffer (HB) door 4 mM NaHCO 3 en 5 mM HEPES te combineren en aan te passen aan pH 7,3 met 5 M NaOH. Controleer het kweekmedium door het mengen van neurobasal medium, 2% B27, 0.5 mM L-glutamine en 1% penicilline-streptomycine. Daarnaast bereiden een mengsel van HB buffer met 20% foetale runderserum (HB/20% FBS).
Opmerking: Deze kweken protocol is gebaseerd op Sankaranarayanan, et al.. 29 en Wu et al.. 24 - decapitate muis pups tussen postnatale dag 0 tot dag 2 in cultuurmedium, en haal de hersenen in 4 ° C HB/20% FBS. De hersenstam en de thalamus bloot de hippocampi te verwijderen. Uit de hippocampi, na de blootstelling door verwijdering van de hersenstam en de thalamus, ontleden en overbrengen in vers 4 ° C HB/20% FBS.
Opmerking: Doorgaans, opbrengst is ongeveer 4 x 10 5 cellen/mL voor een pup (twee hippocampi). Schoon uit de daaraan vastzittende membranen met pincet of schaar, dan naar vers 4 ° C HB/20% FBS. De getand gyrus uitrollen en isoleren van de subiculum door te snijden met schaar, dan naar vers 4 ° C HB/20% FBS. - Delen van elk hippocampus, door het van begin tot eind, in ongeveer 10 plakjes snijden en overbrengen naar een polypropyleen conische tube van 15 mL.
- Na het toestaan van het weefsel te vestigen, was met 10 mL HB/20% FBS, en daarna wassen drie keer met 10 mL HB.
- Spijsvertering oplossing van 137 mM NaCl, 5 mM KCl, 7 mM Na2HPO 4 en 25 mM HEPES bereiden en aan te passen aan pH 7,2 met 5 M NaOH. Verwijder de bovendrijvende vloeistof uit de hippocampi. Trypsine 10 mg en 1 mg DNase toevoegen aan 2 mL spijsvertering oplossing en filtreer door een membraan van de steriele 0,22 µm rechtstreeks op de monster-pellet.
- Broeden de hippocampi gedurende 5 minuten bij 37 ° C, dan was tweemaal met 10 mL HB/20% FBS, en daarna een keer wassen met 10 mL HB.
- Distantiëren de cellen met 6 mg van MgSO 4 ∙ 7 H 2 O en 1 mg DNase 2 mL HB te steriel filter op de hippocampi pellet via een steriele 0,22 µm filter. Zachtjes distantiëren de cellen door zorgvuldige triturating, terwijl het verzorgen om te voorkomen dat de invoering van luchtbellen. Toestaan van weefsel deeltjes te regelen voor 2 min en dan langzaam het supernatant overdragen aan een andere buis.
- Voeg 3 mL HB/20% FBS aan celsuspensie, en centrifuge of 10 min bij 4 ° C en 1000 rpm. Verwijder het supernatant en resuspendeer kweekmedium.
- Plaat 60.000 cellen gesuspendeerd in 150 µL cultuurmedium op een dekglaasje aan voor de 25-mm diameter van Poly-D-Lysine bekleed, zonder morsen uit het dekglaasje aan. Voeg 2 mL voorverwarmde kweekmedium 2 h na beplating. Coverslips worden bijgehouden in kweken 6-Wells-platen of steriele petrischalen.
- Behouden cellen bij 37 ° C in een 5% CO 2 bevochtigde incubator in een kweekvloeistof voor 14-21 dagen vóór de opname. Tijdens de groei van de cultuur, veranderen de bovenste helft van het medium tweemaal per week.
- voorbereiden Hippocampus Buffer (HB) door 4 mM NaHCO 3 en 5 mM HEPES te combineren en aan te passen aan pH 7,3 met 5 M NaOH. Controleer het kweekmedium door het mengen van neurobasal medium, 2% B27, 0.5 mM L-glutamine en 1% penicilline-streptomycine. Daarnaast bereiden een mengsel van HB buffer met 20% foetale runderserum (HB/20% FBS).
- Transfectie
- 6-7 dagen na de beplating, transfect synaptophysin-pHluorin 2 X (SpH) of VAMP2-pHluorin in de hippocampal neuronen. Voor SpH, gebruikt u een promotor Cytomegalovirus (CMV), een pcDNA3 vector 30 ingevoegd. Gebruik een CMV-promotor ingevoegd in een pCI vector 31 voor VAMP2-pHluorin,.
- Transfect ofwel vector door vervoerder van de lipide in de doelcellen, met behulp van 1 µg plasmide. Gebruik kweekmedium vanaf protocol stap 1.1.1, die serum mist, voor de transfectie. Wijzigen van het medium 2 h na transfectie om toxiciteit.
Opmerking: In het geval van lage uitdrukking van SpH in de los, verhogen de concentratie van de DNA 2 µg of de incubatietijd met de lipide vervoerder, tenzij de cellen ongezond zijn. Typisch, 4-10 cellen (0.006-0,008%) van neuronen zijn transfected.
- De lichte microscopie van
- de normale zoutoplossing voorbereiden bestaat uit 119 mM NaCl, 2 mM CaCl 2, 2.5 mM KCl, 25 mM HEPES (pH 7.4), glucose van 30 mM, 2 mM MgCl 2, 6-cyano-7-nitroquinoxaline-2,3-dione (0,01 mM CNQX), en 0.05 mM DL-2-amino-5-phosphonovaleric zuur (AP5). Neem een dekglaasje aan van het kweekmedium plaat en plaats op een imaging kamer waarmee veld stimulatie, met behulp van smeermiddel en afdichtmassa te voorkomen van lekken. Vermijd het droog tijdens de overdracht van een dekglaasje aan van de plaat aan de kamer door direct het toevoegen van 750 µL normale zoutoplossing glas laten.
Opmerking: CNQX en AP5 werden gebruikt voor het blokkeren van postsynaptisch activiteit, die het potentieel voor terugkerende activiteit heeft. Gebruik alvorens een kamer in een omgekeerde fluorescentie Microscoop brengen, schoonmaak weefsel om te bevestigen dat de kamer doet niet lek. Focus wijzigingen tijdens de opname langzaam lekken veroorzaakt door het mengen van normale saline en immersie-olie, wat in veranderingen in de brekingsindex resulteert. - Stimulatie en opname
- afbeelding op een omgekeerde widefield Microscoop met een 60 X (1.4 numerieke diafragma) olie-immersie lens met een HQI-lamp. Visualiseren van pHluorin met een filter instellen voor een piek van de excitatie van 480 nm, een 490 nm lange pass spiegel, een 500-550 nm emissie filter en een handmatige flip sluiter. Fotograferen elke 100 ms, met 2 x 2 weggooien, met behulp van de camera van een elektron te vermenigvuldigen last gekoppeld apparaat (EMCCD).
Opmerking: Verschillende functies moeten worden beschouwd als te vermijden photobleaching, met inbegrip van de interval voor het vastleggen van de afbeelding, de juiste omstandigheden te bereiken en te filteren en weggooien, die afhankelijk zijn van apparatuur. In het geval van confocal imaging, moet laser macht en blootstelling tijd worden overwogen om te voorkomen dat photobleaching. De installatie werd vastgesteld na het opnemen van ten minste 3 min. zonder prikkel en de opname werd uitgevoerd voor ten minste 10 s zonder prikkel om te controleren op photobleaching. - Kies een gebied met een hoge dichtheid van boutons voor het gemak van de analyse in elk experiment. Transfected cellen worden geïdentificeerd door hun groene fluorescentie-signaal, met nadruk op de ronde of ovale expressiepatronen in de bouton en continu expressie tussen los.
- Induce endocytose door veld stimulatie met behulp van een 1 ms puls, 20 mA actiepotentiaal (AP) kopen van een pulse stimulator en geleverd via een platina-elektrode in de isolatieinrichting stimulans. Afbeelding van de fluorescentie activiteit in de loop van de stimulatie en tijdens het herstel van de cel.
Opmerking: In het geval van dode cellen, expressie was sterker dan levende los en toonde een fragmentarisch patroon tussen los.
- afbeelding op een omgekeerde widefield Microscoop met een 60 X (1.4 numerieke diafragma) olie-immersie lens met een HQI-lamp. Visualiseren van pHluorin met een filter instellen voor een piek van de excitatie van 480 nm, een 490 nm lange pass spiegel, een 500-550 nm emissie filter en een handmatige flip sluiter. Fotograferen elke 100 ms, met 2 x 2 weggooien, met behulp van de camera van een elektron te vermenigvuldigen last gekoppeld apparaat (EMCCD).
- de normale zoutoplossing voorbereiden bestaat uit 119 mM NaCl, 2 mM CaCl 2, 2.5 mM KCl, 25 mM HEPES (pH 7.4), glucose van 30 mM, 2 mM MgCl 2, 6-cyano-7-nitroquinoxaline-2,3-dione (0,01 mM CNQX), en 0.05 mM DL-2-amino-5-phosphonovaleric zuur (AP5). Neem een dekglaasje aan van het kweekmedium plaat en plaats op een imaging kamer waarmee veld stimulatie, met behulp van smeermiddel en afdichtmassa te voorkomen van lekken. Vermijd het droog tijdens de overdracht van een dekglaasje aan van de plaat aan de kamer door direct het toevoegen van 750 µL normale zoutoplossing glas laten.
- Beeldanalyse
- Voor het analyseren van de intensiteit van de fluorescentie in een enkele bouton, instellen van een regio van belang (ROI) als een 1.5 x 1,5 µm vierkante; de grootte van een bouton is binnen ongeveer 1,5 µm. gebruik sporen voorafgaand aan stimulatie aftrekken als achtergrond te checken voor photobleaching.
- Normaliseren fluorescentie wijzigen (ΔF) met de vergelijking:
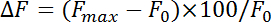
waar max F en F 0 verwijzen naar maximale verhoging na stimulatie en basislijn fluorescentie, respectievelijk. Meten endocytose tarieven als de koers van verval tijdens de eerste 4-10 s na het maximale punt van pHluorin fluorescentie. De tijdconstante (τ) van endocytose verkrijgen door het aanbrengen van het verval van de pHluorin-fluorescentie van de verhoging van de piek op de basislijn met een mono-exponentiële functie.
2. Elektronenmicroscopie
- voorbereiden een Poly-D-Lysine gecoat 6-well plaat door toepassing van 1,5 mL 0,01% steriele gefiltreerd Poly-D-Lysine oplossing aan elk putje gedurende 1 uur bij kamertemperatuur en vervolgens driemaal met gesteriliseerd water wassen. Ontleden, cultuur en hippocampal neuronen in stappen 1.1.1, 1.1.2 en 1.1.3, respectievelijk onderhouden.
- Voorbereiden een hoge K + stimulatie oplossing met HRP als 31.5 mM NaCl, 2 mM CaCl 2, 90 mM KCl, 25 mM HEPES (pH 7.4), glucose van 30 mM, 2 mM MgCl 2, 0,01 mM CNQX 0.05 mM AP5 en 5 mg/mL HRP, vervolgens aanpassen op een pH van 7,4 met 5 M NaOH.
- Stimuleren de hippocampal neuron cultuur met 1,5 mL hoge K + stimulatie oplossing bij kamertemperatuur (hierna aangeduid als K +) door toevoeging van 1,5 mL aan elk putje voor 90 s. In de rust toestand (R genoemd), gelden dezelfde concentratie van 5 mg/mL HRP voor 90 s, maar met normale zoutoplossing. Voor het herstel monster, toepassing van hoge K + stimulatie oplossing net als bij het monster K +, dan snel wassen en vervangen door normale zout en incubeer gedurende 10 min.
- Fixatie en kleuring
- bereiden van 0,1 M nb cacodylate buffer met behulp van 21.4 g/L Na cacodylate met een pH van 7,4. Het herstellen van cellen met 4% Glutaaraldehyde in 0,1 M nb cacodylate buffer voor ten minste 1 uur bij kamertemperatuur. Wassen drie keer met 0,1 M nb cacodylate buffer voor elk 7 min.
- Bereiden Diaminobenzidine (DAB) oplossing, samengesteld uit 0,5 mg/mL schar met 0,3% H 2 O 2 in ddH 2 O en filter met een 0,22 µm filter. Toepassing van 1,5 mL DAB oplossing gedurende 30 minuten bij 37 ° C. wassen drie keer met 0,1 M nb cacodylate buffer voor elk 7 min.
Let op: DAB is een toxische en vermoedelijke kankerverwekkend. Gebruik handschoenen en Labjassen.
Opmerking: Labelen met DAB optreedt als gevolg van de oxidatie door H 2 O 2, zoals gekatalyseerd door HRP. Kleine stijging van het resultaat van de componenten in een verhoogd signaal in het monster. Verhoging van de concentratie van HRP versnelt het effect van de katalysator. Voldoende grote concentraties van de H 2 O 2 toestaan voor slopende kant reacties met HRP, remming van het effect van het labelen van 32. In dit werk, de concentraties van deze labeling systeem werden gekozen op basis van de momenteel beschikbare onderzoek 33 , 34. - Broeden de neuronen met 1,5 mL voor 1% OsO 4 in 0,1 M nb cacodylate buffer gedurende 1 uur bij 4 ° C als post fixatie. Wassen drie keer met 1,5 mL 0,1 M nb cacodylate buffer voor elk 7 min.
Let op: Vanwege de toxiciteit en de reactiviteit van OsO 4, houden van het monster op het ijs in een chemische kap is te verkiezen boven in veel gevallen met behulp van een koelkast voor de incubatie. - Voorbereiden 0,1 M natrium acetaat buffer met 13.61 g/L natrium acetaat en 11,43 mL/L ijsazijn bij pH 5.0. Spoel driemaal met 1,5 mL 0,1 M acetaat buffer met een pH van 5.0 voor elke 7 min en incubeer met 1,5 mL 1% uranyl acetaat in 0,1 M acetaat buffer met een pH van 5.0 gedurende 1 uur bij 4 ° C. Wash driemaal met 1,5 mL 0,1 M acetaat buffer voor elk 7 min.
- Epoxy insluiten
- uitdrogen van het neuron cultuur met één 1,5 mL wasbeurten van 50%, 70% en 90% ethanol, gedurende 7 minuten in elk en vervolgens 3 wast van 1,5 mL 100% ethanol gedurende 7 minuten in een zuurkast.
- Mix 485 mL/L reactieprodukt epoxy hars, 160 mL/L dodecenyl succinic anhydride (DDSA), 340 mL/L Methyl-5-Norborneen-2,3-dicarbon Anhydride (NMA) en 15 mL/L 2,4,6-tris (dimethylaminomethyl) fenol (DMP-30) maken de epoxy hars. Mix grondig, die vervolgens worden opgeslagen onder vacuüm te verwijderen van luchtbellen.
Opmerking: Het is cruciaal voor het verwijderen van luchtbellen in de hars, met name die kleiner is dan zichtbaar voor het blote oog, omdat ze leiden holtes in de hars tijdens segmenteren tot kunnen. - Infiltreren het monster door vervanging van de ethanol met 50% epoxy hars in ethanol gedurende 30 minuten bij kamertemperatuur op een shaker, dan 70% epoxy hars in ethanol gedurende 30 minuten bij kamertemperatuur in een roteerapparaat.
- Schakelaar de epoxy hars oplossing met 100% epoxyhars en incubeer gedurende 10 min bij 50 ° C. uitvoeren twee uitwisselingen van vers 100% epoxyhars met incubations gedurende 1 uur bij 50 ° C. toevoegen vers 100% epoxy hars en toestaan om te harden bij 50 ° C's nachts, en klik vervolgens op 60 & #17 6; C voor meer dan 36 h te verharden.
- Verwijderen van elk monster uit de muti-well-plaat met een juwelier ' s handzaag. Selecteer de regio's van belang, dichte concentraties van cellen, met behulp van een omgekeerde licht microscope, en vervolgens gesneden 70 tot 80 nm blokken voor het segmenteren is door de microtoom. Mount het uitgesneden gebied in de microtoom chuck en laadt u de microtoom. Plaats de chuck in de microtoom en monteren van een diamant-mes met de rand die parallel loopt met het vlak van het blok. Verzamelen van secties van 70 tot 80 nm dikte direct op individuele rasters.
- Los uranyl acetaat in water voor een 1%-oplossing van het gewicht, en afzonderlijk los lood citraat in water voor een oplossing van 3% van het gewicht. De secties door onderdompeling met 1% waterige uranyl acetaat gedurende 15 minuten en dan 3% waterige lood citraat voor 5 min ter verbetering van het contrast van de monsters counterstain.
- EM imaging
- onderzoeken van de secties met een transmissie-elektronenmicroscoop en record beelden met een CCD digitale camera bij een primaire vergroting van 10.000-20, 000 X 3.
- Statistieken
- uitvoeren van een t-test te identificeren van significante verschillen door het vergelijken van de gemiddelde en de standaardafwijking van de meting (s.e.m.) tussen het besturingselement en de experimentele monsters.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Met behulp van de methode van de vervoerder lipide, is SpH uitgedrukt in de hippocampal neuronen, waardoor voor de identificatie van Los (Figuur 1a). Elektrische stimulatie van de cellen geïnduceerde exocytose en een overeenkomstige stijging van de intensiteit van de fluorescentie. De verhoging van fluorescentie (ΔF) werd gestopt door beëindiging van de stimulus (Figuur 1b). De verhoogde fluorescentie werd gevolgd door een langza...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Hier tonen we twee methoden voor de controle van de synaptische vesikel endocytose. In de eerste methode gecontroleerd we pHluorin met een synaptic vesikel eiwit in transfected neuronen gesmolten en vervolgens elektrisch gestimuleerd. Ten tweede hebben we gebruikt EM beeldvorming van HRP opname zoals geïnduceerd door KCl. We gebruikten verschillende prikkels om twee redenen. Ten eerste, toepassing van hoge kalium induceert depolarisatie van alle neuronen in de cultuur. Dit vergemakkelijkt EM onderzoek, gezien het feit da...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
Wij bedanken Dr. Yong-Ling Zhu voor het verstrekken van synaptophysin-pHluorin2x-construct, en Dr. James E. Rothman voor het verstrekken van VAMP2-phluorin. Wij danken Dr. Susan Cheng en Virginia Crocker van NINDS elektronenmicroscopie faciliteit voor hun technische ondersteuning en hulp. Dit werk werd gesteund door de National Institute of Neurological Disorders en beroerte intramurale Research Program in de Verenigde Staten en een subsidie van het KRIBB initiatief onderzoeksprogramma (Korean biomedisch wetenschapper Fellowship Program), Korea Research Institute van Biowetenschappen en biotechnologie, Republiek Korea.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
```html
```
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Lipofectamine LTX with Plus | Thermo Fisher | 15338-100 | Transfectie van plasmide-DNA inclusief synaptofysine of VAMP2-pHluorine |
| neurobasal medium | Thermo Fisher | 21103-049 | Groeimedium voor neuron, opwarmen tot 37°C voor gebruik |
| B27 | Thermo Fisher | 17504-044 | Gradiënt voor neuronale differentiatie |
| Glutamax | Thermo Fisher | 35050-061 | Gradiënt voor neuronale cultuur |
| Poly-D-Lysine gecoate dekglas | Neuvitro | GG-25-pdl | Substraat voor neuronale groei en beeldvorming van pHluorine |
| Trypsine XI uit runderspens | Sigma | T1005 | Neuronale cultuur-verteer hippocampale weefsels |
| Deoxyribonuclease I uit runderspens | Sigma | D5025 | Neuronale cultuur-remmer van viskeuze celsuspensie |
| puls stimulator | A-M systems | model 2100 | Toepassen van elektrische stimulatie |
| Slotted bath met veldstimulatie | Warner Instruments | RC-21BRFS | Toepassen van elektrische stimulatie |
| stimulus isolatie-eenheid | Warner Instruments | SIU102 | Toepassen van elektrische stimulatie |
| smeermiddel | Dow corning | 111 | pHluorine beeldvorming-afdichting met dekglas en beeldvormingskamer, vermijd lek uit de kamer |
| AP5 | Tocris | 3693 | Gradiënt voor normale zoutoplossing, selectieve NMDA-receptorantagonist, remmen van postsynaptische activiteit met potentieel voor recurrente activiteit |
| CNQX | Tocris | 190 | Gradiënt voor normale zoutoplossing, competitieve AMPA/kainate-receptorantagonist, remmen van postsynaptische activiteit met potentieel voor recurrente activiteit |
| Illuminator | Nikon | C-HGFI | Metaalhalogenide lichtbron voor pHluorine |
| EMCCD camera | Andor | iXon3 | pHluorine beeldvorming, detectie van pHluorine fluorescentie-intensiteit |
| Inverted microscoop | Nikon | Ti-E | Beeldvorming voor synaptofysine of VAMP2 pHluorine getransfecteerde cellen |
| NIS-Elements AR | Nikon | NIS-Elements Advanced Research | Software voor beeldverwerving en analyse |
| Igor Pro | WaveMetrics | Igor pro | Software voor beeldanalyse en gegevenspresentatie |
| beeldvormingskamer | Warner Instruments | RC21B | pHluorine beeldvorming, toepassen van veldstimulatie op levende cellen |
| poly-l-lysine | Sigma | P4832 | Elektronenmicroscopie, substraat voor neuronale groei, aanbrengen op multiwellplaat gedurende 1 uur bij kamertemperatuur en vervolgens 3 keer wassen met gesteriliseerd water |
| Paardenradijs peroxidase(HRP) | Sigma | P6782 | Elektronenmicroscopie, markering van endocytose-sygnatische blaasjes door katalyse van DAB in aanwezigheid van waterstofperoxide, uiteindelijke concentratie is 5 mg/mL in zoutoplossing, vers maken voor gebruik |
| Na cacodylaat | Electron Microscopy Sciences | 12300 | Elektronenmicroscopie, buffer voor fixatieven en wassen, uiteindelijke concentratie is 0,1 N |
| 3,3′-Diaminobenzidine(DAB) | Sigma | D8001 | Elektronenmicroscopie, markering van endocytose-sygnatische blaasjes, substraat voor HRP, uiteindelijke concentratie is 0,5 mg/mL in DDW en gefilterd, vers maken voor gebruik |
| Waterstofperoxide-oplossing | Sigma | H1009 | Elektronenmicroscopie, markering van endocytose-sygnatische blaasjes door induceren van de HRP-DAB reactie, uiteindelijke concentratie is 0,3% in DDW, vers maken voor gebruik |
| glutaaraldehyde | Electron Microscopy Sciences | 16365 | Elektronenmicroscopie, fixatieven, uiteindelijke concentratie is 4% in Na-cacodylaat buffer, vers maken voor gebruik, goed schudden voor gebruik |
| TEM | JEOL | 200CX | Elektronenmicroscopie, beeldvorming van endocytose-blaasjes en ultrastructurele veranderingen |
| CCD digitale camera | AMT | XR-100 | Elektronenmicroscopie, vastleggen van beelden |
| Lodzijn | Leica microsystems | 16707235 | Elektronenmicroscopie, rasterkleuring |
Referenties
- Sankaranarayanan, S., Ryan, T. A. Real-time measurements of vesicle-SNARE recycling in synapses of the central nervous system. Nature cell biol. 2 (4), 197-204 (2000).
- Sun, T., Wu, X. S., et al. The role of calcium/calmodulin-activated calcineurin in rapid and slow endocytosis at central synapses. J Neurosci. 30 (35), 11838-11847 (2010).
- Wu, X. -S. S., Lee, S. H., et al. Actin Is Crucial for All Kinetically Distinguishable Forms of Endocytosis at Synapses. Neuron. 92 (5), 1020-1035 (2016).
- Granseth, B., Odermatt, B., Royle, S. J., Lagnado, L. Clathrin-mediated endocytosis is the dominant mechanism of vesicle retrieval at hippocampal synapses. Neuron. 51 (6), 773-786 (2006).
- Atluri, P. P., Ryan, T. A. The kinetics of synaptic vesicle reacidification at hippocampal nerve terminals. J Neurosci. 26 (8), 2313-2320 (2006).
- Royle, S. J., Granseth, B., Odermatt, B., Derevier, A., Lagnado, L. Imaging phluorin-based probes at hippocampal synapses. Methods Mol Biol. 457, 293-303 (2008).
- Moulder, K. L., Mennerick, S. Reluctant vesicles contribute to the total readily releasable pool in glutamatergic hippocampal neurons. J Neurosci. 25 (15), 3842-3850 (2005).
- Li, Z., Burrone, J., Tyler, W. J., Hartman, K. N., Albeanu, D. F., Murthy, V. N. Synaptic vesicle recycling studied in transgenic mice expressing synaptopHluorin. Proc Natl Acad Sci U S A. 102 (17), 6131-6136 (2005).
- Morris, R. G. Elements of a neurobiological theory of hippocampal function: the role of synaptic plasticity, synaptic tagging and schemas. Eur J Neurosci. 23 (11), 2829-2846 (2006).
- Sankaranarayanan, S., Ryan, T. A. Calcium accelerates endocytosis of vSNAREs at hippocampal synapses. Nat Neurosci. 4 (2), 129-136 (2001).
- Balaji, J., Armbruster, M., Ryan, T. A. Calcium control of endocytic capacity at a CNS synapse. J Neurosci. 28 (26), 6742-6749 (2008).
- Ferguson, S. M., Brasnjo, G., et al. A selective activity-dependent requirement for dynamin 1 in synaptic vesicle endocytosis. Science. 316 (5824), 570-574 (2007).
- Baydyuk, M., Wu, X. S., He, L., Wu, L. G. Brain-derived neurotrophic factor inhibits calcium channel activation, exocytosis, and endocytosis at a central nerve terminal. J Neurosci. 35 (11), 4676-4682 (2015).
- Wu, X. S., Zhang, Z., Zhao, W. D., Wang, D., Luo, F., Wu, L. G. Calcineurin is universally involved in vesicle endocytosis at neuronal and nonneuronal secretory cells. Cell Rep. 7 (4), 982-988 (2014).
- Zhang, Z., Wang, D., et al. The SNARE proteins SNAP25 and synaptobrevin are involved in endocytosis at hippocampal synapses. J Neurosci. 33 (21), 9169-9175 (2013).
- Wu, L. -G. G., Hamid, E., Shin, W., Chiang, H. -C. C. Exocytosis and endocytosis: modes, functions, and coupling mechanisms. Annu Rev Physiol. 76 (1), 301-331 (2014).
- Daniele, F., Di Cairano, E. S., Moretti, S., Piccoli, G., Perego, C. TIRFM and pH-sensitive GFP-probes to evaluate neurotransmitter vesicle dynamics in SH-SY5Y neuroblastoma cells: cell imaging and data analysis. J Vis Exp. (95), e52267(2015).
- Shaner, N. C., Lin, M. Z., et al. Improving the photostability of bright monomeric orange and red fluorescent proteins. Nat Methods. 5 (6), 545-551 (2008).
- Li, Y., Tsien, R. W. pHTomato, a red, genetically encoded indicator that enables multiplex interrogation of synaptic activity. Nat Neurosci. 15 (7), 1047-1053 (2012).
- Leitz, J., Kavalali, E. T. Fast retrieval and autonomous regulation of single spontaneously recycling synaptic vesicles. Elife. 3, e03658(2014).
- Bisht, K., El Hajj, H., Savage, J. C., Sánchez, M. G., Tremblay, M. -È Correlative Light and Electron Microscopy to Study Microglial Interactions with β-Amyloid Plaques. J Vis Exp. (112), e54060(2016).
- Schikorski, T. Monitoring Synaptic Vesicle Protein Sorting with Enhanced Horseradish Peroxidase in the Electron Microscope. High-Resolution Imaging of Cellular Proteins: Methods and Protocols. , 327-341 (2016).
- Kononenko, N. L., Puchkov, D., et al. Clathrin/AP-2 mediate synaptic vesicle reformation from endosome-like vacuoles but are not essential for membrane retrieval at central synapses. Neuron. 82 (5), 981-988 (2014).
- Wu, Y., O'Toole, E. T., et al. A dynamin 1-, dynamin 3- and clathrin-independent pathway of synaptic vesicle recycling mediated by bulk endocytosis. eLife. 2014 (3), e01621(2014).
- Heuser, J. E., Reese, T. S. Evidence for recycling of synaptic vesicle membrane during transmitter release at the frog neuromuscular junction. J Cell Biol. 57 (2), 315-344 (1973).
- Ceccarelli, B., Hurlbut, W. P., Mauro, A. Turnover of transmitter and synaptic vesicles at the frog neuromuscular junction. J Cell Biol. 57 (2), 499-524 (1973).
- Watanabe, S., Rost, B. R., et al. Ultrafast endocytosis at mouse hippocampal synapses. Nature. 504 (7479), 242-247 (2013).
- Watanabe, S., Trimbuch, T., et al. Clathrin regenerates synaptic vesicles from endosomes. Nature. 515 (7526), 228-233 (2014).
- Sankaranarayanan, S., Atluri, P. P., Ryan, T. A. Actin has a molecular scaffolding, not propulsive, role in presynaptic function. Nat Neurosci. 6 (2), 127-135 (2003).
- Zhu, Y., Xu, J., Heinemann, S. F. Two pathways of synaptic vesicle retrieval revealed by single-vesicle imaging. Neuron. 61 (3), 397-411 (2009).
- Miesenbock, G., De Angelis, D. A., Rothman, J. E. Visualizing secretion and synaptic transmission with pH-sensitive green fluorescent proteins. Nature. 394 (6689), 192-195 (1998).
- Arnao, M. B. B., Acosta, M., del Rio, J. A. A., García-Cánovas, F. Inactivation of peroxidase by hydrogen peroxide and its protection by a reductant agent. Biochim Biophys Acta. 1038 (1), 85-89 (1990).
- Deák, F., Schoch, S., et al. Synaptobrevin is essential for fast synaptic-vesicle endocytosis. Nat Cell Biol. 6 (11), 1102-1108 (2004).
- Clayton, E. L., Evans, G. J. O., Cousin, M. A. Bulk synaptic vesicle endocytosis is rapidly triggered during strong stimulation. J Neurosci. 28 (26), 6627-6632 (2008).
- Kavalali, E. T., Jorgensen, E. M. Visualizing presynaptic function. Nat Neurosci. 17 (1), 10-16 (2014).
- Wienisch, M., Klingauf, J. Vesicular proteins exocytosed and subsequently retrieved by compensatory endocytosis are nonidentical. Nat Neurosci. 9 (8), 1019-1027 (2006).
- Fernández-Alfonso, T., Kwan, R., Ryan, T. A. Synaptic vesicles interchange their membrane proteins with a large surface reservoir during recycling. Neuron. 51 (2), 179-186 (2006).
- Gimber, N., Tadeus, G., Maritzen, T., Schmoranzer, J., Haucke, V. Diffusional spread and confinement of newly exocytosed synaptic vesicle proteins. Nat Commun. 6, 8392(2015).
- Nicholson-Fish, J. C., Smillie, K. J., Cousin, M. A. Monitoring activity-dependent bulk endocytosis with the genetically-encoded reporter VAMP4-pHluorin. J Neurosci Methods. 266, 1-10 (2016).
- Burrone, J., Li, Z., Murthy, V. N. Studying vesicle cycling in presynaptic terminals using the genetically encoded probe synaptopHluorin. Nat Protoc. 1 (6), 2970-2978 (2006).
- Wisse, E., Braet, F., et al. Fixation methods for electron microscopy of human and other liver. World journal of gastroenterology. 16 (23), 2851-2866 (2010).
- Magidson, V., Khodjakov, A. Circumventing Photodamage in Live-Cell Microscopy. Methods in Cell Biology. 114, 545-560 (2013).
- Søndergaard, C. R., Garrett, A. E., et al. Structural artifacts in protein-ligand X-ray structures: implications for the development of docking scoring functions. J Med Chem. 52 (18), 5673-5684 (2009).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
