Immunohistochemische kleuring van myosin zware ketting isoforms heeft ontpopt als de state-of-the-art-discriminator van skeletale spiervezel-type (d.w.z., typ ik typ IIA, typ IIX, type IIB). Hier presenteren we een kleuring protocol samen met een nieuwe semi-automatische algoritme, dat vergemakkelijkt de snelle beoordeling van de morfologie van het type vezel en vezels.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Semi-geautomatiseerde analyse van muis skeletspieren morfologie en vezel-achtige samenstelling
In dit artikel
Samenvatting
Samenvatting
Jarenlang waren best onderscheid tussen skelet spiervezel typen gevisualiseerd door myosin-ATPase kleuring. Meer recentelijk heeft immunohistochemische kleuring van myosin zware ketting (MyHC) isoforms ontpopt als een fijnere discriminator van fiber-type. Type I, type IIA, typ IIX en type IIB vezels kunnen nu worden geïdentificeerd met precisie op basis van het profiel van hun MyHC; Handmatige analyse van deze gegevens kan echter traag en omlaag-rechts vervelend. Snelle, nauwkeurige beoordeling van het type vezel samenstelling en morfologie is in dit verband een zeer wenselijk hulpmiddel. Hier presenteren we een protocol voor state-of-the-art immunohistochemische kleuring van MyHCs in bevroren secties muis stuk spier in concert met een nieuwe semi-automatische algoritme, dat versnelt de analyse van de morfologie van het type vezel en vezels verkregen. Zoals verwacht, de Musculus soleus weergegeven kleuring voor type I en type IIA vezels, maar niet voor type IIX of type IIB vezels. Aan de andere kant, de tibialis anterior spier bestond voornamelijk uit type IIX en type IIB vezels, een klein deel van het type IIA vezels en weinig of geen typ ik vezels. Meerdere afbeelding transformaties werden gebruikt voor het genereren van waarschijnlijkheid kaarten met het oog op het meten van de verschillende aspecten van de morfologie van de vezel (d.w.z., doorsnede (CSA), maximale en minimale Feret diameter). De waarden voor deze parameters vervolgens met handmatig verkregen waarden vergeleken werden. Geen significante verschillen werden waargenomen tussen beide modus van analyse met betrekking tot CSA, maximale of minimale Feret diameter (alle p > 0,05), met vermelding van de nauwkeurigheid van onze methode. Dus kan onze immunokleuring analyse protocol worden toegepast op het onderzoek van de effecten op de spier samenstelling in vele modellen van veroudering en myopathie.
Inleiding
Het is gekend voor enige tijd dat skeletspier uit één vezels van vele typen1 bestaat. Aanvankelijk twee soorten vezels werden gekenmerkt op basis van hun contractiele eigenschappen en genoemd, naar behoren, slow-twitch (type I) en fast-twitch (type II). Deze categorieën werden verder onderscheiden op basis van glasvezel metabolisme. Daar typ ik vezels zijn rijk aan mitochondriën en afhankelijk van het oxidatieve metabolisme, ze werden toegelicht door krachtig positieve nicotinamide adenine dinucleotide-tetrazolium reductase (NADH-TR) diaphorase2 of succinaat dehydrogenase (SDH)3 kleuring. Daarentegen, type II vezels minder tentoongesteld en variabele graden van NADH-TR diaphorase of SDH kleuring en werden verdeeld in twee subgroepen van de fast-twitch (typt u IIA en IIB) enigszins ruw op basis van hun relatieve oxidatieve capaciteit. Dit onderscheid tussen vezels hebben effectiever zijn gevisualiseerd door myosin-ATPase kleuring wanneer type-I vezels donkere vlekken na een pre-incubatie bij pH 4.0 en type IIB vezels absorberen overhaaste volgende pre-incubatie bij pH 10.0 met type IIA vezels kleuring gearchiveerd4.
Meer recentelijk heeft immunohistochemische kleuring van myosin zware ketting (MyHC) isoforms ontpopt als een fijnere discriminator type vezel5. Type I, type II en type IIB vezels kunnen worden alle geïdentificeerd met precisie op basis van hun MyHC profiel. Bovendien, een ander type van de fast-twitch metabolisch intermediair vezel, IIX, typ geweest geïdentificeerde6. Hybride vezels uiting van meer dan één MyHC zijn ook bevestigde5,7,8. Sommige soorten zoals de kat en de baviaan bekend er niet uitdrukkelijke Type IIB MyHCs6. MyHC immunokleuring is momenteel de state-of-the-art beoordeling van spier samenstelling, wel de analyse van de gegevens die zijn verkregen via deze techniek omslachtig en tijdrovend zonder geautomatiseerde hulp. Te dien einde geweest een handvol semi-geautomatiseerde methoden voor het analyseren van deze gegevens ontwikkelde5,9,10. Hier presenteren we een relatief standaardprotocol voor de immunohistochemische identificatie van spiervezel-type5,7,8,10, samen met een semi-automatische roman algoritme dat versnelt de analyse van de morfologie van het type vezel en vezels met nauwkeurigheid.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
alle procedures waarbij muizen door de Universiteit van Colorado-Anschutz medische Campus institutionele Animal Care en gebruik Comité zijn goedgekeurd (91813(05)1D).
1. dag 1: primaire (1°) immunokleuring met boviene serumalbumine (BSA) blokkeren
- luchtdroge bevroren secties van muis stuk spier (bijvoorbeeld tibialis anterior, soleus) gemonteerd op geladen geleiders voor ~ 30 min 11. een rand rond de secties met een hydrofobe barrière PAP pen tekenen.
- Plaats ~ 250 µL 5% BSA/fosfaatgebufferde zoutoplossing (BSA/PBS) op elke dia te blokkeren van niet-specifieke antilichaam binding. Incubeer dia's bij kamertemperatuur voor 1 h.
- Terwijl het blokkeren, bereiden 1:50 verdunningen van het 1° antilichaam supernatant in 5% BSA/PBS (alle zijn muis monoklonale antilichamen; Zie tabel 1 6 , 12); 250 µL van bereiden oplossing per dia. Houd 1° antilichaam voorraden en verdunningen op ice.
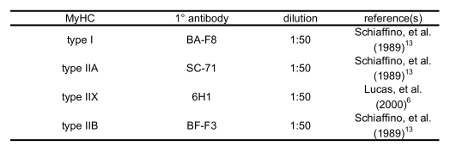
tabel 1: primaire antilichamen gebruikt om te onderscheiden MyHCs.
- na aspiratie van de 5% BSA/PBS blokkerende oplossing, 250 µL van 1° antilichaam verdunning aan de juiste dia's toevoegen. Toevoegen van 250 µL van 5% BSA/PBS aan secundaire (2°) antilichaam-alleen negatieve controle slides.
- Incubate bij 4 ° C gedurende 24-48 uur in een vochtige omgeving.
Opmerking: Een petrischaal bedekt met aluminiumfolie met vochtige filterpapier kan dienen als een kamer geschikt incubatie.
2. Dag 2:2 ° immunokleuring met fluorescerende antilichamen
- 1° antilichaam oplossing gecombineerd of controle van 5% BSA/PBS-oplossing. Wassen all dia's drie keer, 10 min met 5% BSA.
- Tijdens het wassen, maak 1:200 verdunningen van het gezuiverde, fluorophore-geconjugeerde 2 ° antistoffen bij 5% BSA/PBS (Zie tabel 2, allemaal geit anti-muis). 250 µL van oplossing per dia voor te bereiden. 2° fluorophore-geconjugeerde antilichamen in het donker op ice. houden

tabel 2: Fluorophore-geconjugeerde secundaire antilichamen gebruikt om te visualiseren primaire antilichaam erkenning van MyHCs.
- na aspiratie van de derde toepassing van blokkerende oplossing van 5% BSA/PBS, voeg 250 µL van 2° antilichaam verdunning op alle dia's. Incubeer gedurende 90 minuten bij kamertemperatuur in een donkere, vochtige omgeving.
- Aspirate 2° antilichaam oplossing. Wassen all dia's drie keer, 10 min met 5% BSA/PBS.
- Uitspoelen met PBS. 10 min. drogen
- Mount het dekglaasje met een niet-permanente, lage viscositeit waterige montage medium.
- Droog, verzegelen de randen van de dia met nagellak. Droog en bewaar in een donkere slidebox.
3. Dia's met Epifluorescence microscopie Imaging
- de dia's met een kleine, 70% ethanol doordrenkte lab-veeg schoon.
- Verkrijgen digitale beelden van immunostained spier secties met behulp van een Microscoop van de epifluorescence uitgerust met een fotografische apparatuur (Zie de Tabel van de materialen).
- Selecteer een gebied van ongeveer 1 mm 2 (10 X doelstelling, 1.4 nb).
- View 2° Alexa 488-geconjugeerde antilichaam fluorescentie via een 505 nm long pass filter. Bekijk de fluorescentie gegenereerd door excitatie van 2° Alexa 594-geconjugeerde antilichamen via een 595 nm long pass filter. Afbeeldingen digitaliseren met een PC uitgerust met een compatibele imagingsoftware. Omvatten van de bar van de schaal van de denkbaar software voor een latere anayse.
4. Analyse van beelden met Fiji
Opmerking: voordat u verdergaat met analyse, Fiji (beschikbaar vrij van de National Institutes of Health, Bethesda, MD) moet worden geïnstalleerd via https://imagej.net/Fiji/Downloads. De macro gebruikt in dit proces is ook voorzien in het Aanvullende bestand. Plaats van het macro-bestand in een gemakkelijk toegankelijke map.
- Belasting een helderveld afbeelding van een geselecteerde sectie in Fiji. Ga naar Plugins → segmentatie → trainbaar Weka segmentatie.
- Om te bepalen van de cellulaire gebieden van de afdeling, trek een lijn op een vezel, en klik op " toevoegen aan de klasse 1 ". Vervolgens een lijn op de ruimte tussen de vezels trekken, en op " toevoegen aan klasse 2 " ter gelegenheid van de extracellulaire domeinen. Herhaal totdat er 5-10 labels in elke klasse zijn.
- Klik op trein classificatie. Op de resulterende rode en groene overlay, handmatig meer labels toevoegen (zie stap 4.2) onjuist gesegmenteerde stukken van de afbeelding, indien nodig. Herhaal totdat vezels (rood) op de juiste manier zijn gescheiden van de ruimte tussen de vezels (groen).
- Klik " krijgen kans " en sla de afbeelding op in een nieuw label map.
- Herhaal de bovenstaande procedure (stap 4.2-4.3) met de fluorescerende beeld genomen uit hetzelfde veld. Label immunostained vezels als " klasse 1 " en alle niet-belichting fluorescerende regio's als " klasse 2 ". De resulterende kans-kaart opslaan in dezelfde map waar de verwerkte helderveld afbeelding is opgeslagen.
- Open één van de eerder opgeslagen waarschijnlijkheid kaarten in Fiji. Een rechte lijn tekenen op de werkbalk van de schaal verstrekt door de imaging software. Ga naar het analyseren → schaal instellen. Wijzigen van de parameters (d.w.z., bekende afstand, lengte-eenheid) naar de bijbehorende waarden als gegeven door de schaal bar, controleer dan de " Global " vak op de standaardisering van de schaal voor elk beeld.
- Navigeer naar Plugins → macro's → uitvoeren → Tyagi et al. vezel kwantificering macro.ijm (Zie het Aanvullende bestand). Onmiddellijk, zal een ruit van de navigatie verschijnen. Open de afbeelding ' s host map; Er verschijnt een dialoogvenster. Voor elk dialoogvenster, veranderen de " achtergrond " dropdown waarde aan " licht. "
Opmerking: de map wordt nu gevuld met beelden van de vezel omtrekken en spreadsheet-bestanden van de software van de resultaten (CSA en Feret diameter zijn meest relevant zijn voor kwantificeren van de vezel de morfologie; gemeten parameters kunnen worden aangepast in analyseren Set metingen). Vezel morfologie gegevens gegenereerd door de functie van de porie-analyse van Fiji zal automatisch worden overgedragen aan de spreadsheet-bestanden van de software voor beide TL en helder veld beelden. - Berekenen van de Fractie van de vezels uiting geven aan een bepaalde MyHC in een veld door het verdelen van het aantal fluorescerende vezels in het veld door het aantal totale vezels in het beeld helder veld overeenkomstige.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Stuk spieren (dat wil zeggen, tibialis anterior, soleus) ontleed van een mannelijke C57BL/6 muis van onbekende leeftijd waren flash bevroren door het zinken van een plastic mal de spier in LGO met samengestelde in vloeibare stikstof-gekoelde tolueen. Met behulp van een cryotome, waren 8-10 µm seriële secties Knip bij-20 ° C en vervolgens overgebracht naar verschillende positief-geladen glas dia's12.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Wij hebben hier nuttig richting voor de identificatie van skeletale spiervezel typen verstrekt. Daarbij beschrijven we een nieuw algoritme voor analyse van de gegevens.
Omdat onze resultaten grotendeels die van eerdere verslagen5,-8,10 te bevestigen en onze eigen handmatige metingen weerspiegelen, weergegeven het algoritme nauwkeurig te zijn. Nog steeds, ondervonden we sommige zeldzame experimentele v...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben geen tegenstrijdige belangen openbaar te maken.
Dankbetuigingen
Wij zijn dankbaar aan de Boettcher-Stichting en de vereniging Amyotrofische laterale sclerose (#17-II-344) voor hun steun aan dit onderzoek.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Bovine Serum Albumin | Sigma Aldrich | A9418-100G | 5% in PBS |
| Hydrophobic Barrier Pap Pen | Scientific Device Laboratory | 9804-02 | |
| Microscope Slides | Globe Scientific | 1358W | |
| Coverglass | Fisher Scientific | 12-544-E | |
| Immumount | Thermo Scientific | 9990402 | |
| Nail Polish | L'Oreal | ||
| Nikon Eclipse TE-200 Inverted Fluorescence and Brightfield Microscope | Discontinued | ||
| SPOT RT/KE | SPOT Imaging Solutions | RT940 | |
| Dell Optiplex | |||
| BA-F8 Primary Antibody | Developmental Studies Hybridoma Bank at the University of Iowa | monoclonal mouse IgG2b; 1:50 | |
| SC-71 Primary Antibody | Developmental Studies Hybridoma Bank at the University of Iowa | monclonal mouse IgG1; 1:50 | |
| BF-F3 Primary Antibody | Developmental Studies Hybridoma Bank at the University of Iowa | monoclonal mouse IgGM; 1:50 | |
| 6H1 Primary Antibody | Developmental Studies Hybridoma Bank at the University of Iowa | monoclonal mouse IgGM; 1:50 | |
| Alexa Fluor 594 anti-IgG2b | Invitrogen | A21145 | goat anti-mouse; 1:200 |
| Alexa Fluor 488 anti-IgG1 | Invitrogen | A21121 | goat anti-mouse;1:200 |
| Alexa Fluor 594 anti-IgGM | Invitrogen | A21044 | goat anti-mouse;1:200 |
| OCT | Sakura Finetek | 4583 | |
| isopentane | Fisher Scientific | O3551-4 | cool with liguid nitrogen |
| PBS | Fisher Bioreagents | BP665-1 | 10x, dilute to 1x |
| Kim wipes | Kimberly-Clark | 06-666A |
Referenties
- Engel, W. K. The essentiality of histo- and cytochemical studies of skeletal muscle in the investigation of neuromuscular disease. Neurol. 12, 778-784 (1962).
- Dobrowolny, G., et al. Skeletal muscle is a primary target of SOD1G93A-mediated toxicity. Cell Metab. 8, 425-436 (2008).
- Sultana, N., et al. Restricting calcium currents is required for correct fiber type specification in skeletal muscle. Development. 143 (9), 1547-1559 (2016).
- Guth, L., Samaha, F. J. Procedure for the histochemical demonstration of actomyosin ATPase. Exp Neurol. 28 (2), 365-367 (1970).
- Bloemberg, D., Quadrilatero, J. Rapid determination of myosin heavy chain expression in rat, mouse, and human skeletal muscle using multicolor immunofluorescence analysis. PLoS One. 7 (4), (2012).
- Lucas, C. A., Kang, L. H., Hoh, J. F. Monospecific antibodies against the three mammalian fast limb myosin heavy chains. Biochem Biophys Res Commun. 272 (1), 303-308 (2000).
- Lee, C. S., et al. Ca2+ permeation and/or binding to Cav1.1 fine-tunes skeletal muscle Ca2+ signaling to sustain muscle function. Skelet Muscle. 5 (4), (2015).
- Sawano, S., et al. A one-step immunostaining method to visualize rodent muscle fiber type within a single specimen. PLoS One. 11 (11), (2016).
- Meunier, B., Picard, B., Astruc, T., Labas, R. Development of image analysis tool for the classification of muscle fibre type using immunohistochemical staining. Histochem Cell Biol. 134 (3), 307-317 (2010).
- Kammoun, M., Casser-Malek, I., Meunier, B., Picard, B. A simplified immunohistochemical classification of skeletal muscle fibres in mouse. Eur J Histochem. 58 (2), 2254(2014).
- Kumar, A., Accorsi, A., Rhee, Y., Girgenrath, M. Do's and don'ts in the preparation of muscle cryosections for histological analysis. J Vis Exp. (99), (2015).
- Schiaffino, S., et al. Three myosin heavy chain isoforms in type 2 skeletal muscle fibres. J Muscle Res Cell Motil. 10 (197), (1989).
- Augusto, V., Padovani, C. R., Campos, G. E. R. Skeletal muscle fiber types in C57Bl6j mice. Braz J Morphol Sci. 21 (2), 89-94 (2004).
- Schiaffino, S., Reggiani, C. Fiber types in mammalian skeletal muscles. Physiol Rev. 91 (4), 1447-1531 (2011).
- Allen, D. L., Harrison, B. C., Maass, A., Bell, M. L., Byrnes, W. C., Leinwand, L. A. Cardiac and skeletal muscle adaptations to voluntary wheel running in the mouse. J Appl Physiol. 90 (5), 1900-1908 (2001).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
