Een single-molecuul magnetische pincet platform te manipuleren van de G-quadruplexes is gemeld, waardoor voor de studie van G4 stabiliteit en verordening door verschillende eiwitten.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Single-molecuul manipulatie van G-quadruplexes door magnetische pincet
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Niet-canonieke nucleïnezuur secundaire structuur die g-quadruplexes (G4) zijn betrokken bij diverse cellulaire processen, zoals DNA-replicatie, transcriptie, RNA verwerking en telomeer rek. Tijdens deze processen, verschillende eiwitten binden en lossen G4 structuren voor het uitvoeren van hun functie. Als de functie van de G4 is vaak afhankelijk van de stabiliteit van de gevouwen structuur, is het belangrijk om te onderzoeken hoe G4 bindende eiwitten reguleren de stabiliteit van de G4. Dit werk presenteert een methode om te manipuleren enkel G4 moleculen met behulp van magnetische pincet, waarmee studies van de regulering van de G4 bindende proteïnen op een enkel molecuul van de G4 in real-time. In het algemeen, is deze methode geschikt voor een breed toepassingsgebied van applicaties in studies voor eiwitten/ligand interacties en verordeningen bij verschillende DNA of RNA secondaire structuren.
Inleiding
Vier-stranded DNA of RNA G4 structuren spelen een kritieke rol in vele belangrijke biologische processen1. Veel eiwitten zijn betrokken bij G4 bindende en verordening, met inbegrip van telomere bindende proteïnen (telomerase, RPA, TEBPs, POT1, TRF2)1,2, transcriptiefactoren (nucleolin, PARP1)3, RNA eiwitten (hnRNP A1, verwerking hnRNP A2)4, helicasen (BLM, FANCJ, RHAU, WRN, Dna2, Pif1)5en DNA-replicatie gerelateerde eiwitten (Rif1, REV1, PrimPolymerase)6. Binding aan eiwitten kan stabiliseren of destabiliseren G4 structuren; dus regelen de volgende biologische functies. De stabiliteit van de G4 werd gemeten door thermische smelten met behulp van ultraviolet (UV) of circulair dichroïsme (CD) methoden7. Dergelijke omstandigheden zijn echter niet fysiologische relevant en moeilijk toe te passen op het bestuderen van de effecten van bindende eiwitten7.
De snelle ontwikkeling van single-molecuul manipulatie technologieën heeft studies van vouwen en ontplooiing van een Biomolecuul, zoals een DNA of een eiwit, op het niveau van een single-molecuul met nanometer resolutie in real-time8ingeschakeld. Atomaire kracht microscopie (AFM), optisch pincet en magnetische pincet zijn de meest gebruikte methoden van de single-molecuul manipulatie. Vergeleken bij de AFM en optisch pincet9, toestaan magnetische pincet stabiele metingen van vouwen-ontvouwen dynamica van een enkel molecuul dagen met behulp van een anti-drift techniek10,11.
Hier is een platform van de single-molecuul manipulatie met behulp van magnetische pincet om te bestuderen van de regulering van de G4 stabiliteit door bindende eiwitten gerapporteerde12,,13. Dit werk beschrijft de fundamentele benaderingen, met inbegrip van de voorbereiding van de steekproef en stroom kanaal, de installatie van magnetische pincet en de kalibratie van de kracht. De controle van de kracht en de protocollen van de anti-drift als beschreven in stap 3 zorgen voor lange tijdmetingen onder verschillende kracht-besturingselementen, zoals constante kracht (force klem) en constante laden stem op (kracht-oprit) en kracht-sprong meting. Kunnen de kracht kalibratie protocol beschreven in stap 4 kracht ijking van < 1 µm korte aanbinden via een breed geldende maximaal 100 pN, met een relatieve fout binnen 10% variëren. Een voorbeeld van regelgeving van de stabiliteit van het RNA Helicase geassocieerd met AU-rijke element (RHAU) helicase (alias DHX36, G4R1), die een essentiële rol bij het oplossen van dat RNA G4 wordt gebruikt om aan te tonen van de toepassingen voor dit platform13speelt.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. voorbereiding van de G4 DNA voor Single-molecuul Stretching
- voorbereiden 5 '-thiol label en 5 '-Biotine dsDNA grepen gelabeld door PCR polymerase van DDNA met een lambda phage DNA sjabloon met behulp van 5 '-thiol en 5 '-Biotine inleidingen 14 ( Figuur 1). Beide dsDNA grepen hebben hoge GC-inhoud (> 60%) om te voorkomen dat DNA smelten wanneer DNA wordt gehouden bij hoge krachten of tijdens het DNA overstrekking overgang 15.
- Zuiveren PCR producten werken met een commerciële zuivering kit en verteren enzym van de beperking van de BstXI volgens de fabrikant ' s-protocol.
- G4 ligate vormende ssDNA en flank ssDNA en dsDNA grepen met behulp van T4 DNA ligase volgens de fabrikant ' s-protocol. Zuiveren van de ligaturen product door gel extractie met behulp van een commerciële zuivering kit volgens de fabrikant ' s-protocol.
2. Voorbereiding van stroom kanaal
- dekglaasje aan schoonmaak- en oppervlakte functionalization
- plaats bottom coverslips (#1.5, 22 mm × 32 mm) en top coverslips (#1.5, 20 x 20 mm) in dekking glas kleuring potten (kan elke pot houden van 7 stukken van coverslips, het volume is ~ 20 mL). Spoel de coverslips in de potten met gedestilleerd water 2 - 5 keer.
- Toevoegen ~ 20 mL 5-40% schoonmaakmiddel in elke pot, en vervolgens plaats in het ultrasoonbad reinigen voor 30 min. spoelen met gedistilleerd water voor > 10 keer voor het verwijderen van het wasmiddel.
- Droog de coverslips in de potten in de oven (~ 150 ° C; Let op: heet), of door N 2 gas. De gedroogde top coverslips opslaan in een droog kast.
- Gebruik plasma (O 2 gas) om de coverslips in de pot voor 10 min schoon te maken. Tijdens de 10 min, bereiden 20 mL van de 1% (3-Aminopropyl) triethoxysilane (APTES) oplossing in methanol (Let op, giftig/brandbaar). Gebruik een chemische zuurkast te ontbinden APTES in methanol.
Opmerking: Vermijd vochtigheid bij het opslaan van APTES oplossing. Oude APTES vaak een probleem veroorzaakt in de oppervlakte functionalizing van coverslips. - Onmiddellijk na het plasma schoonmaken, alles van de 1% APTES-oplossing toevoegen in de potten en voor 1 h. Giet het afval in de afval fles specifiek voor 1% APTES methanol uit te broeden. Voer de methanol-gerelateerde stappen in de zuurkast voor brandbare chemicaliën.
- Spoel de potten eenmaal met methanol en > 10 keer met gedestilleerd water, en vervolgens droog door oven (~ 150 ° C; Let op: heet). Opslaan van de APTES-gecoat bodem-coverslips in een droog kast zo niet in gebruik voor maximaal twee weken.
Opmerking: Na elke sub stap van 2.1.1 tot 2.1.4, het schoonmaken proces kan worden onderbroken voor de volgende stap.
- Assemble het flow-kanaal
- twee opstellen " spacers ", dat wil zeggen, parafilm of dubbele-side tape (~ 4 × 20 mm) voor elk kanaal. Plaats de twee stukken van afstandhouders op een bodem dekglaasje aan langs de lange zijde. Plaats een top dekglaasje aan op de spacer, vormen een stroom cel tussendoor (~ 10 × 20 mm gebied, figuur 2A , B).
- Als parafilm wordt gebruikt als een spacer, plaatst u het flow-kanaal op een verwarmingssysteem (60-120 ° C; Let op: heet) voor 5-10 s de zijkanten van de bovenste dekglaasje aan te houden van de twee coverslips samen door parafilm zachtjes wordt ingedrukt. Het resulterende stroom kanaal heeft een hoogte van ~ 100 µm, en daardoor het volume van het kanaal is ~ 20 µL.
- Zegel de lange zijde van het kanaal met siliconen lijm om te voorkomen lekkage. Siliconen lijm gebruik te maken van een kleine wastafel-achtige structuur aan elke open rand van de stroom-zender, die als een ingang en een uitgang van oplossing fungeert.
Opmerking: De ingang en de uitgang kunnen ook worden gemaakt door andere manieren, bijvoorbeeld door daaraan vastzittende kleine plastic ringen met wax. - Zenders vastleggen in een droog kast voor maximaal 4 weken.
- Tether DNA op het oppervlak van de bodem van het kanaal
- Verdun de amino-gecoate polystyreen kralen (diameter: 3 µm) door 200 X in gedestilleerd 1 X fosfaatgebufferde zoutoplossing (PBS) buffer. Vortex de kraal-oplossing en dan stroom in kanalen. Incubeer de kraal oplossing in kanalen voor ~ 30 min. elk unstuck kralen verwijderen door te wassen met 200 µL van 1 X PBS buffer.
- Aanpassen (verhogen/verlagen) de incubatietijd tot een oppervlakte dichtheid van 1-5 kralen per oppervlakte-50 x 50 mm. De zenders die neergelegd bij de verwijzing parels voor maximaal 3 dagen vastleggen.
- Dilute sulfosuccinimidyl 4-(N-maleimidomethyl) cyclohexaan-1-carboxylaat (Sulfo-SMCC) poeder in 1 X PBS-oplossing (~ 0,5 mg/mL). Vortex de oplossing en dan stroom in het kanaal.
Opmerking: Bereiden van verse Sulfo-SMCC oplossing vóór gebruik en onmiddellijk toevoegen aan het kanaal om te voorkomen dat hydrolyzation van de SMCC. - Incubate de oplossing van de SMCC in het kanaal voor 30 min. de SMCC oplossing verwijderen door te wassen met een grote hoeveelheid (1 mL, ~ 50 X het volume kanaal) van 1 X PBS oplossing.
Opmerking: De overtollige SMCC zorgvuldig wassen. Deze stap is zeer essentieel voor het binden van DNA op het dekglaasje aan. - DNA binden
- Verdun de thiol-Biotine label DNA in 1 X PBS, met een daaruit voortvloeiende DNA-concentratie van ~ 0,3 nM. Zachtjes Pipetteer Meng de oplossing, stromen van de DNA-oplossing in het kanaal SMCC beklede en incubeer gedurende 30 minuten bij kamertemperatuur (~ 23 ° C).
- Zachtjes weg te wassen gratis DNA met 200 µL van het blokkeren van de oplossing die 1 X PBS met 10 mg/mL bovien serumalbumine (BSA) en 0,01% 2-Mercaptoethanol bevat.
- Blokkeren het kanaal oppervlak door het kanaal in het blokkeren van de oplossing (10 mg/mL BSA, 0,01% 2-Mercaptoethanol) aan het broeden voor > 2 h; na deze stap, het kanaal is klaar voor experimenten. Het voorbereide kanaal kan worden bewaard bij 4 ° C voor ~ 1dag.
Opmerking: De blokkerende stap is belangrijk voor het verminderen van de niet-specifieke binding van DNA en magnetische kralen aan de coverslips.
3. Magnetische pincet Setup en identificatie van enkele dsDNA Tether
- magnetische pincet setup
- Start de magnetische pincet programma besturen. Hier, de magnetische pincet werden bestuurd door een in-huis-geschreven LabVIEW programma.
- Uitlijnen de magneet centra voor montage van het kanaal. Gebruik van een 4 X-objectief aan te passen met de x - en y - as van de magneten in de optische as van de Microscoop.
- Gebruik een computergestuurde gemotoriseerde manipulator te bewegen de magneten langs de z-richting ( figuur 2A) en de afstand instellen als d = 0 (d: afstand tussen de magneten en dekglaasje aan) wanneer de magneten hechten aan een dekglaasje aan op de Microscoop.
- Program het verkeer van de magneten door middel van de manipulator om controle van de werking, met inbegrip van constante kracht (dat wil zeggen, constante d) en tijd variërende kracht F (t) (d.w.z., tijd variërende d(t )).
- Gebruik helder een lichtbron voor licht afgevende diodes (LED) voor de back-verstrooid verlichting van de kraal door het doel. Verzamelen van de beelden van de kraal op een sampling rate van 100 Hz met een charge - coupled apparaat (CCD) camera. < / lIk >
- proef setup en identificeren van één dsDNA ketting
- Tether vorming
- zachtjes stroming in 200 X verdund M-280, paramagnetisch kralen in assay oplossing (100 mM KCl, 2 mM MgCl 2, 10 mM Tris-pH 7.4 ) in een kanaal. Incubeer gedurende 10 min om de parels te binden aan biotine-geëtiketteerden DNA moleculen geïmmobiliseerd op het SMCC-gecoate oppervlak tot het einde thiol-label. Un-vastgebonden kralen met behulp van 200 µL van standaard reactie oplossing voorzichtig wegwassen.
Opmerking: De M-280 kralen Toon lager niet-specifieke binding aan de oppervlakte in vergelijking met andere commerciële magnetische kralen zoals M-270.
- zachtjes stroming in 200 X verdund M-280, paramagnetisch kralen in assay oplossing (100 mM KCl, 2 mM MgCl 2, 10 mM Tris-pH 7.4 ) in een kanaal. Incubeer gedurende 10 min om de parels te binden aan biotine-geëtiketteerden DNA moleculen geïmmobiliseerd op het SMCC-gecoate oppervlak tot het einde thiol-label. Un-vastgebonden kralen met behulp van 200 µL van standaard reactie oplossing voorzichtig wegwassen.
- Monteren van het kanaal op het podium van de Microscoop. Zoek de kralen op het oppervlak van de bodem met behulp van de 100 X olie onderdompeling doelstelling.
- Selecteer een verwijzing kraal op het oppervlak en een bewegende vastgebonden kraal. Bouwen van de oorspronkelijke afbeelding bibliotheken van zowel de verwijzing kraal en vastgebonden kraal op verschillende defocus vliegtuigen.
- Kalibratie van kralen afbeelding
- voor experimenten, gebruiken een objectieve piezo actuator om te halen beelden van zowel verwijzing en vastgebonden kralen op verschillende defocus vlakken verdeeld door 20-50 nm, die zijn opgeslagen als twee aparte kraal afbeelding bibliotheken en zijn respectievelijk geïndexeerd met de defocus afstand ( figuur 2D).
- x, y, z-positie bepaling
- tijdens experimenten, bepaalt u de positie van de parel in de x-y vlak door het zwaartepunt van de kraal. De verandering van de hoogte van de vastgebonden parel bepalen door het vergelijken van de huidige afbeelding van de kraal met die in de bibliotheek opgeslagen. Gebruik de auto-correlatie functie analyse van het spectrum van de macht van de Fourier-transformatie van de kraal beelden 16.
- Anti-drift feedback met behulp van referentie kraal
- tijdens experimenten, gebruiken de piezo te " slot " de afstand tussen het doel en een uitdrukkelijke verwijzing kraal afbeelding die is opgeslagen in de bibliotheek via een lage-frequentie feedback besturen, zodat de afbeelding geplakt kraal heeft de beste correlatie met een specifieke afbeelding die is opgeslagen in de bibliotheek ( figuur 2D).
- Bepalen of de ketting een enkele dsDNA molecule door toepassing van is ~ 65 pN kracht bepalen een enkele dsDNA molecule als de ketting ondergaat het kenmerkende DNA overstrekking overgang 17 , 18 , 19. Herhaal dit proces totdat er een enkele dsDNA ketting wordt gevonden. (Raadpleeg het volgende gedeelte voor kalibratie van de kracht en DNA overstrekking van de overgang).
- Tether vorming
4. Magnetische pincet dwingen kalibratie
- bepalen direct de kracht (maximaal 100 pN) voor lange DNA (48,502 bp λ-DNA) moleculen met kraal schommelingen via:
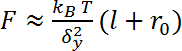
, waar k B is de constante van Boltzmann, T is de temperatuur in Kelvin schaal is δ 2 y de variantie van de schommeling van de parel in de richting loodrecht op het magnetisch veld en de kracht richting. In deze richting, kan de motie van de parel omschreven worden als een schommeling van de slinger met een lengte van l + r 0, waar l is de afstand van de end-to-end in de richting van de kracht (extensie) van het DNA en r 0 de straal van de kraal 10 ( figuur 3A). - Bepalen de kalibratiekromme voor de kracht F als een functie van magneten kraal afstand d en F (d) voor de verschillende parels met behulp van de lange λ-DNA. De afstand tussen de magneet en het dekglaasje aan wordt meestal gebruikt als de lengte van de ketting DNA kan worden genegeerd. Passen de F-d kromme door de dubbele-exponentiële afname functie:
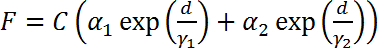
, waar de montage parameters alpha1, alpha2, γ1, γ2 worden bepaald door de magnetische pincet en de parameter C wordt bepaald door de heterogene eigenschap van de magnetische kralen. Door het verschuiven van de C, het F-d curve verkregen uit verschillende parels kan worden overlappende 10 ( figuur 3B). - Kalibratie van de parameter C voor individuele magnetische kralen voor korte DNA experimenten.
- Bepalen de kracht op basis van de schommelingen vereist opname van de positie van de kraal met een frequentie hoger dan de frequentie van de hoek:
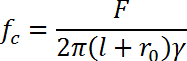
, waar γ is de Sleep coëfficiënt van de kraal. Voor korte DNA bij hoge kracht, het vereist opname frequentie sneller dan 100 Hz, dus de kracht kan niet direct gemeten worden op basis van de schommelingen met de camera. Echter de parameter C kan worden bepaald door het meten van de kracht op een laag bereik afdwingen (< 15 pN) met behulp van de schommeling en passend maken van de gegevens met een gekalibreerde F-d curve te verkrijgen van de parameter C 20. - Als alternatief voor experimenten met dsDNA, bepalen de parameter C gebruikend DNA overstrekking van de overgang op een kracht van ~ 65 pN ( Figuur 3 c) 21 , 22 , 23 door het opnemen van de d-positie op welke dsDNA bleek uitbreiding sprong (0,6 X lengte toename van contour lengte). Na het bepalen van de parameter C, berekenen de kracht voor de vastgebonden kralen.
- Bepalen de kracht op basis van de schommelingen vereist opname van de positie van de kraal met een frequentie hoger dan de frequentie van de hoek:
- De densiteit controle bij de programmering van de beweging van de magneten via de inverse functie van F (d). De magneet moet benaderen het monster dubbele exponentieel.
Opmerking: De relatieve fout van kracht bepaald door dergelijke een extrapolatie methode is ~ 10%, en wordt voornamelijk veroorzaakt door de kraal RADIUS-heterogeniteit 20.
5. Single-molecuul manipulatie van G4 in de aanwezigheid en de afwezigheid van bindende eiwitten
- Force-oprit experimenten
- na het identificeren van de dsDNA ketting, het uitvoeren van een scan van de verhoging van de geweld op een densiteit van 0.2 pN/s, gevolgd door een kracht-overlijden scan op -0,2 pN/s. Houd na elke cyclus van stretching, het DNA-molecuul 1 pN voor 30 s om de ssDNA te refold aan G4.
- Force-sprong experimenten
- cyclus de kracht tussen 54 pN voor 30 s waaronder een gevouwen G4 kon worden ontvouwd, en 1 pN voor jaren ' 60, waaronder een gevouwen G4-15T kon refold.
- Flowing eiwit oplossing
- stromen de proteïne-oplossing wanneer op ~ 20 pN kracht om te voorkomen dat de gehechtheid van de parels aan de dekglaasje aan. De DEAH-box RHAU helicase, waaruit bleek hoge specificiteit aan de structuur van de G4, was gebruikte 24. De recombinant Drosophila melanogaster RHAU (DmRHAU) helicase werd uitgedrukt in Escherichia coli en zoals eerder beschreven 25 gezuiverd. De G4 ontspannen activiteit van DmRHAU werd bepaald op een tetramolecular G4 DNA substraat 13.
- Analyseren de zich ontvouwende kracht met behulp van een in-house geschreven Matlab programma 14.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
De instellingen van het experiment voor het uitrekken van een enkel molecuul van de G4 is weergegeven in Figuur 4. Een single-stranded G4 zelftappende reeks overspannen tussen twee dsDNA handvaten was vastgebonden tussen een dekglaasje aan en een paramagnetisch kraal. Om te zoeken naar een enkele dsDNA vastgebonden kraal, werd een overstretching bepaling uitgevoerd doordat de kracht bij constante laden tarieven. Drie soorten metingen werden vaak gebruikt voor...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Zoals hierboven beschreven, een platform voor de studie van de mechanische stabiliteit van G4 DNA en de interacties van eiwitten voor het gebruik van de G4 wordt single-molecuul magnetische pincet gemeld. Vergezeld van het platform, worden hoogefficiënte protocollen van het vinden van de G4 DNA ketting en meting van de vouwen-ontvouwen dynamiek en stabiliteit van de structuur van de G4 met nanometer speciale resolutie ontwikkeld. Het brandvlak vergrendeling schakelt de zeer stabiele anti-drift-besturing, die belangrijk i...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te onthullen.
Dankbetuigingen
De auteurs bedanken Meng Pan voor proeflezen van het manuscript. Dit werk wordt ondersteund door Singapore ministerie van onderwijs academisch onderzoek Fonds fase 3 (MOE2012-T3-1-001) naar J.Y.; de National Research Foundation via de Mechanobiology Instituut Singapore J.Y.; de National Research Foundation, Prime Minister's Office, Singapore, onder de NRF Investigatorship programma (NRF Investigatorship Award nr. NRF-NRFI2016-03 tot J.Y.; het fundamentele onderzoeksfonds voor de universiteiten (2017KFYXJJ153) van de centrale naar H. Y.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| DNA PCR primers | IDT | DNA voorbereidingen | |
| DNA PCR chemicaliën | NEB | DNA voorbereidingen | |
| restrictie-enzym BstXI | NEB | R0113S | DNA voorbereidingen |
| coverslips (#1.5, 22*32 mm, en 20*20 mm) | BMH.BIOMEDIA | 72204 | voorbereiding van stromingskanaal |
| Decon90 | Decon Laboratories Limited | voorbereiding van stromingskanaal | |
| APTES | Sigma | 440140-500ML | voorbereiding van stromingskanaal |
| Sulfo-SMCC | ThermoFisher Scientific | 22322 | voorbereiding van stromingskanaal |
| M-280, paramagnetische kralen, streptavidin | ThermoFisher Scientific | 11205D | voorbereiding van stromingskanaal |
| Polybead Amino Microspheres 3.00 μm | Polysciences, Inc | 17145-5 | voorbereiding van stromingskanaal |
| 2-Mercaptoethanol | Sigma | M6250-250ML | voorbereiding van stromingskanaal |
| Olympus Microscopen IX71 | Olympus | IX71 | Setup magnetische pincetten |
| Piezo-Z Stages P-721 | Physik Instrumente | P-721 | Setup magnetische pincetten |
| Olympus Objectieflens MPLAPON-Oil 100X | Olympus | MPLAPON-Oil 100X | Setup magnetische pincetten |
| CCD/CMOS camera | AVT | Pike F-032B | Setup magnetische pincetten |
| Lineaire vertaaltafel | Physik Instrumente | MoCo DC | Setup magnetische pincetten |
| LED | Thorlabs | MCWHL | Setup magnetische pincetten |
| Kubusmagneten | Supermagnete | Setup magnetische pincetten | |
| Labview | National Instruments | Setup magnetische pincetten | |
| OriginPro/Matlab | OriginLab/MathWorks | Gegevensanalyse |
Referenties
- Rhodes, D., Lipps, H. J. G-quadruplexes and their regulatory roles in biology. Nucleic Acids Res. 43 (18), 8627-8637 (2015).
- Brazda, V., Haronikova, L., Liao, J. C., Fojta, M. DNA and RNA quadruplex-binding proteins. Int J Mol Sci. 15 (10), 17493-17517 (2014).
- Gonzalez, V., Hurley, L. H. The C-terminus of nucleolin promotes the formation of the c-MYC G-quadruplex and inhibits c-MYC promoter activity. Biochemistry. 49 (45), 9706-9714 (2010).
- Wang, F., et al. telomerase-interacting protein that unfolds telomere G-quadruplex and promotes telomere extension in mammalian cells. Proc Natl Acad Sci U S A. 109 (50), 20413-20418 (2012).
- Mendoza, O., Bourdoncle, A., Boule, J. B., Brosh, R. M., Mergny, J. L. G-quadruplexes and helicases. Nucleic Acids Res. 44 (5), 1989-2006 (2016).
- Schiavone, D., et al. PrimPol Is Required for Replicative Tolerance of G Quadruplexes in Vertebrate Cells. Mol Cell. 61 (1), 161-169 (2016).
- Lane, A. N., Chaires, J. B., Gray, R. D., Trent, J. O. Stability and kinetics of G-quadruplex structures. Nucleic Acids Res. 36 (17), 5482-5515 (2008).
- Woodside, M. T., Block, S. M. Reconstructing folding energy landscapes by single-molecule force spectroscopy. Annu Rev Biophys. 43, 19-39 (2014).
- Neuman, K. C., Nagy, A. Single-molecule force spectroscopy: optical tweezers, magnetic tweezers and atomic force microscopy. Nat Methods. 5 (6), 491-505 (2008).
- Chen, H., et al. Improved high-force magnetic tweezers for stretching and refolding of proteins and short DNA. Biophys J. 100 (2), 517-523 (2011).
- Chen, H., et al. Dynamics of equilibrium folding and unfolding transitions of titin immunoglobulin domain under constant forces. J Am Chem Soc. 137 (10), 3540-3546 (2015).
- You, H., Wu, J., Shao, F., Yan, J. Stability and kinetics of c-MYC promoter G-quadruplexes studied by single-molecule manipulation. J Am Chem Soc. 137 (7), 2424-2427 (2015).
- You, H., Lattmann, S., Rhodes, D., Yan, J. RHAU helicase stabilizes G4 in its nucleotide-free state and destabilizes G4 upon ATP hydrolysis. Nucleic Acids Res. 45 (1), 206-214 (2017).
- You, H., et al. Dynamics and stability of polymorphic human telomeric G-quadruplex under tension. Nucleic Acids Res. 42 (13), 8789-8795 (2014).
- Fu, H., Chen, H., Marko, J. F., Yan, J. Two distinct overstretched DNA states. Nucleic Acids Res. 38 (16), 5594-5600 (2010).
- Gosse, C., Croquette, V. Magnetic tweezers: micromanipulation and force measurement at the molecular level. Biophys. J. 82 (6), 3314-3329 (2002).
- Fu, H., et al. Transition dynamics and selection of the distinct S-DNA and strand unpeeling modes of double helix overstretching. Nucleic Acids Res. 39 (8), 3473-3481 (2011).
- Zhang, X., Chen, H., Fu, H., Doyle, P. S., Yan, J. Two distinct overstretched DNA structures revealed by single-molecule thermodynamics measurements. Proc Natl Acad Sci U S A. 109 (21), 8103-8108 (2012).
- Zhang, X., et al. Revealing the competition between peeled ssDNA, melting bubbles, and S-DNA during DNA overstretching by single-molecule calorimetry. Proc Natl Acad Sci U S A. 110 (10), 3865-3870 (2013).
- Chen, H., et al. Improved High-Force Magnetic Tweezers for Stretching and Refolding of Proteins and Short DNA. Biophys. J. 100 (2), 517-523 (2011).
- Fu, H. X., et al. Transition dynamics and selection of the distinct S-DNA and strand unpeeling modes of double helix overstretching. Nucleic Acids Res. 39 (8), 3473-3481 (2011).
- Zhang, X., Chen, H., Fu, H., Doyle, P. S., Yan, J. Two distinct overstretched DNA structures revealed by single-molecule thermodynamics measurements. Proc. Natl. Acad. Sci. U.S.A. 109 (21), 8103-8108 (2012).
- Zhang, X., et al. Revealing the competition between peeled ssDNA, melting bubbles, and S-DNA during DNA overstretching by single-molecule calorimetry. Proc. Natl. Acad. Sci. U.S.A. 110 (10), 3865-3870 (2013).
- Vaughn, J. P., et al. The DEXH protein product of the DHX36 gene is the major source of tetramolecular quadruplex G4-DNA resolving activity in HeLa cell lysates. J Biol Chem. 280 (46), 38117-38120 (2005).
- Giri, B., et al. G4 resolvase 1 tightly binds and unwinds unimolecular G4-DNA. Nucleic Acids Res. 39 (16), 7161-7178 (2011).
- De Vlaminck, I., Dekker, C. Recent advances in magnetic tweezers. Annu Rev Biophys. 41, 453-472 (2012).
- Yan, J., Skoko, D., Marko, J. F. Near-field-magnetic-tweezer manipulation of single DNA molecules. Phys Rev E Stat Nonlin Soft Matter Phys. 70 (1 Pt 1), 011905(2004).
- Le, S., et al. Disturbance-free rapid solution exchange for magnetic tweezers single-molecule studies. Nucleic Acids Res. 43 (17), e113(2015).
- Neidle, S. Quadruplex Nucleic Acids as Novel Therapeutic Targets. J Med Chem. 59 (13), 5987-6011 (2016).
- Simone, R., Fratta, P., Neidle, S., Parkinson, G. N., Isaacs, A. M. G-quadruplexes: Emerging roles in neurodegenerative diseases and the non-coding transcriptome. FEBS Lett. 589 (14), 1653-1668 (2015).
- Balasubramanian, S., Hurley, L. H., Neidle, S. Targeting G-quadruplexes in gene promoters: a novel anticancer strategy? Nat Rev Drug Discov. 10 (4), 261-275 (2011).
- Amato, J., et al. Toward the Development of Specific G-Quadruplex Binders: Synthesis, Biophysical, and Biological Studies of New Hydrazone Derivatives. J Med Chem. 59 (12), 5706-5720 (2016).
- Wells, R. D. Non-B DNA conformations, mutagenesis and disease. Trends Biochem Sci. 32 (6), 271-278 (2007).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
