Dit protocol beschrijft een dynamisch cultuursysteem om gecontroleerde grootteaggregaten van menselijke pluripotente stamcellen te produceren en differentiatie in cerebellar organoïden verder te stimuleren onder chemisch gedefinieerde en feedervrije omstandigheden met behulp van een bioreactor voor eenmalig gebruik.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Schaalbare generatie van volwassen cerebellar organoïden uit menselijke pluripotente stamcellen en karakterisering door immunostaining
In dit artikel
Samenvatting
Samenvatting
Het cerebellum speelt een cruciale rol in het onderhoud van evenwicht en motorische coördinatie, en een functioneel defect in verschillende cerebellar neuronen kan leiden tot cerebellar disfunctie. Het grootste deel van de huidige kennis over ziekte-gerelateerde neuronale fenotypes is gebaseerd op postmortem weefsels, waardoor het begrijpen van de progressie van de ziekte en ontwikkeling moeilijk. Dierlijke modellen en vereeuwigde cellijnen zijn ook gebruikt als modellen voor neurodegeneratieve aandoeningen. Ze vatten echter niet volledig de menselijke ziekte samen. Door de mens veroorzaakte pluripotente stamcellen (iPSC's) hebben een groot potentieel voor ziektemodellering en vormen een waardevolle bron voor regeneratieve benaderingen. In de afgelopen jaren verbeterde de generatie van cerebrale organoïden uit door patiënten afgeleide iPSC's de vooruitzichten voor neurodegeneratieve ziektemodellering. Echter, protocollen die grote aantallen organoïden produceren en een hoge opbrengst van volwassen neuronen in 3D-cultuursystemen ontbreken. Het gepresenteerde protocol is een nieuwe aanpak voor reproduceerbare en schaalbare generatie van menselijke iPSC-afgeleide organoïden onder chemisch gedefinieerde omstandigheden met behulp van schaalbare bioreactoren voor eenmalig gebruik, waarin organoïden een cerebellaire identiteit verwerven. De gegenereerde organoïden worden gekenmerkt door de expressie van specifieke markers op zowel mRNA- als eiwitniveau. De analyse van specifieke groepen eiwitten maakt de detectie van verschillende cerebellar celpopulaties mogelijk, waarvan de lokalisatie belangrijk is voor de evaluatie van de organoïde structuur. Organoïde cryosectioning en verdere immunostaining van organoïde plakjes worden gebruikt om de aanwezigheid van specifieke cerebellar celpopulaties en hun ruimtelijke organisatie te evalueren.
Inleiding
De opkomst van menselijke pluripotente stamcellen (PSC's) is een uitstekend hulpmiddel voor regeneratieve geneeskunde en ziektemodellering, omdat deze cellen kunnen worden onderscheiden in de meeste cellijnen van het menselijk lichaam1,2. Sinds hun ontdekking is psc-differentiatie met behulp van verschillende benaderingen gemeld om verschillende ziekten te modelleren, waaronder neurodegeneratieve aandoeningen3,4,5,6.
Onlangs zijn er meldingen van 3D-culturen afgeleid van PSC's die lijken op menselijke hersenstructuren; deze worden hersenorganoïden3,7,8genoemd. De generatie van deze structuren van zowel gezonde als patiëntspecifieke PSC's biedt een waardevolle kans om menselijke ontwikkeling en neuroontwikkelingsstoornissen te modelleren. Echter, de methoden die worden gebruikt om deze goed georganiseerde cerebrale structuren te genereren zijn moeilijk toe te passen voor hun grootschalige productie. Om structuren te produceren die groot genoeg zijn om weefselmorfogenese samen te vatten zonder necrose in de organoïden, zijn protocollen afhankelijk van de initiële neurale inzet in statische omstandigheden, gevolgd door inkapseling in hydrogels en de daaropvolgende cultuur in dynamische systemen3. Dergelijke benaderingen kunnen echter de potentiële opschaaring van de organoïdeproductie beperken. Hoewel er inspanningen zijn geleverd om psc-differentiatie rechtstreeks naar specifieke regio's van het centrale zenuwstelsel, met inbegrip van corticale, striatale, midbrain, en ruggenmerg neuronen9,10,11,12, de generatie van specifieke hersengebieden in dynamische omstandigheden is nog steeds een uitdaging. In het bijzonder, de generatie van volwassen cerebellar neuronen in 3D-structuren moet nog worden beschreven. Muguruma et al. pionierde de generatie van cultuuromstandigheden die vroege cerebellar ontwikkeling13 recapituleren en rapporteerde onlangs een protocol dat het mogelijk maakt voor menselijke embryonale stamcellen om een gepolariseerde structuur die doet denken aan het eerste trimester cerebellum7te genereren. Echter, de rijping van cerebellar neuronen in de gerapporteerde studies vereist de dissociatie van de organoïden, sorteren van cerebellar voorlopers, en cocultuur met feeder cellen in een monolaag cultuursysteem7,14,15,16. Daarom is de reproduceerbare generatie van de gewenste cerebellar organoïden voor ziektemodellering onder bepaalde omstandigheden nog steeds een uitdaging in verband met cultuur en feeder bron variabiliteit.
Dit protocol biedt optimale kweekomstandigheden voor 3D-expansie en efficiënte differentiatie van menselijke PSC's in cerebellar neuronen met behulp van verticale wielbioreactoren voor eenmalig gebruik (zie tabel van materialen voor specificaties), hierna bioreactoren genoemd. Bioreactoren zijn uitgerust met een grote verticale waaier, die in combinatie met een U-vormige bodem zorgt voor een meer homogene schuifverdeling in het vat, waardoor zachte, uniforme meng- en deeltjessuspensie mogelijk is met lagere agitatiesnelheden17. Met dit systeem kunnen vorm- en groottegecontroleerde celaggregaten worden verkregen, wat belangrijk is voor een meer homogene en efficiënte differentiatie. Bovendien kan een groter aantal iPSC-afgeleide organoïden op een minder moeizame manier worden gegenereerd.
Het belangrijkste kenmerk van de organoïden, die 3D meercellige structuren meestal gevormd uit stamcellen, is de zelforganisatie van verschillende celtypes die specifieke vormen vormen zoals die gezien in de menselijke morfogenese18,19,20. Daarom is organoïde morfologie een belangrijk criterium dat tijdens het differentiatieproces moet worden geëvalueerd. Cryosectioning van organoïden en verdere immunostaining van organoïde plakjes met een specifieke set antilichamen zorgen voor de ruimtelijke visualisatie van moleculaire markers om celproliferatie, differentiatie, celpopulatieidentiteit en apoptose te analyseren. Met dit protocol, door het immunostaineren van organoïde cryosections, wordt een eerste efficiënte neurale inzet waargenomen door de7e dag van differentiatie. Tijdens differentiatie worden verschillende celpopulaties met cerebellar-identiteit waargenomen. Na 35 dagen in dit dynamische systeem organiseert het cerebellar neuroepithelium zich langs een apicobasale as, met een apicale laag prolifererende voorouders en basaal gelegen postmitotische neuronen. Tijdens het rijpingsproces, van dagen 35-90 van differentiatie, kunnen verschillende soorten cerebellar neuronen worden gezien, waaronder Purkinje cellen (Calbindin+), granulecellen (PAX6+/MAP2+), Golgi cellen (Neurogranin+), unipolaire borstelcellen (TBR2+), en diepe cerebellar kernprojectie neuronen (TBR1+). Ook wordt een niet-significante hoeveelheid celdood waargenomen in de gegenereerde cerebellaire organoïden na 90 dagen in cultuur.
In dit systeem, menselijke iPSC-afgeleide organoïden rijpen in verschillende cerebellar neuronen en overleven voor maximaal 3 maanden zonder de noodzaak van dissociatie en feeder cocultuur, het verstrekken van een bron van menselijke cerebellar neuronen voor ziekte modellering.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
1. Doorgeven en onderhouden van menselijke IPSCs in monolaagcultuur
- Bereiding van platen
- Ontdooi de keldermembraanmatrix (zie Tabel van Materialen)voorraad bij 4 °C en bereid 60 μL aliquots voor. Vries de aliquots op -20 °C.
- Om de putten van een 6 putplaat te coaten, ontdooi je een aliquot van de keldermembraanmatrix op ijs. Eenmaal ontdooid voeg 60 μL toe aan 6 mL DMEM-F12. Voorzichtig resuspend door pipetting op en neer.
- Voeg 1 mL verdunde keldermembraanmatrijsoplossing toe aan elke put van een 6 putplaat en broed gedurende ten minste 1 uur bij RT voordat u passeert of bewaar maximaal 1 week bij 4 °C.
- Doorgeven van iPSC kolonies met EDTA
- Onderhoud iPSC's in monolaagcultuur in 6 putplaten in de couveuse bij 37 °C, 95% luchtvochtigheid en 5% CO2.
OPMERKING: In dit protocol werden drie verschillende menselijke iPSC-lijnen gebruikt: F002.1A.1321, menselijke episomaal iPSC-lijn (iPSC6.2)22, en commercieel verkregen iPS-DF6-9-9T.B (zie tabel met materialen). - Voordat u gaat, 15 minuten de opgeslagen platen (stap 1.1) bij kamertemperatuur (RT) uitbroeden en het mTesR1-medium(tabel 1)voorbereiden.
- Spoel de oplossing van de plaat met behulp van een serologische pipet en voeg onmiddellijk 0,5 mL mTeSR1 medium aan elke put.
- Aspirate het gebruikte medium uit de put met iPSCs en was eenmaal met behulp van 1 mL van 0,5 mM EDTA per put.
- Voeg 1 mL van 0,5 mM EDTA toe aan elke put en incubbate bij RT gedurende 5 minuten.
- Aspirate EDTA en verwijder de cellen uit de putten door voorzichtig toe te voegen mTeSR1 medium en pipetting de kolonies met behulp van een P1000 micropipet. Verzamel de cellen in een conische buis.
LET OP: Niet pipette cellen op en neer meer dan 3x. - Voeg 1 mL celsuspensie (verdund 1:4) toe aan elke put, zodat elke put 1,5 mL medium bevat nadat de celsuspensie is toegevoegd. Breng cellen terug naar de couveuse bij 5% CO2, 37 °C.
- Vervang het gemiddelde dagelijks en passage elke 3 dagen wanneer 75%-80% samenvloeiing wordt bereikt.
- Onderhoud iPSC's in monolaagcultuur in 6 putplaten in de couveuse bij 37 °C, 95% luchtvochtigheid en 5% CO2.
2. Zaaien van menselijke IPSCs in de bioreactor
- Incubate iPSCs gekweekt als monolagen in mTeSR1 aangevuld met 10 μM ROCK-remmer Y-27632 (ROCKi). Voeg 1 mL van het aangevulde medium toe aan elke put van een 6 goed weefselkweekplaat en broeder gedurende 1 uur bij 37 °C, 95% luchtvochtigheid en 5% CO2.
OPMERKING: ROCKi wordt gebruikt om gescheiden iPSC's te beschermen tegen apoptose23. - Na 1 uur incubatie, aspirate het gebruikte medium van elke put en was 1x met 1 mL van 1× PBS per put.
- Voeg 1 mL van het cellossend medium (zie Tabel van materialen)toe aan elke put van een 6 putplaat en broed gedurende 7 minuten bij 37 °C tot de cellen gemakkelijk loskomen van de putten met zacht schudden.
- Pipette het cellossingsmedium op en neer met een P1000 micropipet totdat de cellen loskomen en scheiden in enkele cellen. Voeg 2 mL van volledige celcultuurmedium aan elke put toe om enzymatische spijsvertering te inactiveren en pipette de cellen zacht in een steriele kegelbuis.
- Centrifuge op 210 × g gedurende 3 min en verwijder de supernatant.
- Resuspend de celpellet in kweekmedium (d.w.z., mTeSR1 aangevuld met 10 μM ROCKi) en tel de iPSCs met een hemocytometer met behulp van trypan blauwe kleurstof.
- Zaad 15 × 106 enkele cellen in de bioreactor (maximaal volume van 100 mL) met 60 mL mTeSR1 aangevuld met 10 μM ROCKi bij een uiteindelijke celdichtheid van 250.000 cellen/mL.
- Plaats het vat met de iPSC's in de universele basiseenheid die in de couveuse is geplaatst bij 37 °C, 95% luchtvochtigheid en 5% CO2.
OPMERKING: Het roeren van de bioreactor wordt 24 uur gehandhaafd door de universele basiseenheidsregeling in te stellen op 27 rpm om iPSC-aggregatie te bevorderen.
3. Differentiatie en rijping van door menselijke iPSC afgeleide aggregaten in cerebellaire organoïden
- Definieer de dag van het zaaien van één cel als dag 0.
- Verzamel op dag 1 1 mL van het iPSC-aggregaatmonster met behulp van een serologische pipet. Houd de bioreactor onder agitatie zoals voorheen door de universele basiseenheid bij de bioreactor te plaatsen die de aggregaten in een steriele stroom bevat voordat het monster wordt verzameld. Plaats de celsuspensie in een ultralaag bevestigingsbord 24 putplaat. Controleer of iPSC-afgeleide aggregaten worden gevormd.
- Verwerf afbeeldingen met een optische microscoop met behulp van een totale vergroting van 40x of 100x om de geaggregeerde diameter te meten.
- Meet het gebied van de aggregaten in elke afbeelding met fiji-software.
- Selecteren |Analyze Stel Metingenin op de menubalk en klik op "Gebied" en "OK".
- Selecteer "Bestand | Open" vanaf de menubalk om een opgeslagen afbeeldingsbestand te openen. Selecteer het gereedschap Lijnselectie dat in de gereedschapsbalk wordt weergegeven en maak een rechte lijn over de schaalbalk die in de afbeelding wordt weergegeven. Selecteren| Schaal instellen" vanuit de menubalk.
- Voeg in 'Bekende afstand'de uitgestrektheid van de schaalbalk van de afbeelding toe in μm. Definieer de "Eenheid van lengte" als μm. Klik op "Global" om de instellingen te behouden en "OK". Selecteer Ovale selectie op de gereedschapsbalk.
- Voor elk aggregaat het gebied afbakenen met het ovale gereedschap. Selecteren| Maatregel". Bereken hun diameter op basis van het gemeten gebied, gezien het feit dat aggregaten ongeveer bolvormig zijn met behulp van
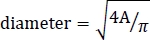
met A als het gebied van het aggregaat.
- Wanneer de gemiddelde diameter van de aggregaten 100 μm is, vervangt u 80% van het verbruikte medium door verse mTeSR1 zonder ROCKi. Wanneer aggregaten een diameter van 200-250 μm bereiken, vervang dan al het verbruikte medium door gfCDM (tabel 1),zodat de organoïden zich onderaan de bioreactor kunnen nestelen.
OPMERKING: Als de gemiddelde totale diameter hoger is dan 350 μm, start dan niet met het differentiatieprotocol. Herhaal het zaaien van enkele cellen. Over het algemeen duurt het ongeveer 1 dag voordat het aggregaat een gemiddelde diameter van 100 μm bereikt. - Plaats de bioreactor met de aggregaten in de universele basiseenheid die in de couveuse wordt geplaatst bij 37 °C, 95% luchtvochtigheid en 5% CO2.
- Verlaag de bioreactor agitatie tot 25 rpm.
- Herhaal op dag 2 de stappen 3.2, 3.3 en 3.4 om de geaggregeerde diameter te evalueren. Voeg 30 μL FGF2 (eindconcentratie, 50 ng/mL) en 60 μL SB431542 (eindconcentratie, 10 μM) toe aan 60 mL gfCDM-differentiatiemedium (tabel 1). Vervang alle gebruikte medium uit de bioreactor door de aanvullende gfCDM. Herhaal stap 3.6.
OPMERKING: SB431542 is cruciaal om mesendodermale differentiatie te remmen, waardoor neurale differentiatie24 wordt induceren. FGF2 wordt gebruikt om de caudalisatie van het neuroepitheliale weefsel25te bevorderen. - Herhaal op dag 5 de stappen 3.2, 3.3, 3.4 en 3.8.
OPMERKING: De totale grootte moet toenemen tijdens het differentiatieprotocol. De diameter is echter alleen kritiek wanneer de differentiatie begint, omdat deze parameter de werkzaamheid van differentiatie kan beïnvloeden. - Herhaal op dag 7 de stappen 3.2, 3.3 en 3.4. Verdun FGF2 en SB431542 tot 2/3: Voeg 20 μL FGF2 en 40 μL SB431542 toe tot 60 mL gfCDM-differentiatiemedium. Vervang alle gebruikte medium uit de bioreactor door aangevuld gfCDM. Herhaal stap 3.6 en verhoog de agitatie van de bioreactor tot 30 rpm.
- Herhaal op dag 14 de stappen 3.2, 3.3 en 3.4. Voeg 60 μL FGF19 (uiteindelijke concentratie, 100 ng/mL) toe aan 60 mL gfCDM-differentiatiemedium. Vervang alle gebruikte medium uit de bioreactor door gfCDM aangevuld met FGF19. Herhaal stap 3.6.
OPMERKING: FGF19 wordt gebruikt om polarisatie van midden-achterhersenenstructuren te bevorderen26. - Herhaal op dag 18 de stappen 3.2, 3.3, 3.4 en 3.11.
- Herhaal op dag 21 de stappen 3.2, 3.3 en 3.4. Vervang alle gebruikte medium uit de bioreactor door volledig neurobasaal medium(tabel 1). Herhaal stap 3.6.
OPMERKING: Neurobasaal medium is een basaal medium dat wordt gebruikt om de neuronale celpopulatie binnen de organoïde7te behouden. - Herhaal op dag 28 de stappen 3.2, 3.3 en 3.4. Voeg 180 μL SDF1 (uiteindelijke concentratie, 300 ng/mL) toe aan 60 mL volledig neurobasaal medium. Vervang alle gebruikte medium uit de bioreactor door volledig neurobasaal medium aangevuld met SDF1. Herhaal stap 3.6.
OPMERKING: SDF1 wordt gebruikt om de organisatie van afzonderlijke cellagen27te vergemakkelijken. - Herhaal op dag 35 de stappen 3.2, 3.3 en 3.4. Vervang alle gebruikte medium uit de bioreactor door volledig BrainPhys medium(tabel 1). Herhaal stap 3.6.
OPMERKING: BrainPhys is een neuronaal medium dat synaptisch actieve neuronenondersteunt 28. - Vervang 1/3 van het totale volume om de 3 dagen door volledige BrainPhys medium tot dag 90 van differentiatie.
4. Voorbereiding van organoïden voor cryosectioning en immunohistochemie
- Verzameling van organoïden voor immunostinding
- Verzamel 1 mL monster van medium bevattende organoïden met een serologische pipet uit de bioreactor tot een conische buis van 15 mL.
OPMERKING: Organoïden moeten op verschillende tijdpunten worden verzameld om de werkzaamheid van differentiatie te evalueren, waaronder de dagen 7, 14, 21, 35, 56, 70, 80 en 90. - Verwijder de supernatant en was één keer met 1 mL van 1× PBS.
LET OP: Centrifugeer de organoïden niet. Laat de organoïden zich op de bodem van de buis vestigen door de zwaartekracht. - Verwijder de supernatant en voeg 1 mL van 4% paraformaldehyde (PFA). Incubeer bij 4 °C gedurende 30 minuten. Verwijder de verbruikte PFA en voeg 1 mL van 1× PBS toe.
- Bewaar de organoïden in 1 mL van 1× PBS bij 4 °C tot de verwerking voor cryosectioning.
LET OP: Bewaar de organoïden in 1x PBS voor niet meer dan 1 week na fixatie.
- Verzamel 1 mL monster van medium bevattende organoïden met een serologische pipet uit de bioreactor tot een conische buis van 15 mL.
- Bereiding van organoïden voor cryosectioning
- Verwijder de supernatant uit de opgeslagen organoïden. Voeg 1 mL van 15% sacharose (w/v, verdund in 1× PBS), meng goed door zachte wervelingen en incubeer 's nachts bij 4 °C.
- Bereid een oplossing voor van 15% sacharose/7,5% gelatine (Tabel 2) en houd tijdens de voorbereiding op 37 °C om te voorkomen dat gelatine stolt.
- Verwijder de 15% sacharoseoplossing, voeg 1 mL van 15% sacharose/7,5% gelatine toe aan de organoïden en meng snel door zachte wervelingen. Incubeer bij 37 °C gedurende 1 uur.
- Voeg 15% sacharose/7,5% gelatineoplossing toe aan een plastic container tot de helft van het volume. Wacht op stolling bij RT.
- Na een incubatie van 1 uur plaatst u voorzichtig een sacharose/gelatinedruppel met de organoïden op de gestolde gelatine met een Pasteurpipet. Laat stollen op RT voor ongeveer 15 minuten. Zorg ervoor dat belvorming te voorkomen.
- Plaats 15% sacharose/7,5% gelatine bovenop de organoïden totdat de container gevuld is. Wacht op volledige stolling bij RT.
- Na stolling, incubeer 20 min bij 4 °C.
- Snijd de gelatine in een kubus met daarin de organoïden in het midden en bevestig de gelatine kubus op een stuk karton met een druppel O.C.T. verbinding.
- Plaats 250 mL isopentane in een beker van 500 mL en vul een geschikte container met vloeibare stikstof. Plaats met behulp van tangen en dikke handschoenen de beker met isopentane voorzichtig op het oppervlak van vloeibare stikstof en koel de isopentane af tot -80 °C.
- Wanneer -80 °C is bereikt, plaatst u de gelatinekubus in de beker met isopentane totdat deze bevriest, waarbij de temperatuur op -80 °C blijft. Afhankelijk van de grootte van de kubus kan het 1-2 min duren.
OPMERKING: Vermijd temperaturen onder -80 °C of overmatige vriestijd, omdat dit kan leiden tot scheuren van de kubus. - Wanneer u bevroren bent, slaat u de gelatinekubus snel op -80 °C en bewaar u tot cryosectioning.
- Cryosectioning van organoïden
- Zet de cryostat aan en definieer beide temperaturen van het monster (OT) en de cryochambertemperaturen (CT) bij -25 °C.
- Wanneer beide temperaturen stabiliseren, bevestig de gelatine kubus met de organoïden op het monster met behulp van O.C.T. verbinding.
- Definieer de sectiedikte op 12 μm.
- Snijd de kubus en verzamel 3-4 plakjes op adhesiemicroscoopdia's (zie Tabel met materialen).
- Bewaar op -20 °C tot gebruik.
- Immunostaining van organoïdenplakjes
- Plaats de microscoopdia's met organoïde secties in een copling pot met 50 mL van voorverwarmde 1x PBS, met maximaal 10 dia's back-to-back.
LET OP: Alle organoïde secties moeten worden ondergedompeld met vloeistof. - Incubeer gedurende 45 minuten bij 37 °C om dia's te degelatiniseren.
- Was 1x met 50 mL van 1× PBS gedurende 5 minuten bij RT: Breng de glijbanen over op een copling pot met verse 1× PBS.
- Breng de glijbanen over op een coplingpot met 50 mL vers bereide glycine(tabel 2) en incubbate gedurende 10 minuten bij RT.
- Breng de dia's over op een copling pot met 50 mL van 0,1% triton (Tabel 2) en permeabiliseren gedurende 10 min bij RT.
- Was met 1× PBS gedurende 5 min 2x.
- Bereid de immunostaining schotel met 3 mm papier gedrenkt in 1× PBS. Droge glijbanen met een weefsel rondom de plakjes en leg ze op 3 mm papier. Bedek met een Pasteur pipet het hele oppervlak van de glijbanen met blokkeringsoplossing(tabel 2) met ~0,5 mL per dia. Incubeer voor 30 minuten bij RT.
- Verwijder overtollige blokkeren oplossing en droog de dia's met een weefsel rondom de plakjes. Plaats 50 μL van het primaire antilichaam (Tabel 3) verdund in blokkering oplossing over de secties en bedek met de coverslips. Plaats de plakjes in een eerder bereide immunostaining schotel. Incubeer 's nachts bij 4 °C.
- Breng de dia's naar een copling pot met 50 mL tbs (Tabel 2), laat de coverslips vallen, en wassen met TBST voor 5 min 3x.
- Plaats 50 μL van het secundaire antilichaam verdund in blokkerende oplossing over de secties en bedek met de coverslips. Plaats de plakjes in het eerder bereide immunostaining gerecht. Incubeer gedurende 30 minuten bij RT, beschermd tegen licht.
- Breng de dia's weer naar een copling pot en wassen met 50 mL tbs voor 5 min 3x.
- Droog de glijbanen met een weefsel rondom de plakjes en plaats de plakjes in een eerder bereide immunostaining schotel. Voeg 0,5 mL DAPI-oplossing toe over het hele oppervlak van de glijbanen met een Pasteur pipet. Incubeer voor 5 minuten op RT.
- Herhaal stap 4.4.9.
- Droog de glijbanen voorzichtig met een tissue. Voeg 50 μL montagemedium druppel voor druppel langs de glijbaan toe en laat vervolgens voorzichtig een afdekplaat op elke dia zakken, iets buigen om bellen te voorkomen.
- Plaats de microscoopdia's met organoïde secties in een copling pot met 50 mL van voorverwarmde 1x PBS, met maximaal 10 dia's back-to-back.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Het protocol werd geïnitieerd door celaggregatie te bevorderen met behulp van de 0,1 L bioreactoren (figuur 1A). Eencellige inenting van de iPSCs werd uitgevoerd, met 250.000 cellen/mL gezaaid in 60 mL van medium met een agitatiesnelheid van 27 rpm. Dit werd gedefinieerd als dag 0. Na 24 uur vormden de cellen efficiënt sferoïde-vormige aggregaten (dag 1, figuur 1B),en de morfologie werd goed onderhouden tot dag 5, met een geleidelijke toename in grootte, waaruit...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
De behoefte aan grote celaantallen en gedefinieerde kweekomstandigheden om specifieke celtypen te genereren voor toepassingen voor geneesmiddelenscreening en regeneratieve geneeskunde heeft de ontwikkeling van schaalbare cultuursystemen aanstuurd. In de afgelopen jaren hebben verschillende groepen gemeld de schaalbare generatie van neurale voorouders en functionele neuronen32,33,34, het verstrekken van aanzienlijke vooruitgang i...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
Auteurs YH en SJ zijn medewerkers van PBS Biotech. De auteur BL is CEO en mede-oprichter van PBS Biotech, Inc. Deze samenwerkende auteurs namen deel aan de ontwikkeling van de bioreactoren die in het manuscript werden gebruikt. Dit verandert niets aan de naleving van alle beleidsmaatregelen van het tijdschrift voor het delen van gegevens en materialen. Alle andere auteurs verklaren geen belangenconflict.
Dankbetuigingen
Dit werk werd ondersteund door Fundação para a Ciência e a Tecnologia (FCT), Portugal (UIDB/04565/2020 door Programa Operacional Regional de Lisboa 2020, Project N. 007317, PD/BD/105773/2014 naar T.P.S en PD/BD/128376/2017 naar D.E.S.N.), projecten medegefinancierd door FEDER (POR Lisboa 2020—Programa Operacional Regional de Lisboa PORTUGAL 2020) en FCT door subsidie PAC-PRECISE LISBOA-01-0145-FEDER-016394 en CEREBEX Generation of Cerebellar Organoids for Ataxia Research grant LISBOA-01-0145-FEDER-029298. Er werd ook financiering ontvangen van het Horizon 2020-programma voor onderzoek en innovatie van de Europese Unie, onder het grant agreement nummer 739572— het Discoveries Centre for Regeneratieve en Precision Medicine H2020-WIDESPREAD-01-2016-2017.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 3MM paper | WHA3030861 | Merck | |
| Accutase | A6964 - 500mL | Sigma | cell detachment medium |
| Anti-BARHL1 Antibody | HPA004809 | Atlas Antibodies | |
| Anti-Calbindin D-28k Antibody | CB28 | Millipore | |
| Anti-MAP2 Antibody | M4403 | Sigma | |
| Anti-N-Cadherin Antibody | 610921 | BD Transduction | |
| Anti-NESTIN Antibody | MAB1259-SP | R&D | |
| Anti-OLIG2 Antibody | MABN50 | Millipore | |
| Anti-PAX6 Antibody | PRB-278P | Covance | |
| Anti-SOX2 Antibody | MAB2018 | R&D | |
| Anti-TBR1 Antibody | AB2261 | Millipore | |
| Anti-TBR2 Antibody | ab183991 | Abcam | |
| Anti-TUJ1 Antibody | 801213 | Biolegend | |
| Apo-transferrine | T1147 | Sigma | |
| BrainPhys Neuronal Medium N2-A & SM1 Kit | 5793 - 500mL | Stem cell tecnhnologies | |
| Chemically defined lipid concentrate | 11905031 | ThermoFisher | |
| Coverslips 24x60mm | 631-1575 | VWR | |
| Crystallization-purified BSA | 5470 | Sigma | |
| DAPI | 10236276001 | Sigma | |
| Dibutyryl cAMP | SC- 201567B -500mg | Frilabo | |
| DMEM-F12 | 32500-035 | ThermoFisher | |
| Fetal bovine serum | A3840001 | ThermoFisher | |
| Gelatin from bovine skin | G9391 | Sigma | |
| Glass Copling Jar | E94 | ThermoFisher | |
| Glutamax I | 10566-016 | ThermoFisher | |
| Glycine | MB014001 | NZYtech | |
| Ham’s F12 | 21765029 | ThermoFisher | |
| Human Episomal iPSC Line | A18945 | ThermoFisher | iPSC6.2 |
| IMDM | 12440046 | ThermoFisher | |
| Insulin | 91077C | Sigma | |
| iPS DF6-9-9T.B | WiCell | ||
| Iso-pentane | PHR1661-2ML | Sigma | |
| L-Ascorbic acid | A-92902 | Sigma | |
| Matrigel | 354230 | Corning | basement membrane matrix |
| Monothioglycerol | M6154 | Sigma | |
| Mowiol | 475904 | Millipore | mounting medium |
| mTeSR1 | 85850 -500ml | Stem cell technologies | |
| N2 supplement | 17502048 | ThermoFisher | |
| Neurobasal | 12348017 | ThermoFisher | |
| Paraformaldehyde | 158127 | Sigma | |
| PBS-0.1 Single-Use Vessel | SKU: IA-0.1-D-001 | PBS Biotech | |
| PBS-MINI MagDrive Base Unit | SKU: IA-UNI-B-501 | PBS Biotech | |
| Recombinant human BDNF | 450-02 | Peprotech | |
| Recombinant human bFGF/FGF2 | 100-18B | Peprotech | |
| Recombinant human FGF19 | 100-32 | Peprotech | |
| Recombinant human GDNF | 450-10 | Peprotech | |
| Recombinant human SDF1 | 300-28A | Peprotech | |
| ROCK inhibitor Y-27632 | 72302 | Stem cell technologies | |
| SB431542 | S4317 | Sigma | |
| Sucrose | S7903 | Sigma | |
| SuperFrost Microscope slides | 12372098 | ThermoFisher | adhesion microscope slides |
| Tissue-Tek O.C.T. Compound | 25608-930 | VWR | |
| Tris-HCL 1M | T3038-1L | Sigma | |
| Triton X-100 | 9002-93-1 | Sigma | |
| Tween-20 | P1379 | Sigma | |
| UltraPure 0.5M EDTA, pH 8.0 | 15575020 | ThermoFisher |
Referenties
- Takahashi, K., et al. Induction of Pluripotent Stem Cells from Adult Human Fibroblasts by Defined Factors. Cell. 131 (5), 861-872 (2007).
- Thomson, J. A. Embryonic Stem Cell Lines Derived from Human Blastocysts. Science. 282 (5391), 1145-1147 (1998).
- Lancaster, M. A., et al. Cerebral organoids model human brain development and microcephaly. Nature. 501 (7467), 373-379 (2013).
- Ishida, Y., et al. Vulnerability of Purkinje Cells Generated from Spinocerebellar Ataxia Type 6 Patient-Derived iPSCs. Cell Reports. 17 (6), 1482-1490 (2016).
- Liu, Y., Zhang, S. C. Human stem cells as a model of motoneuron development and diseases. Annals of the New York Academy of Sciences. 1198, 192-200 (2010).
- Mariani, J., Coppola, G., Pelphrey, K. A., Howe, J. R., Vaccarino, F. M. FOXG1-Dependent Dysregulation of GABA/ Glutamate Neuron Differentiation in Autism Spectrum Disorders. Cell. 162 (2), 375-390 (2015).
- Muguruma, K., Nishiyama, A., Kawakami, H., Hashimoto, K., Sasai, Y. Self-Organization of Polarized Cerebellar Tissue in 3D Culture of Human Pluripotent Stem Cells. Cell Reports. 10 (4), 537-550 (2015).
- Qian, X., et al. Generation of human brain region-specific organoids using a miniaturized spinning bioreactor. Nature Protocols. 13 (3), 565-580 (2018).
- Aubry, L., et al. Striatal progenitors derived from human ES cells mature into DARPP32 neurons in vitro and in quinolinic acid-lesioned rats. Proceedings of the National Academy of Sciences. 105 (43), 16707-16712 (2008).
- Gunhanlar, N., et al. A simplified protocol for differentiation of electrophysiologically mature neuronal networks from human induced pluripotent stem cells. Molecular Psychiatry. 23 (5), 1336-1344 (2018).
- Hu, B. Y., Zhang, S. C. Differentiation of spinal motor neurons from pluripotent human stem cells. Nature Protocols. 4 (9), 1295-1304 (2009).
- Jo, J., et al. Midbrain-like Organoids from Human Pluripotent Stem Cells Contain Functional Dopaminergic and Neuromelanin-Producing Neurons. Cell Stem Cell. 19 (2), 248-257 (2016).
- Muguruma, K., et al. Ontogeny-recapitulating generation and tissue integration of ES cell-derived Purkinje cells. Nature Neurosciences. 13 (10), 1171-1180 (2010).
- Watson, L. M., Wong, M. M. K., Vowles, J., Cowley, S. A., Becker, E. B. E. A Simplified Method for Generating Purkinje Cells from Human-Induced Pluripotent Stem Cells. The Cerebellum. 17 (4), 419-427 (2018).
- Wang, S., et al. Differentiation of human induced pluripotent stem cells to mature functional Purkinje neurons. Science Reports. 5, 9232(2015).
- Tao, O., et al. Efficient generation of mature cerebellar Purkinje cells from mouse embryonic stem cells. Journal of Neuroscience Research. 88 (2), 234-247 (2010).
- Croughan, M. S., Giroux, D., Fang, D., Lee, B. Novel Single-Use Bioreactors for Scale-Up of Anchorage-Dependent Cell Manufacturing for Cell Therapies. Stem Cell Manufacturing. , 105-139 (2016).
- Simunovic, M., Brivanlou, A. H. Embryoids, organoids and gastruloids: new approaches to understanding embryogenesis. Development. 144 (6), 976-985 (2017).
- Lou, Y. R., Leung, A. W. Next generation organoids for biomedical research and applications. Biotechnology Advances. 36 (1), 132-149 (2018).
- Silva, T. P., et al. Design Principles for Pluripotent Stem Cell-Derived Organoid Engineering. Stem Cells International. 2019, 1-17 (2019).
- Silva, T. P., et al. Maturation of human pluripotent stem cell-derived cerebellar neurons in the absence of co-culture. Frontiers of Bioengineering and Biotechnology. , (2020).
- Burridge, P. W., et al. A universal system for highly efficient cardiac differentiation of human induced pluripotent stem cells that eliminates interline variability. PLoS One. 6 (4), 18293(2011).
- Watanabe, K., et al. A ROCK inhibitor permits survival of dissociated human embryonic stem cells. Nature Biotechnology. 25 (6), 681-686 (2007).
- Smith, J. R., et al. Inhibition of Activin/Nodal signaling promotes specification of human embryonic stem cells into neuroectoderm. Developmental Biology. 313 (1), 107-117 (2008).
- Yaguchi, Y., et al. Fibroblast growth factor (FGF) gene expression in the developing cerebellum suggests multiple roles for FGF signaling during cerebellar morphogenesis and development. Developmental Dynamics. 238 (8), 2058-2072 (2008).
- Fischer, T., et al. Fgf15-mediated control of neurogenic and proneural gene expression regulates dorsal midbrain neurogenesis. Developmental Biology. 350 (2), 496-510 (2011).
- Bagri, A., et al. The chemokine SDF1 regulates migration of dentate granule cells. Development. 129 (18), 4249-4260 (2002).
- Bardy, C., et al. Neuronal medium that supports basic synaptic functions and activity of human neurons in vitro. Proceedings of the National Academy of Sciences. 112 (20), 2725-2734 (2015).
- Bauwens, C. L., et al. Control of Human Embryonic Stem Cell Colony and Aggregate Size Heterogeneity Influences Differentiation Trajectories. Stem Cells. 26 (9), 2300-2310 (2008).
- Bratt-Leal, A. M., Carpenedo, R. L., McDevitt, T. C. Engineering the embryoid body microenvironment to direct embryonic stem cell differentiation. Biotechnology Progress. 25 (1), 43-51 (2009).
- Miranda, C. C., et al. Spatial and temporal control of cell aggregation efficiently directs human pluripotent stem cells towards neural commitment. Biotechnology Journal. 10 (10), 1612-1624 (2015).
- Miranda, C. C., Fernandes, T. G., Diogo, M. M., Cabral, J. M. S. Scaling up a chemically-defined aggregate-based suspension culture system for neural commitment of human pluripotent stem cells. Biotechnology Journal. 11 (12), 1628-1638 (2016).
- Bardy, J., et al. Microcarrier Suspension Cultures for High-Density Expansion and Differentiation of Human Pluripotent Stem Cells to Neural Progenitor Cells. Tissue Engineering Part C Methods. 19 (2), 166-180 (2013).
- Rigamonti, A., et al. Large-Scale Production of Mature Neurons from Human Pluripotent Stem Cells in a Three-Dimensional Suspension Culture System. Stem Cell Reports. 6 (6), 993-1008 (2016).
- Arora, N., et al. A process engineering approach to increase organoid yield. Development. 144 (6), 1128-1136 (2017).
- Gimeno, L., Martinez, S. Expression of chick Fgf19 and mouse Fgf15 orthologs is regulated in the developing brain by Fgf8 and Shh. Developmental Dynamics. 236 (8), 2285-2297 (2007).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
