Deze review heeft als doel de mechanistische rol van transient receptorpotentiaal ankyrine 1 (TRPA1) in de pathogenese van CIPN te onderzoeken en het potentieel ervan als therapeutisch doelwit voor immunomodulerende en ontstekingsremmende interventies te evalueren.
Reviewartikel
TRPA1 bij chemotherapie-geïnduceerde perifere neuropathie: Een veelbelovend doelwit voor immunomodulatie en ontstekingsremmende therapie
In dit artikel
Samenvatting
Samenvatting
Chemotherapie-geïnduceerde perifere neuropathie (CIPN) is een veelvoorkomende en ernstige klinische aandoening die ontstaat wanneer een chemotherapeutisch middel het perifere zenuwstelsel beschadigt en meestal wordt gekenmerkt door abnormale pijn in de distale ledematen en verhoogde gevoeligheid voor warme en koude prikkels. Er zijn echter weinig klinische behandelingen voor CIPN beschikbaar, dus het is cruciaal om effectieve behandelmethoden te identificeren. Transient receptorpotentiaal ankyrine 1 (TRPA1), een injuryreceptor, kan worden geactiveerd door oxidatieve stress, ontstekingsmediatoren en hypotermische aandoeningen tijdens de pathogenese en progressie van CIPN. TRPA1 moduleert het downstream ontstekingspad en bevordert de afgifte van ontstekingsfactoren en neuropeptiden, wat resulteert in abnormale immuunregulatie, die op zijn beurt leidt tot een neurogene ontstekingsreactie en pijnsignalering. In deze studie wordt de rol van TRPA1 in de pathogenese van CIPN onderzocht, wordt de mogelijkheid geverifieerd om TRPA1 te richten op de behandeling van CIPN door neuro-ontsteking te remmen, en worden de mogelijkheden voor het gebruik van TRPA1-antagonisten en natuurlijke kruiden voor de klinische behandeling van CIPN onderzocht.
Inleiding
Kanker blijft een van de grootste wereldwijde volksgezondheidsuitdagingen1. Hoewel chemotherapie een cruciale rol speelt bij het verbeteren van de overleving van kanker, gaat deze vaak gepaard met ernstige bijwerkingen, waarvan CIPN een van de meest voorkomende en complexe complicaties is. CIPN wordt klinisch gekenmerkt door symmetrische pijn, paresthesie en abnormale gevoeligheid voor kou of warmte in de distale ledematen2, en sommige patiënten kunnen ook een verminderde fijnmotorische coördinatieervaren 3. De gerapporteerde incidentie van CIPN varieert sterk, variërend van ongeveer 50% tot 90%, en ongeveer 30%-40% van de gevallen kan overgaan in chronische neurologische complicaties2, wat de kwaliteit van leven en therapietrouw van patiënten aanzienlijk vermindert. Het risico op het ontwikkelen van CIPN wordt beïnvloed door meerdere factoren, waaronder de toedieningswijze (enkele dosis, cumulatieve dosis of behandelingsduur), gelijktijdige medicatie, leeftijd, bloedarmoede, hogere body mass index (BMI) en bestaande neuropathie 2,4,5. Antineoplastische middelen die naar verluidt verschillende graden van neurotoxiciteit induceren, omvatten platina-gebaseerde verbindingen, taxanen, vinca-alkaloïden, proteasoomremmers (zoals bortezomib), epigenetische of immunomodulerende geneesmiddelen (zoals thalidomide en lenalidomide) en microtubuli-remmers (zoals eribuline)6.
Momenteel blijven farmacologische opties voor het beheer van CIPN beperkt. De American Society of Clinical Oncology (ASCO) beveelt duloxetine aan als de enige farmacologische interventie met evidence-based ondersteuning voor de behandeling van CIP. Klinische studies hebben aangetoond dat duloxetine effectief is in het verlichten van CIPN-gerelateerde pijn, waarbij het therapeutische voordeel het meest uitgesproken is bij neuropathie die wordt geïnduceerd door platina-gebaseerde chemotherapeutische middelen, met name oxaliplatine (OXA), terwijl de effectiviteit bij CIPN veroorzaakt door andere middelen, zoals taxanen en vinca-alkaloïden, variabeler lijkt te zijn tussen studies7. Ondanks de aangetoonde pijnstillende effectiviteit is het algehele klinische voordeel van duloxetine matig, omdat het voornamelijk symptomatische verlichting biedt in plaats van CIPN te voorkomen of onderliggende pathologische veranderingen om te draaien. Bovendien wordt duloxetine over het algemeen goed verdragen, maar behandeling kan gepaard gaan met milde tot matige bijwerkingen, waaronder vermoeidheid, slapeloosheid en misselijkheid, wat bij sommige patiënten de langdurige therapietrouw kan beperken. Andere veelgebruikte middelen, zoals gabapentine en pregabaline, worden gebruikt voor symptomatische behandeling, maar hebben inconsistente of onbevredigende therapeutische uitkomsten laten zien in CIPN 8,9. Daarom blijft er een dringende behoefte aan het ontwikkelen van effectievere preventieve strategieën en het identificeren van nieuwe therapeutische doelen voor CIPN.
In de afgelopen jaren, met het verdiepen begrip van de pathogenese van CIPN, hebben meerdere mechanismen zoals de ontstekingsrespons, oxidatieve stress en veranderingen in neurale plasticiteit geleidelijk toenemende aandacht gekregen 10,11,12. Onder deze factoren worden oxidatieve stress en neuro-inflammatie beschouwd als centrale bijdragers aan het initieren en de progressie van neuronale schade bij CIPN. Belangrijk is dat het TRPA1-kanaal, een redoxgevoelig ionenkanaal dat overvloedig tot expressie komt in sensorische neuronen, is uitgegroeid tot een belangrijke moleculaire mediator die oxidatieve stress en inflammatoire signalering koppelt aan neuronale hyperexcitabiliteit en pijnovergevoeligheid13,14. In tegenstelling tot TRPV1, dat voornamelijk giftige warmte detecteert, en TRPM8, dat koude prikkels detecteert, wordt TRPA1 gekenmerkt door zijn hoge gevoeligheid voor verschillende oxidatieve en elektrofiele metabolieten zoals 4-hydroxynonenal (4-HNE)15. De activatie van TRPA1 omvat doorgaans covalente modificatie van kritieke cysteinresiduen16, een uniek mechanisme dat TRPA1 positioneert als een cruciale moleculaire brug die chemotherapie-geïnduceerde oxidatieve en lipideperoxidatiestress verbindt met de ontwikkeling van pijnovergevoeligheid. Bovendien hebben verschillende dierstudies aangetoond dat TRPA1 functioneel betrokken is bij door chemotherapie veroorzaakte neuropathische pijn. In het bijzonder verlicht genetische ablatie of farmacologische blokkade van TRPA1 in OXA-geïnduceerde neuropathiemodellen aanzienlijk kou en mechanische allodynie, wat wijst op een cruciale bijdrage van TRPA1 aan de pathogenese van CIPN 17,18.
Specifiek is TRPA1 een redoxgevoelig ionenkanaal dat sterk tot expressie komt in perifere nociceptieve neuronen. Chemotherapeutische middelen veroorzaken vaak mitochondriale disfunctie, oxidatieve stress en lipideveroxidatie in neuronen, wat leidt tot overmatige ophoping van reactieve zuurstofsoorten (ROS) en lipideperoxidatieproducten zoals 4-HNE. Deze reactieve moleculen kunnen covalent belangrijke cysteenresiduen van TRPA1 modificeren of de activatiedrempel ervan veranderen, wat resulteert in kanaalopening, Ca²⁺-instroom en neuronale depolarisatie, waardoor de pijnoverdracht en ontstekingssignalering 19,20,21 worden versterkt. Eerdere studies hebben verder aangetoond dat TRPA1 gevoelig is voor kou en geactiveerd kan worden door endogene ontstekingsmediatoren, wat bijdraagt aan de ontwikkeling van door kou veroorzaakte pijnovergevoeligheid22. Daarnaast is aangetoond dat TRPA1 werkt als een mechanosensitief ionenkanaal waarvan de activiteit wordt gemoduleerd door de cellulaire redoxtoestand, en deelneemt aan abnormale mechanische pijn en overgevoeligheid22,23. Naast neuronen wordt TRPA1 ook tot expressie gebracht in meerdere immuunceltypen, waarbij de activatie de afgifte van cytokines en inflammatoire cascades moduleert, wat de perifere neuro-ontstekingverder versterkt. Gezamenlijk vormen de kousensitiviteit, mechanosensitiviteit en redoxresponsiviteit van TRPA1 een duidelijke mechanistische link tussen door chemotherapie veroorzaakte oxidatieve stress en de daaruit voortvloeiende pathologische pijnprocessen, en dragen daarmee bij aan het initieren en onderhouden van CIPN. Daarom kan het richten op TRPA1 om de vicieuze cirkel van oxidatieve stress en neuro-inflammatoire toxiciteit te doorbreken een veelbelovende therapeutische strategie zijn voor de behandeling van door chemotherapie veroorzaakte perifere neuropathische pijn. In bestaande studies zijn interventiestrategieën gericht op TRPA1 gevalideerd over meerdere modelsystemen. In vitro worden DRG-neuronculturen gecombineerd met calciumbeeldvorming vaak gebruikt om de impact van TRPA1-activatie op door chemotherapie geïnduceerde neuronale excitabiliteit25 te verifiëren. In vivo wordt CIPN typisch geïnduceerd bij knaagdieren met behulp van OXA, paclitaxel of bortezomib, gevolgd door farmacologische of genetische remming van TRPA1 en daaropvolgende gedragsbeoordelingen zoals kou- en mechanische overgevoeligheid 17,26,27. Op therapeutisch niveau hebben TRPA1-antagonisten effectiviteit aangetoond bij het verlichten van neuropathische pijn in preklinische modellen28,29. Gezamenlijk vormen deze bevindingen een solide experimentele basis voor translationeel onderzoek dat TRPA1 als therapeutische strategie voor CIPN richt.
Huidig onderzoek heeft al een mogelijke verbinding tussen TRPA1 en CIPN aan het licht gebracht. Deze studies richten zich echter vooral op de directe impact van TRPA1 op de overdracht van pijnsignalen en de lokale rol ervan in de ontstekingsrespons. Toch ontbreekt er nog steeds aan systematisch onderzoek en diepgaande verkenning van de mechanismen waarmee TRPA1 immuunresponsen moduleert om het algehele pathologische proces van CIPN te beïnvloeden. Daarom bespreekt dit artikel de mogelijke mechanismen van CIPN, met een focus op het verkennen van de rol van TRPA1 in de pathogenese van CIPN. De huidige stand van zaken naar TRPA1-antagonisten en natuurlijke kruiden wordt ook samengevat om de haalbaarheid te valideren van het remmen van TRPA1 om ontstekingsremmende immuuneffecten te veroorzaken voor de behandeling van CIPN. De innovatie van dit artikel ligt in het systematisch bestuderen van de rol van TRPA1 in de pathogenese van CIPN vanuit een immuunregulair perspectief, waarbij eerdere onderzoeksbeperkingen werden overwonnen die zich uitsluitend richtten op de effecten ervan in zenuwcellen of lokale ontstekingen. Daarnaast biedt het nieuwe doelstellingen en theoretische ondersteuning voor de ontwikkeling van geneesmiddelen voor de behandeling van CIPN, met grote wetenschappelijke betekenis en klinische toepassingswaarde.
Review en perspectief
1. Potentiële mechanismen voor CIPN
Het pathomechanisme van CIPN is complex en geassocieerd met door chemotherapeutische medicatie veroorzaakte mitochondriale disfunctie, oxidatieve stress, immuunsysteemafwijkingen, ionenkanaaldysregulatie, schade aan dorsale wortelganglion (DRG) neuronen en verstoring van het neuronale cytoskelet 2,30,31,32,33,34,35,36,37, 38,39,40,41,42. Tabel 1 geeft een overzicht van de specifieke pathogene mechanismen die betrokken zijn bij CIPN.
- Mitochondriale disfunctie en oxidatieve stress
Chemotherapeutische middelen induceren mitochondriale morfologische veranderingen, bio-energetische verstoringen en overmatige productie van ROS, wat leidt tot mitochondriale structurele schade, functionele stoornissen en oxidatieve stress12,43. Deze gebeurtenissen activeren immuuncellen, verhogen het pro-inflammatoire cytokineniveau en activeren ontstekingssignaleringsroutes, wat uiteindelijk bijdraagt aan de ontwikkeling van CIPN. Specifiek vormen platina-gebaseerde chemotherapeutische middelen platina-DNA-adducten die zich ophopen in de DRG, waar ze binden aan nucleair DNA (nDNA) en mitochondriaal DNA (mtDNA). Dit bevordert kruisverbinding, verandert de structuur en synthese van nucleair DNA, induceert DNA-/mitochondriale schade, verhoogt de ROS-productie, activeert kanalen gerelateerd aan de letselreceptoren en induceert neuronale apoptose. Er is ook bewijs dat OXA neuropathische pijn veroorzaakt door astrocyten te activeren en pro-inflammatoire cytokines in de mitogeen-geactiveerde eiwitkinas (MAPK)-route op te reguleren.
Naast platina-gebaseerde verbindingen kunnen andere chemotherapeutische middelen de mitochondriale integriteit aantasten via diverse mechanismen. Paclitaxel interfereert zowel axonaal als mitochondriaal transport, wat leidt tot het openen van de mitochondriale permeabiliteitsovergangsporie (mPTP). Dit resulteert in verlies van mitochondriale membraanpotentiaal, overmatige ROS-generatie, ATP-uitputting, calciumefflux en mitochondriale zwelling. Bortezomib daarentegen remt de activiteit van proteasoom en verstoort de homeostase van cellulaire eiwitten, waardoor mitochondriale structurele schade en functionele stoornissen ontstaan. Deze veranderingen uiten zich in mitochondriale zwelling en vacuolisatie, calciumontregeling, onderdrukking van de ademhalingsketen, verminderde ATP-productie en ophoping van ROS. Bovendien remt vincristine (VCR) de polymerisatie van microtubuli, wat het mitochondriale transport langs axonen aantast en vervolgens leidt tot een verminderd membraanpotentiaal, verstoorde calciumhomeostase en abnormale neuronale prikkelbaarheid. Gezamenlijk benadrukken deze middelen de centrale rol van mitochondriale disfunctie in de neurotoxische effecten van chemotherapeutische middelen 41,44,45,46,47.
Evenzo dient mitochondriale disfunctie als centrale regelaar van pro-inflammatoire signalering, terwijl ontsteking op zijn beurt mitochondriale schade verergert, waardoor een vicieuze cirkel van neurotoxiciteitontstaat 30,31. Opmerkelijk is dat de ROS die tijdens dit proces wordt gegenereerd direct het redoxgevoelige ionenkanaal TRPA1 activeert, wat calciuminflux, neuronale hyperexcitabiliteit en karakteristieke CIPN-geassocieerde symptomen zoals kou en mechanische allodynie veroorzaakt. Oxidatieve stress fungeert dus als een cruciaal knooppunt dat mitochondriale schade, TRPA1-activatie en de pathogenese van CIPN verbindt. Figuur 1 illustreert de mechanismen waarmee mitochondriale disfunctie en oxidatieve stress bijdragen aan de ontwikkeling van CIPN. - Afwijkingen in het immuunsysteem
- Neuro-immuuninteracties
Neuro-immuuninteracties spelen een cruciale rol in de ontwikkeling en persistentie van CIPN. Steeds meer bewijs suggereert dat de communicatie tussen het zenuw- en immuunsysteem aanzienlijk bijdraagt aan de pathogenese ervan. Chemotherapeutische middelen veroorzaken cellulaire stress en axonale schade, wat leidt tot de afgifte van schade-geassocieerde moleculaire patronen (DAMPs) die Toll-like receptor 4 (TLR4) signaaloverdracht activeren op macrofagen en gliacellen. Deze activatie bevordert de polarisatie van M1-macrofagen en de secretie van chemokines zoals CCL2 en CXCL10, die CD4+ en CD8+ T-lymfocyten en B-cellen in de DRG rekruteren, terwijl het aantal ontstekingsremmende T-cellenmet 48,49,50,51 wordt verminderd. Hoewel neutrofielen zeer gevoelig zijn voor de cytotoxische effecten van chemotherapie, wat leidt tot systemische neutropenie, hebben verschillende studies verhoogde activatie en infiltratie van neutrofilen in het perifere zenuwstelsel en DRG tijdens door chemotherapie veroorzaakte neuropathie32 gerapporteerd. Mastcellen (MC's) reguleren de pro-inflammatoire reacties verder door immuuncellen te rekruteren en verschillende ontstekingscytokines vrij te geven. Daarnaast kunnen pro-inflammatoire cytokines de activiteit van natuurlijke killer (NK) cellen onderdrukken, waardoor neuro-ontsteking en oxidatieve stress worden verergerd en zo de progressie van CIPN52 bevordert.
Chemotherapeutische middelen kunnen ook de expressie veranderen van genen die geassocieerd zijn met immuun- en neuronale functies in sensorische neuronen. Zo reguleert VCR de expressie van activerende transcriptiefactor 3 (Atf3) en neurotensine (Nts) opwaarts, waardoor de afgifte van chemokine wordt gemoduleerd en de rekrutering van immuuncellen naar de DRG bevordert, wat op zijn beurt de neuro-inflammatoire respons beïnvloedt. OXA reguleert de expressie van prostaglandine-H2 D-isomerase (Ptgds) en het kleine nucleolaire RNA-gastheergen 1 (Snhg1), die betrokken zijn bij de synthese van inflammatoire mediatoren en de modulatie van neuronale plasticiteit, waardoor de neuronale prikkelbaarheid en pijnsignaaloverdracht worden beïnvloed. Daarentegen verandert cisplatine (CDDP) de expressie van lipocalin-2 (Lcn2) en zinkvingerhomeobox 2 (Zfhx2), waardoor de neuronale metabole homeostase en transcriptieregulatie worden verstoord, en daardoor neuro-ontsteking en neuronale disfunctiebevorderd 53. Gezamenlijk onthult de ontregeling van deze genexpressieprofielen onder chemotherapeutische stress de complexe wisselwerking tussen neuronale schade en immuunactivatie tijdens de pathogenese van CIPN.
Bovendien wordt TRPA1 niet alleen tot expressie gebracht in sensorische neuronen, maar ook in immuuncellen zoals macrofagen en MC's, waar het de afgifte van proinflammatoire cytokines mediteert. Deze duale neuronale en immuunexpressie van TRPA1 kan dienen als een belangrijke moleculaire schakel die de neuro-immuun crosstalk en ontsteking achter CIPN aandrijft. - Verergering van neuro-ontsteking
Chemotherapeutische middelen moduleren de activatie en de secretie van immuunmediatoren van satellietgliacellen (SGC's) in de DRG, microglia en astrocyten in het ruggenmerg, en Schwann-cellen in de axonen54. Activatie van immuuncellen verhoogt de niveaus van proinflammatoire cytokines, zoals tumornecrose factor-alpha (TNF-α), interleukine-1 beta (IL-1β), interleukine-6 (IL-6), interleukine-8 (IL-8), interleukine-20 (IL-20), die neuro-ontsteking en neuronale sensitisatie bevorderen; omgekeerd wordt de expressie van ontstekingsremmende cytokines zoals interleukine-10 (IL-10) en interleukine-4 (IL-4) onderdrukt, waardoor de ontstekingsresolutie wordt belemmerd. Parallel dragen chemokines zoals CCL2, CXCL1, CXCL12, CX3CL1 en CCL3 bij aan de rekrutering van immuuncellen en glia-neuronale interacties. Deze veranderingen activeren gezamenlijk belangrijke ontstekingssignaleringsroutes, zoals MAPK en de nucleaire factor kappa-light-chain-enhancer van geactiveerde B-cellen (NF-κB), die de productie van cytokines en neuronale hyperexcitabiliteit verder verhogen. Figuur 2 illustreert de mechanismen waarmee dysregulatie van het immuunsysteem CIPN induceert.
Belangrijk is dat recente studies hebben aangetoond dat TRPA1 fungeert als een cruciale downstream effector en versterker van deze ontstekingscascades. Pro-inflammatoire cytokines en oxidatieve mediatoren kunnen TRPA1-kanalen op sensorische neuronen sensibiliseren of direct activeren, waardoor neuro-ontsteking wordt gekoppeld aan verhoogde neuronale prikkelbaarheid en pijnovergevoeligheid in CIPN60,61.
- Neuro-immuuninteracties
- Ionenkanaaldysregulatie
- Kaliumkanalen
Chemotherapeutische middelen veroorzaken een neuro-inflammatoire respons, wat leidt tot de abnormale expressie van Kir4.1-kanalen, wat de activatie van SGC's bevordert, de upregulatie van gliale fibrillaire zuurproteïne (GFAP) en de afgifte van pro-inflammatoire cytokines (bijv. TNF-α en IL-6). Dit verergert de prikkelbaarheid van DRG-neuronen en induceert CIPN33. - TRP-kanalen
TRP-kanalen zijn betrokken bij de ontstekingsrespons en neuropathische pijn die geassocieerd wordt met CIPN en kunnen worden geactiveerd door door chemotherapie veroorzaakte oxidatieve stress. Onder hen medailt het TRPA1-kanaal, dat voornamelijk gelokaliseerd is in sensorische neuronen, neurogene ontsteking door neuropeptiden vrij te geven zoals calcitonine gen-related peptide (CGRP) en stof P (SP), die de rekrutering van immuuncellen op de beschadigingsplaatsen bevorderen. TRPA1 wordt ook tot expressie gebracht in gliale en immuuncellen, waar activatie de afgifte van pro-inflammatoire cytokines en chemokines stimuleert, wat de rekrutering van immuuncellen verder versterkt en de ontstekingsrespons versterkt. Gezamenlijk dient TRPA1 als een cruciale brug tussen het zenuw- en immuunsysteem, wat bijdraagt aan verhoogde ontstekingen en neuronale overgevoeligheid bij CIPN. Daarom kan TRPA1-antagonisme pijn verlichten door dubbele neuro-immuunmodulatie door de afgifte van CGRP en SP te remmen, neurogene ontsteking en de recruitatie van immuuncellen te verminderen, en het proinflammatoire cytokineniveau62 te verlagen.
Singh et al. rapporteerden dat de behandeling met OXA de co-expressie van transiënt receptorpotentiaal vanilloïde 1 (TRPV1) en transiënt receptorpotentiaal M8 (TRPM8) verhoogde met TRPA1 in de DRG's van ratten, wat leidde tot versterkt neuropathisch pijngedrag. Opmerkelijk is dat TRPA1 en TRPV1 functionele crosstalk delen in door chemotherapie veroorzaakte pijnsignalering; echter, huidige klinische toepassingen richten zich voornamelijk op de TRPV1-agoniste capsaïcine, die neuropathische pijn verlicht door TRPV1-expressieve nociceptoren34 te desensitiseren. Dit biedt inzicht in de toekomstige ontwikkeling van analgetische strategieën gericht op TRPA1. Gezamenlijk fungeert TRPA1 als een cruciale integrator van oxidatieve stress, immuunactivatie en pijnsignalering, waardoor het een veelbelovend doelwit is voor zowel pijnstillende als ontstekingsremmende therapieën in CIPN.
- Kaliumkanalen
- DRG neuronale schade
- Directe neuronale schade
De DRG is de primaire plaats die door CIPN wordt getroffen, maar de mechanismen van neuronale schade verschillen tussen chemotherapeutische middelen. Figuur 3 toont de verschillende routes die betrokken zijn bij DRG-neuronale schade die door verschillende geneesmiddelen worden veroorzaakt. Zo bevordert PTX de infiltratie van macrofagen in de DRG, wat vervolgens het aantal intraepidermale zenuwvezels (IENFs) vermindert en de progressie van CIPN35 versnelt. Platina-gebaseerde agentia hopen zich op in DRG-neuronen, wat mitochondriale disfunctie, overmatige ROS-generatie en neuronale apoptose veroorzaakt. Thalidomide kan direct DRG-neuronale schade veroorzaken. Bovendien veranderen verschillende chemotherapeutische middelen de expressie en functie van natrium-, kalium- en calciumionkanalen, wat leidt tot neuronale hyperexcitabiliteit36,37. Verstoring van microtubuli-structuren in de DRG verstoort het axonale transport verder en triggert Walleriaanse degeneratie, wat uiteindelijk leidt tot verlies van zenuwvezels en verstoorde neurale transmissie38. - Indirecte immuungemedieerde schade
Naast directe neuronale toxiciteit kunnen chemotherapeutische middelen indirect DRG-neuronen beschadigen door de activatie van aangeboren immuunsignalering. Cellulaire schade veroorzaakt door deze middelen geeft DAMPs vrij, die op hun beurt patroonherkenningsreceptoren (PRR's) activeren, zoals TLR4 en de receptor voor geavanceerde glycatie-eindproducten (RAGE). Activatie van deze receptoren veroorzaakt neuro-inflammatoire cascades, versterkt de neuronale prikkelbaarheid en verergert neuropathische pijn39. Gezamenlijk suggereren deze bevindingen dat chemotherapeutische middelen DRG-schade induceren via zowel directe cytotoxische mechanismen als indirecte immuungemedieerde routes, en zo bijdragen aan het ontstaan en de progressie van CIPN.
- Directe neuronale schade
- Verstoring van het neuronale cytoskelet
Eerdere studies hebben aangetoond dat microtubuli-depolymerisatie direct de structurele integriteit van neuronen verzwakt en hun axonale verlengingscapaciteit aantast. De demontage van het cytoskelet veroorzaakt onregelmatigheden op het neuronale oppervlak, en deze mechanische veranderingen kunnen dienen als fysieke kenmerken van CIPN40. Een andere studie van Chine et al. was de eerste die aantoonde dat Hsp27 CIPN kan voorkomen door de axonale structuur te beschermen. In tegenstelling tot traditionele ontstekingsremmende mechanismen oefent Hsp27 neuroprotectieve effecten uit door apoptotische routes te reguleren en de cytoskeletstabiliteitte behouden 46.
Vinca-alkaloïden (zoals vincristine, videorecorder) binden specifiek aan de uiteinden van de β-tubuline, blokkeren de vorming van de spil en het axonale transport, wat leidt tot microtubuli-depolymerisatie en defecten in neurietuitgroei40. Daarentegen stabiliseert paclitaxel microtubuli en voorkomt het hun depolymerisatie, waardoor elektrische signaaloverdracht en mitochondriale transport binnen axonen worden verstoord, wat demyelinisatie van perifere zenuwvezels41 induceert. Bortezomib induceert via een niet-proteasomale route overmatige polymerisatie van microtubuli, remt neurietextensie en triggert axonale degeneratie42.
Deze medicijnen leiden samen tot axonale transportstoornissen, neuronale apoptose en verlies van neurale geleiding, waarmee ze de kernpathologische basis van CIPN vormen. Daarnaast voorkomt activatie van de RhoA/ROCK/LIMK/cofilin-signaalweg de remodellering van actinefilamenten, waardoor axonale regeneratie63 verder wordt geremd. Cytoskeletverstoring werkt ook samen met mitochondriale transportdefecten en calpainactivatie, waardoor een vicieuze "structuur-energie-apoptose" cyclus ontstaat die de progressie van CIPN64 versnelt.
2. Mechanismen van CIPN geassocieerd met TRPA1
TRPA1 is een niet-selectief kationkanaal dat doorgaans bestaat als een homotetrameer in het celmembraan. Het bevat zes transmembraansegmenten (S1-S6) die kenmerkend zijn voor TRP-kanalen. Hiervan vormen S1-S4 het spanningssensorachtige domein (VSLD), terwijl S5 en S6 de porie vormen waar ionen doorheen passeren. Deze gebieden zijn essentieel voor de activatie van het kanaal en zijn rol bij het waarnemen van pijnlijke, thermische en chemische prikkels65. Het lange N-terminale gebied van TRPA1 bevat meerdere ankyrine repeat-domeinen (ARD's), die interacties met andere eiwitten bemiddelen en bijdragen aan kanaalregulatie. Dit gebied dient ook als een belangrijke plek voor modulatie door kinasen die betrokken zijn bij pijnsignalering66,67. Aan het C-terminus verbindt het TRP-achtige domein zich met het transmembraangebied en speelt het een centrale rol bij kanaalgating. De beweging van dit domein, samen met herschikkingen van S5 en S6, ligt ten grondslag aan kanaalopening en Ca2+-instroom, die downstream signaalroutes activeert die betrokken zijn bij ontsteking en pijn68,69. Over het geheel genomen zijn de ARD's, transmembrane helixen (S1-S6) en het TRP-achtige domein de belangrijkste structurele kenmerken die de activatie van TRPA1 bepalen en de rol ervan in pijn en ontstekingssignalering. Figuur 4 illustreert de belangrijkste structurele domeinen van TRPA1 die relevant zijn voor activatie door chemotherapeutische middelen, terwijl Tabel 2 de mechanismen van CIPN samenvat die geassocieerd zijn met TRPA1 61,62,70,71,72,73,74,75,76,77,78,79,80,81,82,83.
- Oxidatieve stress-gemedieerde activatie van TRPA1 in CIPN
- Oxidatieve stress is een belangrijke factor van zowel de antitumoreffectiviteit als de neurotoxiciteit van chemotherapeutische geneesmiddelen84. TRPA1 functioneert als een redox- en elektrofielgevoelig ionenkanaal dat geactiveerd wordt onder omstandigheden van verhoogde oxidatieve stress tijdens chemotherapie. Geoxideerde fosfolipiden (OxPAPC's) en andere reactieve zuurstofsoorten (ROS)-afgeleide elektrofielen modificeren covalent cysteïneresiduen in het N-terminale domein van TRPA1, waardoor het kanaal wordt geactiveerd en calciuminstroom wordt bevorderd. Deze activatie leidt tot de afgifte van neuropeptiden en ontstekingsmediatoren zoals CGRP en SP, die abnormale pijnoverdracht en neurogene ontsteking in CIPN pathogenese61,70 mediëren. Ondertussen leidt perifere ontsteking veroorzaakt door chemotherapeutische middelen tot overmatige generatie en ophoping van ROS in sensorische ganglia, wat TRPA1 verder activeert en upreguleert, waardoor een ROS-TRPA1 positieve feedbacklus ontstaat die ontstekings- en mechanische overgevoeligheid85 versterkt.
CDDP-geïnduceerde CIPN is ook afhankelijk van dit mechanisme, omdat CDDP de ROS-productie in orale weefsels bevordert, wat TRPA1 activeert en leidt tot aanhoudende orofaciale pijn86. Op vergelijkbare wijze moduleert OXA TRPA1-activiteit via meerdere mechanismen. Enerzijds activeert OXA TRPA1 direct via een glutathiongevoelig mechanisme, wat leidt tot cytoplasmatische verzuring in DRG-neuronen71,87. Aan de andere kant remt OXA prolylhydroxylase (PHD), waardoor hydroxylatie van de prolineresiduen in het N-terminale gebied van TRPA1 wordt voorkomen, wat de gevoeligheid van het kanaal voor ROS verhoogt en de responsiviteit op koude prikkels71 aanzienlijk verhoogt. Daarnaast activeert OXA de p38 MAPK-signaalroute, wat TRPA1-gemedieerde koude hypersensitiviteit88 verder bevordert.
Dierstudies hebben sterk bewijs geleverd ter ondersteuning van deze mechanismen. Bij met OXA behandelde wildtypemuizen werden uitgesproken mechanische allodynie en kou-overgevoeligheid waargenomen, terwijl deze responsen significant afgezwakt waren bij TRPA1 knockoutmuizen89. Consistente bevindingen werden ook verkregen in een zebravislarvalmodel van CIPN, waarin TRPA1-activatie de ROS-productie verbeterde door oxidatieve stress en pijnsignaaltransductie te bevorderen, waardoor de pijnrespons90 in stand werd gehouden. Gezamenlijk geven deze bevindingen aan dat TRPA1 functioneert als een cruciaal knooppunt dat ROS-detectie en pijnversterking verbindt, en zo een centraal pad vormt waardoor oxidatieve stress neuropathische pijn bij CIPN mediërt.
- Oxidatieve stress is een belangrijke factor van zowel de antitumoreffectiviteit als de neurotoxiciteit van chemotherapeutische geneesmiddelen84. TRPA1 functioneert als een redox- en elektrofielgevoelig ionenkanaal dat geactiveerd wordt onder omstandigheden van verhoogde oxidatieve stress tijdens chemotherapie. Geoxideerde fosfolipiden (OxPAPC's) en andere reactieve zuurstofsoorten (ROS)-afgeleide elektrofielen modificeren covalent cysteïneresiduen in het N-terminale domein van TRPA1, waardoor het kanaal wordt geactiveerd en calciuminstroom wordt bevorderd. Deze activatie leidt tot de afgifte van neuropeptiden en ontstekingsmediatoren zoals CGRP en SP, die abnormale pijnoverdracht en neurogene ontsteking in CIPN pathogenese61,70 mediëren. Ondertussen leidt perifere ontsteking veroorzaakt door chemotherapeutische middelen tot overmatige generatie en ophoping van ROS in sensorische ganglia, wat TRPA1 verder activeert en upreguleert, waardoor een ROS-TRPA1 positieve feedbacklus ontstaat die ontstekings- en mechanische overgevoeligheid85 versterkt.
- De rol van TRPA1 bij immuunregulatie en ontstekingspijn
TRPA1 is een redoxgevoelig, niet-selectief kationenkanaal dat tot expressie komt in zowel het perifere sensorische zenuwstelsel als in verschillende immuunceltypen. Het kan worden geactiveerd door chemotherapeutische door medicijnen geïnduceerde oxidatieve, nitratieve en aldehyde stress, evenals door ontstekingsmediatoren en elektrochemische stimuli, en speelt zo een cruciale rol in ontstekingsreacties en pijnsensitisatie tijdens CIPN24,91,92.- TRPA1 reguleert immuuncel-gemedieerde neuro-ontsteking
In het perifere zenuwstelsel wordt TRPA1 het best gekarakteriseerd in DRG-sensorische neuronen, waar het dient als een belangrijke mediator van nociceptie. Tijdens chemotherapie kunnen verhoogde niveaus van ROS, reactieve stikstofsoorten (RNS) en aldehydemetabolieten, voornamelijk afkomstig van beschadigde neuronen en omliggende Schwann-cellen, direct neuronale TRPA1 activeren, wat leidt tot verhoogde neuronale prikkelbaarheid en pijnovergevoeligheid93. Ondertussen is aangetoond dat TLR4-signalering in sensorische neuronen de TRPA1-expressie in DRG-neuronen kan verhogen, waardoor de pijnovergevoeligheid94 toeneemt.
Naast neuronen expresseren Schwann-cellen ook TRPA1, dat geactiveerd kan worden door oxidatieve stress. Geactiveerde Schwann-cellen versterken ROS-signalen en geven ontstekingsmediatoren vrij, waardoor een "Schwann cel-neuron-TRPA1" feedbacklus ontstaat die neuro-ontsteking in stand houdt en bijdraagt aan de ontwikkeling van CIPN72,73. Dierstudies hebben aangetoond dat uitputting van ischiaszenuw-residente macrofagen de kankergerelateerde pijn veroorzaakt door Schwann-cel TRPA1-activatie en oxidatieve stress aanzienlijk vermindert, wat de wisselwerking tussen Schwann-cellen en myeloïde cellen73 benadrukt.
Naast sensorische neuronen wordt TRPA1 functioneel tot expressie gebracht in verschillende populaties van immuuncellen, waaronder macrofagen, T-cellen, NK-cellen en MC's 24,74,95. ROS, RNS en metabolieten die tijdens chemotherapie worden gegenereerd, kunnen TRPA1 in deze cellen activeren, wat leidt tot diverse immuunresponsen afhankelijk van celtype91. Bij macrofagen onderdrukt TRPA1 pro-inflammatoire activatie, bevordert een ontstekingsremmend fenotype en beperkt de infiltratie van macrofagen, waardoor ontstekingsremmende en weefselbeschermende effecten worden uitgeoefend14,96. In lymfocyten onderdrukt TRPA1-activatie de activatie van T-cellen en de effectorfuncties, waardoor T-cel-gemedieerde immuunresponsennegatief worden gereguleerd, terwijl TRPA1-gemedieerde Ca2+-instroom de cytotoxiciteit van NK-cellen kan versterken en neuro-inflammatoire reacties na zenuwbeschadigingmoduleert 52,74. In mestcellen is TRPA1-activatie in verband gebracht met stress-geïnduceerde degranulatie en pro-inflammatoire signalering, wat bijdraagt aan de versterking van allergische en neurogene ontsteking24,75.
Samen suggereren deze observaties dat TRPA1 fungeert als een signaalknooppunt dat neuronen, Schwann-cellen en immuuncellen verbindt, waarbij verhoogde TRPA1-activatie in elk celtype bijdraagt aan het initiëren en onderhouden van CIPN. Figuur 5 toont de voorgestelde mechanismen van TRPA1-gemedieerde neuro-immuun crosstalk en pijnsignalering in CIPN. - TRPA1 bij inflammatoire pijn en CIPN-gerelateerde nociceptie
In het sensorische zenuwstelsel is TRPA1 voornamelijk gelokaliseerd in primaire sensorische neuronen van de DRG, trigeminusganglia (TG) en vagale ganglia (VG). Oxidatieve stressproducten, ontstekingsmediatoren en eiwitkinase-signalering (PKA/PKC), geïnduceerd door chemotherapeutische middelen, versterken de TRPA1-fosforylering en kanaalactiviteit26. Kanaalactivatie verhoogt de intracellulaire Ca2+- instroom, wat de afgifte van neuropeptiden zoals SP, neurokinine A (NK-A) en CGRP stimuleert, die vasodilatatie, plasma-extravasatie en de rekrutering van immuuncellen bevorderen, waardoor neurogene ontsteking en pijnsensitisatie62 worden opgewekt.
Onder inflammatoire omstandigheden versterken verhoogde niveaus van pro-inflammatoire cytokines (IL-1 familie, TNF-α, IL-6, IL-8) en chemokines (CXCL5/CXCR2) de ROS-productie en TRPA1-activatie verder, wat leidt tot membraandepolarisatie en hyperexcitabiliteit van DRG-neuronen, wat uiteindelijk bijdraagt aan neuropathische pijn. Daarnaast verhogen ontstekingsmediatoren zoals NGF de expressie van TRPA1, waardoor een positieve feedbacklus ontstaat die ontsteking en pijn in stand houdt 14,98,99,100. TRPA1 neemt ook deel aan zowel perifere als centrale sensitisatie, waardoor pijnoverdracht101 wordt versterkt.
Bovendien bevordert TRPA1 nociceptieve signalering door ontstekingsgerelateerde routes te moduleren. Een opgewaardeerde TRPA1 verhoogt de Ca2+-instroom en activeert de pannexine-1 (PANX1) route, waardoor de afgifte van adenosinetrifosfaat (ATP) wordt versterkt. Extracellulaire ATP, die als neurotransmitter werkt, draagt verder bij aan pijnovergevoeligheid102. Chemotherapeutische middelen kunnen TRPA1 ook sensibiliseren via activatie van bradykinine B2-receptoren en downstream PLC/PKCε-signalering in mestcellen, wat CIPN-gerelateerde pijn103 verergert. Omgekeerd is aangetoond dat opioïdeverbindingen zoals loperamide TRPA1- en spanningsgestuurde natriumkanaalactiviteit (VGSC) onderdrukken, microgliale activatie en oxidatieve stress remmen, en daardoor hyperalgesie in CIPN104.105 verlichten.
Samenvattend dient TRPA1 als een belangrijk moleculair doelwit dat oxidatieve stress en ontstekingssignalering in CIPN verbindt. Door bidirectionele interacties tussen immuuncellen en sensorische neuronen te coördineren, initieert en verspreidt TRPA1 niet alleen ontsteking, maar versterkt het ook pijn, waardoor het een cruciale brug vormt tussen immuunregulatie, neuro-inflammatie en nociceptieve overgevoeligheid. - TRPA1-gemedieerde ionenkanaaloverspraak en DRG-neuronale sensitisatie
TRPA1 wordt sterk tot expressie gebracht in beschadigde sensorische neuronen, met name in de DRG, en fungeert als een sleutelionenkanaal dat CIPN mediërt. Het moduleert de neuronale excitabiliteit en bevordert nociceptieve signaaloverdracht via interacties met meerdere ionenkanalen. Zo kan activatie van TRPV1 de gevoeligheid van TRPA1 vergroten, en beide kanalen worden vaak gezamenlijk tot expressie gebracht, wat synergetisch bijdraagt aan koude allodynie en mechanische hyperalgesie76,106. Daarnaast vertoont TRPA1 complementaire functies met het kou-gevoelige kanaal TRPM8: TRPM8 medailt onschuldige koelsensaties binnen het bereik van 25-28 °C, terwijl TRPA1 wordt geactiveerd onder 17 °C en verantwoordelijk is voor het detecteren van intense, giftige koude prikkels. Abnormale activatie van beide kanalen is in verband gebracht met de kou-overgevoeligheid die vaak wordt waargenomen bij CIP-patiënten77. Door chemotherapie geïnduceerde oxidatieve stress en verhoogde Ca2+-kanaalactiviteit kunnen TRPA1-kanalen verder activeren, wat leidt tot frequente actiepotentiaal-afvuring afhankelijk van spanningsgestuurde Na+-kanalen (Nav1.7)78,79. Bovendien kan Zn2+ TRPA1 direct activeren om de afgifte van CGRP80 te bevorderen, terwijl spanningsgestuurde K+-kanalen (Kv7) een negatief regulerend effect uitoefenen op dit proces81. Gezamenlijk versterkt de coöperatieve interactie tussen TRPA1 en andere ionenkanalen, waaronder TRPV1, TRPM8, Ca2+, Na+, K+ en Zn2+ kanalen, de neuronale excitabiliteit en nociceptieve transmissie in CIPN.
Bovendien kan intracellulaire pH-homeostase de TRPA1-activiteit moduleren. De Na+/H+-uitwisselingsfactor 1 (NHE1) beïnvloedt de gevoeligheid van TRPA1 door de intracellulaire pH te reguleren. Bij inflammatoire of door chemotherapie veroorzaakte letselcondities interageren TRPA1 en NHE1 in DRG-neuronen87,107, en intracellulaire verzuring verbetert de responsiviteit van TRPA1, wat leidt tot een verhoogde frequentie van actiepotentiaal en een verhoogde afgifte van neurotransmitters zoals glutamaat en CGRP82,83. Dit proces draagt bij aan inflammatoire pijn en kou-overgevoeligheid en ondersteunt neuro-ontsteking verder. Omgekeerd vermindert remming van TRPA1-expressie of -functie in DRG-neuronen de nociceptieve overdracht en neuro-inflammatoire reactiesaanzienlijk 108.
Samengevat dient TRPA1 als een centraal moleculair knooppunt dat oxidatieve stress en ionenkanaalsignalering in CIPN verbindt. Door uitgebreide crosstalk met meerdere ionenkanalen en intracellulaire regulatiemechanismen bevordert TRPA1 de hyperexcitabiliteit van sensorische neuronen en pijnhypersensitisatie, en vormt het een cruciaal moleculair doelwit voor de behandeling van CIPN-gerelateerde pijn. Figuur 6 toont het mechanisme waarmee TRPA1 de neuronale excitabiliteit moduleert en nociceptieve signalering versterkt via interacties met verschillende ionkanalen.
- TRPA1 reguleert immuuncel-gemedieerde neuro-ontsteking
3. Potentieel om TRPA1 te targeten voor CIPN-behandeling
In de vorige sectie hebben we verduidelijkt hoe TRPA1 een belangrijk doelwit is om CIPN te verlichten door een neuro-inflammatoriese cascaderespons te activeren. Het werkingsmechanisme van TRPA1 is tweeledig: enerzijds wordt TRPA1 direct gemoduleerd door de neuro-inflammatoire cascade en neemt het deel aan het pathologische proces van CIPN; aan de andere kant werkt TRPA1 samen met ontstekingssignalen, die op hun beurt neurotoxische reacties mediëren en neuronale schade verergeren. Daarom kan gerichte remming van TRPA1 oxidatieve stress en neuro-inflammatoire reacties verminderen, pijnsignalering verminderen en uiteindelijk CIPN-gerelateerde symptomen verbeteren. Figuur 7 toont de voorgestelde mechanismen waarmee remming van TRPA1, hetzij door specifieke antagonisten of natuurlijke kruidenmiddelen, neuropathische pijn die met CIPN samenhangt vermindert.
- TRPA1-antagonist
TRPA1 kan worden geactiveerd door exogene stoffen (bijv. mosterdolie en cinnamaldehyde) en endogene stoffen (bijv. oxidatieve stressproducten en ontstekingsmediatoren)62 om pijn, jeuk en ontstekingte veroorzaken. Om deze reden is TRPA1 erkend als een therapeutisch doelwit met breed toepassingspotentieel, waaronder pijnbestrijding, ontstekingsziekten en neurologische aandoeningen. Daarom is het onderzoeken en ontwikkelen van TRPA1-antagonisten cruciaal.
Verschillende TRPA1-antagonisten hebben aangetoond dat ze mogelijk therapeutisch zijn bij het verlichten van CIPN 109,110,111,112,113,114,115,116,117. Hun primaire mechanismen zijn het onderdrukken van door TRPA1 gemedieerde oxidatieve stressreacties, calciuminstroom en neuro-inflammatoire signalering, waardoor ze antagonistische effecten uitoefenen op de activiteit van TRPA1. In preklinische studies verlichtte de selectieve TRPA1-blokker HC-030031 significant de door OXA en CDDP veroorzaakte mechanische en koude hypersensitiviteit28. Ondertussen zijn antagonisten van de volgende generatie zoals GRC-17536 en LY-3526318 doorgestroomd naar fase II klinische onderzoeken voor diabetische neuropathie, chronische hoest en artrose-gerelateerde neuropathische pijn, met een goede verdraagzaamheid en een voorlopige werkzaamheidvan 109.113.
Tabel 3 geeft een samenvatting van de huidige ontwikkelingsstatus en klinische toepassingen van representatieve TRPA1-antagonisten. Deze studies leveren klinisch bewijs dat het translationele potentieel van TRPA1-antagonisten ondersteunt bij de behandeling van neuropathische pijn. De meeste TRPA1-antagonisten zijn echter nog steeds beperkt door lage biobeschikbaarheid en mogelijke off-target effecten (115.118.119), en zijn nog niet in een CIPN-specifieke klinische evaluatie ondergegaan. Toekomstig onderzoek moet zich richten op het optimaliseren van de selectiviteit van verbindingen en farmacokinetische eigenschappen, evenals het ontwerpen van klinische onderzoeken die specifiek gericht zijn op CIPN, om de therapeutische relevantie van TRPA1-remming in deze context te valideren.
Naast directe antagonisme heeft modulatie van TRPA1-activiteit via andere moleculaire doelen ook veelbelovend getoond in CIPN. Sigma-1-receptoren oefenen regulerende functies uit op verschillende ionenkanalen, en het is aangetoond dat Sigma-1-receptorantagonisten de plasmamembraanexpressie en -functie van TRPA1-kanalen aanzienlijk remmen, waardoor de progressie van pijnsymptomen bij OXA-geïnduceerde CIPN-modelmuizen89 wordt voorkomen. Een studie van Trevisan et al. toonde aan dat de symptomen van CIPN-overgevoeligheid veroorzaakt door bortezomib effectief konden worden voorkomen en verlicht door gelijktijdig gebruik van de TRPA1-antagonist HC-030031 of de antioxidant α-lipoïnezuur vóór of tijdens chemotherapie120. Bovendien kunnen TRPA1-remmers in de context van door chemotherapeutische medicijnen veroorzaakte neurotoxiciteit neurologische schade beperken door calciumafhankelijke pro-inflammatoire signalering te verminderen.
Samenvattend spelen TRPA1-antagonisten een belangrijke rol in de preventie en behandeling van CIPN door onder andere de functie van dit kanaal te moduleren en de activiteit te remmen, om pijnovergevoeligheid te verminderen en zenuwschade te verminderen. - Modulatoren van TRPA1-activiteit als nieuwe opties voor de behandeling van CIPN
TRPA1 is betrokken bij de pathologische processen van CIPN via de neuro-inflammatoire cascaderespons en neurotoxische schade en kan een nieuw doelwit zijn voor de behandeling van CIPN.
Verschillende studies hebben aangetoond dat bepaalde natuurlijke kruiden en hun actieve componenten nauw samenhangen met de regulatie van TRPA1-kanaalactiviteit en biologische effecten vertonen zoals ontstekingsremmende en pijnstillende werkingen, waardoor potentiële strategieën ontstaan voor de preventie en behandeling van CIPN. Zo is aangetoond dat liquiritine aanzienlijke ontstekingsremmende eigenschappen heeft121, terwijl allicine een pijnstillend potentieel vertoont vanwege zijn antioxiderende en ontstekingsremmende eigenschappen122; beide verbindingen zijn betrokken bij de modulatie van TRPA1-kanaalactiviteit. Op basis van deze bevindingen wordt gespeculeerd dat deze natuurlijke verbindingen de pijnperceptie en neuro-inflammatoire reacties door de regulatie van TRPA1-activiteit kunnen verlichten, en zo potentiële therapeutische effecten kunnen uitoefenen. Verdere studies hebben aangetoond dat menthol een bidirectioneel regulerend effect vertoont op TRPA1-kanalen, waarbij TRPA1 bij lage concentraties wordt geactiveerd terwijl de activiteit bij hogere concentraties wordt geremd. Een passende toepassing van menthol kan daarom de TRPA1-activiteit moduleren om pijnstillende en ontstekingsremmende effecten te bereiken bij patiënten met CIPN123. Evenzo bevat kaneel, traditioneel gebruikt als verwarmingstherapie om de bloedcirculatie te bevorderen, cinnamaldehyde als belangrijkste actieve bestanddeel. Li et al. rapporteerden dat cinnamaldehyde TRPA1-receptoren activeert, wat de thermogenese in bruin vetweefsel bevordert en zo helpt de lichaamstemperatuur te behouden en kougevoeligheid te verminderen124. Bovendien versterkt cinnamaldehyde de antioxidantrespons door de nucleaire factor erytroïde-gerelateerde factor 2 (Nrf2) te activeren125. Gezamenlijk kan menthol, door TRPA1 bij hogere concentraties te remmen, mechanische en koude allodynie kenmerkend voor CIPN verlichten, terwijl cinnamaldehyde, via zijn TRPA1-activerende en Nrf2-gemedieerde antioxidante mechanismen, chemotherapie-geïnduceerde oxidatieve stress kan tegengaan en kou-intolerantie bij CIP-patiënten kan verbeteren. Daarnaast is aangetoond dat bergeninemonohydraat, ligustrazine, saikosaponine en waterextracten van Notopterygium incisum neuropathische pijn verminderen126,127,128,129.
Tabel 4 vat de natuurlijke kruidenbronnen van TRPA1-liganden samen en hun mogelijke mechanismen bij het verlichten van CIPN. Deze bevindingen benadrukken het potentieel van TCM-componenten om neurotoxiciteit bij CIPN te verminderen. Hoewel verschillende natuurlijke verbindingen zijn geïdentificeerd als TRPA1-modulatoren met potentiële therapeutische effecten, blijven de meeste daarvan op de in vitro en dieronderzoeken, en het bewijs voor hun effectiviteit in CIPN is voornamelijk afkomstig uit preklinische modellen. Daarentegen heeft alleen menthol beperkte menselijke proof-of-concept bewijs en lopende geregistreerde klinische onderzoeken130. Deze bevindingen suggereren samen dat, hoewel TRPA1-gerichte natuurlijke producten veelbelovend zijn in het verlichten van CIPN-gerelateerde neurotoxiciteit, verdere goed ontworpen klinische studies nodig zijn om hun translationele potentieel en therapeutische effectiviteit te valideren.
Natuurlijke TRPA1-modulatoren die uit plantenextracten zijn geïdentificeerd, bieden niet alleen nieuwe therapeutische perspectieven voor pijnbestrijding, maar vormen ook potentiële natuurlijke bronnen voor de behandeling van CIPN. Steeds meer bewijs wijst erop dat natuurlijke verbindingen neurotoxische symptomen door chemotherapie kunnen verlichten door TRPA1-overactivatie te onderdrukken of bidirectionele regulerende effecten op het kanaal uit te oefenen, waardoor zowel pijnstillende als ontstekingsremmende resultaten worden behaald. Ondanks hun veelbelovende preklinische mogelijkheden blijft systematische klinische validatie echter onvoldoende. Bovendien vertonen deze verbindingen doorgaans multi-target en multi-pathway regulerende kenmerken, waardoor het moeilijk is om de specifieke bijdrage van TRPA1-modulatie aan hun algehele therapeutische effecten te bepalen. Toekomstige studies moeten zich richten op het ontrafelen van de moleculaire mechanismen waarmee natuurlijke TRPA1-modulatoren CIPN beïnvloeden, het onderzoeken van de synergetische interacties tussen TRPA1 en andere ionenkanalen of signaalroutes, en het uitvoeren van goed ontworpen klinische onderzoeken om hun werkzaamheid en veiligheid te bevestigen. Dergelijke inspanningen zullen essentieel zijn voor het vertalen van TRPA1-gerichte natuurlijke agentia naar praktische strategieën voor het beheer van CIPN.
4. Discussie
Volgens de nieuwste statistieken van het International Agency for Research on Cancer (IARC) zullen er in 2022 bijna 20 miljoen nieuwe gevallen van kanker zijn, en ongeveer 50% van die kankerpatiënten zal uiteindelijk overlijden aan kanker of complicaties daarvan. De prognoses van de IARC geven ook aan dat het aantal nieuwe kankergevallen per jaar in 2050 meer dan 35 miljoen zal bedragen. Kanker is daarom wereldwijd een groot volksgezondheidsprobleem en een van de belangrijkste oorzaken van de wereldwijde ziektelast1. Hoewel nieuwe therapieën voor kanker (bijvoorbeeld gerichte therapieën en immunotherapie) blijven worden onderzocht en ontwikkeld, speelt chemotherapie nog steeds een centrale rol bij de behandeling van kanker. CIPN is een veelvoorkomend bijeffect van chemotherapie en beïnvloedt het behandelproces en de effectiviteit ervan. De pathogenese van CIPN is echter onduidelijk, maar kan verband houden met mitochondriale disfunctie, oxidatieve stress, afwijkingen in het immuunsysteem, disregulatie van ionenkanalen en schade aan DRG-neuronen2. Momenteel is alleen duloxetine aanbevolen door de ASCO voor pijnbestrijding bij CIP-patiënten. Ondanks de aangetoonde pijnstillende effectiviteit is het algemene klinische voordeel van duloxetine matig, omdat het voornamelijk symptomatische verlichting biedt in plaats van CIPN te voorkomen of onderliggende pathologische veranderingen om te draaien8. Daarom is het onderzoeken van de potentiële doelwitten van CIPN belangrijk voor geneesmiddelontwikkeling en precisietherapie.
TRP-kanalen, die belangrijke mediatoren zijn van nociceptieve signalering, krijgen steeds meer aandacht in de context van de ontwikkeling van CIP-therapieën. Onder de TRP-kanalen is gesuggereerd dat TRPA1 een belangrijke factor is bij het opwekken van pijnovergevoeligheid door verschillende chemotherapeutische middelen131. Daarom richt deze studie zich op de rol van TRPA1 in de pathogenese van CIPN en verduidelijkt het verder de mechanismen waarmee het neuropathische pijn mediërt, zoals geïllustreerd in Figuur 8. Dit kanaal wordt geactiveerd door oxidatieve stress om abnormale mechanische pijn en kou-overgevoeligheid 61,70,71 op te wekken en is betrokken bij inflammatoire nociceptie door immuuncellen te moduleren om neuro-ontsteking te mediëren 62,72,73,74,75. Daarnaast interageren TRPA1-kanalen met TRPV1, TRPM8 en spanningsgestuurde kanalen zoals Ca2+, Nav1.7, Zn2+ en Kv7. Deze interacties versterken neuropathische en inflammatoire pijnreacties 76,77,78,79,80,81. Dergelijke synergetische modulatie heeft aanzienlijke klinische implicaties. Omdat TRPA1, TRPV1 en TRPM8 samen tot expressie komen in sensorische neuronen en elkaars activiteit wederzijds kunnen reguleren, kunnen duale of multi-target remmers meer uitgesproken pijnstillende effecten veroorzaken dan remmers die alleen TRPA1 targeten. Bovendien stelt deze synergetische interactie elke verbinding in staat om bij lagere doseringen vergelijkbare pijnstillende effectiviteit te bereiken, waardoor mogelijke bijwerkingen worden verminderd. Evenzo wordt de DRG, een doelwit van CIPN-neurotoxiciteit, beïnvloed door TRPA1. De activatie van TRPA1 verhoogt de prikkelbaarheid van DRG-neuronen, wat op zijn beurt de afgifte van neurotransmitters uit de DRG bevordert, wat leidt tot een verhoogde overgevoeligheid voor nociceptieve symptomen82,83. Samenvattend kan TRPA1 neuropathische pijn bij CIP-patiënten verergeren door een neuro-inflammatoire cascaderespons op te wekken. Het antagoniseren van TRPA1 kan dus effectief de ontstekings- en pijnsymptomen van CIPN verlichten, wat ook suggereert dat het aanbrengen van TRPA1-antagonisten en natuurlijke kruiden cruciaal is.
De effectiviteit van TRPA1-antagonisten is effectief aangetoond in diermodellen. Bijvoorbeeld, bij TRPA1 KO-muizen en bij de toepassing van TRPA1-antagonisten (bijv. HC-030031) zijn de door chemotherapeutische medicatie veroorzaakte neuropathische pijnsymptomen significant verminderdmet 86,89. Er zijn echter nog steeds beperkingen aan de toepassing van TRPA1-antagonisten, aangezien klinische onderzoeken voor patiënten met CIPN nog niet zijn uitgevoerd, wat suggereert dat de veiligheid en werkzaamheid van TRPA1-antagonisten bij mensen verder geëvalueerd en bevestigd moeten worden. Zo kunnen verschillen in TRPA1-expressiepatronen en gevoeligheid voor antagonisten tussen knaagdieren en mensen leiden tot discrepanties tussen preklinische en klinische uitkomsten. Daarnaast blijft de omzetting van experimentele doses van dieren naar mensen onzeker, wat de complexiteit van de geneesmiddelontwikkeling verder vergroot.
Daarnaast zijn de precieze mechanismen waarmee TRPA1 als therapeutisch doelwit in CIPN functioneert nog niet volledig onthelderd, en de weefselspecifieke rollen ervan vereisen verder onderzoek. Gezien de brede expressie van TRPA1 in sensorische neuronen, Schwann-cellen en immuuncellen, blijft het uitdagend om de specifieke functies ervan over verschillende cellulaire contexten te onderscheiden. De meeste bestaande studies vertrouwen op systemische TRPA1-antagonisten, waardoor het moeilijk is om de waargenomen effecten nauwkeurig toe te schrijven aan specifieke cellulaire compartimenten. Het moet worden benadrukt dat TRPA1, tot expressie gebracht in sensorische neuronen, direct nociceptieve signalering bemiddelt, terwijl TRPA1 in Schwann-cellen en immuuncellen voornamelijk ontstekings- en micro-omgevingsprocessen reguleert die secundair de pijngevoeligheid moduleren. Daarom zou weefselspecifieke verwijdering van TRPA1 belangrijke mechanistische inzichten opleveren. Neuronaal-specifiek verlies van TRPA1 zou de directe rol ervan in nociceptor-excitabiliteit en pijnoverdracht kunnen verduidelijken, terwijl Schwann-celspecifieke deletie kan verduidelijken hoe door TRPA1 gedreven oxidatieve stress en gliaal-neuronale interacties aanhoudende neuro-ontsteking bevorderen. Belangrijk is dat immuuncelspecifieke TRPA1-knockoutmodellen (bijvoorbeeld in macrofagen of T-cellen) zouden helpen de bijdrage van immuun-TRPA1-signalering aan neuro-immuun crosstalk en ontstekingsregulatie in CIPN te definiëren. Dergelijke benaderingen zouden ons begrip van weefsel- en celspecifieke TRPA1-functies aanzienlijk verdiepen en de ontwikkeling van preciezere therapeutische strategieën vergemakkelijken. Ondertussen moeten meerdere aspecten van TRPA1-antagonisme in de behandeling van CIPN nog verder worden onderzocht. Bijvoorbeeld, of TRPA1 verschillende functionele rollen vertoont in CIPN die worden geïnduceerd door verschillende chemotherapeutische middelen, en hoe de activiteit ervan preciezer kan worden gemoduleerd om optimale therapeutische effectiviteit te bereiken, blijven belangrijke onopgeloste vragen.
In deze context vertegenwoordigt het gecombineerd gebruik van TRPA1-antagonisten met natuurlijke kruidenverbindingen of traditionele Chinese medicijnformuleringen een veelbelovende therapeutische benadering. Dergelijke combinatietherapie kan niet alleen de toxiciteit van geneesmiddelen verminderen, maar ook de effectiviteit vergroten door multi-target synergistische effecten. Al met al kan het antagoniseren van TRPA1 immuunresponsen moduleren en neuro-inflammatoire cascades onderbreken, waardoor neurotoxiciteit en neuronale schade effectief worden verminderd, wat nieuwe inzichten en potentiële strategieën biedt voor het klinische beheer van CIPN.
Conclusies
Deze review onderzoekt uitgebreid de complexe relatie tussen TRPA1 en CIPN, evenals de mogelijke ontstekingsremmende effecten van TRPA1-antagonisme in de behandeling. Preklinische studies hebben aangetoond dat farmacologische remming of genetische deletie van TRPA1 neuroontsteking kan onderdrukken, de neuronale prikkelbaarheid kan verminderen en neurotoxiciteit kan verminderen, waardoor ontstekingsremmende en pijnstillende effecten ontstaan die mogelijk helpen de symptomen van CIPN te verlichten. Er zijn echter nog steeds enkele beperkingen in het huidige onderzoek. Toekomstige studies zullen de specifieke moleculaire mechanismen achter de betrokkenheid van TRPA1 bij CIPN verder onderzoeken, doelgerichte strategieën optimaliseren en grootskaalse klinische onderzoeken uitvoeren om de veiligheid en werkzaamheid van TRPA1-antagonisten te verifiëren. Dit zal nauwkeurigere en effectievere behandelopties bieden voor patiënten met CIPN.
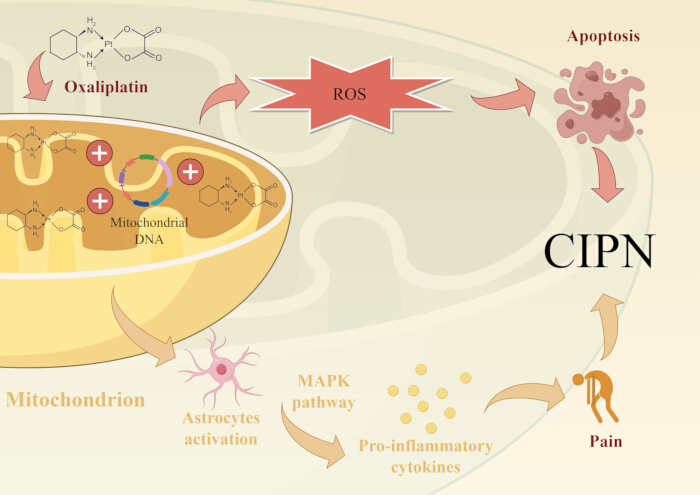
Figuur 1: Mitochondriale disfunctie en door oxidatieve stress geïnduceerde CIP-mechanismen. Platina-gebaseerde chemotherapeutische middelen vormen platina-DNA-adducten die zich ophopen in de DRG, waar ze binden aan nDNA en mtDNA. Dit veroorzaakt DNA-/mitochondriale schade, verhoogt de productie van ROS en induceert neuronale apoptose. Er is ook bewijs dat OXA neuropathische pijn induceert door astrocyten te activeren en pro-inflammatoire cytokines in het MAPK-pad op te reguleren. Klik hier om een grotere versie van deze figuur te bekijken.
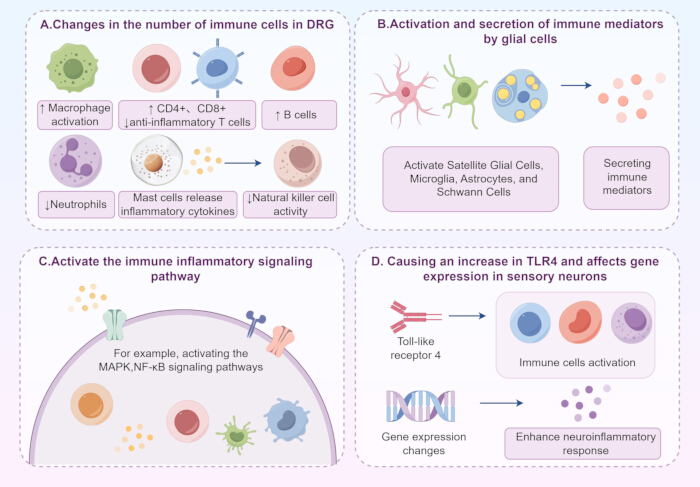
Figuur 2: Mechanismen van CIP-inductie door afwijkingen in het immuunsysteem. (A) Chemotherapeutische middelen leiden tot macrofagenactivatie, toename van het aantal T-lymfocyten (CD4+), cytotoxische T-cellen (CD8+) en B-cellen in de DRG, en een afname van het aantal ontstekingsremmende T-cellen en neutrofielen. MC's dragen bij aan de progressie van CIPN door immuuncellen te rekruteren en verschillende ontstekingscytokines in CIPN vrij te geven, waardoor de activiteit van NK-cellen afneemt, wat op zijn beurt neuro-inflammatie en oxidatieve stress verergert. (B) Chemotherapeutische middelen moduleren de activatie van en de secretie van immuunmediatoren via SGC's in de DRG, microglia en astrocyten in het ruggenmerg, en Schwann-cellen in de axonen, wat resulteert in een verhoogde prikkelbaarheid van sensorische neuronen en een verhoogde pijnovergevoeligheid bij CIPN. (C) De activatie van immuun-inflammatoire signaleringsroutes, zoals MAPK en NF-κB, speelt ook een belangrijke rol bij het verergeren van neuro-inflammatoire reacties. (D) Chemotherapeutische middelen kunnen ook immuuncellen activeren en neuro-inflammatoire reacties versterken door TLR4 te verhogen en geassocieerde gendysregulatie te triggeren. Klik hier om een grotere versie van deze figuur te bekijken.
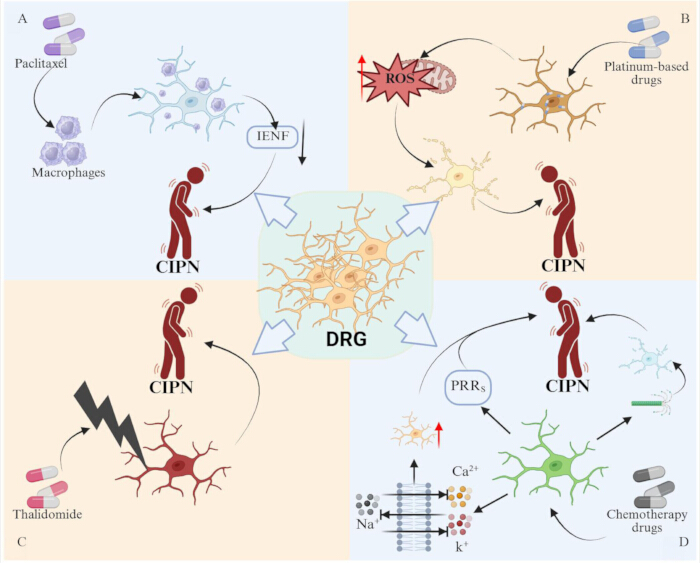
Figuur 3: DRG is een belangrijk doelwit voor chemotherapeutische middelen om CIPN te activeren. (A) PTX kan leiden tot macrofageninfiltratie in de DRG, wat op zijn beurt leidt tot een afname van het aantal IENFs. (B) Platinummedicijnen hopen zich op in de DRG, wat leidt tot mitochondriale disfunctie en verhoogde ROS-niveaus, die op hun beurt neuronale apoptose bevorderen. (C) Thalidomide kan de DRG direct beschadigen. (D) Chemotherapeutische middelen kunnen ook DRG-neuronen beschadigen door natrium-, kalium- en calciumionkanalen te veranderen, de structuur van microtubuli te verstoren en PRR's te activeren. Klik hier om een grotere versie van deze figuur te bekijken.
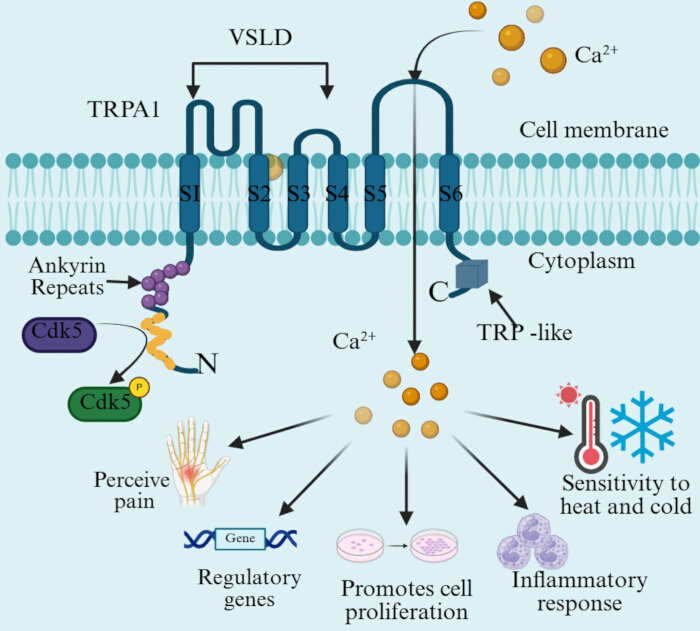
Figuur 4: De belangrijkste structurele domeinen van TRPA1 die relevant zijn voor de activatie door chemotherapeutische middelen. Het TRPA1-kanaal bevat zes transmembrane α-helixfragmenten (S1-S6). Hiervan vormen S1-S4 de VSLD, en vormen S5 en S6 een holle poriël-lusstructuur. Zowel het NH2- als het COOH-uiteinde van het TRPA1-kanaal bevinden zich in het cytoplasma. Een van de langere NH2-termini bevat ARD's en de Cdk5-site, terwijl de C-terminus van TRPA1 een TRP-achtig domein bevat en verbonden is met het transmembrane structurele domein. Kanaalactivatie kan Ca2+- influx veroorzaken, wat op zijn beurt een reeks celsignaleringsroutes activeert, zoals die welke genexpressie reguleren, celproliferatie bevorderen en ontstekingsreacties opwekken. De structuur van TRPA1 bepaalt zijn functie bij het detecteren van pijn en gevoeligheid voor hitte/kou. Klik hier om een grotere versie van deze figuur te bekijken.
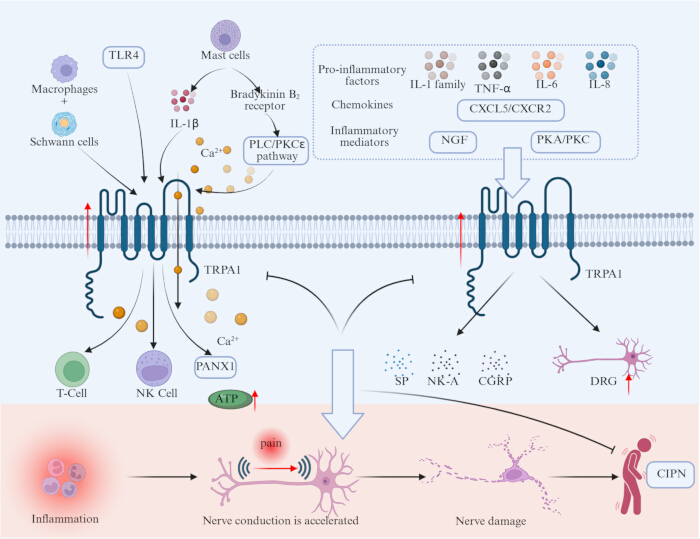
Figuur 5: TRPA1 reguleert immuuncel-gemedieerde neuro-inflammatoire nociceptie. Immuuncellen (macrofagen, Schwann-cellen en MC's), pro-inflammatoire factoren (IL-1 familie, TNF-α, IL-6, IL-8), chemokines (CXCL5/CXCR2), ontstekingsmediatoren (NGF, PKA/PKC) en TLR4 kunnen TRPA1-kanalen activeren. Activatie van TRPA1-kanalen kan de intracellulaire Ca2+- concentratie verhogen, wat de afgifte van SP, NK-A en CGRP bevordert, immuuncellen (T-cellen, NK-cellen) aantast en ontstekingsgerelateerde routes moduleert (PANX1-route), waardoor de prikkelbaarheid van DRG-neuronen wordt verhoogd en neuro-inflammatie en aanhoudende pijn in stand blijft. Klik hier om een grotere versie van deze figuur te bekijken.
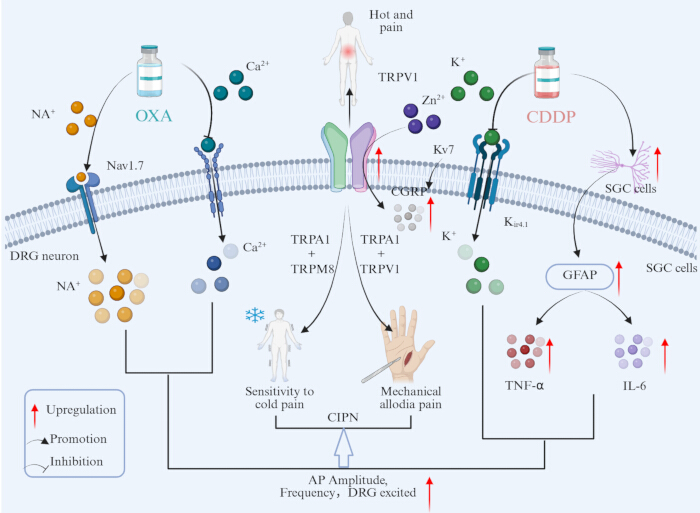
Figuur 6: TRPA1 moduleert ionenkanalen om pijnsignalering te versnellen. TRPA1 en TRPM8 zijn betrokken bij koude hypersensitiviteit, en TRPA1 en TRPV1 zijn betrokken bij mechanische allodynie. Daarnaast bevorderen TRPA1-kanalen met spanningsgestuurde Ca2+, Nav1.7, Zn2+, Kv 7 en Kir4.1-kanalen de afgifte van ontstekingsmediatoren (bijv. CGRP, GFAP) en pro-inflammatoire factoren (bijv. TNF-α, IL-6), wat de hyperexcitabiliteit van DRG-neuronen stimuleert, wat op zijn beurt een synergetisch effect uitoefent op het verergeren van neuropathische en inflammatoire pijn. Klik hier om een grotere versie van deze figuur te bekijken.
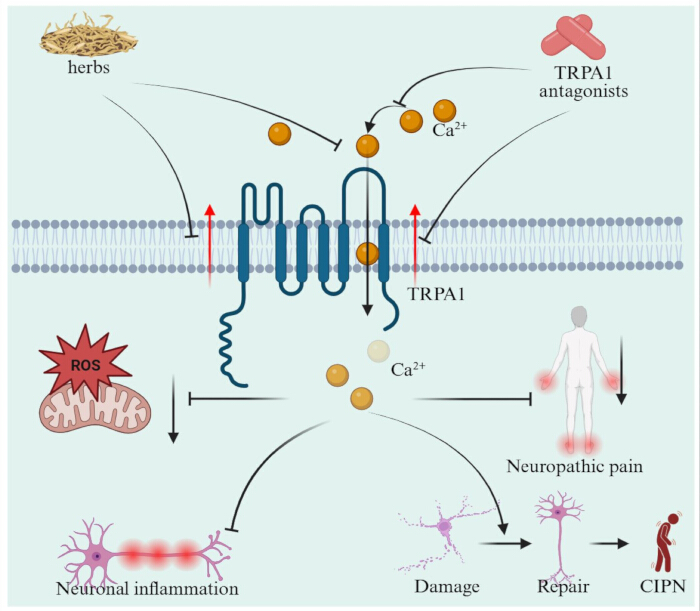
Figuur 7: Potentieel om TRPA1 te targeten voor CIPN-behandeling. Het gebruik van TRPA1-antagonisten en natuurlijke kruiden kan de activiteit van TRPA1-kanaal remmen, waardoor Ca2+- flux en oxidatieve stress worden verminderd, wat op zijn beurt neuro-inflammatoire reacties onderdrukt en neuropathische pijn vermindert, wat uiteindelijk zenuwschade vermindert en CIPN-gerelateerde symptomen verbetert. Klik hier om een grotere versie van deze figuur te bekijken.
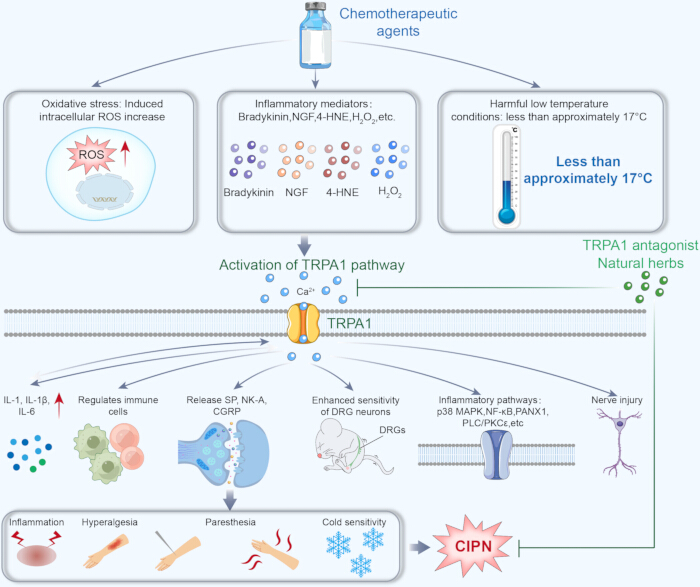
Figuur 8: Het remmen van TRPA1. Een therapeutische strategie voor CIPN. TRPA1-activatie veroorzaakt ontsteking en overgevoeligheid bij CIPN; de remming door antagonisten of kruiden kan neurogene ontsteking, nociceptieve sensitisatie en CIP-symptomen verminderen. Klik hier om een grotere versie van deze figuur te bekijken.
Tabel 1: Potentiële mechanismen ten grondslag aan CIPN. Chemotherapeutische middelen dragen bij aan CIPN via meerdere pathologische routes, waaronder mitochondriale disfunctie en oxidatieve stress, immuunsysteemafwijkingen, ionenkanaaldysregulatie, DRG-neuronale schade en verstoring van het neuronale cytoskelet. Deze mechanismen leiden samen tot neuroontsteking, neurotoxiciteit en neuropathische pijn. Klik hier om deze tabel te downloaden.
Tabel 2: Mechanismen van CIPN geassocieerd met TRPA1. TRPA1 draagt bij aan CIPN via meerdere pathologische processen, waaronder door oxidatieve stress veroorzaakte activatie, immuunmodulatie en ontsteking, ionenkanaalinteracties en DRG-neuronale schade. Deze mechanismen vergroten samen de prikkelbaarheid van neuronen en bevorderen neuropathische pijn en overgevoeligheid. Klik hier om deze tabel te downloaden.
Tabel 3: Huidige ontwikkelingsstatus en klinische indicaties van representatieve TRPA1-antagonisten. Deze tabel vat de belangrijkste TRPA1-antagonisten samen die zijn onderzocht in preklinische en klinische studies, inclusief hun werkingsmechanismen, therapeutische indicaties en stadia van geneesmiddelontwikkeling. Deze middelen remmen de activiteit van het TRPA1-kanaal, waardoor oxidatieve stress, ontsteking en neuropathische pijn die samenhangt met CIPN en andere pathologische aandoeningen worden verminderd. Klik hier om deze tabel te downloaden.
Tabel 4: Natuurlijke kruidenbronnen van TRPA1-liganden en hun mogelijke mechanismen bij het verlichten van CIPN. Deze tabel vat representatieve natuurlijke verbindingen en kruidenextracten samen die de activiteit van TRPA1 moduleren, inclusief hun bronnen, chemische types, experimentele omstandigheden en moleculaire doelwitten. Deze natuurlijke middelen oefenen neuroprotectieve en ontstekingsremmende effecten uit door TRPA1 en gerelateerde signaalroutes te reguleren, waardoor oxidatieve stress, neuro-ontsteking en neuronale hyperexcitabiliteit die geassocieerd worden met CIPN worden verminderd. Klik hier om deze tabel te downloaden.
Openbaarmakingen
Er zijn geen financiële belangenconflicten om te melden.
Dankbetuigingen
De auteurs willen hun dank uitspreken aan alle leden van Mingzhu Li's groep voor hun steun en hulp. Dit manuscript werd ondersteund door de China National Natural Science Foundation (82104838), het China Promotion Foundation Spark Program (XH-D001) en het Liaoning Provincial Key Research and Development Programme (2024JH2/102500062), wat met dank wordt erkend. Figuur 1 en Figuur 2 zijn getekend met FigDraw.
Referenties
- Bray, F., et al. Global cancer statistics 2022: Globocan estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 74 (3), 229-263 (2024).
- Chinese expert consensus on the diagnosis and treatment of chemotherapy-induced peripheral neuropathy (2022 edition). Zhonghua Zhong Liu Za Zhi. 44 (9), 928-934 (2022).
- Preti, K., Davis, M. E. Chemotherapy-induced peripheral neuropathy: Assessment and treatment strategies for advanced practice providers. Clin J Oncol Nurs. 28 (4), 351-357 (2024).
- Bae, E. H., Greenwald, M. K., Schwartz, A. G. Chemotherapy-induced peripheral neuropathy: Mechanisms and therapeutic avenues. Neurotherapeutics. 18 (4), 2384-2396 (2021).
- Lemanska, A., et al. The association of clinical and patient factors with chemotherapy-induced peripheral neuropathy (CIPN) in colorectal cancer: Secondary analysis of the Scot trial. ESMO Open. 8 (6), 102063(2023).
- Loprinzi, C. L., et al. Prevention and management of chemotherapy-induced peripheral neuropathy in survivors of adult cancers: ASCO guideline update. J Clin Oncol. 38 (28), 3325-3348 (2020).
- Smith, E. M., et al. Effect of duloxetine on pain, function, and quality of life among patients with chemotherapy-induced painful peripheral neuropathy: A randomized clinical trial. Jama. 309 (13), 1359-1367 (2013).
- Jordan, B., et al. Systemic anticancer therapy-induced peripheral and central neurotoxicity: ESMO-EONS-eano clinical practice guidelines for diagnosis, prevention, treatment and follow-up. Ann Oncol. 31 (10), 1306-1319 (2020).
- Hu, S., Huang, K. M., Adams, E. J., Loprinzi, C. L., Lustberg, M. B. Recent developments of novel pharmacologic therapeutics for prevention of chemotherapy-induced peripheral neuropathy. Clin Cancer Res. 25 (21), 6295-6301 (2019).
- Chen, X., Gan, Y., Au, N. P. B., Ma, C. H. E. Current understanding of the molecular mechanisms of chemotherapy-induced peripheral neuropathy. Front Mol Neurosci. 17, 1345811(2024).
- Goel, Y., Fouda, R., Gupta, K. Endoplasmic reticulum stress in chemotherapy-induced peripheral neuropathy: Emerging role of phytochemicals. Antioxidants (Basel). 11 (2), 265(2022).
- Doyle, T. M., Salvemini, D. Mini-review: Mitochondrial dysfunction and chemotherapy-induced neuropathic pain. Neurosci Lett. 760, 136087(2021).
- Trevisan, G., et al. Trpa1 mediates trigeminal neuropathic pain in mice downstream of monocytes/macrophages and oxidative stress. Brain. 139 (Pt 5), 1361-1377 (2016).
- Yao, K., et al. Inflammation: The role of TRPA1 channel. Front Physiol. 14, 1093925(2023).
- Trevisani, M., et al. 4-hydroxynonenal, an endogenous aldehyde, causes pain and neurogenic inflammation through activation of the irritant receptor TRPA1. Proc Natl Acad Sci U S A. 104 (33), 13519-13524 (2007).
- Andersson, D. A., Gentry, C., Moss, S., Bevan, S. Transient receptor potential A1 is a sensory receptor for multiple products of oxidative stress. J Neurosci. 28 (10), 2485-2494 (2008).
- Zhao, M., et al. Acute cold hypersensitivity characteristically induced by oxaliplatin is caused by the enhanced responsiveness of TRPA1 in mice. Mol Pain. 8, 55(2012).
- Nativi, C., et al. A TRPA1 antagonist reverts oxaliplatin-induced neuropathic pain. Sci Rep. 3, 2005(2013).
- Moccia, F., Montagna, D. Transient receptor potential ankyrin 1 (TRPA1) channel as a sensor of oxidative stress in cancer cells. Cells. 12 (9), 1261(2023).
- Faris, P., et al. Transient receptor potential ankyrin 1 (TRPA1) mediates reactive oxygen species-induced Ca (2+) entry, mitochondrial dysfunction, and caspase-3/7 activation in primary cultures of metastatic colorectal carcinoma cells. Cell Death Discov. 9 (1), 213(2023).
- Bessac, B. F., et al. Trpa1 is a major oxidant sensor in murine airway sensory neurons. J Clin Invest. 118 (5), 1899-1910 (2008).
- Logashina, Y. A., Korolkova, Y. V., Kozlov, S. A., Andreev, Y. A. TRPA1 channel as a regulator of neurogenic inflammation and pain: Structure, function, role in pathophysiology, and therapeutic potential of ligands. Biochemistry (Mosc). 84 (2), 101-118 (2019).
- Moparthi, L., Zygmunt, P. M. Human TRPA1 is an inherently mechanosensitive bilayer-gated ion channel. Cell Calcium. 91, 102255(2020).
- Naert, R., López-Requena, A., Talavera, K. TRPA1 expression and pathophysiology in immune cells. Int J Mol Sci. 22 (21), 11460(2021).
- Marini, M., et al. Antinociceptive action of leonurine through TRPA1 and TRPV4 channels modulation. Br J Pharmacol. 182 (22), 5469-5488 (2025).
- Sánchez, J. C., Muñoz, L. V., Galindo-Márquez, M. L., Valencia-Vásquez, A., García, A. M. Paclitaxel regulates TRPA1 function and expression through PKA and PKC. Neurochem Res. 48 (1), 295-304 (2023).
- Li, C., Deng, T., Shang, Z., Wang, D., Xiao, Y. Blocking TRPA1 and tnf-α signal improves bortezomib-induced neuropathic pain. Cell Physiol Biochem. 51 (5), 2098-2110 (2018).
- Nassini, R., et al. Oxaliplatin elicits mechanical and cold allodynia in rodents via TRPA1 receptor stimulation. Pain. 152 (7), 1621-1631 (2011).
- Koivisto, A., Jalava, N., Bratty, R., Pertovaara, A. TRPA1 antagonists for pain relief. Pharmaceuticals (Basel). 11 (4), 117(2018).
- Areti, A., Komirishetty, P., Kalvala, A. K., Nellaiappan, K., Kumar, A. Rosmarinic acid mitigates mitochondrial dysfunction and spinal glial activation in oxaliplatin-induced peripheral neuropathy. Mol Neurobiol. 55 (9), 7463-7475 (2018).
- Xu, Z., et al. Chemotherapy for pain: Reversing inflammatory and neuropathic pain with the anticancer agent mithramycin a. Pain. 165 (1), 54-74 (2024).
- Lees, J. G., et al. Immune-mediated processes implicated in chemotherapy-induced peripheral neuropathy. Eur J Cancer. 73, 22-29 (2017).
- Leo, M., Schmitt, L. I., Kutritz, A., Kleinschnitz, C., Hagenacker, T. Cisplatin-induced activation and functional modulation of satellite glial cells lead to cytokine-mediated modulation of sensory neuron excitability. Exp Neurol. 341, 113695(2021).
- Singh, R., Adhya, P., Sharma, S. S. Redox-sensitive trp channels: A promising pharmacological target in chemotherapy-induced peripheral neuropathy. Expert Opin Ther Targets. 25 (7), 529-545 (2021).
- Zhang, H., et al. Dorsal root ganglion infiltration by macrophages contributes to paclitaxel chemotherapy-induced peripheral neuropathy. J Pain. 17 (7), 775-786 (2016).
- Omran, M., et al. Review of the role of the brain in chemotherapy-induced peripheral neuropathy. Front Mol Biosci. 8, 693133(2021).
- Boyette-Davis, J. A., Hou, S., Abdi, S., Dougherty, P. M. An updated understanding of the mechanisms involved in chemotherapy-induced neuropathy. Pain Manag. 8 (5), 363-375 (2018).
- Spera, M. C., Cesta, M. C., Zippoli, M., Varrassi, G., Allegretti, M. Emerging approaches for the management of chemotherapy-induced peripheral neuropathy (CIPN): Therapeutic potential of the C5a/C5ar axis. Pain Ther. 11 (4), 1113-1136 (2022).
- Araldi, D., et al. Role of pattern recognition receptors in chemotherapy-induced neuropathic pain. Brain. 147 (3), 1025-1042 (2024).
- Au, N. P., Fang, Y., Xi, N., Lai, K. W., Ma, C. H. Probing for chemotherapy-induced peripheral neuropathy in live dorsal root ganglion neurons with atomic force microscopy. Nanomedicine. 10 (6), 1323-1333 (2014).
- Chine, V. B., Au, N. P. B., Ma, C. H. E. Therapeutic benefits of maintaining mitochondrial integrity and calcium homeostasis by forced expression of hsp27 in chemotherapy-induced peripheral neuropathy. Neurobiol Dis. 130, 104492(2019).
- Pero, M. E., et al. Pathogenic role of delta 2 tubulin in bortezomib-induced peripheral neuropathy. Proc Natl Acad Sci U S A. 118 (4), e2012685118(2021).
- Trecarichi, A., Flatters, S. J. L. Mitochondrial dysfunction in the pathogenesis of chemotherapy-induced peripheral neuropathy. Int Rev Neurobiol. 145, 83-126 (2019).
- Canta, A., Pozzi, E., Carozzi, V. A. Mitochondrial dysfunction in chemotherapy-induced peripheral neuropathy (CIPN). Toxics. 3 (2), 198-223 (2015).
- Waseem, M., Kaushik, P., Tabassum, H., Parvez, S. Role of mitochondrial mechanism in chemotherapy-induced peripheral neuropathy. Curr Drug Metab. 19 (1), 47-54 (2018).
- Chine, V. B., Au, N. P. B., Kumar, G., Ma, C. H. E. Targeting axon integrity to prevent chemotherapy-induced peripheral neuropathy. Mol Neurobiol. 56 (5), 3244-3259 (2019).
- Zheng, H., Xiao, W. H., Bennett, G. J. Mitotoxicity and bortezomib-induced chronic painful peripheral neuropathy. Exp Neurol. 238 (2), 225-234 (2012).
- Moraes, T. R., et al. Spinal HMGB1 participates in the early stages of paclitaxel-induced neuropathic pain via microglial TLR4 and rage activation. Front Immunol. 15, 1303937(2024).
- Sekiguchi, F., Kawabata, A. Role of HMGB1 in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 22 (1), 367(2020).
- Babu, N., et al. TLR-4: A promising target for chemotherapy-induced peripheral neuropathy. Mol Biol Rep. 51 (1), 1099(2024).
- Tong, S. H., et al. Activation of TLR4/CCl2 in intact neurons drives radicular injury-induced global nerve trunk hypersensitivity in radiculopathy preclinical models. J Pain Res. 18, 3903-3918 (2025).
- Yun, H. D., Goel, Y., Gupta, K. Crosstalk of mast cells and natural killer cells with neurons in chemotherapy-induced peripheral neuropathy. Int J Mol Sci. 24 (16), 12543(2023).
- Starobova, H., Mueller, A., Deuis, J. R., Carter, D. A., Vetter, I. Inflammatory and neuropathic gene expression signatures of chemotherapy-induced neuropathy induced by vincristine, cisplatin, and oxaliplatin in C57BL/6j mice. J Pain. 21 (1-2), 182-194 (2020).
- Fumagalli, G., Monza, L., Cavaletti, G., Rigolio, R., Meregalli, C. Neuroinflammatory process involved in different preclinical models of chemotherapy-induced peripheral neuropathy. Front Immunol. 11, 626687(2020).
- Meng, J., et al. Duloxetine, a balanced serotonin-norepinephrine reuptake inhibitor, improves painful chemotherapy-induced peripheral neuropathy by inhibiting activation of p38 MAPK and nf-κb. Front Pharmacol. 10, 365(2019).
- Klein, I., Lehmann, H. C. Pathomechanisms of paclitaxel-induced peripheral neuropathy. Toxics. 9 (10), 229(2021).
- Zhou, L., et al. The therapeutic potential of chemokines in the treatment of chemotherapy- induced peripheral neuropathy. Curr Drug Targets. 21 (3), 288-301 (2020).
- Chen, L. H., et al. Targeting interleukin-20 alleviates paclitaxel-induced peripheral neuropathy. Pain. 161 (6), 1237-1254 (2020).
- Zhang, J., Ma, J., Trinh, R. T., Heijnen, C. J., Kavelaars, A. An HDAC6 inhibitor reverses chemotherapy-induced mechanical hypersensitivity via an IL-10 and macrophage-dependent pathway. Brain Behav Immun. 100, 287-296 (2022).
- Akhilesh Singh, A. K., Tiwari, V. TRPA1 siRNA-loaded nanoformulation ameliorates chemotherapy-induced peripheral neuropathy. ACS Chem Neurosci. 16 (11), 2060-2075 (2025).
- De Logu, F., et al. Oxidative stress mediates thalidomide-induced pain by targeting peripheral TRPA1 and central TRPV4. BMC Biol. 18 (1), 197(2020).
- Iannone, L. F., Nassini, R., Patacchini, R., Geppetti, P., De Logu, F. Neuronal and non-neuronal TRPA1 as therapeutic targets for pain and headache relief. Temperature (Austin). 10 (1), 50-66 (2023).
- Wang, W., Halasz, E., Townes-Anderson, E. Actin dynamics, regulated by rhoa-limk-cofilin signaling, mediates rod photoreceptor axonal retraction after retinal injury. Invest Ophthalmol Vis Sci. 60 (6), 2274-2285 (2019).
- Carozzi, V. A., Canta, A., Chiorazzi, A. Chemotherapy-induced peripheral neuropathy: What do we know about mechanisms. Neurosci Lett. 596, 90-107 (2015).
- Moparthi, L., et al. The human TRPA1 intrinsic cold and heat sensitivity involves separate channel structures beyond the N-ard domain. Nat Commun. 13 (1), 6113(2022).
- Jardín, I., et al. Trps in pain sensation. Front Physiol. 8, 392(2017).
- Sulak, M. A., Ghosh, M., Sinharoy, P., Andrei, S. R., Damron, D. S. Modulation of TRPA1 channel activity by cdk5 in sensory neurons. Channels (Austin). 12 (1), 65-75 (2018).
- Koldsø, H., Jensen, M., Jogini, V., Shaw, D. E. Functional dynamics and allosteric modulation of TRPA1. Structure. 31 (12), 1556-1566.e3 (2023).
- Wei, Y., et al. Function and therapeutic potential of transient receptor potential ankyrin 1 in fibrosis. Front Pharmacol. 13, 1014041(2022).
- Oehler, B., Brack, A., Blum, R., Rittner, H. L. Pain control by targeting oxidized phospholipids: Functions, mechanisms, perspectives. Front Endocrinol (Lausanne). 11, 613868(2020).
- Miyake, T., et al. Distinct mechanism of cysteine oxidation-dependent activation and cold sensitization of human transient receptor potential ankyrin 1 channel by high and low oxaliplatin. Front Physiol. 8, 878(2017).
- De Logu, F., et al. Macrophages and Schwann cell TRPA1 mediate chronic allodynia in a mouse model of complex regional pain syndrome type I. Brain Behav Immun. 88, 535-546 (2020).
- De Logu, F., et al. Peripheral nerve resident macrophages and Schwann cells mediate cancer-induced pain. Cancer Res. 81 (12), 3387-3401 (2021).
- Scopelliti, F., Dimartino, V., Cattani, C., Cavani, A. Functional TRPA1 channels regulate CD56 (dim)CD16(+) NK cell cytotoxicity against tumor cells. Int J Mol Sci. 24 (19), 14736(2023).
- Silverman, H. A., et al. Transient receptor potential ankyrin-1-expressing vagus nerve fibers mediate il-1β induced hypothermia and reflex anti-inflammatory responses. Mol Med. 29 (1), 4(2023).
- Wang, C., et al. TRPV1 and TRPA1 channels interact to mediate cold hyperalgesia in mice. Br J Anaesth. 131 (5), e167-e170 (2023).
- Qi, Y., et al. TRPM8 and TRPA1 are ideal targets for treating cold-induced pain. Eur J Med Chem. 282, 117043(2025).
- Sekiguchi, F., Tsubota, M., Kawabata, A. Sulfide and polysulfide as pronociceptive mediators: Focus on ca(v)3.2 function enhancement and trpa1 activation. J Pharmacol Sci. 155 (3), 113-120 (2024).
- Deng, L., et al. Nav1.7 is essential for nociceptor action potentials in the mouse in a manner independent of endogenous opioids. Neuron. 111 (17), 2642-2659.e13 (2023).
- Betrie, A. H., et al. Zinc drives vasorelaxation by acting in sensory nerves, endothelium, and smooth muscle. Nat Commun. 12 (1), 3296(2021).
- Citak, A., et al. The effects of certain TRP channels and voltage-gated KCNQ/Kv7 channel opener retigabine on calcitonin gene-related peptide release in the trigeminovascular system. Cephalalgia. 42 (13), 1375-1386 (2022).
- Wu, L. Y., et al. Deficiency of kif15 contributes to oxaliplatin-induced cold hypersensitivity by limiting annexin A2 and enhancing TRPA1 localization in DRG neuronal membrane. Neuropharmacology. 269, 110343(2025).
- Zhang, Z., et al. Action potential-independent spontaneous microdomain Ca (2+) transients-mediated continuous neurotransmission regulates hyperalgesia. Proc Natl Acad Sci U S A. 122 (3), e2406741122(2025).
- Perillo, B., et al. Ros in cancer therapy: The bright side of the moon. Exp Mol Med. 52 (2), 192-203 (2020).
- Zhang, Y., et al. Intraganglionic reactive oxygen species mediate inflammatory pain and hyperalgesia through TRPA1 in the rat. Front Pain Res (Lausanne). 4, 1204057(2023).
- Nakatomi, C., et al. Cisplatin induces TRPA1-mediated mechanical allodynia in the oral mucosa. Arch Oral Biol. 133, 105317(2022).
- Riva, B., et al. Oxaliplatin induces pH acidification in dorsal root ganglia neurons. Sci Rep. 8 (1), 15084(2018).
- Cherradi, S., et al. Improving the response to oxaliplatin by targeting chemotherapy-induced cldn1 in resistant metastatic colorectal cancer cells. Cell Biosci. 13 (1), 72(2023).
- Marcotti, A., et al. TRPA1 modulation by sigma-1 receptor prevents oxaliplatin-induced painful peripheral neuropathy. Brain. 146 (2), 475-491 (2023).
- Bellantoni, E., et al. Schwann cell transient receptor potential ankyrin 1 (TRPA1) ortholog in zebrafish larvae mediates chemotherapy-induced peripheral neuropathy. Br J Pharmacol. 181 (23), 4859-4873 (2024).
- Landini, L., et al. TRPA1 role in inflammatory disorders: What is known so far. Int J Mol Sci. 23 (9), 4529(2022).
- Szabó, K., et al. Presence of TRPA1 modifies CD4+/CD8+ t lymphocyte ratio and activation. Pharmaceuticals (Basel). 15 (1), 57(2022).
- Nassini, R., Materazzi, S., Benemei, S., Geppetti, P. The TRPA1 channel in inflammatory and neuropathic pain and migraine. Rev Physiol Biochem Pharmacol. 167, 1-43 (2014).
- Liu, X., Gong, R., Peng, L., Zhao, J. Toll-like receptor 4 signaling pathway in sensory neurons mediates remifentanil-induced postoperative hyperalgesia via transient receptor potential ankyrin 1. Mol Pain. 19, 17448069231158290(2023).
- Sahoo, S. S., et al. Transient receptor potential ankyrin1 channel is endogenously expressed in T cells and is involved in immune functions. Biosci Rep. 39 (9), BSR20191437(2019).
- Zeng, D., et al. TRPA1 deficiency alleviates inflammation of atopic dermatitis by reducing macrophage infiltration. Life Sci. 266, 118906(2021).
- Mukherjee, T., Tung, K. S., Jena, P., Goswami, C., Chattopadhyay, S. Upregulation, functional association, and correlated expressions of TRPV1 and TRPA1 during telmisartan-driven immunosuppression of T cells. Immunol Invest. 53 (4), 622-639 (2024).
- Yin, C., et al. CXCL5 activates CXCR2 in nociceptive sensory neurons to drive joint pain and inflammation in experimental gouty arthritis. Nat Commun. 15 (1), 3263(2024).
- Yin, C., et al. IL-33/ST2 induces neutrophil-dependent reactive oxygen species production and mediates gout pain. Theranostics. 10 (26), 12189-12203 (2020).
- Schumacher, M. A. Peripheral neuroinflammation and pain: How acute pain becomes chronic. Curr Neuropharmacol. 22 (1), 6-14 (2024).
- Koivisto, A., et al. TRPA1: A transducer and amplifier of pain and inflammation. Basic Clin Pharmacol Toxicol. 114 (1), 50-55 (2014).
- Chen, C., et al. TRPA1 triggers hyperalgesia and inflammation after tooth bleaching. Sci Rep. 11 (1), 17418(2021).
- Becker, G., Fialho, M. F. P., Brum, E. S., Oliveira, S. M. K. Kinin B (2) receptor mediates cisplatin-induced painful peripheral neuropathy by intracellular kinase pathways and TRPA1 channel sensitisation. Pharmaceuticals (Basel). 16 (7), 959(2023).
- Gadepalli, A., et al. Loperamide, a peripheral mu-opioid receptor agonist, attenuates chemotherapy-induced neuropathic pain in rats. Int Immunopharmacol. 124 (Pt B), 110944(2023).
- Gadepalli, A., et al. Peripheral mu-opioid receptor activation by dermorphin [d-arg2, lys4] (1-4) amide alleviates behavioral and neurobiological aberrations in rat model of chemotherapy-induced neuropathic pain. Neurotherapeutics. 21 (1), e00302(2024).
- Giniatullin, R. Ion channels of nociception. Int J Mol Sci. 21 (10), 3553(2020).
- Martínez-Rojas, V. A., et al. Interaction of NHE1 and TRPA1 activity in DRG neurons isolated from adult rats and its role in inflammatory nociception. Neuroscience. 465, 154-165 (2021).
- Ummadisetty, O., et al. Dermorphin [d-arg2, lys4] (1-4) amide alleviates frostbite-induced pain by regulating TRP channel-mediated microglial activation and neuroinflammation. Mol Neurobiol. 61 (8), 6089-6100 (2024).
- Vitale, R. M., De Petrocellis, L., Amodeo, P. An updated patent review of TRPA1 antagonists (2020 - present). Expert Opin Ther Pat. 34 (5), 315-332 (2024).
- Balestrini, A., et al. A TRPA1 inhibitor suppresses neurogenic inflammation and airway contraction for asthma treatment. J Exp Med. 218 (4), e20201637(2021).
- Gupta, R., et al. Structural basis of TRPA1 inhibition by hc-030031 utilizing species-specific differences. Sci Rep. 6, 37460(2016).
- Mukhopadhyay, I., et al. Transient receptor potential ankyrin 1 receptor activation in vitro and in vivo by pro-tussive agents: Grc 17536 as a promising anti-tussive therapeutic. PLoS One. 9 (5), e97005(2014).
- Bamps, D., et al. TRPA1 antagonist ly3526318 inhibits the cinnamaldehyde-evoked dermal blood flow increase: Translational proof of pharmacology. Clin Pharmacol Ther. 114 (5), 1093-1103 (2023).
- Terrett, J. A., et al. Discovery of TRPA1 antagonist gdc-6599: Derisking preclinical toxicity and aldehyde oxidase metabolism with a potential first-in-class therapy for respiratory disease. J Med Chem. 67 (5), 3287-3306 (2024).
- Chen, J., et al. Selective blockade of TRPA1 channel attenuates pathological pain without altering noxious cold sensation or body temperature regulation. Pain. 152 (5), 1165-1172 (2011).
- Chen, H., Terrett, J. A. Transient receptor potential ankyrin 1 (TRPA1) antagonists: A patent review (2015-2019). Expert Opin Ther Pat. 30 (9), 643-657 (2020).
- Mesch, S., et al. Discovery of bay-390, a selective CNS penetrant chemical probe as transient receptor potential ankyrin 1 (TRPA1) antagonist. J Med Chem. 66 (2), 1583-1600 (2023).
- Sałat, K., Filipek, B. Antinociceptive activity of transient receptor potential channel trpv1, trpa1, and trpm8 antagonists in neurogenic and neuropathic pain models in mice. J Zhejiang Univ Sci B. 16 (3), 167-178 (2015).
- Gyamfi, O. A., Bortey-Sam, N., Donkor, A. B., White, C. W., Logue, B. A. Analysis of TRPA1 antagonist, a-967079, in plasma using high-performance liquid chromatography tandem mass-spectrometry. J Pharm Anal. 10 (2), 157-163 (2020).
- Trevisan, G., et al. Novel therapeutic strategy to prevent chemotherapy-induced persistent sensory neuropathy by TRPA1 blockade. Cancer Res. 73 (10), 3120-3131 (2013).
- Liu, Z., et al. Liquiritin, a novel inhibitor of TRPV1 and TRPA1, protects against LPS-induced acute lung injury. Cell Calcium. 88, 102198(2020).
- Hernández-Cruz, E. Y., Silva-Islas, C. A., Maldonado, P. D., Pedraza-Chaverri, J., Carballo-Villalobos, A. I. Antinociceptive effect of garlic, garlic preparations and derivative compounds. Eur J Pain. 26 (5), 947-964 (2022).
- Petitjean, H., et al. Trp channels and monoterpenes: Past and current leads on analgesic properties. Front Mol Neurosci. 15, 945450(2022).
- Xiang, L., et al. Network pharmacology-based research uncovers cold resistance and thermogenesis mechanism of Cinnamomum cassia. Fitoterapia. 149, 104824(2021).
- Wang, P., et al. Cinnamaldehyde ameliorates vascular dysfunction in diabetic mice by activating Nrf2. Am J Hypertens. 33 (7), 610-619 (2020).
- Zou, B., et al. Berberine alleviates gastroesophageal reflux-induced airway hyperresponsiveness in a transient receptor potential A1-dependent manner. Evid Based Complement Alternat Med. 2022, 7464147(2022).
- Yu, M., et al. Ligustrazine mitigates chronic venous disease-induced pain hyperalgesia through desensitization of inflammation-associated TRPA1 activity in DRG. J Ethnopharmacol. 298, 115667(2022).
- Lee, G., et al. Identification and characterization of saikosaponins as antagonists of transient receptor potential A1 channel. Phytother Res. 34 (4), 788-795 (2020).
- Ruan, Y., et al. Water extract of Notopterygium incisum alleviates cold allodynia in neuropathic pain by regulation of TRPA1. J Ethnopharmacol. 305, 116065(2023).
- Fallon, M. T., et al. Cancer treatment-related neuropathic pain: Proof of concept study with menthol--a TRPM8 agonist. Support Care Cancer. 23 (9), 2769-2777 (2015).
- Chukyo, A., et al. Oxaliplatin-induced changes in expression of transient receptor potential channels in the dorsal root ganglion as a neuropathic mechanism for cold hypersensitivity. Neuropeptides. 67, 95-101 (2018).