We presenteren een 3D-glioblastoommigratiemodel met behulp van door patiënten afgeleide magnetische gliomasferen, gegenereerd uit nieuw gediagnosticeerde en terugkerende tumoren. Dit platform maakt het mogelijk om patiëntspecifieke migratiedynamiek te visualiseren en de therapeutische effectiviteit te beoordelen. De assay kan na migratie worden gemultiplexed om eiwitlokalisatie en expressiepatronen te evalueren.
Methodenartikel
Reproducerbare 3D glioblastoom migratietest met magnetische nanodeeltjesgemedieerde sferoidlokalisatie onder hypoxische omstandigheden
In dit artikel
Samenvatting
Samenvatting
We beschrijven een reproduceerbare 3D-migratietest om het migratie- en invasieve potentieel van patiëntafgeleide glioblastoomgliomasferen uit nieuw gediagnosticeerde en terugkerende tumoren onder klinisch relevante hypoxische aandoeningen te modelleren. Gliomasferen van uniforme grootte worden overgebracht op een dunne laag extracellulaire matrix en geco-cultureerd met magnetische ijzeroxide-nanodeeltjes, waardoor hun gecentraliseerde lokalisatie binnen kweekputten mogelijk wordt gemaakt door plaatsing op een magnetische plaathouder. De opname van magnetische ijzeroxide-nanodeeltjes op zaaien maakt precieze, gelokaliseerde beeldvorming van individuele patiëntafgeleide gliomasferen mogelijk via een zachte magnetische kracht en optimaliseert geautomatiseerde beeldverwerkingspijplijnen door positionele variabiliteit te verminderen. Deze assay ondersteunt gedetailleerde studie van glioblastoommigratiegedrag in een fysiologisch relevante microomgeving en maakt directe vergelijking mogelijk van invasief potentieel en migratiegedrag tussen nieuw gediagnosticeerde en recidiverende patiëntafgeleide gliomasferen. De methode is compatibel met live cell imaging en multiplexed analyse en biedt een schaalbaar platform voor preklinisch onderzoek naar glioblastoommigratie, invasief potentieel en therapeutische respons.
Inleiding
Glioblastoom blijft een van de belangrijkste uitdagingen in de neuro-oncologie. Deze ziekte wordt veroorzaakt door uitgebreide heterogeniteit tussen en binnen patiënten, robuuste ontwijking van de reactie op standaardzorg, weerstand tegen apoptotische inductie en opmerkelijke plasticiteit als reactie opomgevingsomstandigheden. Meer recentelijk heeft de complexiteit van de tumormicroomgeving (TME) veel aandacht gekregen, met name de dynamische aard van gliomstamachtige cellen (GSC's), die van fenotype en celtoestand kunnen wisselen als reactie op micro-omgevingsveranderingen 2,3. Deze fenotypische plasticiteit bevordert tumorprogressie en draagt bij aan onvermijdelijk recidief ondanks agressieve standaardbehandeling in de frontlinie. Chirurgische resectie blijft de meest effectieve interventie om de patiëntprognose te verbeteren, maar vanwege de sterk infiltratieve en microscopische invasieve aard van glioblastoom is volledige tumorverwijdering niet haalbaar4. Het modelleren van de invasieve dynamiek van patiëntmonsters over verschillende ziektestadia en bij tumorspecifieke aandoeningen zal een dieper begrip van de dynamische en plastische capaciteit van glioblastoommigratie bevorderen en zo helpen om effectieve nieuwe behandelmethoden te identificeren5. Daarom is het ontwikkelen van fysiologisch relevante modellen die patiëntspecifieke invasie- en migratiedynamiek vastleggen essentieel om preklinisch onderzoek te versterken en deze doelstellingen te bevorderen. Bovendien zijn dergelijke modellen cruciaal voor het evalueren van de effectiviteit van nieuwe anti-tumortherapieën, die in theorie ontwikkeld zouden kunnen worden voor gebruik in combinatie met chirurgie om residuele microscopische invasie te voorkomen en uiteindelijk het risico op recidieven te verminderen. De complexiteit van glioblastoom rechtvaardigt de noodzaak van geavanceerde complexe preklinische modellen die belangrijke tumorarchitectuurkenmerken kunnen recapituleren. Patiëntafgeleide driedimensionale modellen krijgen meer aandacht vanwege hun vermogen om cel-tot-cel interacties te behouden, gradiënten van voedingsstoffen, zuurstof en therapeutische middelen te behouden, en de structurele integriteit van native tumoren te repliceren 6,7. Het visualiseren van deze 3D-modellen brengt echter technische uitdagingen met zich mee, waaronder sferoidpositionering, beeldvariabiliteit en reproduceerbaarheid van assay.
Hier beschrijven we een patiëntspecifiek 3D-glioblastommigratiemodel uitgevoerd onder hypoxische omstandigheden, waarmee migratiedynamiek kan worden onderzocht in monsters afkomstig uit verschillende tumorsubtypes en ziektestadia van patiënten, waaronder therapie-naïeve en terugkerende tumormonsters. Dit platform maakt het mogelijk om differentiële responsen op therapeutische middelen te beoordelen en ondersteunt multiplex postmigratieanalyse via beeldsegmentatie, waardoor kwantitatieve evaluatie van migratiedynamiek, sferoïde groei en eiwitexpressie mogelijk is. De opname van magnetische ijzeroxide-nanodeeltjes maakt consistente centralisatie van sferoïden binnen elke put mogelijk door het toepassen van een zachte magnetische kracht8. Sferoïden die in standaard multiwellplaten zijn gekweekt, vertonen vaak de neiging om naar de boorgatranden te drijven, een gedrag waarvan wordt aangenomen dat het wordt beïnvloed door de vorming van vloeibare menisci en perifere verdamping, vooral in putten aan de plaatrand 9,10,11. Deze fenomenen introduceren beeldvormingsartefacten en achtergrondruis, vooral tijdens transmissie van licht, wat de timelapse-beeldvorming van invasiedynamiek kan bemoeilijken. In tegenstelling tot 2D-monolaagculturen, waarbij gebieden met uniforme celdichtheid kunnen worden geselecteerd voor beeldvorming, vereisen invasie-assays van enkele sferoiden nauwkeurige en consistente positionering van het gehele sferoïde en migratiegebied binnen het beeldvormingsveld. Dit voegt een extra uitdaging met zich mee, omdat drift of onregelmatige positionering binnen de put de datakwaliteit en reproduceerbaarheid kan aantasten. Daarom minimaliseert het consequent centraliseren van sferoïden binnen multiwellplaten deze uitdagingen en verbetert het niet alleen de beeldkwaliteit, maar ook de experimentele consistentie, beeldverwerkingspijplijnen en analyses na migratie. Daarnaast bevordert het initiëren van sferoïdeculturen bij uniforme celdichtheden in deze gespecialiseerde sferoïdekweekplaten reproduceerbare sferoïdevorming, waardoor de variabiliteit in morfologie, groeisnelheid en structurele integriteit verminderd10,11. In praktische termen variëren typische gliomasferen die in deze assays worden gebruikt tussen 150 en 300 μm in diameter, en vormen ze reproduceerbaar onder gestandaardiseerde celdichtheden. De kweek wordt onderhouden onder hypoxische omstandigheden (1%–2%O2).
Het hier beschreven platform ondersteunt formaten met matige tot hoge doorvoersnelheid, zoals 96-well platen, waardoor meerdere replicaties per patiëntmonster mogelijk zijn, en is schaalbaar voor drugsscreening of multi-condition assays12 . Het optimaliseren van de positionering van de sferoiden en kweekcondities is daarom essentieel om de robuustheid en klinische relevantie van 3D-preklinische modellen die worden gebruikt om het invasieve potentieel van gliomen en andere dynamische cellulaire processen te bestuderen, te vergroten.
Protocol
Patiënten-afgeleide glioblastoomcellen werden geleverd door Erasmus MC, Rotterdam, Nederland, en het Hospital for Sick Children (Toronto, Canada). De primaire primaire patiëntenmonsters voor deze lijnen werden verkregen als onderdeel van routinematige resecties van patiënten onder hun geïnformeerde toestemming (ethische goedkeuringsnummers, MEC-2013-090, 0020010404).
1. Voorbereiding van magnetische patiëntafgeleide gliomasferen (Figuur 1)
- Minimaal 30 minuten voor de gliomasfeerdissociatie moet voldoende celloskoppelingsenzymmedium en gliomasfeermedium voor het experiment worden gebruikt (meestal 1 mL per confluent T75-kolf) en beide op kamertemperatuur gebracht.
- Onder steriele omstandigheden verzamel gliomasferen uit de kweekkolf door voorzichtige aspiratie met een 10 mL serologische pipet en pipethulp, en breng deze over in een 15 mL conische buis. Centrifugeer op 300 x g gedurende 3 minuten. Gooi het supernatant voorzichtig weg zonder de celpellet te verstoren.
- Suspendeer de pellet opnieuw in 1 mL celloskoppelingsenzym medium bij kamertemperatuur en incubeer gedurende 10–15 minuten, waarbij je elke 2-3 minuten voorzichtig beweegt door te pipetteren met een P1000-pipet om de dissociatie in een enkele celsuspensie te vergemakkelijken.
- Voeg een gelijke hoeveelheid gliomasfeer-media toe om het enzym te deactiveren. Centrifugeer de single-cel suspensie op 300 x g gedurende 3 minuten bij 37 °C, en suspendeer de celpellet vervolgens voorzichtig in 3–5 mL volledig gliomasfeermedium, afhankelijk van de grootte van de celpellet, waarbij het exacte volume wordt genoteerd dat voor de volgende celtelling wordt gebruikt.
OPMERKING: De tijd van enzymmedium-incubatie hangt grotendeels af van de grootte van de gliomasferen in de kweek; altijd visueel inspecteren vóór gebruik en dienovereenkomstig passen. - Neem een representatieve 10 μL aliquot van de single cell suspension en meng voorzichtig met 10 μL Trypan Blue in een 1,5 mL microcentrifugebuis. Laad 10 μL van dit mengsel in een hemocytometer of een geautomatiseerde celteller om levensvatbare cellen te bepalen.
- Zaad 500 enkele glioblastoomcellen per put in een ultra-low attachment 96-well spheroïde microplaat. De optimale zaaidichtheid kan variëren tussen de patiëntenmonsters.
- Voeg 1 μg/mL propidiumjodide (PI) en 0,05 μL ijzeroxide-nanodeeltjes per put toe (gebruik bijvoorbeeld 1,5 μL magnetische nanodeeltjes voor 20 sferoïden, wat overeenkomt met ongeveer 10.000 enkele cellen). Zorg ervoor dat ijzeroxide-nanodeeltjes worden gehomogeniseerd vóór toevoeging door op en neer te pipetteren met een P100 ingesteld op 100 μL.
OPMERKING: Het volume ijzeroxide-nanodeeltjes dat wordt gebruikt kan worden geoptimaliseerd afhankelijk van de gebruikte cellijn, maar in dit geval was 1,5 μL per 10.000 cellen voldoende om de sferoïden centraal te lokaliseren. Deze opstelling zorgt voor een consistente sferoidgrootte over de patiëntenmonsters, waardoor directe vergelijking van invasie- en groeidynamiek tijdens de invasietest mogelijk wordt. - Incubeer platen gedurende 48 uur in een bevochtigde celkweekincubator bij 37 °C, 5%CO2 en 21%O2 om de vorming van de gliomasfeer mogelijk te maken.
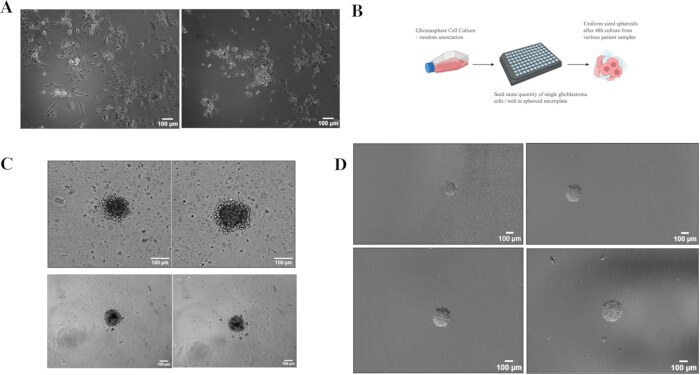
Figuur 1: Uniform grote en gelokaliseerde gliomasferen co-gekweekt met ijzeroxide-nanodeeltjes. (A) Gliomasferen afkomstig van nieuw gediagnosticeerde en terugkerende patiëntentumoren vertonen dubbele fenotypes en willekeurige cel-tot-cel associaties. (B) Schematische weergave van de vorming van een sferoïde van uniforme grootte binnen 48 uur na het zaaien. (C) Doorgelatene lichtbeelden van gliomasferen gekweekt gedurende 48 uur in een ronde bodem sferoïde microplaat zonder (bovenpaneel) en met (onderpaneel) ijzeroxide-nanodeeltjes. Let op het donkere, gevlekte uiterlijk van gliomasferen met ijzeroxide-nanodeeltjes. (D) Gliomasfeerpositionering die willekeurige lokalisatie toont van gliomasferen gekweekt zonder nanodeeltjes (boven) vergeleken met consistente centrale lokalisatie van die met nanodeeltjes gekweekt (onder), wat resulteert in minder achtergrondruis en verbeterde beeldkwaliteit. Schaalbalk = 100 μm. Schema gemaakt met Biorender.com. Klik hier om een grotere versie van deze figuur te bekijken.
2. Voorbereiding van extracellulaire matrix (ECM) gecoate multi-well platen (1 uur voor migratieassay)
- Aliquot en bewaar de ECM volgens de instructies van de fabrikant. Ontdooi een 1 mL aliquot ECM (1:10 verdunning) langzaam op ijs bij 4 °C. Bereid direct voor het plateren een eindwerkoplossing voor op 1:100 (v/v) door een verdere 1:10 verdunning van de 1:10 kolf uit te voeren in ijskoud volledig neurosfeermedium. Houd de verdunde ECM altijd op ijs om voortijdige polymerisatie te voorkomen. Houd deze verdunning altijd op ijs, want ECM zal snel polymeriseren bij kamertemperatuur.
- Doseer 50 μL van de 1:100 ECM werkoplossing in elke put van een 96-put heldere, vlakke bodem of μTransparante bodemplaat. Incubeer de plaat bij 37 °C gedurende minstens 1 uur zodat de ECM kan uitharden en in elke put een dunne matrix vormt.
- Na incubatie wordt zorgvuldig 30 μL uit elke put verwijderd, waarbij 20 μL gepolymeriseerde ECM (eindconcentratie 1:100 v/v) de bodem van elke put bedekt. De ECM moet gedurende deze periode zo koud mogelijk worden gehouden, omdat deze snel polymeriseert bij kamertemperatuur. De beeldplaat kan ook vooraf worden gekoeld en tijdens dit proces op ijs worden bewaard.
3. Opstelling van beeldplaatjes en live cel imaging
- Op de dag van de assay (48 uur na het zaaien van de gliomasfeer) plaats je de met ECM gecoate microplaat op een magnetische 96-well plaataandrijving, zoals weergegeven in Figuur 2B,C. Steriliseer de magnetische plaat door te spuiten met 70% ethanol en droog te vegen, niet weken maken.
- Controleer sferoïden visueel op kwaliteit en uniformiteit. Met een pipet wordt 80 μL medium met de enkele gliomasfeer uit elke put overgebracht en voorzichtig op de plaat met het ECM-oppervlak gepipet.
OPMERKING: Voor bijzonder grote sferoïden moet je erop letten dat schuifspanning tijdens de overdracht wordt geminimaliseerd; dit kan worden bereikt door 1-2 mm van de punt van een P100-pipettip af te snijden met een schaar om de opening te verbreden, waardoor mechanische schade wordt verminderd. Zorg ervoor dat de schaar vóór gebruik onder UV is gesteriliseerd. Het belangrijkste is om de toevoeging van luchtbellen te minimaliseren, omdat dit een grote impact heeft op de beeldvorming. - Behandel sferoïden volgens het experimentele ontwerp. Bereid de behandelingsoplossingen voor bij de gewenste concentraties in volumes van 20 μL, en voeg deze 20 μL toe aan elke put met de sferoïden om een uiteindelijk volume van 100 μL te bereiken.
OPMERKING: Het op deze manier behandelen van gliomasferen vermindert pipetten en minimaliseert het risico op het verwijderen van de sferoïden uit de put. - Breng de plaat, terwijl deze op de magnetische aandrijving blijft, over naar het beeldvormingssysteem voor live beeldvorming. Wees voorzichtig bij het verwijderen van de plaat uit de magnetische houder en houd hem zo recht mogelijk om beweging van de sferoïden vanuit het midden van de put te minimaliseren.
- Voer live beeldvorming uit met een programmeerbare omgekeerde live-celmicroscoop uitgerust met een Plan-Apochromat 5x/0,35 NA-objectief, een 0,5x buislens, een Axiocam 506-camera (binning =2) en gebruik van Zen 3.1 (Blue Edition) software. Pixel-naar-micron kalibratie is ingebouwd in het beeldvormingssysteem en wordt automatisch door de software afgehandeld, waardoor er geen handmatige kalibratie nodig is. In dit geval voert u beeldvorming uit met een vergroting van 2,5x (5x objectief met een 0,5x buislens), waarbij de camera wordt gebunt op 2 x 2, wat resulteert in een kalibratie van 1 pixel = 3,645 μm.
- Stel de omgevingsregelaars zo aan dat er 1% zuurstof en 5%CO-2 is met een zeer lage luchtstroom van de gasmenger. Dit helpt ongewenste verdamping te voorkomen wanneer de binnenkomende lucht door een bevochtigingsfles wordt geleid.
- Om gliomasfeerverplaatsing tijdens de initiële beeldvorming te voorkomen, wordt de versnelling en snelheid van de microscoop tot 10% verminderd, zodat beweging over het ECM-oppervlak vóór de sferoidadhesie wordt geminimaliseerd.
- Laad voorzichtig de multiwellplaat zonder magnetische aandrijving in de microscoop. Indien van toepassing, zorg ervoor dat het plaatmateriaal in de software is geselecteerd om de optiek te laten afstemmen.
- Gebruik een geschikte vergroting die het gehele invasieve gezichtsveld omvat. Zo werden op Cell Discoverer 7 het 5x objectief en de 0,5x buislens geselecteerd om een vergroting van 2,5x te bereiken.
- Lokaliseer elke gliomasfeer, focus en wijs een positie toe die de x-y-z-coördinaten bevat. Hardware-autofocussen moet, indien beschikbaar, worden gebruikt om consistente beeldvorming van hetzelfde brandpuntsvlak gedurende het hele experiment te waarborgen.
- Controleer zowel het kanaal fasegradiëntcontrast (doorgetrokken licht) als het fluorescentiekanaal en pas de belichtingstijd en lichtintensiteit aan om te zorgen dat er geen overbelichting is. Exciteer propidiumjodide (dode cellenkleuring) met een 590 nm LED. Verzamel emissie met een quad banddoorlaatfilter, waarmee het golflengtegebied van 618–756 nm wordt vastgelegd. Dit kan verschillen bij andere microscopen, afhankelijk van de filters en de aanwezige lichtbron.
- Stel in om elk uur foto's te maken gedurende het gewenste aantal dagen.
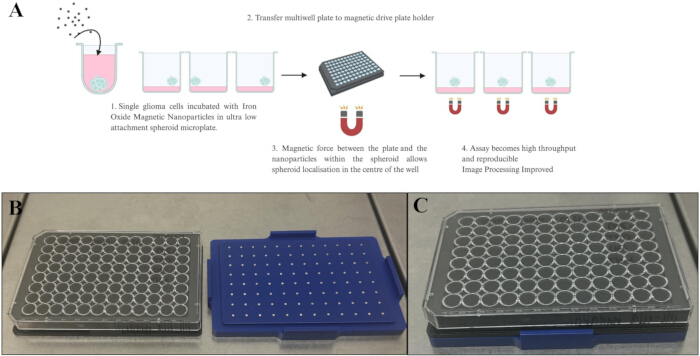
Figuur 2: Beschrijving van de opstelling van de beeldplaat. (A) Schematisch diagram dat het beschreven protocol weergeeft. (B) Afbeelding van de multiwellplaat naast de magnetische plaataandrijving en eenvoudige montage van de multiwellplaat bovenop de magnetische aandrijving, waarbij elke individuele magneet in het midden van elke put is gelokaliseerd, wat de lokalisering van de gliomasfeer vergemakkelijkt. Schema gemaakt met Biorender.com. Klik hier om een grotere versie van deze figuur te bekijken.
4. Fixatie van sferoïden na invasietest voor gemultiplexeerde eiwitanalyse (Figuur 3)
- Na voltooiing van de invasietest spoel je elke put met 100 μL PBS. Dit brengt het volume op 200 μL/put. Herhaal deze stap door vervolgens 100 μL PBS te verwijderen en te vervangen door nog eens 100 μL PBS.
- Verwijder voorzichtig 200 μL medium, voeg vervolgens 100 μL 4% paraformaldehyde (PFA) toe aan elke put en incubeer 10 minuten op kamertemperatuur onder een afzuigkap.
VOORZICHTIG: Paraformaldehyde is een giftige chemische stof en er moet voorzichtigheid worden betracht om het risico of blootstelling te minimaliseren. - Na de fixatie verwijder je de PFA uit elke put en was je 3 keer met PBS door de PFA te verwijderen en telkens 100 mL PBS toe te voegen.
- Voeg immunokleuring toe volgens de instructies van de fabrikant. Alternatief kunt u voor langdurige opslag natriumazide (0,02%) toevoegen aan het PBS om de steriliteit te behouden en de plaat afdichten met een transparante film. Bewaar op 4 °C tot het nodig is.
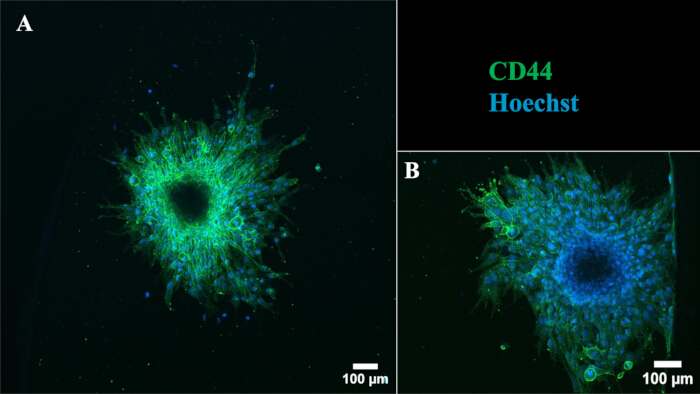
Figuur 3: Representatieve eiwitanalyse na migratietest van gliomasferen die zich in het centrum versus aan de rand van de put bevinden. Laserscanning confocale microscopie van recidiverende gliomasferen geïnomiseerd met een antilichaam gericht op de Glioblastoma stamcelmarker CD44 postmigratietest. CD44-FITC (groen) en Hoechst (kernen, blauw). Schaalbalk = 100 μm. Pijlpuntjes geven de rand van de put aan. Klik hier om een grotere versie van deze figuur te bekijken.
5. Beeldverwerkingspijplijn van patiëntafgeleide migratiedynamiek
OPMERKING: Uit ervaring met onze dataset raden wij aan dat de processor een multicoreprocessor heeft met een hoge basiskernfrequentie en een aanzienlijke hoeveelheid geheugen, aangezien de WOMA-verwerking sterk past bij een hoog aantal kernen en afhankelijk van de grootte van de dataset het beschikbare geheugen zal benutten. Gebruikte en aanbevolen specificatie zoals hieronder vermeld. Let op: GPU-verwerking wordt niet gebruikt door deze workflow.
CPU: >= 6 cores | >= 2 GHz (aanbevolen); 32 cores | 2,1 GHz (gebruikt)
Geheugen: > 32 GB (aanbevolen); 192 GB (gebruikt)
- Open Fiji13 [momenteel wordt het meegeleverde ImageJ-win64.exe uitvoerbare bestand gebruikt voor analyse]. Open Image door te navigeren naar – Bestand > Open Select multi-kanaal, multi-scene time-lapse imagebestand (.czi) opent op de Fiji Interface (als je het script gebruikt, is dit het Aanvullende Bestand 1).
- Selecteer de afbeeldingen die in de GUI vereist zijn. Het werkt het beste als de meest invasieve gliomasferen in het experiment de classifier aanvankelijk trainen (dus control well – DMSO), omdat deze afbeelding details geeft over elk segment van de afbeelding, bijvoorbeeld het uiterlijk van invasie/migrerende cellen versus sferoïde versus achtergrond.
- Navigeer vervolgens naar Image > Color > Split Channels - dit splitst het beeld in twee kanalen – in dit geval één met propidiumjodiedkleuring en de andere met doorgelatend licht.
- Selecteer het kanaal voor segmentatie – in dit geval het uitgezonden lichtkanaal dat de migratiedynamiek vertegenwoordigt. Navigeer naar Plugins > Segmentatie > Trainable WEKA segmentatie14.
- Hernoem de twee standaardklassen als: Klasse 1: Gliomasfeer; Klasse 2: Invasie/Migratie. Voeg een derde klasse toe genaamd Achtergrond (optioneel maar aanbevolen) door naar Instellingen > Nieuwe klasse > Achtergrond te navigeren.
- Gebruik de Freeline-tool om trainingsgebieden binnen elke afbeeldingsstapel en klasse te annoteren door te tekenen op de representatieve regio's, dat wil zeggen, teken een werveling in de sferoide en klik op Voeg aan sferoide , herhaal dit voor het invasiegebied en de achtergrond totdat alle regio's in elke klasse zijn weergegeven. Train de classifier door op Train Classifier te klikken. Extra afbeeldingen kunnen worden geannoteerd om de classifier verder te trainen en de nauwkeurigheid te verbeteren indien nodig.
- Wanneer voldoende, sla dan het getrainde classifiermodel op met een bestandsnaam zoals CellLine_Treatment_Classifier.model. Sluit het segmentatievenster als het klaar is.
- Voor nieuwe afbeeldingen met deze opgeslagen classifier ga je naar Plugins > Segmentation > Trainable WEKA segmentation >Load Classifier> Open Saved Classifier CellLine_Treatment_Classifier (dit slaat een .model - bestand op. Het is een vereiste voor Aanvullend Dossier 2 om dit klaar te hebben voordat het script wordt uitgevoerd. Wanneer het script wordt gestart, moet het juiste voorbeeldbestand worden geselecteerd).
- Navigeer naar Get Probability op de Trainable WEKA segmentatie-interface - Dit levert kanskaarten op voor elke geselecteerde klasse, d.w.z. Gliomasfeer, Invasie/Migratie, Achtergrond, die aangeven dat elke pixelwaarde die aan de afbeelding is toegewezen tot de specifieke klasse of regio van de afbeelding behoort. Dit genereert een bestand van 3 afzonderlijke afbeeldingen van kanskaarten (Gliomasfeer, Invasie, Achtergrond) met een dynamisch bereik van 32 bits voor elke afbeelding.
- Selecteer de waarschijnlijkheidskaart die overeenkomt met Invasie/Migratie. Navigeer naar Image > hyperstacks > de dimensionaliteit te verminderen. Selecteer Bron behouden.
- Kanalen uitvinken maar frames behouden – dit reduceert de kaart in de loop van de tijd tot één kanaal – in dit geval de invasie-waarschijnlijkheidskaart. Selecteer de waarschijnlijkheidskaart die overeenkomt met de gliomasfeer.
- Herhaal stappen 5.10-5.11. Er zullen nu twee waarschijnlijkheidskaarten zijn die overeenkomen met het oorspronkelijke doorgegeven licht timelapse-beeld voor één scène van de migratie- en het sferoidale gebied. Sla beide op met de volgende bestandsnaamconventie: ImageName_Scene_Gliomasphere_ProbabilityMap en ImageName_Scene_Invasion_Probability Map in een map die overeenkomt met het geselecteerde experiment, namelijk CellLine_Treatment.
- Stel drempel in om een binair masker te maken: Ga naar Afbeelding > Pas > drempel aan. Kies een drempelmethode (bijv. Yen, Otsu). Houd de geselecteerde methode hetzelfde voor alle bewerkte afbeeldingen.
- Navigeer om > metingen te analyseren. Selecteer de gewenste metingen; Vink gebied, geïntegreerde dichtheid en gemiddelde en druk dan op OK. Navigeer naar Analyseren > Deeltjes Analyseren. Voor Invasie/Migratie, setgrootte: 0 – oneindig; Circulariteit: 0,00 – 1,00. Voor gliomasferen, vaste grootte: typisch 1500 – Oneindig (pas aan op basis van de sferoidgrootte in cellijn/behandeling - controlesferen worden vanzelf groter); Circulariteit: 0,05 – 1,00. Selecteer pixelunits voor allemaal.
- Navigeer naar Analyze>Analyze Pixels> Toon: Selecteer maskers. Nadat de maskers zijn gegenereerd, controleer je het gesegmenteerde interessegebied over de hele timelapse-stack om nauwkeurige tracking te garanderen. Pas binaire bewerkingen toe via Process > Binary > ... (bijvoorbeeld het selecteren van Vulgaten bij het verfijnen van het sferoidmasker), gevolgd door het navigeren naar Analyseren > Deeltjes analyseren > Tonen > Niets selecteren en Samenvatten. Dit geeft een samenvattingsvenster van geselecteerde metingen.
- Sla de resultaten op door te klikken op Bestand > Opslaan als > Resultaten. Sla op als een .csv bestand. Open in een spreadsheet of andere analysesoftware.
- Herhaal de drempel- en deeltjesanalyse voor alle gesegmenteerde klassen (bijv. gliomasferen, invasie) om de respectievelijke metingen over de tijd te verkrijgen. De output .csv biedt ruimte (in pixels of micron, afhankelijk van kalibratie) over tijd.
- Selecteer het fluorescentiekanaal dat PI-kleuring vertegenwoordigt (bijv. kanaal 2). Pas drempel en deeltjesanalyse toe zoals hierboven om dode cellen te identificeren. Gebruik de Calculator Plus-plugin om maskers van PI-positieve cellen te vermenigvuldigen met het gliomasfeermasker en apart met de invasiemaskers om dode cellen voor de specifieke regio's te kwantificeren.
- Exporteer maskers, kanskaarten en samenvattingstabellen als TIFF- en CSV-bestanden met duidelijke, beschrijvende bestandsnamen voor documentatie en downstream analyse. Bij gebruik van het script dat in de aanvulling is geleverd, is de volgende naamgevingsconventie te vinden: bijvoorbeeld FileName_Scene#_(PI-)Invasion_Summary.csv (gegevens voor objecten in de tijd), FileName_Scene#_(PI-)Invasion.zip (gebieden gedefinieerd met analysedeeltjes).
OPMERKING: Supplementair Bestand 1 genereert enkele tif-bestanden met timelapse-afbeeldingen voor elke scène. Supplementair Bestand 2 voert de WEKA pixelclassificatie uit op basis van een vooraf gedefinieerd classificatiemodelbestand op alle scènes en alle beelden in elke tijdsverloop, en biedt waarschijnlijkheidskaarten voor de gliomasfeer en ook voor de invaderende cellen. Supplementair Bestand 3 zal alle beelden segmenteren in gliomasferen en invasiecellen en de bedekte gebieden evenals de verdeling van gebieden bedekt met dode (PI-positieve) cellen kwantificeren. Supplementary File 4 om te draaien gaat uit van een specifieke drempelmethode en ook een specifiek gebied dat geanalyseerd moet worden, terwijl Supplementary File 3 de gebruiker toestaat de drempel in te stellen en het gebied voor elke scène aan te passen. De drempel mag niet voor elke scène worden aangepast naar verschillende methoden, maar kan voor elk object op verschillende methoden worden ingesteld.
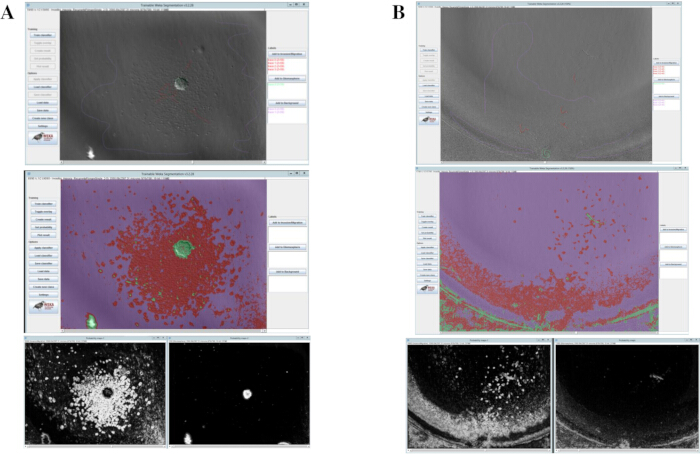
Figuur 4: Uitdaging van reproduceerbare beeldverwerking door slechte gliomasfeersegmentatie. Beeldverwerkingspijplijn met trainbare WERA-segmentatieplugin op Fiji toont (A) centraal gelokaliseerde gliomasfeer met grotere segmentatie van migratiegebied tegen de achtergrond versus (B) gliomasfeer gelokaliseerd aan de rand, resulteert in slechte beeldsegmentatie en onbruikbare replicatie. Door consistentie in gliomasfeerlokalisatie te waarborgen, verschijnt beeldverwerking over biologische replicaten zoals getoond in (A), wat de reproduceerbaarheid en automatisering van de assay aanzienlijk verbetert. Klik hier om een grotere versie van deze figuur te bekijken.
Resultaten
Met behulp van de beschreven 3D-migratietest onder hypoxische omstandigheden werden gliomasferen van terugkerende patiëntentumoren behandeld met ofwel voertuig of geneesmiddel X, en werden de invasiedynamiek elke uur gedurende 72 uur gemonitord. Figuur 5 beschrijft de Weka-segmentatieanalyse van invasiedynamiek en toont aan dat geneesmiddel X het invasieve potentieel van recidiverende gliomasferen significant vermindert in vergelijking met voertuigcontroles onder klinisch relevante hypoxische aandoeningen.
Om de impact van geneesmiddel X op stamcelkenmerken na migratie verder te beoordelen, werden gliomasferen gefixeerd en geïnomologiserd voor de expressie en lokalisatie van de glioblastoomstamcelmarker CD44, zoals weergegeven in Figuur 6. Deze gemultiplexeerde analyse faciliteert de visualisatie van migratiedynamiek en de expressie van stamcelmarkers, en biedt inzicht in hoe Geneesmiddel X zowel het invasieve potentieel als de stamachtige eigenschappen van recureurende glioblastoommodellen onder klinisch relevante hypoxische omstandigheden moduleert.
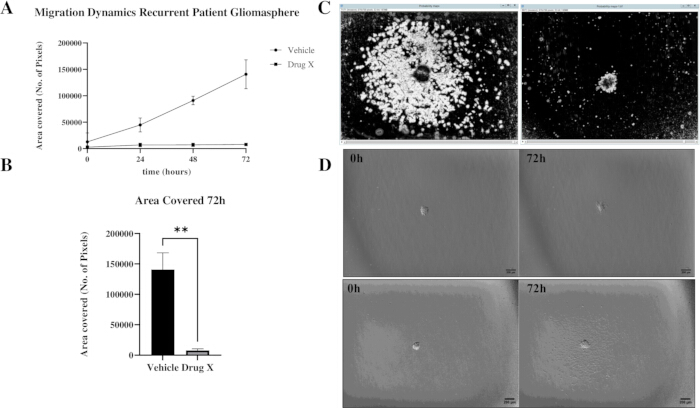
Figuur 5: Geoptimaliseerde migratie-assay benadrukt de effectiviteit van het nieuwe geneesmiddel X bij het voorkomen van recidiverende migratie van de gliomasfeer. Patiënt afgeleide recidiverende gliomasferen behandeld met vehicle of Geneesmiddel X gedurende 72 uur onder hypoxische omstandigheden. Invasiedynamiek werd elke uur vastgelegd gedurende 72 uur. (A) Vertegenwoordigende lichtbeelden van invasiedynamiek op 0 uur en 72 uur in het bovenste paneel - voertuig behandeld en onderpaneel - Geneesmiddel X behandeld. (B) Representatieve kanskaarten van het invasiegebied gebruikt in de segmentatieanalyse. (C) Recidiverende gliomasferen behandeld met Geneesmiddel X vertoonden aanzienlijk minder invasief potentieel dan met voertuigen behandelde gliomasferen. Kwantificering van het invasieve gebied na 72 uur toonde een significant verminderde invasie in met Geneesmiddel X behandelde gliomasferen, weergegeven als het totale gebied dat op het moment van fixatie werd bedekk. Gegevens geven het invasiegebied over tijd weer van n=3 onafhankelijke replicaten. De statistische significantie werd beoordeeld met behulp van een ongepaarde t-test; p < 0,005 wordt aangeduid door **. Klik hier om een grotere versie van deze figuur te bekijken.
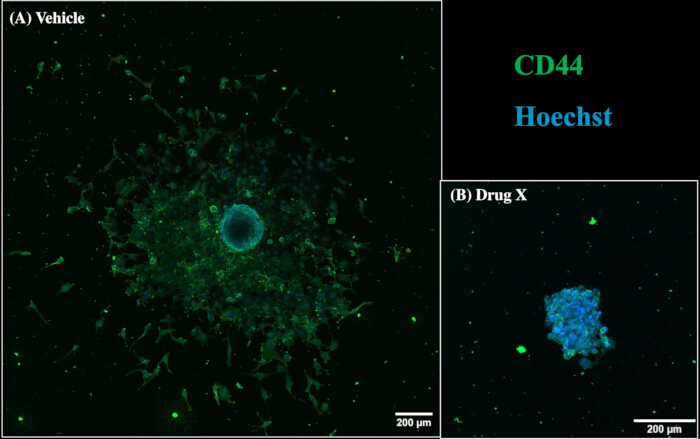
Figuur 6: Migratie en expressie van stamcelmarkers na behandeling. De gliomasferen beschreven in Figuur 5 waren na migratie gefixeerd en geïnomantiserd met een antilichaam gericht op de glioblastoomstamcelmarker CD44 na behandeling met ofwel het vehikel of Geneesmiddel X. Deze figuur toont het type gemultiplexeerde postmigratieanalyse dat kan worden uitgevoerd met standaard immunokleuringstechnieken. Afbeeldingen tonen CD44-FITC (groen) en Hoechst (kernen, blauw). Schaalbalk = 200 μm. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullend bestand 1: Het opslaan van multiscene CZI-bestanden van de microscoop als losse scènes als TIF-bestanden.Klik hier om dit bestand te downloaden.
Aanvullend Bestand 2: Het genereren van kanskaarten met behulp van een Weka-model.Klik hier om dit bestand te downloaden.
Aanvullend bestand 3: Segmentatieanalyse zonder drempel. Klik hier om dit bestand te downloaden.
Aanvullend Bestand 4: Segmentatieanalyse met drempel. Klik hier om dit bestand te downloaden.
Discussie
Het modelleren van de invasieve dynamiek van zeer agressieve tumoren zoals glioblastoom is cruciaal om ons begrip van ziekteprocessen te verbeteren en effectievere behandelstrategieën te identificeren. De complexe, adaptieve en plastische aard van glioblastoomcelmigratie vereist preklinische modellen die het dynamische gedrag van individuele gliomacellen nauwkeurig kunnen vastleggen terwijl ze migreren vanuit de centrale tumormassa. Belangrijk is dat het modelleren van deze processen over patiëntafgeleide monsters uit verschillende stadia van ziekte onderzoekers in staat stelt de uitdaging van tumorheterogeniteit beter aan te pakken en eventuele stadiaspecifieke veranderingen in invasiedynamiek te identificeren.
Gezien deze complexiteit is het redelijk aan te nemen dat preklinische modellen een gelijkwaardig niveau van verfijning moeten bezitten. Hier beschrijven we een verfijnde methode om uniforme patiëntafgeleide gliomasferen te genereren, co-gekweekt met ijzeroxide-nanodeeltjes. Deze aanpak maakt gecontroleerde lokalisatie van gliomasferen in het centrum van elke put mogelijk, waardoor geautomatiseerde live celbeeldvorming van invasiedynamiek mogelijk is. Verschillende studies hebben significante variabiliteit aangetoond in sferoïde grootte, vorm en groeikinetiek bij gebruik van conventionele 3D-kweekmethoden. Sayde en collega's toonden aan dat sferoïden brede diameterverdelingen kunnen vertonen tussen die afkomstig van ongesorteerde versus gesorteerde kankerstamcelpopulaties, wat de inherente variabiliteit in de vorming van de sferoïdenweerspiegelt 15,16. Deze heterogeniteit is ook geïdentificeerd als een belangrijke bron van reproduceerbaarheidsproblemen in op sferoiden gebaseerde drugsscreeningsassays, wat het belang van het genereren van homogene sferoidpopulaties verder benadrukt12. Deze bevindingen benadrukken de noodzaak om de vormen van sferoiden te standaardiseren voordat functionele analyses worden uitgevoerd, uitdagingen die deze methode direct aanpakt. Door zowel de grootte als de positie van de sferoïden te standaardiseren, verbetert deze methode de reproduceerbaarheid aanzienlijk en minimaliseert de variabiliteit die typisch is bij 3D-celkweeksystemen, waarbij ongelijke sferoïdevorming de downstream analyse kan beïnvloeden.
Tijdens de initiële ontwikkeling van deze assay observeerden we aanzienlijke variabiliteit in sferoidale lokalisatie over replicaten, wat het gebruik van een groot aantal putten per experiment vereiste, maar ook veel biologische replicaten om statistisch significante resultaten te verkrijgen. Dit verhoogde niet alleen de werklast aanzienlijk, maar leverde ook een aanzienlijke hoeveelheid onbruikbare data op, verminderde de assay-efficiëntie en reproduceerbaarheid. De resulterende variabiliteit weerspiegelde daarom verlies van kwantificeerbare data in plaats van verschillen in invasiegedrag. Door gliomasferen binnen elke put te centraliseren, zorgt magnetische lokalisatie ervoor dat beelden van alle replicaten consistent kunnen worden gesegmenteerd en geanalyseerd, zelfs wanneer biologische verschillen in invasiedynamiek tussen monsters worden waargenomen.
De opname van ijzeroxide-nanodeeltjes introduceert een zachte magnetische kracht die gliomasferen consequent centraliseert in alle putten, waardoor de prestaties van de beeldverwerkingspijplijn, gegevensverwerking en postmigratie-analyses aanzienlijk verbeterd worden, zonder de biologie of levensvatbaarheid van de gliomasfeer te beïnvloeden8. Een belangrijk voordeel van dit systeem is de compatibiliteit met postmigratie multiplexanalyse; bijvoorbeeld, Figuur 6 toont de analyse van de visualisatie van de glioblastoom stamcelmarker CD44, die evaluatie van stamachtige celexpressie na migratie en behandeling over patiëntmonsters mogelijk maakt. Deze mogelijkheid benadrukt het potentieel van het platform voor integratieve studies die invasieve fenotypen koppelen aan moleculaire kenmerken, een belangrijke overweging gezien de fenotypische plasticiteit van glioblastoomstamachtige cellen als reactie op micro-omgevingssignalen en hun vermogen om behandeling te ontwijken, wat onvermijdelijke tumorterugkeer bevordert.
Hoewel deze assay de reproduceerbaarheid van het visualiseren van single-spheroïde invasiedynamiek aanzienlijk verbetert, blijven er enkele cruciale beperkingen die in overweging moeten worden genomen voor toekomstige assay-optimalisatie. Matrigel is een veelgebruikt model van basalmmembraan, maar het is een complex, ongedefinieerd extracellulair matrix (ECM) substituut afkomstig van muissarcomen, dat de menselijke hersenmicro-omgeving niet volledig replicituleert17. Toekomstige optimalisatie van de assay zou hersenspecifieke ECM-modellen kunnen bevatten om de microomgeving van hersentumoren beter na te bootsen, waarvan wij denken dat het een essentiële optimalisatiestap is van in vitro herseninvasiemodellen18,19. Hoewel Matrigel een veelgebruikt model van ECM blijft, vertegenwoordigt het een niet-hersenspecifieke extracellulaire matrix die is afgeleid van muissarcoom. Als zodanig herhaalt het niet volledig de biochemische en mechanische eigenschappen van de micro-omgeving van de menselijke hersenen. Belangrijk is dat de hier beschreven magnetische lokalisatiestrategie matrixonafhankelijk is en gemakkelijk kan worden aangepast aan hersenspecifieke ECM-systemen in toekomstige studies om de fysiologische relevantie verder te vergroten.
Andere overwegingen van de assay zijn de mogelijke vereisten voor het trainen van een nieuw Weka-segmentatiemodel voor elke cellijn vanwege de heterogeniteit en variabiliteit in invasiemorfologie van het monster. Daarnaast moeten zowel zaaidichtheid als nanodeeltjesconcentratie worden geoptimaliseerd voor elke cellijn en sferoidetype om uniformiteit en levensvatbaarheid te behouden voordat er een hoge-doorvoermigratie-assays worden uitgevoerd. Ondanks deze beperkingen biedt dit platform een schaalbaar en aanpasbaar kader voor het bestuderen van patiëntspecifieke glioblastoominvasie en behandelingsrespons. De compatibiliteit met live cell imaging, geautomatiseerde segmentatiepijplijnen en gemultiplexeerde post-assay-analyse opent mogelijkheden voor hooggehalte-screening van nieuwe therapieën, combinatietherapieën en mechanistische studies van invasie uit sterk heterogene monsters van patiënttumoren. Bovendien levert het uitbreiden van deze assay naar co-cultuursystemen, zoals residente hersencellen zoals astrocyten, neuronen en microglia, of modellen van interacties tussen bloed-hersenbarrières en -barrière, extra inzichten op in tumorstroma-interacties die de progressie en terugkeer van glioblastoom aansturen.
Tijdens de ontwikkeling van de assay werden verschillende technische stappen geïdentificeerd als cruciale bepalende factoren voor reproduceerbaarheid en algehele assayprestaties. Door de zaaddichtheid van cellijnen vóór de test te standaardiseren, wordt gegarandeerd dat de initiële gliomasfeergrootte consistent blijft, waardoor de groeidynamiek van de sferoiden vergelijkbaar is tussen cellijnen, behandelingen en aandoeningen. Zonder deze standaardisatiestap zullen de initiële sferoidgroottes een aanzienlijk niveau van variabiliteit toevoegen, wat vervolgens variabele reacties van gliomasferen op experimentele omstandigheden kan weerspiegelen. Precieze centrale lokalisatie van gliomasferen binnen elke put is een belangrijke vereiste voor nauwkeurige geautomatiseerde beeldacquisitie en downstream segmentatie. Off-center sferoïden resulteerden in aanzienlijke beeldvormingsruis en verhinderden het gebruik van de Weka-segmentatie als middel om de beelden in duidelijk afgebakende gebieden te segmenteren. Door ervoor te zorgen dat alle gliomasferen in het centrum gelokaliseerd zijn, kan dezelfde WERA-classifier meerdere keren worden gebruikt omdat ruis aanzienlijk wordt verminderd en de beeldkwaliteit drastisch verbetert. Een weergave hiervan is te zien in Figuur 1. De opname van magnetische ijzeroxide-nanodeeltjes is daarom een methode om de centrale locatie van gliomasferen te waarborgen, positionele variabiliteit te minimaliseren en de beeldverwerking en vergelijkbaarheid tussen replicaten aanzienlijk te verbeteren. Tot slot vormt segmentatiemodeltraining binnen de Weka-pijplijn een extra kritieke standaardisatiestap. Door interpatiënt heterogeniteit en verschillen in invasiemorfologie kan een enkel segmentatiemodel niet over alle steekproeven generaliseren. Het hertrainen of verfijnen van classificatieparameters voor elke cellijn zorgt voor nauwkeurige kanskaarten van invasieve gebieden en voorkomt kwantificatiefouten.
Al met al biedt deze assay een reproduceerbaar en schaalbaar platform om het dynamische, invasieve gedrag van door patiënten afgeleide gliomamonsters in realtime te bestuderen. De compatibiliteit met multiplexbeeldvorming en downstream moleculaire analyses maakt het een krachtig en veelzijdig hulpmiddel voor zowel fundamenteel als translationeel glioomonderzoek, wat de translationele relevantie van preklinische glioblastoommodellen aanzienlijk zal vergroten.
Openbaarmakingen
Niets om te onthullen
Dankbetuigingen
Dit werk werd ondersteund door Research Ireland (Science Foundation Ireland) onder subsidiecode 20391A01 en de Health Research Board onder subsidiecode ERA-TRANSCAN-2022-002. Cellen werden vriendelijk geleverd door onze medewerkers in het Dirks Lab, SickKids, Toronto en het Erasmus Medical Center (EMC), Rotterdam.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 96 WELL BIOPRINTING KIT, CLEAR | Greiner | 655840 | |
| Accutase | Invitrogen | 00-4555-56 | n/a |
| B-27 Supplement (50X), serum free without vitamin A | Gibco | 12587010 | 10% |
| Basic Fibroblast Growth Factor, Human (bFGF) | PeproTech | 100-18B | 20 ng/ml |
| Celldiscoverer 7 | Zeiss | - | |
| Corning Spheroid Microplates | Corning | CLS4515 | |
| Corning Matrigel Matrix | Corning | 354234 | 1:100 final dilution |
| Countess Automated Cell Counter | Invitrogen | - | |
| DMEM-F12 (500ml) | Thermofischer | 11320-074 | n/a |
| Epidermal Growth Factor Human (EGF) | PeproTech | AF-100-15 | 20 ng/ml |
| FITC Mouse Anti-Human CD44 | BD Pharmingen | 555478 | 1:100 |
| Greiner CELLSTAR 96 Well Polystyrene Cell Culture Microplates with F-Bottom/Chimney Well, µClear, Black, TC, Sterile, With Lid | Greiner | 655090 | |
| Heparine | Thermofischer | A16198 | 5µg/ml |
| Hoechst 33258 | Sigma Aldrich (Merck) | 861405 | 1µg/ml |
| NanoShuttle-PL | Greiner | 657841 | 1.5 µl/10,000 cells |
| Penicillin - Streptomycin | Merck | P4333 | 1% |
Referenties
- Singh, S., et al. Glioblastoma at the crossroads: Current understanding and future therapeutic horizons. Signal Transduct Target Ther. 10 (1), 213(2025).
- Spitzer, A., et al. Deciphering the longitudinal trajectories of glioblastoma ecosystems by integrative single-cell genomics. Nat Genet. 57 (5), 1168-1178 (2025).
- Dirkse, A., et al. Stem cell-associated heterogeneity in glioblastoma results from intrinsic tumor plasticity shaped by the microenvironment. Nat Commun. 10 (1), 1787(2019).
- Dejaegher, J., De Vleeschouwer, S. Glioblastoma. De Vleeschouwer, S. , Brisbane (AU). (2017).
- Restall, I., Bozek, D. A., Chesnelong, C., Weiss, S., Luchman, H. A. Live-cell imaging assays to study glioblastoma brain tumor stem cell migration and invasion. J Vis Exp. (138), e58152(2018).
- Xie, Y., et al. The human glioblastoma cell culture resource: Validated cell models representing all molecular subtypes. EBioMedicine. 2 (10), 1351-1363 (2015).
- Paolillo, M., Comincini, S., Schinelli, S. In vitro glioblastoma models: A journey into the third dimension. Cancers (Basel). 13 (10), 2449(2021).
- Aye, K. T. N., Ferreira, J. N., Chaweewannakorn, C., Souza, G. R. Advances in the application of iron oxide nanoparticles (ions and spions) in three-dimensional cell culture systems. SLAS Technol. 29 (3), 100132(2024).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Reproducibility of uniform spheroid formation in 384-well plates: The effect of medium evaporation. J Biomol Screen. 21 (9), 923-930 (2016).
- Das, V., Furst, T., Gurska, S., Dzubak, P., Hajduch, M. Evaporation-reducing culture condition increases the reproducibility of multicellular spheroid formation in microtiter plates. J Vis Exp. (121), e55403(2017).
- Mansoury, M., Hamed, M., Karmustaji, R., Al Hannan, F., Safrany, S. T. The edge effect: A global problem. The trouble with culturing cells in 96-well plates. Biochem Biophys Rep. 26, 100987(2021).
- Zanoni, M., et al. 3d tumor spheroid models for in vitro therapeutic screening: A systematic approach to enhance the biological relevance of data obtained. Sci Rep. 6, 19103(2016).
- Schindelin, J., et al. Fiji: An open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Arganda-Carreras, I., et al. Trainable weka segmentation: A machine learning tool for microscopy pixel classification. Bioinformatics. 33 (15), 2424-2426 (2017).
- Sayde, T., et al. Reproducible 3d culture of multicellular tumor spheroids in supramolecular hydrogel from cancer stem cells sorted by sedimentation field-flow fractionation. J Chromatogr A. 1736, 465393(2024).
- Lee, S., Lim, J., Kwak, B. Factors of bias in spheroid-based drug screening: Fabrication method, spheroid size, and cell viability. Biomed Pharmacother. 192, 118597(2025).
- Aisenbrey, E. A., Murphy, W. L. Synthetic alternatives to matrigel. Nat Rev Mater. 5 (7), 539-551 (2020).
- Barbugian, F., et al. Bioresponsive hyaluronic acid-based hydrogel inhibits matrix metalloproteinase-2 in glioblastoma microenvironment. ChemMedChem. 20 (15), e202401040(2025).
- Carvalho, E. M., et al. Viscoelastic high-molecular-weight hyaluronic acid hydrogels support rapid glioblastoma cell invasion with leader-follower dynamics. Adv Mater. 36 (50), e2404885(2024).
Herprints en machtigingen
