Aktywność w układach neuronalnych często wymaga synchronicznych wyładowań potencjałów czynnościowych neuronów w obrębie konkretnej populacji. Na przykład impulsy hormonu uwalniającego gonadotropiny (GnRH) prawdopodobnie wymagają skoordynowanej aktywności między neuronami GnRH. Przedstawiamy nasze podejście metodologiczne pozwalające na niezawodne uzyskiwanie jednoczesnych rejestracji elektrofizjologicznych z rozproszonych neuronów GnRH.
Artykuł metodologiczny
Podwójne rejestracje somatyczne z neuronów wydzielających hormon uwalniający gonadotropiny (GnRH) zidentyfikowanych za pomocą zielonego białka fluorescencyjnego (GFP) w skrawkach podwzgórza
W tym artykule
Podsumowanie
Streszczenie
Hormon uwalniający gonadotropiny (GnRH) jest małym neuropeptydem, który reguluje uwalnianie hormonu luteinizującego (LH) i hormonu folikulotropowego (FSH) przez przysadkę. Gonadotropiny te są niezbędne do regulacji funkcji rozrodczych. Neurony zawierające GnRH są rozproszone w całym podwzgórzu i rzutują na wyniesienie środkowe, gdzie uwalniają GnRH z zakończeń aksonalnych do systemu wrotnego hipofizotropowego (1). W naczyniach włosowatych układu wrotnego GnRH przedostaje się do przedniego płata przysadki, aby stymulować uwalnianie gonadotropin do krążenia systemowego. Uwalnianie GnRH nie jest ciągłe, lecz odbywa się w postaci epizodycznych impulsów. Jest dobrze udokumentowane, że przerywany sposób uwalniania GnRH jest niezbędny dla procesu reprodukcji (2, 3).
Koordynacja aktywności wielu neuronów GnRH prawdopodobnie leży u podstaw impulsów GnRH. Całkowita zawartość peptydów w neuronach GnRH wynosi około 1,0 pg/cell (4), z czego 30% prawdopodobnie stanowi pula uwalnialna. Poziomy GnRH podczas impulsu (5, 6) sugerują, że w neurosekrecji prawdopodobnie bierze udział wiele neuronów GnRH. Podobnie, aktywność pojedynczych jednostek wyodrębniona z wielojednostkowych zapisów podwzgórza podczas uwalniania LH wskazuje na zmiany aktywności wielu neuronów (7). Elektrody, przy których zarejestrowano aktywność podczas impulsów LH, są powiązane albo z somatami, albo z włóknami GnRH (8). Zatem przynajmniej część tej aktywności pochodzi z neuronów GnRH.
Mechanizmy prowadzące do zsynchronizowanej aktywności elektrycznej neuronów GnRH w podwzgórzu pozostają nieznane. Wyjaśnienie mechanizmów koordynujących wyładowania w neuronach GnRH jest złożonym problemem. Po pierwsze, neurony GnRH występują w stosunkowo niewielkiej liczbie. U gryzoni znajduje się od 800 do 2500 neuronów GnRH. Nie jest jasne, czy wszystkie neurony GnRH uczestniczą w epizodycznym uwalnianiu GnRH. Ponadto neurony GnRH są rozproszone (1). Utrudniło to zrozumienie koordynacji ich aktywności i sprawiło, że wiele podejść technicznych stało się niewykonalnych. Zoptymalizowaliśmy rejestrację metodą loose cell-attached w trybie clampy prądowej w celu bezpośredniej detekcji potencjałów czynnościowych oraz opracowaliśmy metodę rejestracji umożliwiającą jednoczesny pomiar aktywności par neuronów GnRH.
Protokół
- Przystępujemy do przygotowania, inkubacji i przeniesienia skrawków mózgu z okolic podwzgórza do komory rejestracyjnej zgodnie z wcześniej opisaną procedurą (9), u zwierząt, których neurony GnRH wykazują ekspresję zielonego białka fluorescencyjnego (GFP) pod kontrolą promotora peptydów GnRH (10). Po wyjęciu mózgu z organizmu zwierzęcia, za pomocą żyletki usuwa się obszary niebędące przedmiotem badania. Aby wyznaczyć regiony do usunięcia, mózg układa się powierzchnią grzbietową do góry, tak aby podwzgórze było widoczne. W obu przypadkach – zarówno dla przekrojów czołowych, jak i strzałkowych – usuwa się móżdżek. Przy przygotowywaniu skrawków czołowych usuwa się rostralną część kory. W tej orientacji skrawków boczne regiony kory stanowią podparcie podczas krojenia mózgu oraz zapewniają wystarczającą powierzchnię do umieszczenia srebrnych drucików służących do stabilizacji mózgu w komorze rejestracyjnej. W przypadku przygotowania skrawków strzałkowych usuwa się boczne regiony mózgu, a rostralne części kory stanowią podparcie podczas krojenia oraz miejsce umieszczenia srebrnych drucików zabezpieczających mózg w studzience rejestracyjnej. Przez cały czas trwania procedury usuwania zbędnych tkanek mózg jest stale nawilżany zimnym sztucznym płynem mózgowo-rdzeniowym (ACSF) przy użyciu szklanej pipety.
- Na platformę do cięcia nanosi się niewielką ilość kleju Superglue. Mózg podnosi się za pomocą szpatułki. Nadmiar ACSF usuwa się, przykładając chusteczkę Kimwipe do powierzchni szpatułki i odciągając nadmiar płynu od mózgu. Następnie mózg delikatnie przesuwa się do przodu na klej. Ważne jest, aby nie dotykać mózgu ani nie naciskać go w celu jego unieruchomienia. Masa samego mózgu jest zazwyczaj wystarczająca, aby zapewnić jego stabilne zamocowanie.
- Następnie mózg wraz z platformą tnącą zostaje przymocowany do mikrotomu wibracyjnego, a otwór tnący wypełnia się zimnym ACSF. Chłodny roztwór zarówno utwardza tkankę mózgową, jak i może chronić ją przed uszkodzeniami podczas procesu cięcia. Różne obszary mózgu różnią się stopniem schłodzenia, który optymalizuje jakość otrzymanych skrawków. Temperatura ACSF do przygotowania skrawków podwzgłowia jest zazwyczaj 0°C.
- Plastry należy wycinać powoli, tak aby każdy z nich swobodnie oddzielał się od mózgu. Jeśli w trakcie cięcia plastry zaczną się zwijać, należy zmniejszyć prędkość posuwu ostrza. Do prostowania plastrów można użyć małego pędzla, jednak wiąże się to z ryzykiem ich uszkodzenia, dlatego należy tego unikać. Zaleca się zmniejszenie prędkości posuwu ostrza zamiast korzystania z pędzla.
- Po wycięciu każdego plastra z mózgu, zostaje on wyjęty z komory tnącej i umieszczony w komorze inkubacyjnej dla plastrów w ciepłej kąpieli wodnej (około 32°C). Inkubator do plastrów jest stale zaopatrywany w tlen przy użyciu mieszaniny 95% O2 oraz 5% CO22Zazwyczaj inkubacja skrawków przed rozpoczęciem rejestracji trwa od 30 minut do 2 godzin.
- Pipety szklane (3–6 MΩ) są wytwarzane zgodnie z wcześniejszym opisem (9) przy użyciu pionowego wyciągacza. Temperatura i czas wyciągania różnią się w zależności od stosowanego modelu wyciągacza, rodzaju szkła oraz stopnia zużycia włókna grzejnego urządzenia. Kształt końcówki pipety może być również dostosowany do preferencji użytkownika. Satysfakcjonujące wyniki osiągnęliśmy przy zastosowaniu końcówki o równomiernym zwężeniu z otworem o średnicy 0,1 mm. Większe otwory w pipetach mają tendencję do uszkadzania neuronów, natomiast otwory zbyt małe uniemożliwiają prowadzenie długotrwałych rejestracji.
- Pipety powlekane Sylgardem w celu zmniejszenia pojemności. Wyciągnięte końcówki pipet są lekko powlekane Sylgardem 184 przy użyciu drugiej pipety. Następnie końcówki pokryte Sylgardem są utwardzane termicznie za pomocą opalarki. Pipety te są następnie napełniane perfuzatem kąpieli. Aby zwiększyć widoczność końcówek pipet, do części roztworu kąpieli, który ma posłużyć jako roztwór do pipet, przed ich napełnieniem dodaje się niewielką ilość Alexa-568. Nie odważamy Alexa-568, lecz stosujemy ilość wystarczającą, aby roztwór przybrał różowy kolor, ocenianą organoleptycznie. Końcówki pipet można następnie wizualizować przy użyciu filtra Texas red.
- Opracowaliśmy metodę pozyskiwania rejestracje w konfiguracji clamp prądowy do wykrywania potencjały czynnościowe stosując uszczelnienia o niskiej rezystancji (patrz. Dyskusja). Rejestracje są przeprowadzane przy endogennym potencjale spoczynkowym komórki, bez przykładania prądu, przy użyciu Axon Instrument 2B Axoclamp. Jednak ze względu na niską rezystancję uszczelnienia, nie można było wykryć potencjałów czynnościowych przy użyciu samego wzmacniacza 2B. W celu zwiększenia sygnału, w szeregu z Axoclamp 2B zastosowano drugi wzmacniacz (AM Systems 3000). Podejście to łączy łatwość uzyskania luźnych uszczelnień z użytecznością długoterminowych rejestracji. Technicznie możliwe jest bezpośrednie pomiarowanie potencjałów czynnościowych, co pozwala uniknąć problemów związanych z zastosowaniem tej metody w trybie rejestracji clampy napięciowej (patrz. Dyskusja).
- Obie pipety prowadzi się jednocześnie w kierunku powierzchni dwóch wcześniej wybranych neuronów, w sposób analogiczny do procedury uzyskiwania konfiguracji zapisu z całej komórki (whole-cell). Jednoczesne zbliżanie się do obu neuronów okazało się skuteczniejsze w uzyskaniu podwójnych rejestracji niż próby niezależnego podejścia do każdego z neuronów w parze. W tym czasie z wzmacniacza 2B podawane są impulsy wtrysku prądu, tak jak ma to miejsce podczas przygotowania do zapisów z całej komórki.
- Należy utrzymać dodatnie ciśnienie w obu pipetach, aby zapobiec zapchaniu końcówek. W przypadku rejestracji podwójnej dodatnie ciśnienie najlepiej wytworzyć za pomocą nienapełnionej strzykawki o pojemności 3 ml, podłączonej do uchwytu pipety za pomocą odcinka rurki. Stosowanie strzykawek pozwala na utrzymanie ciśnienia w obu pipetach. Dodatnie ciśnienie powinno zostać przyłożone niezwłocznie po umieszczeniu pipety w roztworze kąpieli w komorze rejestracyjnej. Do wybranych neuronów zbliża się pipety sekwencyjnie. Po ustawieniu pierwszej pipety bezpośrednio nad największą powierzchnią neuronu, utrzymuje się dodatnie ciśnienie poprzez pozostawienie strzykawki w miejscu i pozostawienie pipety w tej pozycji. Następnie wraca się do górnej części komory rejestracyjnej i opuszcza drugą pipetę rejestracyjną do odpowiedniej pozycji. Wybrane neurony często znajdują się na różnych poziomach skrawka. Pierwsza pipeta powinna zostać ustawiona nad neuronem znajdującym się najgłębiej w skrawku, a druga nad neuronem położonym bardziej powierzchownie. Zapobiega to przesunięciu pierwszej pipety podczas pozycjonowania drugiej, ponieważ skrawek może nieznacznie przemieścić się w płaszczyźnie pionowej podczas wprowadzania pipet.
- Zastosowane zostaną nieszczelne uszczelnienia (18-30 MΩ). Nadciśnienie spowoduje powstanie niewielkiego wgłębienia na powierzchni każdej komórki. Próbę uszczelnienia pierwszego neuronu podejmuje się poprzez zniesienie nadciśnienia i przyłożenie bardzo lekkiego podciśnienia. Nadciśnienie znosi się poprzez usunięcie strzykawki. Następnie do wolnego końca rurki przykłada się ssanie ustne. Błona zdrowego neuronu szybko zareaguje na zniesienie nadciśnienia i przylgnie do pipety. Lekkie ssanie pozwoli uzyskać uszczelnienie o odpowiedniej rezystancji w zdrowym neuronie.
- W przypadku niepowodzenia próby uszczelnienia neuronu, pipeta nie może zostać użyta ponownie, ponieważ membrany przylegają jedynie do bardzo czystego szkła. Zamiast tego należy unieść pipetę (oraz obiektyw mikroskopu) znad powierzchni skrawka do górnej krawędzi komory perfuzyjnej, wyjąć pipetę z kąpieli, wymienić ją na nową, a następnie powrócić do skrawka, aby spróbować uszczelnić inną komórkę. Z tego powodu istotny jest wybór wielu potencjalnych neuronów do rejestracji. W przypadku skrawków, w których do wyboru jest mniej niż 4–6 neuronów o jakości pozwalającej na rejestrację, sukces w uzyskaniu podwójnych rejestracji jest ograniczony.
- Po uzyskaniu szczelnego połączenia (loose seal) na podstawie pomiaru rezystancji, przerywa się impulsy wstrzykiwania prądu z wzmacniacza 2B. Wzmacniacz 2B zostaje połączony szeregowo ze wzmacniaczem serii 3000. W tej konfiguracji wyjście wzmacniacza 2B służy jako wejście wzmacniacza serii 3000. Ten drugi wzmacniacz dostarcza sygnał do akwizycji danych.
- Następnie powtarza się uszczelnienie (krok 4) i rekonfigurację wzmacniaczy (krok 5) dla drugiego neuronu.
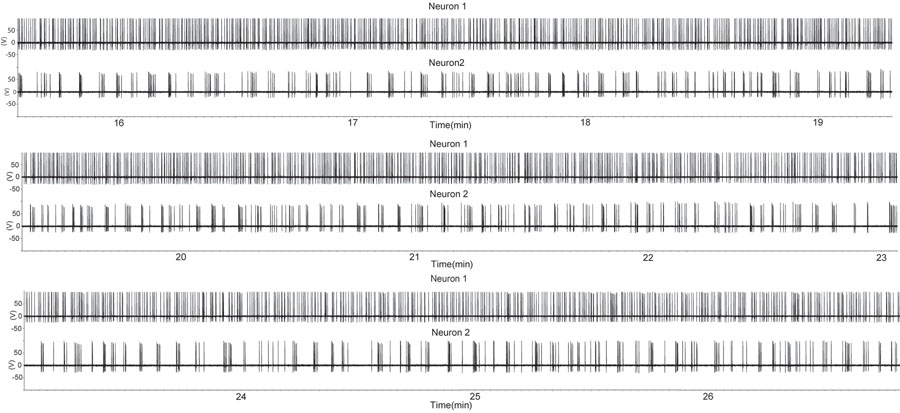
Rycina 1. Okres zwiększonej częstotliwości wyładowań w dwóch neuronach GnRH z wykorzystaniem konfiguracji rejestracji z luźnym uszczelnieniem (loose seal) w preparacie skrawka strzałkowego. Skrawka pobrano od wykastrowanego samca. Każde wychylenie w górę oznacza potencjał czynnościowy. Należy zauważyć, że jeden neuron GnRH (ślady górne) wykazuje niemal ciągłe wyładowania, podczas gdy drugi neuron GnRH wykazuje przerywane serie impulsów. Ten wzorzec aktywności pojedynczych neuronów GnRH jest podobny do aktywności pojedynczych jednostek wyodrębnionych z rejestracji wielojednostkowych podczas sekrecji hormonów in vivo (7). Prosimy kliknąć tutaj, aby zobaczyć większą wersję ryciny 1.
Dyskusja
Aktywność interesująca w niektórych neuronach, w tym w neuronach GnRH (oparta na sekrecji hormonów), przebiega w skalach czasowych liczonych w godzinach (5-7). W związku z tym konfiguracja whole-cell nie jest najlepszym wyborem dla niektórych celów eksperymentalnych ze względu na dializę przekaźników wewnątrzkomórkowych w trybie rejestracji whole-cell. Po drugie, rejestracje whole-cell są zazwyczaj ograniczone do zwierząt w wieku poniżej około 120 dni. Wraz z wiekiem błony neuronalne zdają się sztywnieć, co utrudnia uzyskanie uszczelnień o wysokiej rezystancji. Dodatkowo, w przypadku uzyskania uszczelnienia o wysokiej rezystancji, przerwanie patcha niszczy uszczelnienie, pozostawiając otwór między pipetą a błoną. Prowadzi to do niezdatnego do użytku pomiaru i śmierci neuronu w wyniku zaburzeń równowagi jonowej. Regularne cykle jajnikowe, a tym samym stabilna aktywność generatora impulsów GnRH, nie występują aż do późniejszego etapu życia (7-10 miesięcy wieku u samic C57Bl6; 11, 12), czyli poza wiekiem, w którym można racjonalnie oczekiwać niezawodnego uzyskania rejestracji whole-cell. Wreszcie, rejestracje whole-cell niszczą endogenne stosunki wewnętrznych i zewnętrznych stężeń jonów. W przypadku rejestracji whole-cell wewnętrzne stężenie każdego jonu staje się równe stężeniu jonu w roztworze pipety. Dzieje się tak dlatego, że stosunkowo duża objętość roztworu w pipecie szybko osiąga równowagę z relatywnie małą endogenną objętością komórki lub ją zastępuje.
Metoda przytwierdzenia luźnego (loose-cell attached) pozwala uniknąć wielu ograniczeń charakterystycznych dla rejestracji z całej komórki (whole-cell). Po pierwsze, można zastosować uszczelnienie o niskiej oporności (15-30 MΩ). Są one stosunkowo łatwe do uzyskania nawet w neuronach zwierząt starszych. Po drugie, nie dochodzi do przerwania uszczelnionego fragmentu błony. W związku z tym rejestracje metodą loose-cell attached są technicznie znacznie łatwiejsze niż rejestracje whole-cell. Dodatkowo, ponieważ błona komórkowa pozostaje nienaruszona, nie następuje dializa składników wewnątrzkomórkowych, a endogenne proporcje jonowe zostają zachowane. Metody loose-cell attached nie można stosować do badania prądów synaptycznych, ale jest ona idealna do długoterminowych rejestracji z neuronów w sposób stosunkowo małoinwazyjny. Rejestracje z przytwierdzeniem do komórki można również przeprowadzać, stosując w pipecie dowolny standardowy roztwór wewnątrzkomórkowy. Daje to dodatkową korzyść w postaci możliwości przerwania fragmentu błony po zakończeniu długotrwałej rejestracji i znakowania neuronu markerem wewnątrzkomórkowym.
Metoda rejestracji z nieuszczelnioną pipetą (loose-patch) była stosowana w trybie voltage-clamp. Jednak rejestracja w tej konfiguracji wiąże się z kilkoma problemami metodologicznymi. Po pierwsze, rejestrowany sygnał jest pośrednią miarą aktywności. Sygnał mierzony (jako tzw. prąd potencjału czynnościowego) jest prądem pojemnościowym ładującym membranę (13). Jest to niezwykle istotna kwestia metodologiczna. Pojemność i rezystancja pipety rejestrującej mogą filtrować rejestrowany sygnał. Bardzo prawdopodobne jest, że niewielkie prądy potencjałów czynnościowych zostają utracone podczas ładowania pojemności pipety, której nie można odpowiednio skompensować w większości wzmacniaczy ze względu na wysoką rezystancję przedwzmacniacza (headstage). Gdy sygnały te pozostaną niewykryte, pozorny wzorzec wyładowań neuronu nie odzwierciedla rzeczywistego wzorca. Podobnie niekompensowana rezystancja pipety i uszczelnienia powoduje znaczne błędy pomiarowe podczas zmian, takich jak występowanie prądów potencjałów czynnościowych (13). Niektóre wzmacniacze oferują „kompensację” pojemności i rezystancji pipety oraz uszczelnienia, co ogranicza utratę sygnału, jednak wysokorezystancyjne przedwzmacniacze w większości urządzeń utrudniają optymalną kompensację. Po drugie, komórce narzucona jest sytuacja sztuczna. W trybie voltage-clamp obszar wokół błony komórkowej jest utrzymywany na stałym potencjale, w tych badaniach wynoszącym 0 mV. Nie oznacza to, że do błony komórkowej nie jest przyłożony żaden prąd. Sygnał mierzony w trybie voltage-clamp to w rzeczywistości ilość prądu przyłożonego do błony w celu utrzymania stałego potencjału. W konsekwencji taki przyłożony prąd może zmieniać aktywność komórki.
Podwójne rejestracje w systemie GnRH są szczególnie wymagające ze względu na ograniczoną liczbę neuronów GnRH oraz ich rozproszony rozkład. Aby podwójne rejestracje zakończyły się sukcesem, manipulator musi być niezwykle stabilny. Nawet niewielki ruch elektrody może spowodować zsunięcie się pipety z neuronu i przerwanie rejestracji. Ponadto ruch pipety na komórce (np. zmiana pozycji w celu skompensowania przesunięcia) może zmienić wzorce wyładowań. Niektóre kanały jonowe, takie jak kanały wapniowe typu N, są wrażliwe mechanicznie: rozciąganie błony powoduje aktywność repetytywną zarówno w konfiguracji rejestracji whole-cell, jak i cell-attached (14). Wreszcie system manipulatora musi umożliwiać niezwykle precyzyjne i płynne ruchy. Jak wspomniano wyżej, podczas podwójnych rejestracji wprowadza się dwie pipety na powierzchnię dwóch wcześniej wybranych neuronów w tym samym czasie i próbuje utworzyć uszczelnienie (seal) z jednym neuronem. Jeśli się to powiedzie, podejmuje się próbę uszczelnienia drugiej komórki. Zazwyczaj nie można oczekiwać, że każda próba uszczelnienia zakończy się sukcesem i zapewni wysoką jakość rejestracji. Stwarza to jednak szczególny problem w przypadku podwójnych rejestracji. Jeśli pierwsza próba z neuronem zakończy się sukcesem, ale druga zawiedzie, należy wymienić pipetę i spróbować z inną komórką. W związku z tym możliwe musi być przemieszczenie zarówno obiektywu imersyjnego mikroskopu, jak i pipety do górnej części komory perfuzyjnej (w celu wymiany pipety) bez naruszenia stabilności pomyślnie uszczelnionego neuronu.
Opracowanie i zastosowanie metody luźnego przylegania komórki (loose cell-attached) do podwójnych rejestracji stanowi istotny postęp techniczny w badaniach nad neuronami GnRH. Prawdopodobnie przyniesie ona użyteczne wyniki, które pomogą w rozwoju tej dziedziny w kontekście kluczowego pytania o mechanizmy leżące u podstaw skoordynowanej aktywności, która prowadzi do pulsacyjnego wydzielania hormonów.
Podziękowania
Jestem wdzięczny Ronaldowi L. Calabrese, Dieterowi Jaegerowi (Emory University) oraz Wardowi Yuhasowi (Axon Instruments) za pomocne dyskusje techniczne.
Bibliografia
- Silverman, A. J. The gonadotropin releasing-hormone (GnRH) neuronal systems: immunocytochemistry. The Physiology of Reproduction. Knobil, E., Neill, J. D. , Raven Press. New York. (1994).
- Freeman, M. E. The neuroendocrine control of the ovarian cycle of the rat. In: The physiology of reproduction. The Physiology of Reproduction. Knobil, E., Neill, J. D. , Raven Press. New York. (1994).
- Belchetz, P. E., Plant, T. M., Nakai, Y., Keogh, E. J., Knobil, E. Hypophysial responses to continuous and intermittent delivery of hypopthalamic gonadotropin-releasing hormone. Science. 202, 631-633 (1978).
- Maurer, J. A., Wray, S. Luteinizing hormone-releasing hormone quantified in tissues and slice explant cultures of postnatal rat hypothalami. Endocrinology. 140, 791-799 (1999).
- Harris, G. C., Levine, J. E. Pubertal acceleration of pulsatile gonadotropin-releasing hormone release in male rats as revealed by microdialysis. Endocrinology. 14, 163-171 (2003).
- Sisk, C. L., Richardson, H. N., Chappell, P. E., Levine, J. E. In vivo gonadotropin-releasing hormone secretion in female rats during peripubertal development and on proestrus. Endocrinology. 142, 2929-2936 (2001).
- Cardenas, H., Ordog, T., O'Byrne, K. T., Knobil, E. Single unit components of the hypothalamic multiunit electrical activity associated with the central signal generator that directs the pulsatile secretion of gonadotropic hormones. Proc Natl Acad Sci U S A. 90, 9630-9634 (1993).
- Silverman, A. J., Wilson, R., Kesner, J. S., Knobil, E. Hypothalamic localization of multiunit electrical activity associated with pulsatile LH release in the rhesus monkey. Neuroendocrinology. 44, 168-171 (1986).
- Roberts, C. B., O'Boyle, M. P., Suter, K. J. Dendrites determine the contribution of after depolarization potentials (ADPs) to generation of repetitive action potentials in hypothalamic gonadotropin releasing-hormone (GnRH) neurons. J Comput Neurosci. 26, 39-53 (2009).
- Spergel, D. J., Kruth, U., Hanley, D. F., Sprengel, R., Seeburg, P. H. GABA- and glutamate-activated channels in green fluorescent protein-tagged gonadotropin-releasing hormone neurons in transgenic mice. J Neurosci. 19, 2037-2050 (1999).
- Nelson, J. F., Felicio, L. S., Randall, P. K., Sims, C., Finch, C. E. A longitudinal study of estrous cyclicity in aging C57BL/6J mice: I. Cycle frequency, length and vaginal cytology. Biol Reprod. 27, 327-339 (1982).
- Gee, D. M., Flurkey, K., Finch, C. E. Aging and the regulation of luteinizing hormone in C57BL/6J mice: impaired elevations after ovariectomy and spontaneous elevations at advanced ages. Biol Reprod. 28, 598-607 (1983).
- Anson, B. D., Roberts, W. M. Loose-patch voltage-clamp technique. Neuromethods, Patch-clamp analysis: Advanced techniques. Walz, W., Boulton, A. A., Baker, G. B. 35, Humana Press. Place Unknown. 265-286 (2002).
- Calabrese, B., Tabarean, T., Juranka, P., Morris, C. E. Mechanosensitivity of N-type calcium channel currents. Biophys J. 83, 2560-2574 (2002).
- Higure, Y., Katayama, Y., Takeuchi, K., Ohtubo, Y., Yoshii, K. Rapid killing of single neurons by irradiation of intracellularly injected dye. Science. 206, 702-704 (1979).
- Higure, Y., Katayama, Y., Takeuchi, K., Ohtubo, Y., Yoshii, K. Lucifer Yellow slows voltage-gated Na+ current inactivation in a light-dependent manner in mice. J Physiol. 550, 159-167 (2003).
Przedruki i uprawnienia
