W niniejszym filmie zaprezentowano sposób generowania rekombinowanych wirusów odry z wykorzystaniem liposomów do dostarczania plazmidów kodujących antygenom wirusa oraz niezbędne białka pomocnicze do komórek producentów. Transkrypcja i replikacja RNA prowadzą do powstania cząstek wirusowych wykazujących ekspresję białek immunostymulujących oraz fluorescencyjnych białek reporterowych. Następnie wykorzystuje się mikroskopię fluorescencyjną do wizualizacji tworzenia syncytiów, co potwierdza pomyślną produkcję rekombinowanego wirusa.
Artykuł metodologiczny
Generowanie rekombinowanego wirusa odry kodującego białko immunostymulujące
22 wyświetleń
⸱
30 września 2026
W tym artykule
Streszczenie
Protokół
UWAGA: Symbole [O], [P] i [M] oznaczają podsekcje odnoszące się odpowiednio do: wirusów onkolitycznych (OV) w ogóle, (większości) paramyksowirusów lub wyłącznie wirusa odry (MV). Symbol [B] oznacza sekcje specyficzne dla transgenów bispecyficznych aktywatorów limfocytów T (BTE).
1 Klonowanie transgenów kodujących immunomodulatory do wektorów wirusa odry
- [O] Projektowanie sekwencji wkładki.
- [O] Wybrać interesujący immunomodulator na podstawie badań literaturowych lub danych eksploracyjnych, takich jak przesiewy genetyczne, i wyprowadzić odpowiednią sekwencję komplementarnego DNA (cDNA) z właściwych baz danych, takich jak GenBank, European Nucleotide Archive lub międzynarodowy system informacji immunogenetycznej (IMGT).
- [O] Dodać dodatkowe elementy do sekwencji transgenu (Rycina 1). Poprzedzająca sekwencja Kozaka oraz optymalizacja kodonów specyficzna dla gatunku mogą zwiększyć ekspresję. Sekwencje sygnałowe są wymagane do sekrecji. Uwzględnić sekwencje kodujące białkowe znaczniki N- i/lub C-terminalne w celu detekcji i oczyszczania. Uwzględnić miejsca restrykcyjne w celu insercji do wektora.
UWAGA: [M] Dodatkowe jednostki transkrypcyjne (ATUs) zawierające sygnały startu i stopu genu polimerazy MV są niezbędne do ekspresji transgenu z rekombinowanych genomów MV. Opracowano wcześniej odpowiednie antygenomowe wektory cDNA, kontrolowane przez promotory cytomegalowirusa (CMV) i zawierające ATU z unikalnymi miejscami restrykcyjnymi do wprowadzania transgenów o sensie dodatnim w określonych pozycjach. [P] Odpowiednie rozmieszczenie transgenu jest kluczowe, ponieważ wpływa ono na replikację wirusa i ekspresję transgenu ze względu na gradient ekspresji typowy dla paramyksowirusów. Wprowadzenie do ATU blisko końca 3' antygenomu (tj. w pozycji liderowej lub poniżej genu P) zazwyczaj skutkuje wysoką ekspresją transgenu kosztem zmniejszonej replikacji wirusa. Większą replikację i niższe poziomy ekspresji transgenu można oczekiwać przy użyciu ATU poniżej genu H. Pakowanie genomu kilku paramyksowirusów, w tym wirusa odry, wymaga związania sześciu nukleotydów przez każde białko nukleokapsydu. W przypadku insercji transgenów do takich wirusów należy upewnić się, że liczba nukleotydów w kompletnym genomie będzie podzielna przez sześć. Jest to określane również jako „reguła sześciu”. Jeśli to konieczne, należy dodać dodatkowe nukleotydy do wkładki (powyżej sekwencji Kozaka lub poniżej kodonu stop) bez wprowadzania przesunięć ramki odczytu lub przedwczesnych kodonów stop. [M] Należy unikać w transgenie sekwencji podobnych do sygnałów startu (AGGRNCMARGW) i stopu (RTTAWANAAAA) genu MV oraz sekwencji edycji RNA (AAAAAGGG). - [O] Zakupić oligonukleotydy o pożądanej sekwencji lub złożyć je z dostępnych sekwencji przy użyciu standardowego klonowania molekularnego.
UWAGA: [O] W celu amplifikacji transgenu metodą reakcji łańcuchowej polimerazy (PCR) należy zaprojektować starter forward zawierający powyżej położone miejsce restrykcyjne i pierwsze 15-20 nukleotydów wkładki oraz starter reverse zawierający ostatnie 15-20 nukleotydów wkładki, po których następuje poniżej położone miejsce restrykcyjne.
- [O] Klonowanie wkładki do DNA kodującego wirusowy (anty-)genom.
- [O] Sklonować wkładkę do wektorów DNA lub antygenomów DNA wirusów RNA za pomocą standardowych technik klonowania molekularnego (tj. restrykcji enzymatycznej, a następnie ligacji DNA).
- [O] Zapobiec religacji wektora poprzez zastosowanie niekompatybilnych miejsc restrykcyjnych lub defosforylację przed ligacją.
- [O] Wyizolować produkt ligacji za pomocą elektroforezy w żelu agarozowym i następnej puryfikacji z żelu przy użyciu dostępnych komercyjnie zestawów. Generalnie optymalną wydajność ligacji osiąga się przy molarnym stosunku wkładki do wektora 3:1.
- [O] Transformować produkt ligacji do kompetentnych bakterii odpowiednich do wydajnego odzyskiwania dużych plazmidów (tj. przeprowadzić szok termiczny E. coli) i zidentyfikować klony bakteryjne zawierające prawidłowe DNA za pomocą PCR kolonii.
- [O] Wyizolować amplifikowane DNA z pojedynczego klonu bakteryjnego przy użyciu dostępnych komercyjnie zestawów do preparacji DNA. Potwierdzić integralność genomiczną poprzez trawienie kontrolne odpowiednimi enzymami restrykcyjnymi (np. HindIII dla genomów MV [M]). Potwierdzić prawidłową insercję i integralność transgenu poprzez sekwencjonowanie.
UWAGA: [M] Dla transgenów wstawionych do MV H-ATU przeprowadzić sekwencjonowanie metodą Sangera z następującymi starterami: H-9018 [starter forward, wiąże się z pozycją 9018 genomu MV w otwartej ramce odczytu (ORF) genu H]: 5' GTGTGCTTGCGGACTCAGAATC 3'; L-9249+ (starter reverse, wiąże się z pozycją 9249 genomu MV w ORF genu L): 5' CAGATAGCGAGTCCATAACGG 3'.
- [O] Sklonować wkładkę do wektorów DNA lub antygenomów DNA wirusów RNA za pomocą standardowych technik klonowania molekularnego (tj. restrykcji enzymatycznej, a następnie ligacji DNA).
2. Pozyskiwanie rekombinowanych cząsteczek wirusa odry kodujących immunomodulatory
- [O] Wytworzyć rekombinowane cząsteczki wirusa z DNA (anty-)genomowego poprzez transfekcję komórek producentów wirusa zgodnie ze standardowym protokołem dla danego wirusa. Przestrzegać wytycznych dotyczących pracy w warunkach sterylnych. Hodowlę komórkową prowadzić pod dygestoriami, a w szczególności wszystkie etapy z wykorzystaniem wirusa w komorach bezpieczeństwa biologicznego klasy II.
- [M] W celu odzyskania wirusów odry z cDNA, 24 h przed transfekcją równomiernie wysiać komórki producentów MV (pochodzące z nerki afrykańskiej zielonej małpy Vero) na płytkę 6-dołkową. Wysiać 2 x 10⁵ komórek w 2 mL pożywki Dulbecco's Modified Eagle's Medium (DMEM) zawierającej 10% płodowej surowicy bydlęcej (FBS) na dołek, aby uzyskać 65–75% konfluencji w momencie transfekcji.
UWAGA: [P] Zmniejszyć liczbę komórek, jeśli ulegną one przerośnięciu przed powstaniem syncytiów indukowanych przez wirusa. - [P] Przetransfekować komórki DNA kodującym antygenom wirusa, wymaganymi plazmidami pomocniczymi oraz, jeśli jest to pożądane, plazmidem kodującym reporter fluorescencyjny w celu oceny wydajności transfekcji.
- [M] W całkowitej objętości 200 µL DMEM zmieszać 5 µg rekombinowanego DNA kodującego antygenom wirusa odry, po 500 ng plazmidów ekspresyjnych ssaków kodujących białka N i L wirusa odry oraz po 100 ng plazmidów kodujących białko P. Jeśli jest to wymagane do oceny wydajności transfekcji (i jeśli nie jest już obecny w konstrukcie antygenomu wirusa), dodać 100 ng plazmidu reportera fluorescencyjnego.
- Dodać 18,6 µL liposomalnego odczynnika do transfekcji, natychmiast wymieszać poprzez potrząśnięcie probówką i inkubować przez 25 min w temperaturze pokojowej (RT).
- [P] Wymienić pożywkę na 1,8 mL DMEM z 2% FBS i 50 µg/mL kanamycyny (lub innych antybiotyków zapobiegających kontaminacji) na dołek, następnie dodać kroplowo mieszaninę do transfekcji do dołka i ostrożnie zamieszać okrężnie. Inkubować komórki przez noc w 37 °C, 5% CO2. Następnego dnia wymienić pożywkę na 2 mL świeżej DMEM z 2% FBS i 50 µg/mL kanamycyny; powtarzać tę czynność, gdy pożywka stanie się zakwaszona.
OSTRZEŻENIE: [O] Postępować z komórkami i materiałami zgodnie z przepisami bezpieczeństwa biologicznego, ponieważ wirus może być obecny od momentu transfekcji aż do kolejnych etapów. Odpowiednio utylizować (potencjalnie) zakaźne odpady.
- [M] W celu odzyskania wirusów odry z cDNA, 24 h przed transfekcją równomiernie wysiać komórki producentów MV (pochodzące z nerki afrykańskiej zielonej małpy Vero) na płytkę 6-dołkową. Wysiać 2 x 10⁵ komórek w 2 mL pożywki Dulbecco's Modified Eagle's Medium (DMEM) zawierającej 10% płodowej surowicy bydlęcej (FBS) na dołek, aby uzyskać 65–75% konfluencji w momencie transfekcji.
Wyniki
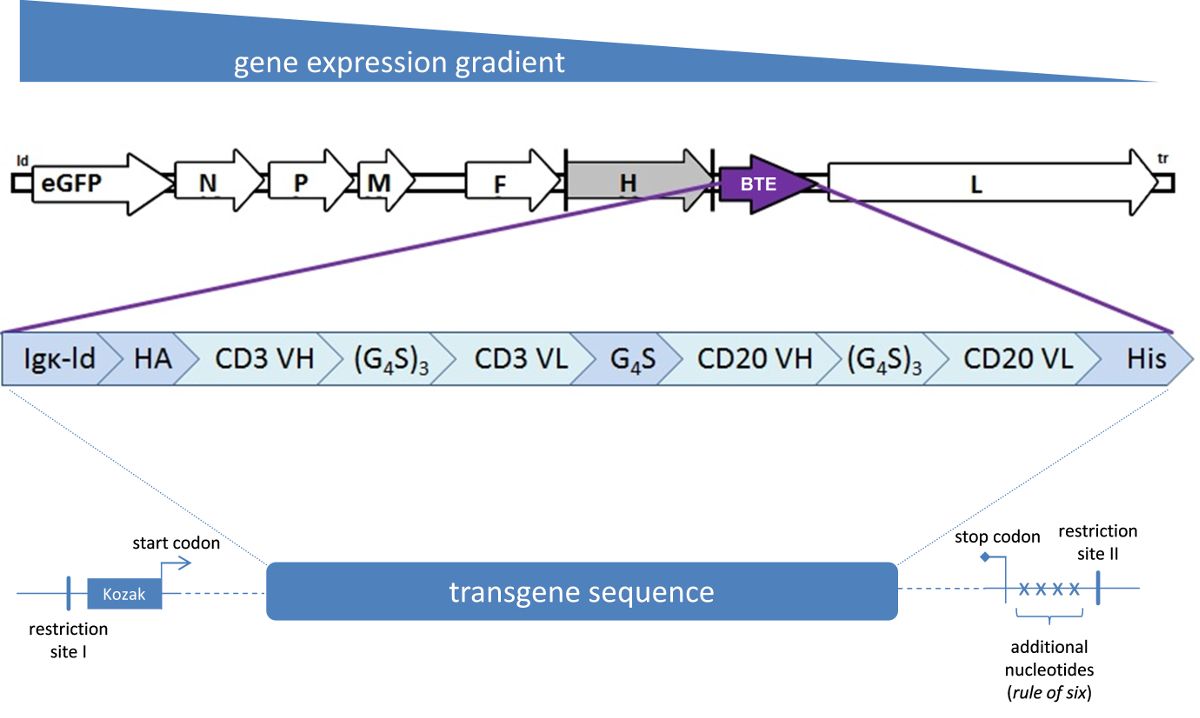
Rysunek 1: Schematyczna reprezentacja genomu wirusa odry. Ulepszone zielone białko fluorescencyjne (eGFP) jest kodowane w dodatkowej jednostce transkrypcyjnej poniżej sekwencji liderowej (ld). N, P, M, F, H i L oznaczają odpowiednio geny kodujące białka strukturalne wirusa odry: nukleoproteinę, białko P, białko macierzy, białko fuzji, hemaglutyninę oraz duże białko (polimerazę), które są różnicowo wyrażane, co przedstawiono powyżej. Transgen bispecyficznego aktywatora limfocytów T (BTE) jest wstawiony do dodatkowej jednostki transkrypcyjnej (ATU) poniżej otwartej ramki odczytu H. Transgen koduje peptyd liderowy immunoglobulin kappa (Igκ) w celu wydajnej sekrecji, a także znaczniki białkowe hemaglutyniny grypy (HA) i heksa-histydyny (His) służące do detekcji i oczyszczania. Geny kodujące domeny zmienne łańcucha ciężkiego (VH) i zmienne łańcucha lekkiego (VL) przeciwciał skierowanych odpowiednio przeciwko CD3 i CD20 są połączone via sekwencje łączników peptydowych zawierających reszty glicyny (G) i seryny (S). Przed sekwencją transgenu znajduje się sekwencja Kozaka. Poniżej regionu kodującego dołączono przykładowe dodatkowe nukleotydy, aby spełnić regułę sześciu. Kaseta insertu jest flankowana przez dwa miejsca restrykcyjne, co umożliwia wstawienie jej do odpowiedniej ATU.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Rapid DNA Dephos & Ligation Kit | Roche Life Science, Mannheim, Germany | 4898117001 | |
| CloneJET PCR Cloning Kit | Thermo Fisher Scientific, St. Leon-Rot | K1231 | |
| Agaroza | Sigma-Aldrich, Taufkirchen, Germany | A9539-500G | |
| QIAquick Gel Extraction Kit | QIAGEN, Hilden, Germany | 28704 | |
| NEB 10-beta Competent E. coli | New England Biolabs (NEB), Frankfurt/Main, Germany | C3019I | |
| QIAquick Miniprep Kit | QIAGEN, Hilden, Germany | 27104 | |
| Enzym restriction HindIII-HF | New England Biolabs (NEB), Frankfurt/Main, Germany | R3104S | |
| Podłoże DMEM (Dulbecco's Modified Eagle's Medium) | Invitrogen, Darmstadt, Germany | 31966-021 | |
| Płócka surowica wołowa (FBS) | Biosera, Boussens, France | FB-1280/500 | |
| FugeneHD | Promega, Mannheim, Germany | E2311 | może zostać zastąpiony wybranym odczynnikiem do transfekcji |
| Kanamycyna | Sigma-Aldrich, Taufkirchen, Germany | K0129 | |
| Komórki Vero | ATCC, Manassas, VA, USA | CCL81 | |
| Płytki 6-dołkowe | Neolab, Heidelberg, Germany | 353046 |
