Geny mogą być manipulowane podczas rozwoju kory mózgowej lub hipokampa szczura za pomocą elektroporacji in utero (IUE) w E16, aby umożliwić szybkie i ukierunkowane modyfikacje połączeń neuronalnych do późniejszych badań zachowania lub neuropatologii u dorosłych zwierząt. Poporodowe obrazowanie in vivo w celu kontroli powodzenia IUE wykonuje się za pomocą bioluminescencji aktywacji kotransfekowanej lucyferazy.
Artykuł metodologiczny
Wytwarzanie miejscowo transgenicznych szczurów za pomocą elektroporacji in utero i badań przesiewowych bioluminescencji in vivo
W tym artykule
Podsumowanie
Streszczenie
Elektroporacja in utero (IUE) to technika, która pozwala na genetyczną modyfikację komórek w mózgu w celu badania rozwoju neuronów. Do tej pory zastosowanie IUE do badania zachowania lub neuropatologii w dorosłym mózgu było ograniczone przez niewystarczające metody monitorowania powodzenia transfekcji IUE za pomocą technik nieinwazyjnych u zwierząt po urodzeniu.
W niniejszym badaniu, szczury E16 zostały użyte do IUE. Po dokomorowym wstrzyknięciu kwasów nukleinowych do zarodków, ustawienie elektrod pęsety miało kluczowe znaczenie dla celowania w rozwijającą się korę mózgową lub hipokamp.
Ko-iniekcja komorowa i elektroporacja genu lucyferazy umożliwiły monitorowanie transfekowanych komórek po narodzinach po dootrzewnowym wstrzyknięciu lucyferyny u znieczulonego żywego szczeniaka P7 poprzez bioluminescencję in vivo, przy użyciu urządzenia IVIS Spectrum z oprogramowaniem do kwantyfikacji 3D.
Definicja obszaru za pomocą bioluminescencji mogłaby wyraźnie rozróżnić elektroporacje korowe i hipokampowe i wykryć sygnał podłużnie w czasie do 5 tygodni po urodzeniu. Ta technika obrazowania pozwoliła nam wyselekcjonować młode z wystarczającą liczbą transfekowanych komórek, które uznano za niezbędne do wywołania efektów biologicznych, a następnie przeprowadzić badania behawioralne w wieku 3 miesięcy. Na przykład badanie to pokazuje, że IUE z ludzkim genem DISC1 o pełnej długości do kory szczura doprowadziło do nadwrażliwości na amfetaminę. Kotransfekowany GFP można było wykryć w neuronach za pomocą pośmiertnej mikroskopii fluorescencyjnej w kriosekcjach wskazujących na ekspresję genów obecnych w ≥6 miesięcy po urodzeniu.
Dochodzimy do wniosku, że obrazowanie bioluminescencyjne po urodzeniu pozwala ocenić powodzenie przejściowych transfekcji z IUE u szczurów. Badania nad wpływem miejscowych manipulacji genami podczas rozwoju neurologicznego na mózg dorosłego człowieka i jego łączność są znacznie ułatwione. W przypadku wielu pytań naukowych technika ta może uzupełnić lub nawet zastąpić wykorzystanie transgenicznych szczurów i zapewnić nowatorską technologię dla neuronauki behawioralnej.
Wprowadzenie
Opracowanie metody elektroporacji in utero (IUE), która pozwala na modulację ekspresji genów w rozwijającym się mózgu, było przełomem, ponieważ umożliwiło stosunkowo łatwe badanie rozwoju neurologicznego. 1-7 Wykazano, że zmiany w poziomach ekspresji docelowego genu w określonym regionie mózgu podczas rozwoju embrionalnego i/lub okołoporodowego u gryzoni mają krytyczny wpływ na proliferację neuronów, migrację, arboryzację i łączność. 8-10
Schizofrenia jest złożoną chorobą psychiczną z ostrymi i przewlekłymi objawami, która została powiązana z nieprawidłowościami neurorozwojowymi11, 12 i dlatego wiele zidentyfikowanych genów kandydujących na schizofrenię jest badanych pod kątem potencjalnego wpływu modulującego na rozwój neurologiczny, jak na przykład dla genu13-15 zaburzonego w schizofrenii-1 (DISC1).
Rozwój mózgu jest regulowany przez czynniki genetyczne i ich interakcje ze środowiskiem, które odgrywają rolę w okresie przed-, około- i poporodowym. Jednym z głównych genetycznych czynników ryzyka różnych zaburzeń zachowania jest gen DISC1 16. Nokaut DISC1 prowadzi do defektów migracji u myszy 13, 17, a manipulacja ekspresją DISC1 w rozwijającej się korze mózgowej przez IUE wpływa na zachowanie dorosłych myszy18.
Manipulowanie ekspresją genów mózgu przez IUE ma kilka zalet19 w porównaniu z generowaniem transgenicznych linii zwierzęcych. Po pierwsze, ekspresja genów w obszarach zainteresowania jest osiągana w ciągu kilku tygodni lub miesięcy, a nie kilku pokoleń hodowlanych transgenicznych linii gryzoni. Po drugie, unika się mechanizmów kompensacyjnych we wczesnym okresie rozwoju, które mogą chronić fenotypy u zwierząt zmodyfikowanych linią zarodkową 20. Po trzecie, poprzez celowanie tylko w określoną populację komórek lub określony obszar mózgu, różnice w migracji lub proliferacji mogą być bezpośrednio porównane z niezmutowaną lub kontrolną stroną przeciwstronną, jeśli wybrano jednostronne elektroporacje. Z drugiej strony, IUE nie ma dokładności czasu ekspresji wywołanego przez promotor cre / lox i tylko subpopulacja komórek w pewnym obszarze jest ukierunkowana, co prowadzi do mozaikowego wzorca ekspresji genów.
Dla wielu eksperymentalnych zastosowań u dorosłych gryzoni, przejściowa transfekcja ograniczonej liczby komórek w obszarze mózgu może być wystarczająca, a nawet pożądana, tak że główna przewaga stabilnych, transgenicznych gryzoni linii zarodkowej jest znikoma. W rzeczywistości IUE jest przydatna do zbadania, czy niektóre nieprawidłowo rozwinięte komórki mogą wpływać na całą sieć komórek lub obwodów. Kolejną zaletą może być możliwość wykazania nieautonomicznych dla komórek efektów genu ze względu na mozaikowy charakter trafienia. Co więcej, pokolenie transgenicznych i nokautujących szczurów jest wciąż w powijakach, a zastosowanie IUE u tego gatunku do badania nieprawidłowych konsekwencji rozwoju mózgu cieszy się dużym zainteresowaniem.
Jak dotąd, główną przeszkodą w użyciu IUE do badania konsekwencji interwencji u tych zwierząt jako dorosłych jest brak monitorowania sukcesu elektroporacji. Do tej pory neurony fluorescencyjne transfekowane GFP u żywych nowonarodzonych szczeniąt szczurów nie mogły być wykryte pod odpowiednim dwuokularowym mikroskopem fluorescencyjnym ani za pomocą obrazowania fluorescencyjnego IVIS Spectrum.
Aby pokonać tę przeszkodę, przeprowadziliśmy kotransfekcję genu reporterowego lucyferazy i przeprowadziliśmy bioluminescencyjne obrazowanie na żywo szczeniąt poprzez trójwymiarową (3D) kwantyfikację obszaru mózgu IUE.
Jako przykład dla zademonstrowania możliwości zastosowania tej metody w późniejszym teście funkcjonalnym testującym neurorozwojową manipulację genetyczną, wykonano jednoczesne wstrzyknięcie plazmidów zawierających ludzki DISC1, lucyferazy i GFP do bocznej komory zarodków szczurów3, a następnie elektroporację za pomocą elektrody pęsetowej. Podczas gdy sygnałów fluorescencyjnych nie można było wykryć w stadiach postnatalnych in vivo, stały sygnał bioluminescencyjny pochodzący z metabolizmu lucyferyny przez kotransfekowany gen lucyferazy został wykryty do pięciu tygodni po urodzeniu. Pomiary 3D elektroporowanego obszaru mózgu pozwoliły na kwantyfikację, dzięki której młode z niewystarczającą lub nieprawidłowo umieszczoną elektroporacją zostały zidentyfikowane od samego początku, umożliwiając w ten sposób przypisanie zwierząt IUE (gen zainteresowania i zakodowana kontrola) do grup eksperymentalnych z dopasowanymi elektroporowanymi obszarami mózgu o niskiej zmienności. Wykorzystanie dorosłych szczurów IUE w paradygmatach behawioralnych zostało zademonstrowane jako przykład użyteczności tego protokołu.
Protokół
Wszystkie eksperymenty na zwierzętach zostały zatwierdzone przez właściwe Landesministerium für Natur, Umwelt und Verbraucherschutz (LANUV NRW; 87-51.05.2010.A301) zgodnie z przepisami krajowymi i europejskimi.
1. Elektroporacja in utero
Metoda ta została szczegółowo opisana w JoVE dla szczura przez Walantus et al.3, a także przez Rice et al.4 i jest tutaj przedstawiona jedynie w skrócie. Liczebność miotu wynosząca 6-8 młodych zapewnia dobry wynik. W celu zwiększenia ogólnego wskaźnika przeżywalności należy zachować co najmniej dwa embriony niepoddane elektroporacji (patrz poniżej).
- Przygotować mieszaninę DNA zawierającą 1,5 μg/μl plazmidu docelowego (shRNA: pENTR-U6; Invitrogen, Eugene, OR / nadekspresja DISC1: pCAX21), 0,5 μg/μl plazmidu zawierającego lucyferazę (pCAX) oraz 0,5 μg/μl plazmidu zawierającego GFP (pCAGGS22) w 1x roztworze PBS zabarwionym na jasnoniebiesko barwnikiem Fast Green.
- Wykonać igły do iniekcji z kapilar szklanych za pomocą wyciągarki do pipet (Needle Pipette Puller). Instrumenty chirurgiczne wysterylizować w autoklawie lub poprzez inkubację z dezynfekcją na bazie alkoholu (kodan Tinktur forte).
- Podać przedoperacyjną dawkę buprenorfiny (0,05 mg/kg) na 15 min przed operacją ciężarnej szczurzycy w 16. dniu po zapłodnieniu (E16). Następnie uśpić zwierzę w komorze z izofluranem.
- Po znieczuleniu ułożyć szczurzycę w pozycji na plecach na stole operacyjnym podgrzanym do 37 °C, z maską oddechową podłączoną do urządzenia do znieczulania, przy ustawieniu przepływu tlenu na 0,4 L/min i stężeniu izofluranu 1,8%.
- Po ogoleniu brzucha zdezynfekować ogoloną okolicę trzykrotnie preparatem kodan Tinktur Forte (środek dezynfekujący na bazie alkoholu).
- Przykryć szczurzycę sterylnymi ściereczkami, odsłaniając jedynie ogolone pole operacyjne.
- Przeprowadzić elektroporację in utero.
- Naciąć brzuch nożyczkami wzdłuż linea alba (~2 cm).
- Ostrożnie odsłonić rogi macicy za pomocą kleszczyków pierścieniowych.
- Dbać o to, aby ściana macicy pozostawała wilgotna dzięki podawaniu podgrzanego sterylnego PBS przez cały czas trwania operacji.
- Wstrzyknąć roztwór DNA cienką szklaną igłą do jednego z komór bocznych zarodków.
- Umieścić elektrodę 7 mm wokół głowy zarodka. Aby objąć populację komórek górnych warstw kory, przeprowadzić IUE w dniu E1623 i umieścić elektrodę dodatnią na półkuli nad wstrzykniętą komorą z lekkim nachyleniem grzbietowo-bocznym. W celu ukierunkowania na komórki hipokampa zmienić położenie elektrody dodatniej na stronę przeciwległą do wstrzykniętej komory, kierując ją bocznie lub lekko grzbietowo (Rysunek 1).
- Przeprowadzić elektroporację, stosując pięć impulsów o czasie trwania 50 msec przy napięciu 55 V z przerwami 950 msec, używając elektroporatora z impulsem prostokątnym.
- Pominąć pierwszy zarodek od strony pochwy w każdym rogu macicy, aby zwiększyć szanse na przeżycie wszystkich zarodków.
- Umieścić rogi macicy z powrotem w organizmie szczurzycy.
- Zszyć ścianę brzucha wchłanialnym materiałem chirurgicznym Vicryl.
- Zamknąć skórę materiałem szewnym Vicryl lub klipsami chirurgicznymi.
- Umieścić szczurzycę z powrotem w klatce domowej i utrzymywać w cieple przez 2-3 h.
- Utrzymywać szczurzyce pojedynczo w klatkach domowych w pomieszczeniu dla zwierząt i karmić ad libitum. Poród następuje między E22 a E24.
- Utrzymywać młode szczury z matką przez trzy tygodnie, a następnie rozdzielić je według płci.
2. Obrazowanie bioluminescencyjne w czasie rzeczywistym enzymatycznej reakcji lucyferazy
Metoda ta jest stosowana do analizy położenia komórek przetransfekowanych in utero. Współelektroporowany cDNA lucyferazy świetlika jest tłumaczony na aktywną lucyferazę, która podczas metabolizowania D-lucyferyny do oksylucyferyny emituje foton (Rysunek 2). Powstałą luminescencję można wykryć w mózgach młodych szczurów z pozytywną elektroporacją za pomocą systemu IVIS Spectrum do około 35 dnia po urodzeniu (Rysunek 4).
W niniejszym badaniu test lucyferazy oraz obrazowanie bioluminescencyjne przeprowadzono począwszy od dnia P7. Punkt czasowy ten wybrano, aby umożliwić matce i młodym regenerację po stresie związanym z porodem. Podczas początkowych prac z młodymi w dniu P0 przeżywalność szczeniąt była znacznie obniżona, gdyż znajdowano je martwe lub zostały one zjedzone przez matkę.
W pierwszej kolejności szczury noworodkowe, u których electroporacja przebiegła pomyślnie, są identyfikowane za pomocą obrazu bioluminescencji 2D przy czasie ekspozycji wynoszącym trzy minuty. Następnie osobniki pozytywne są wykorzystywane do tworzenia obrazów 3D w celu precyzyjnego określenia lokalizacji obszaru poddanego electroporacji.
- Rozcieńczyć sól sodową D-lucyferyny w PBS do stężenia 15 mg/ml i wysterylizować ją poprzez filtrację za pomocą sterylnego filtra strzykawkowego.
- Zważyć młode szczury.
- Ująć młode zwierzę w dłoń brzuchem do góry i lekko go rozciągnąć. Wstrzyknąć dożylnie 10 μl/g masy ciała roztworu lucyferyny. W przypadku osobników starszych i bardziej ruchliwych, przed wstrzyknięciem lucyferyny przeprowadzić wstępną anestezję izofluranem w komorze indukcyjnej.
- Włączyć dopływ izofluranu w systemie anestezji gazowej XGI-8 w urządzeniu IVIS Spectrum z użyciem 3% izofluranu.
- Umieścić pysk zwierzęcia w szklanych stożkach nosowych systemu anestezji.
- Utrzymywać zwierzę w pozycji brzusznej aż do osiągnięcia głębokiej anestezji (2-3 min). Następnie zmniejszyć dopływ izofluranu do 1,5%.
- Wybrać pomiar bioluminescencji 2D, aby wyłonić osobniki pozytywne z całego miotu. Użyć następujących ustawień:
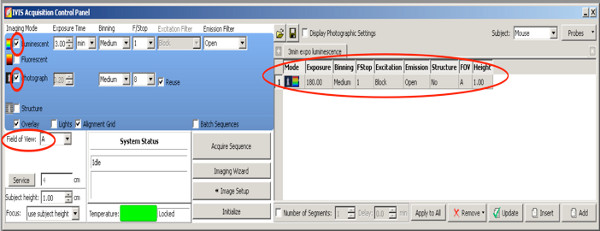
Kliknij tutaj, aby wyświetlić większą grafikę.- Zaznaczyć opcję Photograph z binningiem medium i przysłoną (F/Stop) 8; kamera wykona zdjęcie z góry po rozpoczęciu pomiaru.
- Ustawić filtr wzbudzenia (Excitation filter): block.
- Ustawić filtr emisji (Emission filter): open.
- Ustawić Binning na medium.
- Ustawić F/Stop na 1.
- Ustawić poziom platformy (Stage level) na A.
- Ustawić czas ekspozycji luminescencji na 180 sec.
- W celu stworzenia obrazów 3D dla lepszej kwantyfikacji obszaru elektroporowanego u osobników pozytywnych, użyć następujących ustawień DLIT dla lucyferazy świetlikowej:
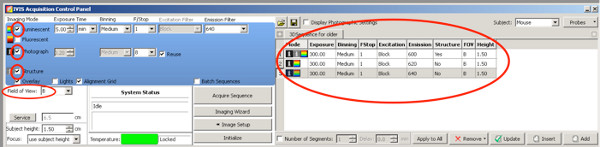
Kliknij tutaj, aby wyświetlić większą grafikę.- Zaznaczyć opcję Photograph; kamera wykona zdjęcie z góry po rozpoczęciu pomiaru.
- Zaznaczyć opcję Structure; powierzchnia zwierzęcia zostanie zeskanowana przez IVIS przed pomiarem bioluminescencji.
- Do wieku dwóch tygodni stosować następujące filtry emisji i ustawienia czasu ekspozycji:
Filtr emisji 1: 590 nm, czas ekspozycji 300 sec
Filtr emisji 2: 600 nm, czas ekspozycji 240 sec
Filtr emisji 3: 620 nm, czas ekspozycji 180 sec
Filtr emisji 4: 640 nm, czas ekspozycji 120 sec
Dla szczurów starszych niż P20:
Filtr emisji 1: 600 nm, czas ekspozycji 300 sec
Filtr emisji 2: 620 nm, czas ekspozycji 300 sec
Filtr emisji 3: 640 nm, czas ekspozycji 300 sec
Kliknij tutaj, aby wyświetlić większą grafikę.
Ze względu na spadek natężenia sygnału u starszych zwierząt, czas ekspozycji dla trzech najlepszych filtrów emisji został wydłużony. - Ustawić poziom platformy (Stage level) na B.
- Ustawić Binning na medium.
- Ustawić F/Stop na 1.
- Po pomiarze oznakować szczury kodem w uchu, aby odróżnić je od siebie i dopasować do obrazów z systemu IVIS Live Imaging.
- Po zakończeniu procedury pomiarowej wyłączyć dopływ izofluranu i pozostawić szczura na podgrzewanej platformie przez kilka minut przed powrotem do klatki.
3. Analiza obrazów bioluminescencyjnych
Generowanie obrazów 3D, filmów 3D oraz kwantyfikacja objętości źródła sygnału są realizowane za pomocą oprogramowania Living Image zainstalowanego fabrycznie w systemie IVIS Spectrum.
- Generowanie obrazów 3D
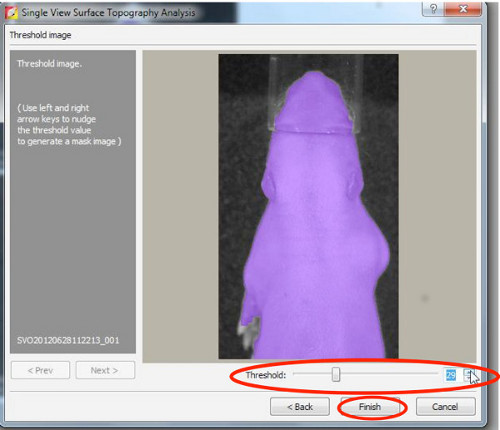
- W pierwszej kolejności należy zrekonstruować topografię powierzchni, ustawiając próg w zakresie 20-30%.
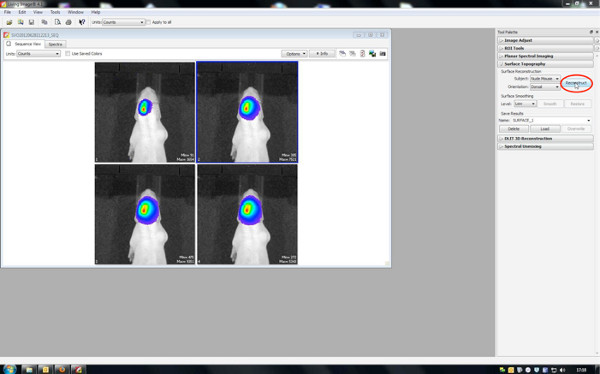
Kliknij tutaj, aby wyświetlić powiększoną rycinę.
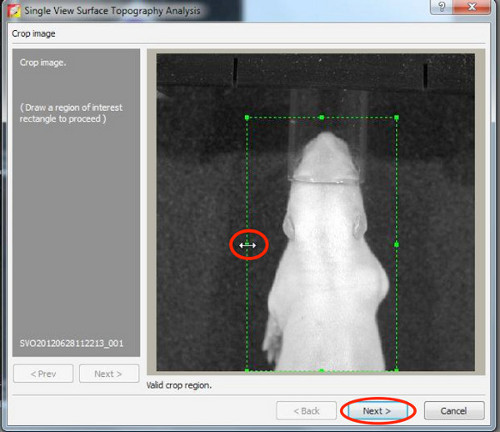
- Uruchom rekonstrukcję 3D metodą DLIT z progiem obrazu wynoszącym 10% dla każdej długości fali.
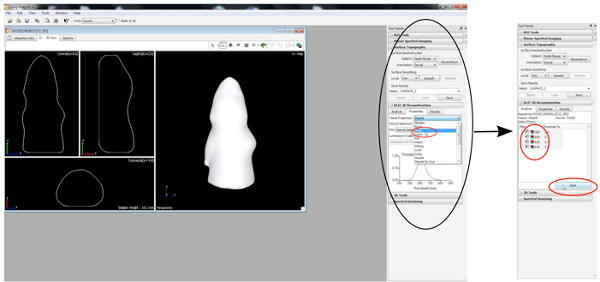
Kliknij tutaj, aby wyświetlić powiększoną rycinę.
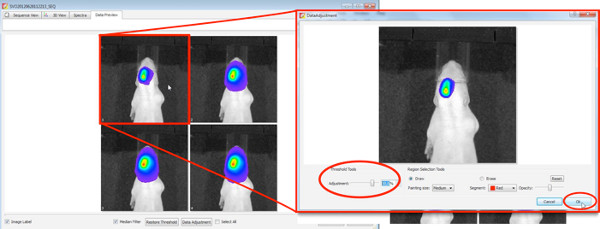
Kliknij tutaj, aby wyświetlić powiększoną rycinę.
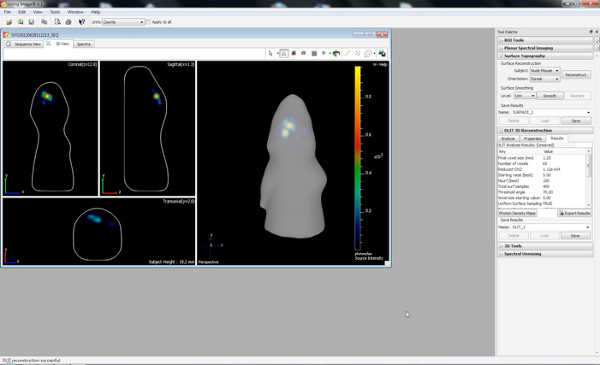
Kliknij tutaj, aby wyświetlić powiększoną rycinę. - Twórz filmy 3D, korzystając z przycisku animate w pasku narzędzi 3D.
- Wybierz różne orientacje obrazu 3D oraz widoki powiększone jako klatki kluczowe, a następnie naciśnij przycisk „Record”, aby zarejestrować przejście z jednej pozycji/orientacji do drugiej.
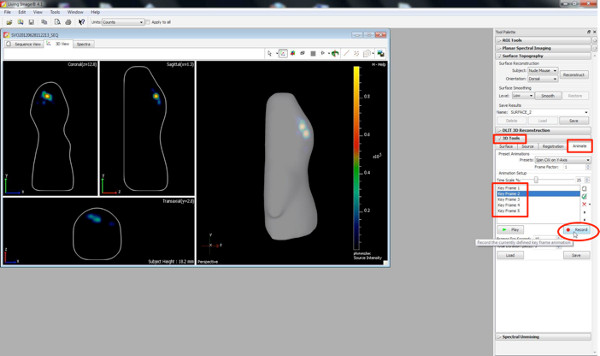
Kliknij tutaj, aby wyświetlić powiększoną rycinę.
- W pierwszej kolejności należy zrekonstruować topografię powierzchni, ustawiając próg w zakresie 20-30%.
4. Testy behawioralne
Przeprowadzono testy behawioralne, aby ustalić, czy manipulacje genetyczne za pomocą IUE u szczurów mogą wywołać długotrwałe efekty utrzymujące się w wieku dorosłym. W niniejszym konkretnym przypadku zbadano efekt przejściowej, jednostronnej nadekspresji pełnej długości ludzkiego białka DISC1 w korze po IUE, testując lokomocję w otwartym polu (OF), z niską dawką amfetaminy oraz bez niej, jako specyficzny test zachowań związanych z dopaminą 24. W podobnej procedurze przeprowadzonej przez Niwa et al. u myszy poddanych IUE z wykorzystaniem wyciszania genu DISC1, myszy z grup IUE, a nie kontrolne, wykazywały nadwrażliwość na amfetaminę18.
Szczury, u których przeprowadzono elektroporację in utero wektorem nadekspresyjnym DISC1, przetrzymywano w warunkach laboratoryjnych przy 12-godzinnym cyklu świetlnym od godziny 7:00 do 19:00 i karmiono ad libitum. W wieku 3 miesięcy szczury poddano testom behawioralnym.
W celu ilościowego określenia lokomocji jako wskaźnika efektów amfetaminy wykorzystano pole otwarte systemu aktywności Tru Scan umieszczonego w komorze izolowanej akustycznie i świetlnie. System ten mierzy czas trwania i dystans przemieszczania się zwierzęcia, czas i dystans spędzony na obrzeżach lub w centrum pola otwartego, a także zachowanie w postaci stania na tylnych łapach25.
- Dzień pierwszy, test po wstrzyknięciu soli fizjologicznej
- Zważ zwierzęta.
- Wstrzyknij dootrzewnowo 1 μl/g masy ciała roztworu soli fizjologicznej (1x PBS).
- Bezpośrednio po wstrzyknięciu umieść zwierzę w otwartym polu i rozpocznij pomiar w systemie TruScan. Nagrywaj przez 15 min, a następnie podziel dane na 3 części po 5 min każda.
- Umieść zwierzę z powrotem w jego klatce domowej.
- Dzień drugi, test po wstrzyknięciu amfetaminy
- Zważ zwierzęta.
- Wstrzyknij dootrzewnowo 1 μl/g masy ciała roztworu amfetaminy o stężeniu 0,5 mg/ml.
- Bezpośrednio po wstrzyknięciu umieść zwierzę w otwartym polu i rozpocznij pomiar w systemie TruScan. Nagrywaj przez 15 min, a następnie podziel dane na 3 części po 5 min każda.
- Wróć zwierzę do jego klatki domowej.
- Przeanalizuj lokomocję i zachowania rearingowe za pomocą dedykowanego oprogramowania Tru Scan. Utwórz wykresy w programie GraphPad (Prism) i oblicz statystyki przy użyciu oprogramowania SPSS Statistics.
Wyniki
Rysunek 3 przedstawia pomiary obrazowania na żywo trzech szczurząt w dniu P7 po wstrzyknięciu 150 mg lucyferyny/kg masy ciała. Widoczne są różnice w sile sygnału, wskazujące na zmienność efektywności IUE. Silne sygnały bioluminescencyjne rejestrowano aż do dnia P36 (Rysunek 4). Na Rysunku 5 przedstawiono możliwość określenia zakresu elektroporacji kory (Rysunki 5A i 5C) oraz hipokampa (Rysunki 5B i 5D) za pomocą obrazowania bioluminescencyjnego. Korelację sygnału bioluminescencyjnego (Rysunek 7A) z sygnałem fluorescencyjnym po usunięciu czaszki (Rysunek 7B) oraz odpowiadające im komórki elektroporowane GFP w krio-przekrojach mózgu (Rysunek 8) w dniu P14 przedstawiono na Rysunkach 6-8. Należy zauważyć, że w żadnym punkcie czasowym nie wykryto sygnału fluorescencyjnego u żywych szczurów.
In vivo obrazowanie bioluminescencyjne umożliwia przybliżone rozróżnienie różnych elektroporowanych obszarów mózgu w 2D (Rycina 5A oraz 5B), co jest znacznie usprawnione dzięki programowi DLIT oprogramowania IVIS Spectrum generującemu obrazy 3D (Rycina 5C oraz 5D). Na przedstawionych przykładach można było rozróżnić elektroporację kory przedczołowej oraz hipokampa. Należy zauważyć, że podczas dążenia do elektroporacji hipokampa, mogą zostać również objęte procesem niektóre komórki progenitorowe kory położone grzbietowo względem hipokampa (Rycina 7).
Szczury, u których przeprowadzono jednostronną elektroporację in utero kory mózgu wektorem pCAX, a następnie wywołano nadekspresję pełnej długości ludzkiego białka DISC1, zostały zbadane pod kątem hiperaktywności spontanicznej oraz indukowanej amfetaminą w wieku dorosłym. Szczury elektroporowane pCAX-DISC1 wykazywały nadwrażliwość na niską dawkę amfetaminy. Zwierzęta te poruszały się istotnie więcej po podaniu amfetaminy niż po wstrzyknięciu soli fizjologicznej, podczas gdy w grupie kontrolnej nie zaobserwowano takiej reakcji (Rysunek 10).
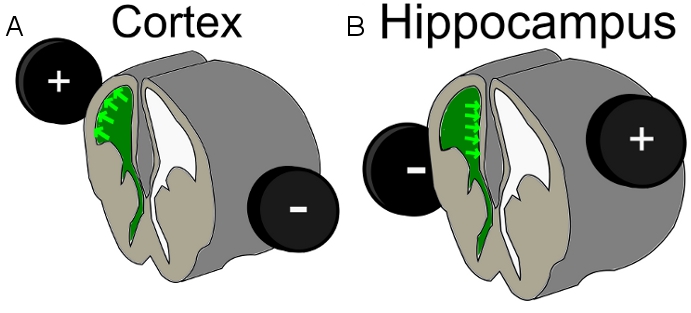
Rycina 1. Schemat rozmieszczenia elektrod dla A) elektroporacji kory oraz B) elektroporacji hipokampa; kolor zielony = wstrzyknięta mieszanina DNA w komorze mózgu.
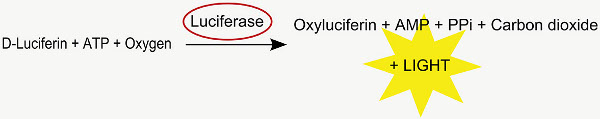
Rycina 2. Reakcja lucyferazy.
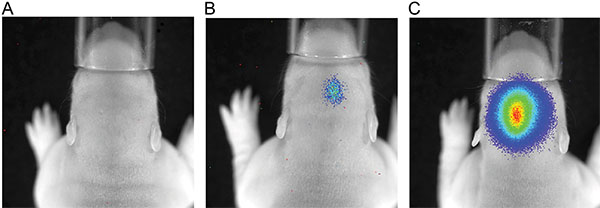
Rycina 3. Pomiar luminescencji szczurów P7 po wstrzyknięciu 150 mg/kg masy ciała lucyferyny; czas ekspozycji 180 sec; A) szczur bez sygnału luminescencji; B) szczur ze słabym sygnałem bioluminescencji; C) szczur z silnym sygnałem luminescencji.
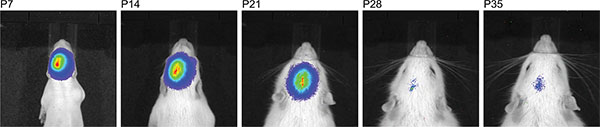
Rycina 4. Oś czasu kolejnych pomiarów bioluminescencji u tego samego szczura po wstrzyknięciu 150 mg/kg lucyferyny, wykazująca szerokie okno czasowe, w którym można wykryć sukces IUE.
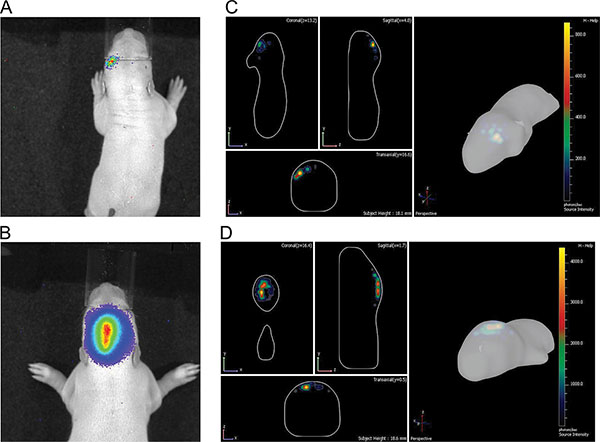
Rycina 5. Ilustracja różnic między elektroporacją korową a hipokampalną w dniu P7. A) i B) obrazy 2D; C) i D) obrazy 3D; A) i C) z kory mózgu; B) i D) z hipokampa. Kliknij tutaj, aby wyświetlić powiększoną rycinę.
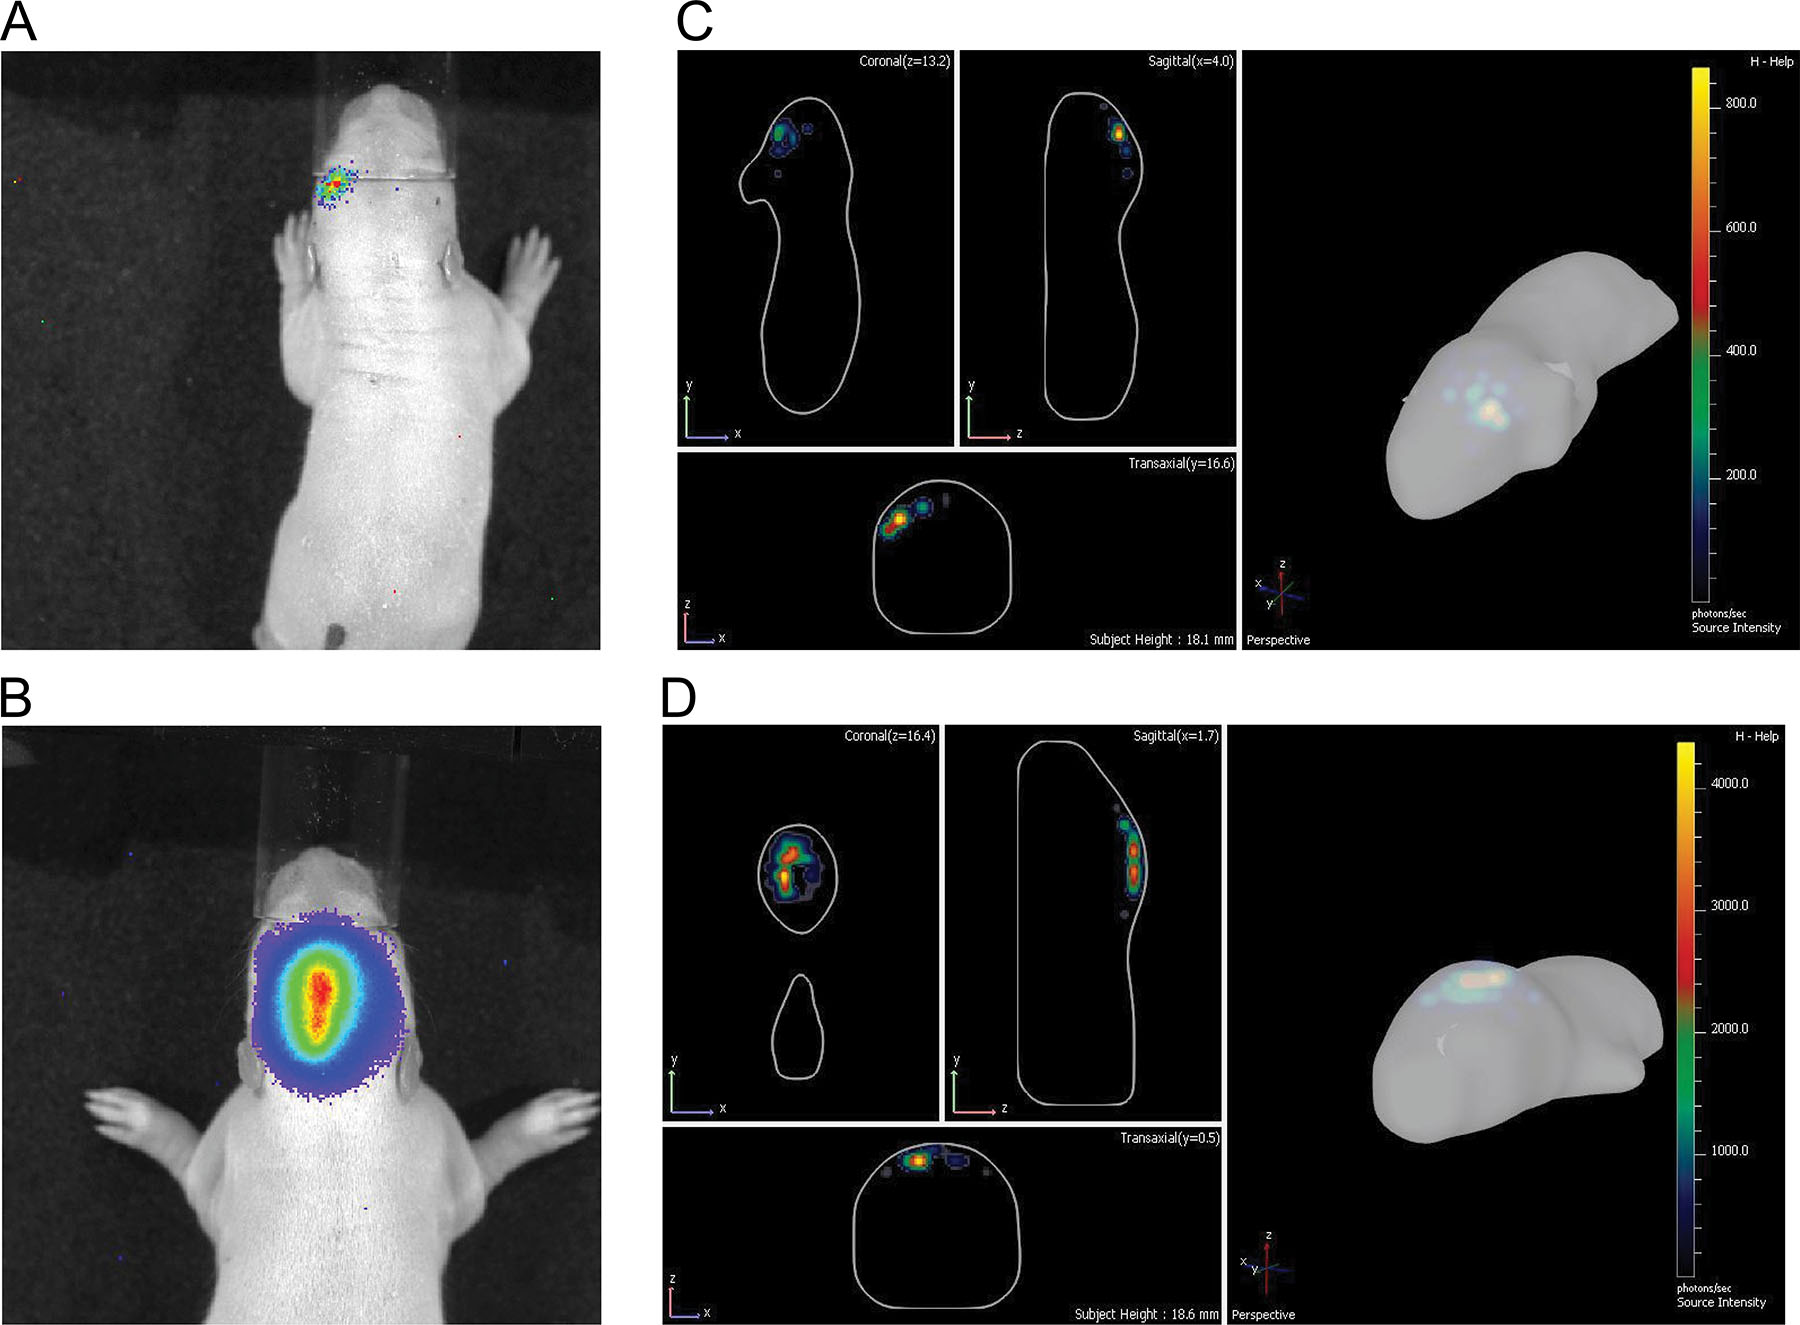
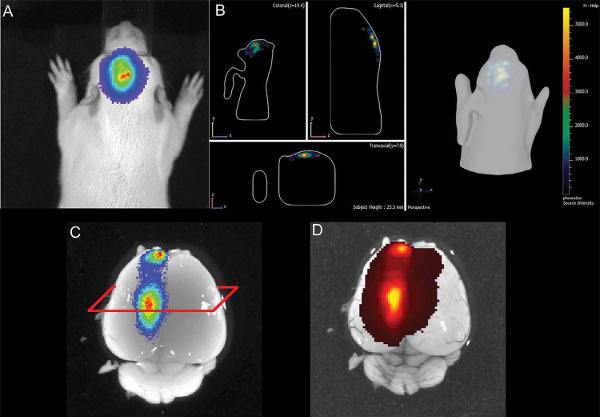
Rysunek 6. Ilustracja elektroporacji hipokampa E16 u szczura w wieku P14 A) obraz 2D bioluminescencji B) ilustracja 3D sygnału bioluminescencji C) wypreparowany mózg z sygnałem bioluminescencji D) mózg z sygnałem epi-fluorescencji GFP. Kliknij tutaj, aby wyświetlić większy rysunek.
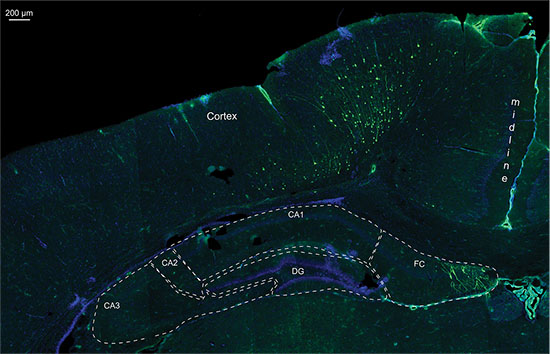
Rysunek 7. Szczegół zdjęcie fluorescencyjne z 20 μm krioprzekroju tego samego mózgu szczura P14, poddanego elektroporacji plazmidem zawierającym GFP i wektorem lucyferazy, barwienie jąder DAPI; CA1-3 = Cornu Ammonis 1-3; DG = zakręt zębaty; FC = Fasciolarum cinereum.
Film 1. Animacja 3D hipokampa electroporowanego szczura w 14. dniu po urodzeniu (P14).
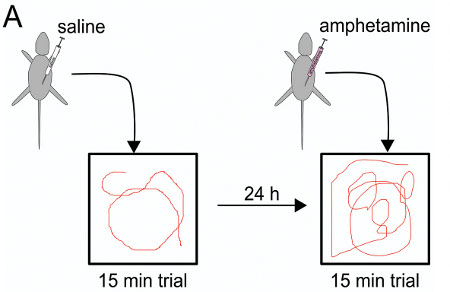
Rycina 8. Schemat testu amfetaminowego: pierwszego dnia iniekcja soli fizjologicznej przed 15 min próbą, 24 h później iniekcja amfetaminy przed testowaniem w komorze otwartego pola.
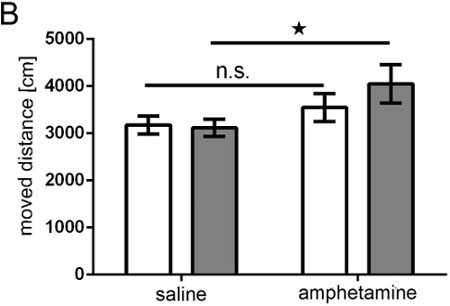
Rycina 9. Test amfetaminowy. Wykres słupkowy przedstawiający przebyty dystans (w cm) zwierzęcia zarejestrowany przez system TrueScan w ciągu 15 min. Białe słupki = grupa kontrolna; szare słupki = grupa z nadekspresją DISC1; grupa kontrolna n = 10; grupa z nadekspresją DISC1 n = 11; ANOVA: geno*treatment p = 0.043; test T dla całkowitego czasu soli fizjologicznej względem amfetaminy n.s. = brak istotności pcontrol = 0.172, pDISC1 = 0.001.
Dyskusja
Nasze badanie pokazuje, że IUE nadaje się do generowania dorosłych szczurów z neuronami wyrażającymi transgen w selektywnym obszarze mózgu i że w wyniku tej interwencji zwierzęta te wykazują zmiany w zachowaniu wskazujące na funkcjonalność wykonanej manipulacji. W tym badaniu, na przykład, szczury z nadekspresją DISC1 jednostronnie w niewielkiej części kory przedczołowej wykazywały nadwrażliwość na amfetaminę (ryc. 9).
Selekcja szczurów pod kątem powodzenia elektroporacji za pomocą obrazowania bioluminescencyjnego in vivo była skuteczna w kontrolowaniu nieodłącznej zmienności transfekcji komórek IUE i została zastosowana do wygenerowania grup o jednorodnym obszarze IUE o niskiej zmienności międzyosobniczej do późniejszych badań.
W tym badaniu nie byliśmy w stanie wybrać elektroporowanych szczeniąt z miotu poprzez wykrycie współelektroporowanej fluorescencji indukowanej przez GFP u nowonarodzonego zwierzęcia, mimo że w tym samym czasie i u tego samego zwierzęcia można było wykryć sygnał bioluminescencji równie elektropostowanej lucyferazy po wstrzyknięciu lucyferyny (Figura 6), a neurony wyrażające GFP były nadal obecne w mózgu w wieku sześciu miesięcy. Wnioskujemy, że u szczurów reakcja lucyferazy / lucyferyny jest dobrze przystosowana do różnicowania zwierząt z udanymi mózgami poddanymi elektroporacją (ryc. 3).
Ilościowe monitorowanie powodzenia IUE odnosi się do siły sygnału bioluminescencji, który jest mierzony za pomocą liczby fotonów w tym samym czasie ekspozycji (ryc. 3) i odpowiada aktywności enzymatycznej koekspresji lucyferazy. Małe sygnały bioluminescencyjne są wykrywalne przez 100-200 zliczeń fotonów, a przy promieniowaniu ~ 1x10⁴ fotony / s / cm2 / steradian pokazują 1,000-2,000 komórek barwionych GFP w histologii w 6-miesięcznym mózgu szczura. Najwyższy sygnał wykazywał promieniowanie do ~5x10⁶ fotonów/s/cm2/steradian i ~64 000 zliczeń.
W zastosowanym szczepie szczurów Sprague Dawley zaobserwowaliśmy osłabienie sygnału bioluminescencji wzdłużnie wraz z wiekiem, a sygnał zniknął po osiągnięciu wieku P35 (ryc. 4). W tym momencie nie wiemy, czy albo przejściowa, oparta na wektorze plazmidowym ekspresja lucyferazy zmniejsza się, czy sygnał bioluminescencji słabnie z powodu wzrostu masy mózgu, czy też oba są przyczyną zanikającego sygnału. W przypadku obecnego testu funkcjonalnego u dorosłych szczurów, wybór do badań behawioralnych został dokonany jedynie na podstawie lokalizacji sygnału, ale nie na podstawie siły sygnału bioluminescencji.
Mimo że ilościowe monitorowanie bioluminescencji 3D pozwoliło na rozróżnienie różnych obszarów poddanych elektroporacji (ryc. 5), jego dokładność była ograniczona w przypadku komórek znajdujących się w głębi mózgu. Rysunek 6 przedstawia przykład elektroporacji hipokampa, w której pomiar bioluminescencji w obrazie 2D i 3D wskazał na dobre umiejscowienie elektroporacji. W wypreparowanym mózgu pośmiertnym wykryto sygnał fluorescencji GFP mniej więcej w tym samym miejscu, co sygnał bioluminescencji, co wskazuje na prawidłowe celowanie w hipokamp. Ale histologia pokazuje, że celem były również komórki w korze grzbietowej hipokampa (ryc. 7). Wskazuje to, że test bioluminescencyjny jest użytecznym narzędziem do wykrywania dodatnich szczeniąt IUE, a także do wyobrażenia sobie obszaru elektroporowanego, ale ostatecznie obrazowanie nie może zastąpić histologii pośmiertnej w celu dokładnej lokalizacji komórek ukierunkowanych pozytywnie.
Nasza demonstracja daje nadzieję na zastosowanie technologii IUE do generowania subtelnych, ukierunkowanych manipulacji obszarami mózgu w korze lub hipokampie w celu symulacji nieprawidłowości w migracji kory mózgowej lub innych wad neurorozwojowych, które mogą wpływać na dorosłe zwierzę. Podczas gdy obustronna elektroporacja26 ma tę zaletę, że prawdopodobnie ma większy wpływ na zachowanie, występuje również większa śmiertelność zarodków. Jednostronna elektroporacja została wybrana w celu porównania dwóch półkul z jedną jako kontrolą wewnętrzną, a także w celu pokazania, że nawet manipulowanie IUE w jednostronnym, małym obszarze jest wystarczające do zmiany zachowania. Wywołane przez IUE zmiany w łączności lub architekturze między neuronami mogą być zatem indukowane bez wywoływania zmiany chorobowej, a wymagane dopasowanie regionu, który ma być manipulowany przez IUE, do odpowiedniego testu behawioralnego, zależy od pytania naukowego.
Rozwiązywanie problemów
Zmniejszona liczebność miotu Istnieje kilka sugestii dotyczących zwiększenia przeżywalności szczeniąt IUE. Po pierwsze, zaleca się stosowanie bardzo cienkich szklanych naczyń włosowatych podczas elektroporacji w celu zminimalizowania uszkodzeń tkanek. Po drugie, nie należy elektrolizować pierwszego zarodka na końcu pochwy każdego rogu macicy: śmierć pierworodnego zarodka zwiększa szanse na aborcję wszystkich innych zarodków. Po trzecie, po urodzeniu samice szczurów często zabijają część swojego potomstwa z powodu stresu okołoporodowego. Aby zredukować dodatkowy stres, nie zaczynaj od obrazowania na żywo zaraz po urodzeniu, ale poczekaj siedem dni.
Wykrywanie fluorescencji GFP u szczeniąt
Po upływie tygodnia od urodzenia brak sygnału fluorescencji przy użyciu mikroskopowego obrazowania fluorescencyjnego na żywo lub obrazowania fluorescencyjnego za pomocą widma IVIS (tryby epifluorescencji i transfluorescencji; dla wzbudzenia/emisji GFP: 465/520 nm i 500/540 nm). Możliwe, że zarówno ograniczona transmisja światła o krótkiej długości fali, wzbudzenia i emisji przez tkankę taką jak czaszka, jak i wysokie tło autofluorescencji skóry uniemożliwiają stosowanie fluorescencji w opisanych warunkach u szczura. Jak pokazano na rycinie 6, sygnał lucyferazy u żywego zwierzęcia można również wykryć w wypreparowanym mózgu (bez czaszki) i tam również wykrywalny jest sygnał fluorescencyjny (ryc. 6D).
Różnicowanie bioluminescencji w blisko rozmieszczonych obszarach mózgu
Nawet na ilustracji 3D nie da się przewidzieć położenia obszaru bioluminescencji z dokładnością do 100%. Zwłaszcza komórki znajdujące się na górze lub poniżej przewidywanego obszaru mogą być również przypadkowo namierzone i transfekowane. Dokładna pozycja musi być kontrolowana za pomocą histologii post mortem (fluorescencji) (patrz ryc. 7).
Oświadczenia
Autorzy tego badania nie mają interesu finansowego w tym badaniu i nie byli sponsorowani przez przemysł w tym badaniu. Opłaty za otwarty dostęp zostały wniesione przez PerkinElmer Inc. po publikacji.
Podziękowania
Autorzy dziękują Tracy Young-Pearse i Atsushi Kamiya za dostarczenie plazmidów.
Ta praca została sfinansowana przez NEURON-ERANET DISCover dla O.R. i C.K. (BMBF 01EW1003), DFG (Ko 1679/3-1; GRK1033) do C.K. i (DE 792/2-4) do M.A.S.S.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Nazwa odczynnika | |||
| Dulbecco's Phosphate-Buffered Saline (PBS) | Invitrogen | 14190-250 | bez wapnia, bez magnezu |
| D-lucyferyna, sól sodowa | SynChem OHG, Niemcy | BC218 | Numer CAS: 103404-75-7 substrat dla lucyferazy świetlika |
| Fast Green FCF | Sigma Aldrich, USA | F7258-25G | CAS: 2353-45-9 |
| D-Amphetamine | Sigma Aldrich, USA | A 5880 | CAS: 51-63-8 |
| kodan Tinktur forte | Schü lke Mayr GmbH, Niemcy | 104 005 | |
| Materiał / produkt | |||
| szklane kapilary | Sutter Instrument | Novato, Kalifornia, USA | borokrzemianowe Średnica o.d.: 1 mm, średnica wewnętrzna: 0,78 mm |
| Ściągacz do pipet igłowych | David Kopf Instruments | Tujunga, Kalifornia, USA | |
| Elektroda pęsetowa | Nepa Gene CO., LTD. | Shioyaki, Ichikawa, Chiba, Japonia | Platynowe elektrody dyskowe o średnicy 7 mm (CUY650P7) |
| Nożyczki chirurgiczne - ostre | Fine Science Tools | Heidelberg, Niemcy | Proste, 12 cm (14002-12) |
| Kleszcze pierścieniowe | Fine Science Tools | Heidelberg, Niemcy | 2,2 mm ID, 3 mm OD (11021-12) |
| Elektroporator impulsów fali prostokątnej (CUY21SC) | Nepa Gene CO., LTD. | Shioyaki, Ichikawa, Chiba, Japonia( | CUY21SC) |
| Chirurgiczny materiał do szwów Vicryl | Ethicon | Norderstedt, Niemcy | 3-0; 2 Ph. Eur; |
| Aplikator do spinania ran | Fine Science Tools | Heidelberg, Niemcy | Reflex 9 mm (12032-09) |
| Filtr strzykawkowy | VWR | Darmstadt, Niemcy | 0,45 μ m octan celulozy |
| IVIS | Spectrum Caliper Life Science / PerkinElmer | Waltham, MassachusettsUSA | |
| XGI-8 System anestezjologii gazowej | PerkinElmer | Waltham, Massachuset tsUSA | |
| Instrumenty Coulbourn na | otwartym polu | Allentown, USA( | 40 x 40 x 39 cm) |
| System aktywności Tru Scan | Coulbourn Instruments | Allentown, USA | |
| Tabela przepisów | |||
|---|---|---|---|
| Number | Nazwa bufora | Content | Komentarze |
| 1 | Mieszanina DNA do nadekspresji DISC-1 | 1,5 μ g/μ l pCAX humanDISC-1, 0,5 μ g/μ l pCAX-lucyferaza, 10x PBS (10 %) Fast Green Dye (0,5 %) dodać H2O | 100 μ l mieszaniny wystarczają na ~5 IUE |
| 2 | DNA-Mixure dla kontroli | 0,75 μ g/μ l kontroluj shRNA1, 0,75 μ g/μ l kontroluj shRNA2, 0,5 i mu; g/μ l pCAX-lucyferazy, 0,5 & mu; g/μ l pCAGGS-GFP 10x PBS (10 %) Fast Green Dye (0,5 %) dodać H2O | 100 μ l mieszanki wystarczają na ~5 IUE |
| 3 | Fast Green Dye | 10 mg/ml Fast Green FCF w ddH2O | |
| 4 | D-lucyferyna roztwór | 15 mg/ml D-lucyferyna, sól sodowa w PBS | |
| 5 | Roztwór amfetaminy | 0,5 mg/ml D-amfetamina w PBS |
Bibliografia
- Saito, T., Nakatsuji, N. Efficient gene transfer into the embryonic mouse brain using in vivo electroporation. Developmental Biology. 240, 237-246 (2001).
- Fukuchi-Shimogori, T., Grove, E. A. Neocortex patterning by the secreted signaling molecule FGF8. Science. 294, 1071-1074 (2001).
- Walantus, W., Elias, L., Kriegstein, A. In Utero Intraventricular Injection and Electroporation of E16 Rat Embryos. J. Vis. Exp. (6), e236(2007).
- Rice, H., Suth, S., Cavanaugh, W., Bai, J., Young-Pearse, T. L. In utero Electroporation followed by Primary Neuronal Culture for Studying Gene Function in Subset of Cortical Neurons. J. Vis. Exp. (44), e2103(2010).
- Takahashi, M. Manipulating gene expressions by electroporation in the developing brain of mammalian embryos. Differentiation. 70, 155(2002).
- Tabata, H., Nakajima, K. Efficient in utero gene transfer system to the developing mouse brain using electroporation: visualization of neuronal migration in the developing cortex. Neuroscience. 103, 865-872 (2001).
- Nakahira, E., Yuasa, S. Neuronal generation, migration, and differentiation in the mouse hippocampal primoridium as revealed by enhanced green fluorescent protein gene transfer by means of in utero electroporation. J Comp Neurol. 483, 329-340 (2005).
- Young-Pearse, T. L., et al. A critical function for beta-amyloid precursor protein in neuronal migration revealed by in utero RNA interference. The Journal of Neuroscience : the Official Journal of the Society for Neuroscience. 27, 14459-14469 (2007).
- Niwa, M., et al. Knockdown of DISC1 by in utero gene transfer disturbs postnatal dopaminergic maturation in the frontal cortex and leads to adult behavioral deficits. Neuron. 65, 480-489 (2010).
- Sapir, T., et al. Accurate balance of the polarity kinase MARK2/Par-1 is required for proper cortical neuronal migration. The Journal of Neuroscience : the Official Journal of the Society for Neuroscience. 28, 5710-5720 (2008).
- Weinberger, D. R. From neuropathology to neurodevelopment. Lancet. 346, 552-557 (1995).
- Murray, R. M., Lewis, S. W. Is schizophrenia a neurodevelopmental disorder? British Medical Journal. 295, 681-682 (1987).
- Kamiya, A., et al. A schizophrenia-associated mutation of DISC1 perturbs cerebral cortex development. Nat Cell Biol. 7, 1167-1178 (2005).
- Miyoshi, K., et al. Disrupted-In-Schizophrenia 1, a candidate gene for schizophrenia, participates in neurite outgrowth. Mol Psychiatry. 8, 685-694 (2003).
- Mao, Y., et al. Disrupted in schizophrenia 1 regulates neuronal progenitor proliferation via modulation of GSK3beta/beta-catenin signaling. Cell. 136, 1017-1031 (2009).
- Millar, J. K., et al. Disruption of two novel genes by a translocation co-segregating with schizophrenia. Hum Mol Genet. 9, 1415-1423 (2000).
- Steinecke, A., Gampe, C., Valkova, C., Kaether, C., Bolz, J. Disrupted-in-Schizophrenia 1 (DISC1) is necessary for the correct migration of cortical interneurons. The Journal of Neuroscience : the Official Journal of the Society for Neuroscience. 32, 738-745 (2012).
- Niwa, M., et al. Knockdown of DISC1 by in utero gene transfer disturbs postnatal dopaminergic maturation in the frontal cortex and leads to adult behavioral deficits. Neuron. 65, 480-489 (2010).
- Taniguchi, Y., Young-Pearse, T., Sawa, A., Kamiya, A. In utero electroporation as a tool for genetic manipulation in vivo to study psychiatric disorders: from genes to circuits and behaviors. The Neuroscientist : a Review Journal Bringing Neurobiology, Neurology and Psychiatry 18. , 169-179 (2012).
- Bai, J., et al. RNAi reveals doublecortin is required for radial migration in rat neocortex. Nat Neurosci. 6, 1277-1283 (2003).
- Osumi, N., Inoue, T. Gene transfer into cultured mammalian embryos by electroporation. Methods. 24, 35-42 (2001).
- Momose, T., et al. Efficient targeting of gene expression in chick embryos by microelectroporation. Development, Growth & Differentiation. 41, 335-344 (1999).
- LoTurco, J., Manent, J. B., Sidiqi, F. New and improved tools for in utero electroporation studies of developing cerebral cortex. Cereb Cortex. 19, 120-125 (2009).
- Featherstone, R. E., Kapur, S., Fletcher, P. J. The amphetamine-induced sensitized state as a model of schizophrenia. Progress in Neuro-psychopharmacology & Biological Psychiatry. 31, 1556-1571 (2007).
- Pum, M., Carey, R. J., Huston, J. P., Muller, C. P. Dissociating effects of cocaine and d-amphetamine on dopamine and serotonin in the perirhinal, entorhinal, and prefrontal cortex of freely moving rats. Psychopharmacology. 193, 375-390 (2007).
- dal Maschio, M., et al. High-performance and site-directed in utero electroporation by a triple-electrode probe. Nature Communications. 3, 960(2012).
Przedruki i uprawnienia
