Opisujemy użycie przeciwciał monoklonalnych TG30 (CD9) i GCTM-2 do połączonego wykrywania antygenów powierzchniowych komórek poprzez sortowanie komórek aktywowane fluorescencją (FACS) do identyfikacji i wzbogacania żywych ludzkich embrionalnych komórek macierzystych (hESC) za pomocą selekcji pozytywnej, a także użycie selekcji negatywnej do usuwania hESC z populacji komórek mieszanych.
Artykuł metodologiczny
Wzbogacanie i oczyszczanie ludzkich embrionalnych komórek macierzystych poprzez wykrywanie antygenów powierzchniowych komórek przy użyciu przeciwciał monoklonalnych TG30 i GCTM-2
W tym artykule
Podsumowanie
Streszczenie
Ludzkie embrionalne komórki macierzyste (hESC) mogą samoodnawiać się w nieskończoność in vitro, a przy odpowiednich sygnałach mogą być indukowane do różnicowania się w potencjalnie wszystkie linie komórek somatycznych. Zróżnicowane pochodne hESC mogą być potencjalnie stosowane w terapiach transplantacyjnych w leczeniu różnych chorób zwyrodnieniowych komórek. Jednak protokoły różnicowania hESC zwykle dają mieszaninę zróżnicowanych typów komórek docelowych i niedocelowych, a także szczątkowych komórek niezróżnicowanych. Dla translacji zróżnicowanych pochodnych hESC z laboratorium do kliniki ważne jest, aby być w stanie rozróżnić komórki niezróżnicowane (pluripotencjalne) i zróżnicowane oraz opracować metody separacji tych populacji. Bezpieczne zastosowanie typów komórek somatycznych pochodzących z hESC można osiągnąć tylko w populacjach wolnych od pluripotencjalnych komórek macierzystych, ponieważ resztkowe hESC mogą po przeszczepie wywołać guzy zwane potworniakami. W tym celu opisujemy tutaj metodologię wykrywania antygenów powierzchniowych komórek związanych z pluripotencją za pomocą przeciwciał monoklonalnych TG30 (CD9) i GCTM-2 poprzez sortowanie komórek aktywowane fluorescencją (FACS) w celu identyfikacji pluripotencjalnych komórek TG30 Hi-GCTM-2 Hi hESC przy użyciu selekcji pozytywnej. Stosując selekcję negatywną z naszą metodologią TG30/GCTM-2 FACS, byliśmy w stanie wykryć i usunąć niezróżnicowane hESC w populacjach przechodzących bardzo wczesne stadium różnicowania (TG30 Neg-GCTM-2Neg). W dalszym badaniu próbki zróżnicowane komórek Neg-GCTM-2 TG30Neg wybrane przy użyciu naszego protokołu TG30 / GCTM-2 FACS nie tworzyły potworniaków po przeszczepieniu myszom z obniżoną odpornością, co potwierdza solidność naszego protokołu. Z drugiej strony, konsekwentne pasażowanie wzbogaconych pluripotencjalnych komórek macierzystych TG30/ GCTM-2 Hi hESC za pośrednictwem TG30 / GCTM-2FACS nie wpłynęło na ich zdolność do samoodnawiania się in vitro ani na ich wewnętrzną pluripotencję. W związku z tym charakterystyka naszej metodologii TG30/GCTM-2 FACS zapewnia czuły test w celu uzyskania wysoce wzbogaconych populacji hPSC jako danych wejściowych do testów różnicowania i usunięcia potencjalnie rakotwórczych (lub resztkowych) hESC z pochodnych populacji komórek.
Wprowadzenie
HPSC (hPSC) obejmują ludzkie embrionalne komórki macierzyste (hESC) i ludzkie indukowane pluripotencjalne komórki macierzyste (hIPSC). HPSC mogą samoodnawiać się w nieskończoność w odpowiednich warunkach hodowli bez utraty zdolności znanej jako "pluripotencja". Pluripotencja jest definiowana jako zdolność komórki do różnicowania się w zasadniczo dowolną linię komórek somatycznych, w tym komórki reprezentatywne dla każdej z trzech embrionalnych warstw komórek rozrodczych. Niezwykły potencjał hPSC zapewnia środki do szerokiej gamy zastosowań opartych na komórkach, w tym opcji terapeutycznych. Na przykład istnieją zaburzenia związane ze śmiercią i zwyrodnieniem komórek, w których normalna funkcjonalność komórek w ludzkim ciele jest zagrożona, jak w przypadku niewydolności serca, urazów kręgosłupa, cukrzycy, choroby Parkinsona, niektórych nowotworów i innych patologii klinicznych. Pacjenci cierpiący na te schorzenia mogą być potencjalnie leczeni poprzez przeszczepianie zdrowych i funkcjonalnych komórek somatycznych, które uzyskano z hPSC w laboratorium. Jednak obecne protokoły różnicowania hPSC nie są w 100% skuteczne i dają mieszaninę zróżnicowanych typów komórek docelowych i niedocelowych, a także resztkowe hPSC, które nie uległy różnicowaniu, zamiast tego kontynuują samoodnawianiesię 1-3. Obecność nawet niewielkiej liczby hPSC w próbce komórek somatycznych pochodzących z hPSC przeznaczonych do przeszczepienia pacjentom stanowi poważne ryzyko kliniczne, ponieważ komórki te, ze względu na swoją naturalną naturę tworzenia tkanek wszystkich trzech embrionalnych listków rozrodczych, mogą potencjalnie tworzyć in vivo rodzaj guza znanego jako potworniak. W związku z tym tylko docelowe populacje komórek, które zostały uznane za wolne od pluripotencjalnych komórek macierzystych, można uznać za bezpieczne do przeszczepu pacjentom. Istnieje kilka podejść, które mogą potencjalnie doprowadzić do usunięcia resztkowych hPSC po różnicowaniu (przegląd patrz Polanco i Laslett4). Wcześniej informowaliśmy o zastosowaniu przeciwciał monoklonalnych TG30 (CD9) i GCTM-2 sprzężonych z sortowaniem komórek aktywowanym fluorescencją (FACS) w celu identyfikacji pluripotencjalnych komórek macierzystych i odróżnienia ich od komórek przechodzących wczesny etap różnicowania w hodowlach liniihESC 5-7.
Jedną z zalet używania przeciwciał do wykrywania antygenów na powierzchni komórki jest to, że komórki docelowe są zazwyczaj zdolne do życia po związaniu przeciwciał i/lub znakowaniu. W związku z tym komórki docelowe można pobrać po znakowaniu przeciwciałami i ponownie wyhodować w celu ekspansji i dalszych zastosowań przed przeszczepem. Jednym z zastrzeżeń dotyczących antygenów powierzchniowych komórek ulegających ekspresji w hPSC jest to, że nie występują one wyłącznie w stadium pluripotencjalnym i w wielu przypadkach ulegają reekspresji czasowej podczas rozwoju, a zatem zostaną wykryte w niektórych zróżnicowanych typach komórek. W związku z tym, jeśli celem jest wykorzystanie przeciwciał do wykrywania ludzkich komórek pluripotencjalnych i oczyszczenia ich z próbki komórek pochodzących z hPSC, wybrane przeciwciała nie powinny również reagować z antygenami na określonych zróżnicowanych typach komórek przeznaczonych do przeszczepienia. Niestety, istnieje ograniczona liczba przeciwciał, które wykrywają markery powierzchniowe komórek na żywych hPSCs 4, co ogranicza możliwości selekcji. Ponadto kilka badań wykazało, że wykrycie jednego markera na powierzchni komórki nie jest wystarczające do wyeliminowania wszystkich hPSC, co sugeruje, że każda próba wyeliminowania wszystkich subpopulacji pluripotencjalnych hPSC powinna opierać się na metodach wykorzystujących dwa lub więcej przeciwciał wykrywających różne epitopy wyrażane przez hPSC 9-10. Jak wspomniano powyżej, tylko komórki pochodzące z hPSC, które można określić jako populacje komórek wolnych od pluripotencjalnych komórek macierzystych, są odpowiednie do przeszczepu u ludzi. Osiągnięcie tego poziomu rygorystyczności może nie zostać osiągnięte za pomocą pojedynczego przejścia przez technologię sortowania komórek za pośrednictwem przeciwciał. Ponowna hodowla wzbogaconej populacji zróżnicowanych komórek docelowych i kolejne rundy sortowania komórek mogą być wymagane w celu ostatecznego uzyskania próbek wolnych od pluripotencjalnych komórek macierzystych.
W naszym laboratorium szczegółowo scharakteryzowaliśmy dwa przeciwciała powierzchniowe hES, TG30 (CD9) i GCTM-2, do wykrywania żywych komórek pluripotencjalnych. Nasze badania wykazały, że łączne wykrycie zarówno TG30, jak i GCTM-2 silnie koreluje z ekspresją kanonicznych genów związanych z pluripotencją w liniach hESC 5-7. Immunoprofilowanie TG30/GCTM-2 FACS konsekwentnie wykazało, że hodowle hESC stanowią ilościowy ciągły gradient ekspresji TG30/GCTM-2 5-7. Arbitralnie ustaliliśmy cztery populacje (P) komórek w tym gradiencie TG30 / GCTM-2: P4 (TG30 Neg-GCTM-2Neg), P5 (TG30Niski-GCTM-2 Niski), P6 (TG30Mid-GCTM-2 Mid) i P7 (TG30Hi-GCTM-2 Hi) 5-7. Nasza charakterystyka tych populacji komórek P4, P5, P6 i P7 wykazała, że podfrakcje P6 i P7 wyrażają dużą liczbę genów związanych z pluripotencją i efektywnie tworzą kolonie podobne do łodyg podczas rehodowli po FACS 2-3. Z drugiej strony, komórki P4 (TG30 Neg-GCTM-2Neg) wyrażają dużą liczbę markerów różnicowania i stanowią spontanicznie różnicowane typy komórek, które zwykle występują w rozszerzających się kulturach linii hESC 5-6. Zdecydowaliśmy się przetestować potencjał naszego TG30/GCTM-2 FACS do selektywnej eliminacji resztkowych hPSC po różnicowaniu we wczesnym stadium, a także do wzbogacania pluripotencjalnych populacji komórek macierzystych. Opisany poniżej protokół pokazuje, jak zbierać i rozmnażać zróżnicowane komórki P4 (TG30 Neg-GCTM-2Neg) po FACS w celu oczyszczenia z pluripotencjalnego P7 (TG30 Hi-GCTM-2 Hi). Ponadto wyjaśniamy również pobieranie i rekulturację pluripotencjalnych komórek P7 (TG30 Hi-GCTM-2Hi) w celu uzyskania wzbogaconej kultury komórek pluripotencjalnych, które można następnie wykorzystać jako zdefiniowaną populację wejściową w celu potencjalnego zwiększenia wydajności i spójności testów różnicowania.
Protokół
Następujący protokół został przeprowadzony przy użyciu11 standardowych masowych kultur hESC-MEL1 dostarczonych przez ośrodek StemCore na Uniwersytecie Monash (Melbourne). Ta linia komórkowa jest rutynowo hodowana na warstwie mitotycznie inaktywowanych mysich fibroblastów embrionalnych (MEF) w pożywkach hESC/KOSR uzupełnionych bFGF7 i jest utrzymywana z dysocjacją enzymatyczną (kolagenaza) co 5-7 dni8. Kultury hESC wyhodowane do ~80% konfluencji w kolbach o średnicy 75cm2 (T75) są używane jako populacje wejściowe dla tego protokołu. Wszystkie opisane poniżej procedury manipulacji komórkami powinny być wykonywane w warunkach aseptycznych w komorze bezpieczeństwa biologicznego klasy II z filtrem HEPA.
Dwa dni przed wykonaniem testu FACS TG30/GCTM-2, przygotuj płytki hodowlane T75 (opisane w sekcji 1), które mają być użyte do rekultury komórek odzyskanych po FACS (opisane w sekcji 4).
1. Wysiewanie MEF-ów i przygotowanie podłoża kondycjonowanego MEF
1.1 DZIEŃ -2: Posiewanie MEF-ów do kolb T75
- Odpipetować 10 ml 0,1% w/v żelatyny do każdej kolby T75 i przechylić, aby równomiernie pokryć powierzchnię.
- Inkubować przez 30 minut w temperaturze pokojowej w komorze bezpieczeństwa biologicznego.
- Odessać roztwór żelatyny.
- Dodać 20 ml pożywki MEF do kolby i wstępnie zrównoważyć do 37 °C/5% CO2 przez 30 minut w inkubatorze do hodowli komórkowych.
- Mitotycznie inaktywowane MEF-y należy rozmieścić na przygotowanej kolbie (kolbach) o następującej gęstości. Dla nasion o gęstości 1/3 MEF: 1,4 x 10,4 komórki/cm2 (T75 = 1 x 10,6 MEF). Dla nasion MEF o pełnej gęstości 5,3 x 10⁴ komórki/cm2 (T75 = 4 x 10⁶ MEF).
Uwaga: Rutynowo używamy MEF-ów, które zostały mitotycznie dezaktywowane przez γ-napromieniowanie. Protokół przygotowania MEF-ów napromieniowanych γ znajduje się przy ul. Michalskiej12.
- Inkubować napromieniowane kultury MEF w temperaturze 37 °C/5% CO2 przez noc. Kolby 1/3 można inkubować przez 1-4 dni bez zmiany pożywki MEF. Kolby te są używane do ponownego powlekania komórek post-FACS (jak w protokole 4). Pełne kolby MEF inkubuje się przez noc w celu wytworzenia CM, jak pokazano poniżej w kroku 1.2.
1.2 DZIEŃ -1: Przygotowanie pożywki kondycjonowanej MEF (CM)
- Odessać pożywkę MEF z pełnych kolb MEF T75.
- Dodać wstępnie zbalansowaną pożywkę o stężeniu 25 ml hESC/KOSR uzupełnioną 5 ng/ml ludzkiego FGF-2 na kolbę T75. Inkubować w temperaturze 37 °C/5% CO2 przez 24 godziny.
- Zebrać pożywkę kondycjonowaną MEF (CM) do sterylnej probówki do hodowli tkankowej, świeżo uzupełnić CM 10 ng / ml ludzkiego FGF-2 i przefiltrować za pomocą filtra polieterosulfonowego 0,22 μm.
- Aby wytworzyć dodatkową CM, powtarzaj kroki 1.2.2 i 1.2.3 codziennie na tej samej kulturze MEF przez jeden tydzień.
W dniu wykonywania testu TG30/GCTM-2, zamień pożywkę MEF w 1/3 kolbach MEF T75 na CM i wstępnie zrównoważ przez co najmniej 30 minut przed wysiewem jakichkolwiek komórek hESC lub pochodnych hESC odzyskanych z procedury opisanej poniżej. CM stosuje się w stanie świeżym lub przechowuje się w temperaturze 4 °C przez okres do 2 tygodni. CM jest używany w tym protokole, ponieważ w naszych rękach zwiększa żywotność komórek po FACS w porównaniu z pożywkami niekondycjonowanymi (wyniki nie pokazane).
2. Przeprowadzanie testu FACS TG30/GCTM-2: dysocjacja masowych kultur hESC na pojedyncze komórki
Uwaga: Wstępnie schłodzić 20% medium FBS/DMEM-F12 w temperaturze 4 °C.
- Odessać pożywkę hESC/KOSR z dwóch kolb T75 z linią hodowlaną hESC.
- Przepłucz komórki w każdym T75 10 ml DPBS i odessaj w celu usunięcia.
- Dodać 3 ml roztworu dysocjacyjnego TrypLE Express do każdej kolby T75. Inkubować w temperaturze 37 °C/5% CO2 przez 5 minut.
- Uderzyć w bok kolb, aby uzyskać całkowite usunięcie komórek. Sprawdź pod mikroskopem. Jeżeli komórki nie ulegają łatwemu przemieszczaniu się, inkubować przez kolejne 2–3 minuty w temperaturze 37 °C/5% CO2 .
- Dodać 10 ml 20% FBS/DMEM-F12 (utrzymywanego w temperaturze 4 °C) do każdej kolby T75. Za pomocą sterylnej pipety o pojemności 10 ml delikatnie rozcierać zdysocjowane komórki kilkakrotnie o ściankę kolby, aby uzyskać zawiesinę z przewagą pojedynczych komórek.
- Umieść sitko o pojemności 70 μm na sterylnej probówce polipropylenowej o pojemności 50 ml. Za pomocą sterylnej pipety o pojemności 10 ml przepuścić przez sitko zawiesiny pojedynczych komórek hESC zebrane z dwóch kolb T75.
- Odrzucić sitko do komórek, założyć pokrywkę probówki i odwirować zbiorczą zawiesinę hESC o sile 1 000 x g przez 2 minuty.
- Odrzucić supernatant i umyć komórki, delikatnie ponownie zawieszając osad w 10 ml 20% FBS/DMEM-F12 (wstępnie schłodzony w temperaturze 4 °C).
- Przeprowadzić drugie odwirowanie przy 1 000 x g przez 2 minuty.
- Odrzucić supernatant, dodać 10 ml 20% FBS/DMEM-F12 (schłodzonego w temperaturze 4 °C) i delikatnie rozprowadzić w celu ponownego zawieszenia komórek. Umieść probówkę o pojemności 50 ml na lodzie. Ta probówka będzie używana do procedury barwienia immunologicznego Sortuj próbkę opisaną poniżej.
- Pobrać 20 μl zawiesiny pojedynczej komórki hESC (krok 2.10) do zliczania liczby komórek za pomocą hemocytometru. Należy spodziewać się wydajności 10-15 milionów komórek na kolbę T75.
Uwaga: FBS jest używany w tej części protokołu w celu zwiększenia żywotności komórek po FACS.
3. Barwienie immunofluorescencyjne antygenów powierzchniowych komórek TG30 i GCTM-2
- Podwielokrotność 150 μl (~100 000 komórek) zawiesiny pojedynczej komórki hESC (od kroku 2.11) do każdej z sześciu probówek mikrowirówek o pojemności 1,5 ml. Te sześć podwielokrotności zostanie wykorzystanych do kontroli barwienia wymaganych do kalibracji testu na maszynie FACS. Pozostała ~ 9 ml zawiesiny komórek będzie próbką sortowania, w której zdysocjowana kultura zostanie wybarwiona w celu wykrycia TG30 i GCTM-2, zgodnie z tabelami 1 i 2.
- Przeprowadzaj reakcje wiązania przeciwciał pierwszorzędowych w 20% FBS/DMEM-F12. Końcowe objętości reakcji powinny wynosić ~9 ml dla próbki sortującej i 200 μl dla prób kontrolnych. Uwzględnij kontrole izotypu jako przeciwciała pierwszorzędowe. Umieść rurki poziomo na lodzie i delikatnie mieszaj przez 30 minut na bujanej platformie.
- Odwirować reakcje przeciwciał pierwotnych przy 1 000 x g przez 2 min.
- Odrzucić supernatant i przemyć komórki, ponownie zawieszając osad w 20 ml 20% FBS/DMEM-F12 (wstępnie schłodzonym w temperaturze 4 °C) dla próbki sortującej i 200 μl dla prób kontrolnych.
- Wykonaj drugi wir przy 1 000 x g przez 2 minuty.
- Przeprowadzaj reakcje wiązania przeciwciał drugorzędowych w 20% FBS/DMEM-F12. Końcowa objętość reakcji powinna wynosić 2,5 ml dla próbki sortującej i 200 μl dla prób kontrolnych. Na tym etapie należy przygotować probówkę reakcyjną PE-anti-mouse CD90.2. Umieść rurki poziomo na lodzie i delikatnie mieszaj przez 30 minut na bujanej platformie.
Uwaga: Podczas tego czasu inkubacji, wygodnie jest zebrać CM i przygotować 1/3 kolb MEF T75 z CM, jak w sekcji 1.2.
- Odwirować wtórne reakcje przeciwciał przy 1 000 x g przez 2 min.
- Odrzucić supernatant i umyć komórki DWUKROTNIE, ponownie zawieszając osad w 20 ml 20% FBS/DMEM-F12 (wstępnie schłodzony w temperaturze 4 °C) dla próbki sortującej i 200 μl dla prób kontrolnych.
- Wiruj przy 1,000 x g przez 2 minuty po każdym myciu i umieść rurki na lodzie.
- Odrzuć supernatanty i ponownie zawieś granulki komórkowe w 20% FBS/DMEM-F12 uzupełnionym jodkiem propydyny (PI) w stężeniu 0,3 μg/ml. Użyj 2-3 ml dla próbki sortującej i 300 μl dla kontroli.
Uwaga: NIE dodawaj PI do probówki kontrolnej z niezabarwionymi komórkami.
- Użyj mikropipety P1000, aby przecisnąć zawiesinę każdej pojedynczej komórki przez sitko do komórek z pokrywką 35 μm, sprzężone z probówkami z polistyrenu o pojemności 5 ml z okrągłym dnem.
- Odwirować z prędkością 50 g/min, aby przecisnąć zawiesinę resztek komórek na pokrywkach sitka.
- Zawiesić każdą zawiesinę z pojedynczą komórką, stukając w boki probówek, i umieścić na lodzie. Twoje komórki są teraz gotowe do FACS. Proszę przejść od razu.
4. Posiewka komórek podfrakcji TG30/GCTM-2 po FACS w kolbach o średnicy 75cm2 (T75)
- Wcześniej informowaliśmy, jak skonfigurować maszynę FACS do immunoprofilowania TG30/GCTM-27. Procedura pozwala na odzyskanie żywotnych pojedynczych hESC, wolnych od MEF i w obrębie bramek P4 (TG30 Neg-GCTM-2Neg), P5 (TG30 Low-GCTM-2 Low), P6 (TG30Mid-GCTM-2 Mid) i P7 (TG30 Hi-GCTM-2Hi) - patrz rysunek 1E. Skonfiguruj maszynę FACS dla TG30/GCTM-2 FACS, tak jak w naszym poprzednim raporcie, aby odzyskać podfrakcje komórek, które mają być użyte w następnej kolejności.
- Dodać 1 ml CM, przygotowany jak w kroku 1.2, do każdej z dwóch 5 ml polistyrenowych probówek okrągłodennych przed pobraniem komórek z maszyny FACS. Ułóż na lodzie.
- Odzyskaj 400 000 komórek każda ze zróżnicowanych podfrakcji komórek P4 (TG30 Neg-GCTM-2Neg) i pluripotencjalnych P7 (TG30 Hi-GCTM-2 Hi) za pomocą TG30 / GCTM-2 FACS.
- Odwirować probówki zbiorcze o stężeniu 1 000 x g przez 5 minut.
- Odessać supernatanty. Dodać 1 ml wstępnie przygotowanej dawki o temperaturze 37 °C/5% CO2 CM w celu ponownego zawieszenia każdej komórki za pomocą mikropipetora P1000. Wysiewać komórki dla każdej frakcji na wstępnie zrównoważoną kolbę 1/3 MEF T75 z CM (przygotowaną zgodnie z krokiem 1.2)
- Hodowla w temperaturze 37 °C/5% CO2 przez 24 godziny w inkubatorze do hodowli komórkowych.
- Odsysaj CM codziennie i zastępuj świeżo przygotowanym CM (jak w kroku 1.2) przez około dwa tygodnie. Hodowle pluripotencjalnych komórek P7 (TG30 Hi-GCTM-2Hi) wykazują ludzkie kolonie macierzyste po tygodniu i osiągają ~80% konfluencji po 9-11 dniach. Hodowle komórek P4 (TG30 Neg-GCTM-2Neg) rosną głównie jako trawnik komórek podobnych do fibroblastów, który osiąga zbieg po 11-13 dniach. Na tym etapie, jeśli jest to wymagane, hodowle komórkowe P4 i P7 można zastosować do sekwencyjnej rehodowli za pośrednictwem TG30 / GCTM-2 FACS podfrakcji P4 lub P7 (patrz rysunki 2 i 3).
Wyniki
Pochodne hESC wolne od pluripotencjalnych komórek macierzystych można uzyskać poprzez kolejne pasażowanie komórek z subfrakcji P4 (TG30Neg-GCTM-2Neg).
Wcześniejsze doniesienia wykazały, że w standardowych kulturach hESC współistnieje mieszanina subpopulacji wykazujących gradient ekspresji genów związanych z pluripotencją5,6,13. Połączona detekcja antygenów powierzchniowych komórek, takich jak TG30 (CD9) i GCTM-2, pozwala na rozróżnienie wielu podzbiorów komórek w stadium pluripotencjalnym oraz na różnych etapach wczesnego różnicowania, co potwierdzają ich ekspresja markerów komórek macierzystych oraz czynników transkrypcyjnych specyficznych dla danej linii5,6,13. Zgodnie z wcześniejszymi raportami, udało nam się rozróżnić komórki P4 (TG30Neg-GCTM-2Neg), P5 (TG30Low-GCTM-2Low), P6 (TG30Mid-GCTM-2Mid) oraz P7 (TG30Hi-GCTM-2Hi) w linii hESC-MEL1 wykorzystanej w niniejszym badaniu (Rycina 1). Po uzyskaniu tego wyniku przystąpiliśmy do wyizolowania zróżnicowanych komórek P4 (TG30Neg-GCTM-2Neg) oraz pluripotencjalnych komórek P7 (TG30Hi-GCTM-2Hi) do dalszej hodowli w badaniach opisanych poniżej.
Zbadaliśmy, czy stosując metodę selekcji negatywnej, jesteśmy w stanie usunąć nieróżnicujące się hESC z populacji komórek znajdujących się na bardzo wczesnym etapie różnicowania (TG30Neg-GCTM-2Neg). Wykorzystaliśmy określoną liczbę komórek P4 (TG30Neg-GCTM-2Neg), które były kolejno hodowane po FACS (Rysunek 2A) przez około dwa tygodnie i poddawane ponownej analizie za pomocą FACS TG30/GCTM-2 przed każdym kolejnym pasażowaniem. Wyniki wykazały, że subfrakcja P4 uległa wzbogaceniu w zróżnicowane typy komórek TG30Neg-GCTM-2Neg po kolejnych pasażach, a niewielka obecność komórek P7 (TG30Hi-GCTM-2Hi) w pierwszym pasażu (Rysunek 2A, Pasaż 1) ostatecznie zniknęła po dalszym pasażowaniu, co doprowadziło do uzyskania próbek wolnych od pluripotencjalnych komórek macierzystych (Rysunek 2A, Pasaż 3).
Wzbogacenie pluripotencjalnych komórek hESC można osiągnąć poprzez odzyskanie komórek TG30Hi-GCTM-2Hi.
W oparciu o wcześniejsze obserwacje z użyciem tego testu, spodziewaliśmy się wzbogacenia populacji pluripotencjalnych hESC poprzez pobranie komórek P7 (TG30Hi-GCTM-2Hi), które powinny tworzyć kolonie hESC. Dlatego zbadaliśmy również sekwencyjne pasażowanie pluripotencjalnych komórek P7 (TG30Hi-GCTM-2Hi) za pomocą FACS z użyciem markerów TG30/GCTM-2. W tych kulturach P7 immunoprofilowanie FACS dla TG30/GCTM-2 przeprowadzano przed każdym przesiewaniem komórek, a do dalszej hodowli kierowano wyłącznie komórki P7 (TG30Hi-GCTM-2Hi). W ten sposób zaobserwowaliśmy, że większość komórek znajdowała się w subfrakcjach związanych z pluripotencjalnością (P6 i P7), co wskazuje na wzbogacenie populacji komórek pluripotencjalnych, które zachowały również zdolność do różnicowania i generowania niewielkiego odsetka komórek P4 (TG30Neg-GCTM-2Neg) (Rycyna 3A). Ponadto kultury komórek P7 wykazywały obecność licznych kolonii przypominających hESC podczas pasażowania (Rycina 3B), co również świadczy o utrzymaniu stanu pluripotencjalności.
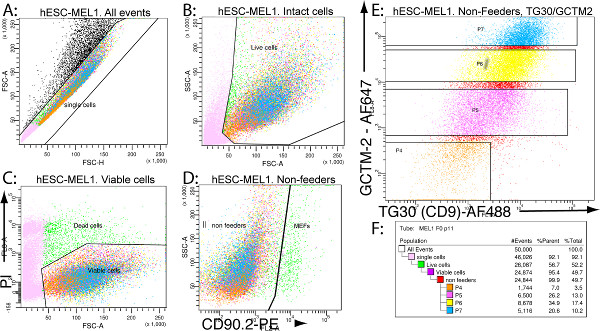
Rycina 1. Reprezentatywna strategia sortowania w celu uzyskania subfrakcji FACS TG30/GCTM-2. (A): Dysocjowane zawiesiny komórek hES są sortowane jako pojedyncze komórki, a potencjalne agregaty lub dublety są usuwane poprzez bramkowanie z wykorzystaniem rozproszenia przedniego dla wysokości i pola powierzchni (FSC-H i FSC-A). (B): Potencjalne zanieczyszczenia są usuwane za pomocą FSC-A i SSC-A, a następnie sortowane są tylko komórki nienaruszone. (C): Komórki nieżywotne są wykluczane na podstawie fluorescencji jodku propidyny (PI) (FSC-A i FL3-A). (D): Komórki karmicielskie MEF zostały usunięte poprzez selekcję negatywną opartą na ekspresji mysiego CD90.2-PE (FL2-A i SSC-A). (E): Wyizolowana żywotna frakcja hESC, wolna od komórek karmicielskich MEF, jest ostatecznie rozdzielana na subpopulacje P4 (TG30Neg-GCTM-2Neg), P5 (TG30Low-GCTM-2Low), P6 (TG30Mid-GCTM-2Mid) oraz P7 (TG30Hi-GCTM-2Hi). Bramka negatywna (TG30Neg-GCTM-2Neg, nazwana P4) została ustawiona zgodnie z tłem autofluorescencji dla komórek niebarwionych, a także w odniesieniu do kontroli izotypowych. (F): Procenty różnych bramkowanych subpopulacji typowe dla analizy cytometrycznej TG30/GCTM-2. Kliknij tutaj, aby wyświetlić powiększoną rycinę.
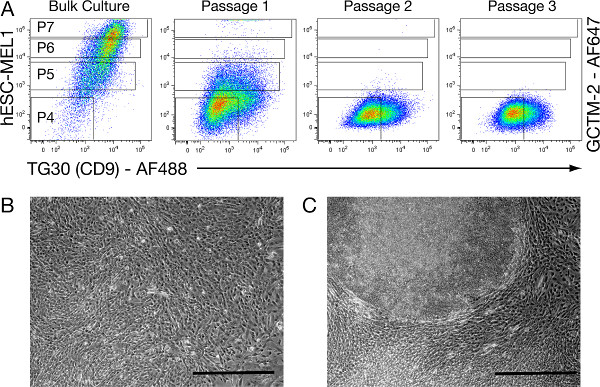
Rysunek 2. Reprezentatywne kolejne hodowle spontanicznie zróżnicowanych komórek P4 (TG30Neg-GCTM-2Neg) z linii hESC-MEL1. (A): Reprezentatywne wykresy FACS dla TG30/GCTM-2 pokazujące wyselekcjonowane podgrupy komórek (P4, P5, P6 i P7) rozróżnione na podstawie poziomu wykrytej ekspresji markerów powierzchniowych komórek TG30 i GCTM-2. Początkowa populacja 400 000 pochodnych hESC wykazujących immunoprofil P4 (TG30Neg-GCTM-2Neg) jest pobierana z hodowli masowych linii hESC-MEL1. Te komórki P4 (TG30Neg-GCTM-2Neg) są kolejno pasażowane po FACS w warunkach sprzyjających odnawianiu hESC w kolbach T75, aż do osiągnięcia konfluencji (11-13 dni). Przed każdym pasażem wykonuje się analizę FACS TG30/GCTM-2, aby zebrać i ponownie hodować wyłącznie zróżnicowane typy komórek P4 (TG30Neg-GCTM-2Neg). (B): Typowa morfologia warstwy zróżnicowanych komórek P4 (TG30Neg-GCTM-2Neg) po 14 dniach. (C): Sporadyczne kolonie przypominające hESC widoczne po 14 dniach, przemieszane z warstwą komórek P4 (TG30Neg-GCTM-2Neg) tylko w pierwszym pasażu, są najprawdopodobniej generowane przez zanieczyszczające komórki P7 (TG30Hi-GCTM-2Hi). Pasek skali = 200 μm. Kliknij tutaj, aby wyświetlić powiększony rysunek.
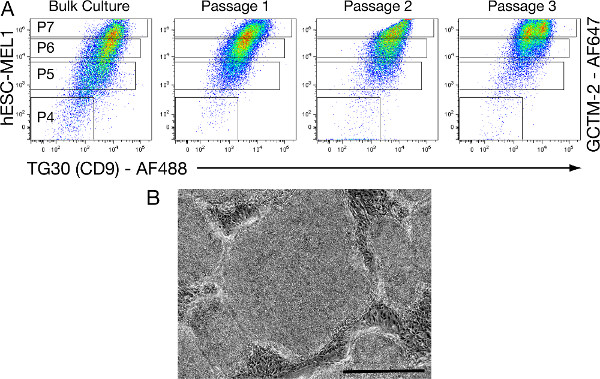
Rycina 3. Komórki P7 (TG30Hi-GCTM-2Hi) pochodzące z linii hESC mogą być kolejno pasażowane po FACS bez utraty swoich wewnętrznych właściwości pluripotencjalnych. Reprezentatywne immunoprofilowanie FACS TG30/GCTM-2 dla różnych kolejnych pasaży, pokazujące wyodrębnione subpopulacje komórek (P4, P5, P6 i P7) zgodnie z poziomem ekspresji TG30 i GCTM-2. (A): Początkowa populacja 400 000 komórek wykazujących cechy P7 (TG30Hi-GCTM-2Hi) zostaje wyizolowana z kultur masowych linii hESC-MEL1. Pluripotencjalne komórki P7 (TG30Hi-GCTM-2Hi) są kolejno pasażowane po FACS w warunkach wspierających odnawianie hESC w kolbach T75, aż do osiągnięcia ~80% konfluencji (9-11 dni). Immunoprofilowanie FACS TG30/GCTM-2 jest wykonywane przed każdym przesiewaniem komórek i reykultywuje się tylko komórki P7 (TG30Hi-GCTM-2Hi). Wyniki pokazują, że komórki P7 (TG30Hi-GCTM-2Hi) zachowują swoje cechy pluripotencjalne podczas kolejnych pasaży, w tym zachowanie ekspresji (TG30Hi-GCTM-2Hi), tworzenie kolonii przypominających hESC (pokazane w B) oraz utrzymanie zdolności do różnicowania, co można wywnioskować z obecności niewielkiej frakcji zróżnicowanych komórek P4 (TG30Neg-GCTM-2Neg) w każdym z gradientów FACS. Pasek skali = 200 μm. Kliknij tutaj, aby wyświetlić powiększoną rycinię.
| Próbka (objętości reakcji) | Przeciwciało pierwszorzędowe | Przeciwciało drugorzędowe | PE Rat Anti-Mouse CD90.2 b | Jodek propidyny c |
| Próbka do sortowania (~9 ml dla przeciwciał pierwszorzędowych, 2,5 ml dla przeciwciał drugorzędowych) | (TG30 + GCTM-2)a | AF 488 goat anti-mouse IgG2a + AF 647 goat anti-mouse IgM | + | + |
| Kontrola-1: TG30 (200 μl) | TG30 | AF 488 goat anti-mouse IgG2a | - | + |
| Kontrola-2: GCTM-2 (200 μl) | GCTM-2 | AF 647 goat anti-mouse IgM | - | + |
| Kontrola-3: Anti-mouse CD90.2 (200 μl) | - | - | + | + |
| Kontrola-4: Fikoerytryna (PE) (200 μl) | Mouse IgG2a isotype | R-phycoerythrin goat anti-mouse IgG2a | - | + |
| Kontrola-5: Izotyp immunoglobuliny mysiej (200 μl) | Mouse IgG2a isotype + IgM isotype | AF 488 goat anti-mouse IgG2a + AF 647 goat anti-mouse IgM | - | + |
| Kontrola-6: Komórki niebarwione (200 μl) | - | - | - | - |
Tabela 1. Próbka do sortowania i kontrole dla sortowania FACS. aPróbka do sortowania jest immunostainowana jednocześnie przeciwciałami TG30 oraz GCTM-2. bPE-anty-mysie CD90.2 jest używane do rozpoznawania komórek mysich i usuwania MEF z hESC podczas FACS14. cKomórki nieżywe są wykluczane przy użyciu jodku propidyny w stężeniu końcowym 0,3 μg/ml. Odczynnik dodany (+), niedodany (-) do probówki reakcyjnej.
| Przeciwciało | Gospodarz | Izotyp | Rozcieńczenie robocze |
| TG30 (1.4 mg/ml) | Mysz | IgG2a | 1:1,000 |
| GCTM-2 (nadsącz hybridoma) | Mysz | IgM | 1:5 ~ 1:10 a |
| AF 488 goat anti-mouse IgG2a | Koza | Poliklonalne | 1:500 |
| AF 647 goat anti-mouse IgM | Koza | Poliklonalne | 1:500 |
| R-phycoerythrin (PE) goat anti-mouse IgG2a | Koza | Poliklonalne | 1:1,000 |
| Anti-mouse CD90.2 | Szczur | IgG2b | 1:100 |
| Purified Mouse IgG2a, κ Isotype Control | Mysz | IgG2a | 1:200 |
| Purified Mouse IgM, κ Isotype Control | Mysz | IgM | 1:200 |
Tabela 2. Szczegóły dotyczące przeciwciał i ich rozcieńczeń do sortowania FACS. a Ze względu na niezwykle wysoką ekspresję GCTM-2 na powierzchni komórek hESC, nie jest możliwe osiągnięcie nasycenia przy użyciu tego przeciwciała. Każda partia supernatantu hybridomy GCTM-2 musi zostać tytrowana względem standardowej kontroli lub poprzedniej partii, aby uzyskać podobną skalę wyników w hESC i uniknąć nadmiernego barwienia.
| Nazwa pożywki | Skład |
| pożywka hESC/KOSR | Dulbecco's Modified Eagle Medium:Nutrient Mixture F-12 (DMEM/F-12) uzupełnione o 20% Knockout Serum Replacement (KOSR), 2 mM GlutaMAX, 1% MEM Nonessential Amino Acids, 0,1 mM 2-Mercaptoethanol, 10 ng/ml ludzki czynnik wzrostu fibroblastów 2 (FGF-2) oraz Pen/Strep w stężeniu 1x. |
| pożywka MEF | Dulbecco's Modified Eagle Medium, wysoka zawartość glukozy (DMEM) uzupełnione o 10% Fetal Bovine Serum (FBS), 2 mM GlutaMAX oraz Pen/Strep w stężeniu 1x. |
Tabela 3. Skład pożywek hodowlanych.
Dyskusja
W kontekście klinicznym zróżnicowane typy komórek somatycznych są końcowym pożądanym produktem do przeszczepów i zastosowań terapeutycznych, a hPSC są samoodnawiającym się i skalowalnym źródłem do wytwarzania tych komórek somatycznych lub ich komórek progenitorowych w laboratorium. Obecność resztkowych niezróżnicowanych komórek macierzystych hESC z nieodłącznym potencjałem do tworzenia potworniaków stanowi zagrożenie dla bezpieczeństwa przy rozważaniu przeszczepu komórek somatycznych pochodzących z hESC u pacjentów. Aby zapoznać się z przeglądem tego i innych zagrożeń związanych z terapią komórkową, zobacz Sharpe i wsp.16 W związku z tym, aby zrealizować takie zastosowania, konieczne jest, aby naukowcy dążyli do wygenerowania docelowych populacji komórek, które są również wolne od pluripotencjalnych komórek macierzystych. W tym celu pokazujemy tutaj, że przy użyciu naszej metodologii FACS TG30/GCTM-2 możliwe jest monitorowanie obecności komórek pluripotencjalnych (TG30 Hi-GCTM-2Hi) w różnicującej się populacji komórek i uzyskanie żywotnych pochodnych różnicowanych pod kątem hESC, które można wzbogacić i ponownie wyhodować po FACS. Chociaż nie jest możliwe uzyskanie w 100% pluripotencjalnych próbek wolnych od komórek macierzystych za pomocą jednego przejścia naszego protokołu, wzbogacone pochodne hESC mogą być rehodowane i po kolejnym pasażowaniu osiąga się 100% czystość komórek somatycznych. Wykazana zdolność komórek somatycznych do ekspansji po FACS potencjalnie pozwala również na wytworzenie odpowiedniej liczby komórek odpowiednich do potencjalnych terapii transplantacyjnych.
Zachęcające wyniki tego badania pilotażowego skłoniły nas do przeprowadzenia bardziej kompleksowego badania przy użyciu naszego protokołu TG30 / GCTM-2 w badaniu porównawczym z kilkoma liniami ludzkich indukowanych pluripotencjalnych komórek macierzystych (hiPSC)15. W tym badaniu stwierdziliśmy, że próbki wolne od pluripotencjalnych komórek macierzystych uzyskane przy użyciu naszego protokołu TG30 / GCTM-2 FACS nie generowały potworniaków po przeszczepieniu myszom pozbawionym odporności. Dlatego możemy śmiało stwierdzić, że przy zastosowaniu tego protokołu in vitro hodowle komórkowe różnicowania we wczesnym stadium, które zostały uznane za wolne od pluripotencjalnych komórek TG30 Hi-GCTM-2Hi, nie rozwijają potworniaków in vivo. To zdecydowanie potwierdza solidność naszego testu, zapewniając potencjalne podejście do wyeliminowania ryzyka powstania potworniaka przed użyciem komórek pochodzących z hPSC w zastosowaniach klinicznych.
I odwrotnie, pokazujemy również, że test TG30 / GCTM-2 FACS może być używany do pobierania populacji komórek pluripotencjalnych o wysokim poziomie ekspresji tych dwóch antygenów powierzchniowych (TG30 Hi-GCTM-2Hi). Wcześniejsze badania wykazały, że komórki Hi TG30Hi-GCTM-2 wykazują najwyższą korelację z ekspresjąOCT4 hi i tworzą największą liczbę kolonii podobnych do hESC5,6,13,15. Dlatego uważamy, że sieć pluripotencji jest aktywowana na maksymalnych poziomach w komórkach wykazujących ekspresję TG30 Hi-GCTM-2Hi. Uważamy, że użycie naszego protokołu TG30/GCTM-2 FACS i pobranie komórek P7 (TG30 Hi-GCTM-2Hi) może pozwolić na oczyszczanie na dużą skalę wzbogaconych żywych kultur hESC, jako danych wejściowych do testów różnicowania.
Podsumowując, wykazujemy tutaj potencjał naszych testów FACS opartych na połączonej ekspresji antygenów powierzchniowych TG30 i GCTM-2 zarówno do oczyszczania, jak i wzbogacania hESC. Przyszłe badania z protokołami ukierunkowanego różnicowania hPSC prawdopodobnie również dostarczą informacji na temat tego potencjału. Zdajemy sobie sprawę, że w niektórych testach, w których zróżnicowane pochodne hESC wykazują czasową ekspresję TG30 (CD9) lub GCTM-2, te dwa przeciwciała mogą nie być odpowiednie lub wystarczające do usunięcia komórek pluripotencjalnych ze zróżnicowanej populacji w określonym punkcie czasowym testu6. W związku z tym istnieje ciągła potrzeba znalezienia nowych przeciwciał, które specyficznie rozpoznają żywe hESC, aby przezwyciężyć możliwe ograniczenie reakcji krzyżowej z niektórymi zróżnicowanymi typami komórek.
Oświadczenia
Nic do ujawnienia.
Podziękowania
Dziękujemy obiektowi StemCore na Uniwersytecie Monash za udostępnienie linii hESC oraz obiektowi FlowCore na Uniwersytecie Monash za usługi FACS. Prace te były wspierane przez granty badawcze z Australijskiego Centrum Komórek Macierzystych, Programu Grantów Badawczych Komórek Macierzystych Nowej Południowej Walii i Rządu Wiktorii dla ALL. ALL jest badaczem partnerskim Specjalnej Inicjatywy Badawczej Australijskiej Rady ds. Badań Naukowych (ARC) w dziedzinie nauk o komórkach macierzystych, Stem Cells Australia.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| DMEM/F-12 | Life Technologies | 11320082 | Długa nazwa: Zmodyfikowany orzeł Dulbecco Pożywka: Mieszanka składników odżywczych F-12 |
| KOSR | Life Technologies | 10828028 | Długa nazwa: Zamiennik serum do nokautu |
| GlutaMAX | Life Technologies | 35050061 | Długa nazwa: Suplement GlutaMAX |
| Aminokwasy endogenne | Technologies | 11140050 | Długa nazwa: Roztwór aminokwasów endogennych MEM |
| Merkaptoetanol | Life Technologies | 21985023 | Długa nazwa: 2-merkaptoetanol |
| DPBS | Life Technologies | 14190250 | Długa nazwa: Sól fizjologiczna buforowana fosforanem Dulbecco, bez wapnia, bez magnezu |
| TrypLE Express | Life Technologies | 12604039 | Długa nazwa: TrypLE Express (1x), bez czerwieni fenolowej |
| AF-488 | Life Technologies | A21131 | Długa nazwa: Alexa Fluor 488 koza anty-mysz IgG2a |
| AF-647 | Life Technologies | A21238 | Długa nazwa: Alexa Fluor 647 koza anty-mysia IgM |
| PE-anty IgG2a | Life Technologies | P21139 | Długa nazwa: R-Phycoerythrin Goat Anti-Mouse IgG2a (γ 2a) Sprzężony |
| DMEM | Life Technologies | 11965-092 | Długa nazwa: Dulbecco's Modified Eagle Medium, wysoki poziom glukozy |
| Pen/Strep | Life Technologies | 15140-122 | Długa nazwa: Penicylina-Streptomycyna, Liquid |
| Distilled Water | Life Technologies | 15230-089. | Długa nazwa: sterylna woda destylowana |
| PI | SIGMA | P4864 | Długa nazwa: Roztwór jodku propidyny |
| FBS | SIGMA | 12203C | Długa nazwa: Żelatyna w surowicy bydlęcej płodu |
| SIGMA | G-1890 | Długa nazwa: Żelatyna ze skóry świni | |
| Ludzki FGF-2 | Millipore | GF003AF-100UG | Długa nazwa: Czynnik wzrostu fibroblastów podstawowy, rekombinowany przez człowieka, wolny od zwierząt |
| Filtr 0,22 i mu; m | Millipore | SCGPU02RE | Długa nazwa: Stericup-GP, 0.22 μ M, polieterosulfon, 250 ml, sterylizowany radioaktywnie |
| 70 μ m Sitko komórkowe | Becton Dickinson | 352350 | Długa nazwa: Sitko komórkowe z 70 μ m Siatka nylonowa |
| 35 μ m Sitko do komórek z pokrywką, tubka 5 ml | Becton Dickinson | 352235 | Długa nazwa: 5 ml polistyrenowa probówka z okrągłym dnem, z nasadką sitka do komórek (35 μ m) |
| 5 ml polistyrenowej probówki z okrągłym dnem | Becton Dickinson | 352054 | Długa nazwa: 5 ml polistyrenowa probówka z okrągłym dnem, sterylna |
| kontrola izotypu IgG2a | Becton Dickinson | 554126 | Długa nazwa: Oczyszczona mysz IgG2a, κ Kontrola izotypu |
| IgM Kontrola izotypu | Becton Dickinson | 553472 | Długa nazwa: Oczyszczona mysz IgM, κ Kontrola izotypu |
| PE-CD90.2 | Becton Dickinson | 553014 | Długa nazwa: PE Rat Anti-Mouse CD90.2 |
| 8-pikowa kalibracja | Becton Dickinson | 559123 | Długa nazwa: Tęczowe cząstki kalibracyjne (8 pików) |
| 50 ml sterylna probówka polipropylenowa | Greiner Bio-One | 227261 | Długa nazwa: 50 ml Probówka polipropylenowa ze stożkowym dnem, sterylna |
| kolba T75 | Greiner Bio-One | 658175 | Długa nazwa: Hodowla komórkowa nasadki filtracyjnej< 75 cmsup>2 Kolby |
| TG30 | Merck Millipore | MAB4427 | Długa nazwa: Przeciwciało TG30, klon TG30 |
| GCTM-2 | Merck Millipore | MAB4346 | Długa nazwa: GCTM-2 nie jest dostępny na rynku, ale TG343 i równoważne przeciwciało monoklonalne to |
| Tabela 4. Lista materiałów i odczynnika | |||
| Maszyna FACS | Becton Dickinson | FACSVantage SE z opcją FACSDiva | |
| Mikroskop odwrócony | Olympus | IX71 | |
| Tabela 5. Lista wyposażenia. |
Bibliografia
- Pera, M. F., Tam, P. P. Extrinsic regulation of pluripotent stem cells. Nature. 10 (7299), 713-720 (2010).
- Pistollato, F., Bremer-Hoffmann, S., Healy, L., Young, L., Stacey, G. Standardization of pluripotent stem cell cultures for toxicity testing. Expert Opin. Drug Metab. Toxicol. 8 (2), 239-257 (2012).
- Miura, K., Okada, Y., Aoi, T., Okada, A., Takahashi, K., Okita, K., Nakagawa, M., Koyanagi, M., Tanabe, K., Ohnuki, M., et al. Variation in the safety of induced pluripotent stem cell lines. Nat. Biotechnol. 27 (8), 743-745 (2009).
- Polanco, J. C., Laslett, A. L. Safety Assessment of Reprogrammed Cells Prior to Clinical Applications: Potential Approaches to Eliminate Teratoma Formation. Pluripotent Stem Cells. Lenka, N. , InTech. (2013).
- Laslett, A. L., Grimmond, S., et al. Transcriptional analysis of early lineage commitment in human embryonic stem cells. BMC Dev. Biol. 7, 12(2007).
- Kolle, G., Ho, M., et al. Identification of human embryonic stem cell surface markers by combined membrane-polysome translation state array analysis and immunotranscriptional profiling. Stem Cells. 27, 2446-2456 (2009).
- Zhou, Q., Chy, H., Laslett, A. L. Preparation of defined human embryonic stem cell populations for transcriptional profiling. Current protocols in stem cell biology. Chapter 1, Unit1B 7(2010).
- Stem Cell Protocols - WiCell. , WiCell. Available from: http://www.wicell.org/home/support/stem-cell-protocols/stem-cell-protocols.cmsx (2013).
- Fong, C. Y., Peh, G. S., Gauthaman, K. Separation of SSEA-4 and TRA-1-60 labelled undifferentiated human embryonic stem cells from a heterogeneous cell population using magnetic-activated cell sorting (MACS) and fluorescence-activated cell sorting (FACS). Stem Cell Rev. 5, 72-80 (2009).
- Schriebl, K., Satianegara, G., et al. Selective removal of undifferentiated human embryonic stem cells using magnetic activated cell sorting followed by a cytotoxic antibody. Tissue Eng. Part A. 18, 899-909 (2012).
- Adewumi, O., Aflatoonian, B., et al. Characterization of human embryonic stem cell lines by the International Stem Cell Initiative. Nat. Biotechnol. 25, 803-816 (2007).
- Michalska, A. E. Isolation and propagation of mouse embryonic fibroblasts and preparation of mouse embryonic feeder layer cells. Current protocols in stem cell biology. Chapter 1, Unit1C 3(2007).
- Hough, S. R., Laslett, A. L., Grimmond, S. B., Kolle, G., Pera, M. F. A continuum of cell states spans pluripotency and lineage commitment in human embryonic stem cells. PLoS One. 4, e7708(2009).
- Filipczyk, A. A., Laslett, A. L., Mummery, C., Pera, M. F. Differentiation is coupled to changes in the cell cycle regulatory apparatus of human embryonic stem cells. Stem Cell Res. 1, 45-60 (2007).
- Polanco, J. C., Ho, M. S. H., Wang, B., Zhou, Q., Wolvetang, E., Mason, E., Wells, C., Kolle, G., Grimmond, S. M., Bertoncello, I., O'Brien, C., Laslett, A. L. Identification of unsafe human IPSC lines using a robust surrogate assay for pluripotency. Stem Cells. 31 (8), 1498-1510 (2013).
- Sharpe, M. E., Morton, D., Rossi, A. Nonclinical safety strategies for stem cell therapies. Toxicol. Appl. Pharmacol. 262 (3), 223-231 (2012).
Przedruki i uprawnienia
