Ten protokół wyjaśnia pierwotną hodowlę organoidów z dodatnim Lgr5 i późniejszą transdukcję retrowirusową. Umożliwia to indukowaną przez Cre nadekspresję lub knockdown dostarczonego transgenu i umożliwia prowadzenie badań funkcjonalnych w nowym systemie modeli organotypowych in vitro.
Artykuł metodologiczny
Protokół wideo infekcji retrowirusowej w pierwotnej hodowli organoidów jelitowych
W tym artykule
Podsumowanie
Streszczenie
Lgr5-dodatnie komórki macierzyste mogą być uzupełnione o niezbędne czynniki wzrostu Egf, Noggin i R-Spondin, co pozwala nam hodować coraz bardziej rozszerzające się pierwotne struktury nabłonkowe 3D in vitro. Zarówno architektura, jak i właściwości fizjologiczne tych "mini-jelit", zwanych również organoidami, są bardzo podobne do ich odpowiedników in vivo. To sprawia, że są one atrakcyjnym systemem modelowym dla nabłonka jelita cienkiego. Korzystając z transdukcji retrowirusowej, genetyka funkcjonalna może być teraz wykonywana przez warunkową nadekspresję genów lub knockdown. Ten film pokazuje procedurę hodowli organoidów, generowania retrowirusów i retrowirusowej transdukcji organoidów w celu wspięcia analizy fenotypowej nabłonka jelita cienkiego in vitro. Ten nowatorski system modelowy organotypowy w połączeniu z ekspresją genów za pośrednictwem retrowirusa stanowi cenne narzędzie do szybkiej analizy funkcji genów in vitro bez konieczności kosztownego i czasochłonnego generowania w przypadku zwierząt transgenicznych.
Wprowadzenie
Wysokoprzepustowa genetyka funkcjonalna jest potrzebna, aby zwiększyć nasze biologiczne zrozumienie ciała, poprawić obecne nauki podstawowe i medycynę. Genetyka myszy jest złotym standardem w badaniu funkcji genów in vivo, chociaż jest to zarówno czasochłonne, jak i kosztowne. Linie komórkowe, będące innym powszechnym wyborem, mają większą przepustowość, a jednocześnie są tańsze. Są one jednak utrudnione przez ich niezdolność do odtworzenia prawidłowego mikrośrodowiska, a tym samym reakcji fizjologicznych obserwowanych in vivo. W związku z tym istnieje jednoznaczne zapotrzebowanie na łatwy w obsłudze system modelowy, który umożliwia ekonomiczną analizę o wysokiej przepustowości w stosunku do kosztów, naśladując jednocześnie reakcje fizjologiczne obserwowane w eksperymentach na transgenicznych (tg) myszach in vivo.
Dla nabłonka endodermalnego jeden taki model systemu pojawił się w 2009 roku1. Wśród wiedzy uzyskanej dzięki odkryciu Lgr5-dodatnich jelitowych komórek macierzystych znalazły się informacje na temat niszy odpowiadającej macierzy zewnątrzkomórkowej i czynnikom wzrostu niezbędnym do utrzymania komórek macierzystych. Wykorzystując te informacje, możliwe stało się stworzenie "mini-jelit" znanych również jako organoidy2. Ostatnio zaproponowano jednomyślną nomenklaturę dla kultur in vitro, w których organoidy określa się mianem "enteroidów"3. Podobnie jak linie komórkowe, organoidy stale się rozwijają i są łatwe do leczenia za pomocą ligandów i inhibitorów. Jednak zamiast być dwuwymiarowe, są to trójwymiarowe, samoorganizujące się struktury, które zachowują organizację krypty-kosmków, a także komórki macierzyste i zróżnicowane linie komórkowe jelita cienkiego (SI). Organoidy składają się z pojedynczej warstwy komórek nabłonkowych, które otaczają obszar świetlny. Wystające struktury pączkujące odpowiadają kryptom jelita cienkiego zawierającym przedział komórek macierzystych. Zaczynając od czubka pączkującej struktury, komórki progenitorowe różnicują się, migrując w kierunku wyściółki nabłonka, gdzie ostatecznie zróżnicowane komórki są zrzucane do światła. W porównaniu z liniami komórkowymi, ten system ex vivo bardziej odzwierciedla normalną fizjologię i dlatego jest obiecującym systemem modelowym dla nabłonka jelita cienkiego.
W tym protokole wideo transdukcji retrowirusowej prezentujemy metodę, która umożliwia badania funkcji genów ex vivo w tym nowym systemie hodowli organoidów. Zaczynamy od opisania hodowli organoidów krok po kroku, a następnie demonstrujemy proces generowania retrowirusów, po którym następuje procedura transdukcji. Na końcu znajduje się sekcja z dodatkowymi poradami dotyczącymi rozwiązywania problemów. Zaletą tej techniki jest to, że można ją połączyć z obrazowaniem na żywo lub badaniami przesiewowymi leków w celu zbadania homeostazy, decyzji dotyczących losu komórki i interakcji komórka-komórka w nabłonku jelitowym. Ze względu na swoją prostą architekturę i szybkie tempo rotacji, organoidy stanowią idealny system modelowy do badania biologii dorosłych komórek macierzystych. Ponadto transdukcję retrowirusową można zastosować do organoidów pochodzących z wcześniej ustalonych myszy transgenicznych, a także do próbek pobranych od pacjentów pochodzenia ludzkiego. Z uwagi na to, że metody knock-in i knock-out nie mogą być rozszerzone na ludzi, ludzkie organoidy SI stanowią atrakcyjną alternatywę.
Podsumowując, manipulacja genami poprzez transdukcję retrowirusową umożliwia analizę fenotypową w organoidach jelita cienkiego pochodzących z próbek tkanek myszowych lub ludzkich, uzupełniając w ten sposób genetykę myszy i linie komórkowe, otwierając nowe możliwości badań na tkankach pochodzenia ludzkiego. Transdukcja retrowirusowa umożliwia przeprowadzenie badań przyrostu i utraty funkcji w systemie hodowli organoidów4. To sprawia, że jest to cenne źródło do badania funkcji genów, biologii dorosłych komórek macierzystych i chorób, pozostając jednocześnie w zgodzie z trzema R (redukcja, udoskonalenie i wymiana).
Protokół
Wszystkie myszy użyte w poniższym protokole były trzymane w specyficznych warunkach wolnych od patogenów, a wszystkie procedury zostały przeprowadzone zgodnie z przepisami brytyjskiego Ministerstwa Spraw Wewnętrznych.
1. Przygotowanie
- Przygotuj podłoże 1 godzinę przed użyciem (więcej informacji znajduje się w Tabeli 1 i Wykazie materiałów) i podgrzej w łaźni wodnej o temperaturze 37 °C co najmniej 10 minut przed użyciem.
2. Hodowla organoidów jelita cienkiego (SI)
UWAGA: O ile nie zaznaczono inaczej, wszystkie inkubacje są wykonywane w temperaturze 37 °C, 5% CO2 w nawilżanym inkubatorze. Sprzęt i odczynniki mające kontakt z żywymi komórkami muszą być sterylne.
Wstępne podgrzanie płytki do hodowli tkankowej jest ważne, ponieważ zapobiega rozprzestrzenianiu się kropli macierzy podstawowej (Matrigel lub BME) podczas wysiewu. Ponadto matryca piwnicy powinna być przez cały czas trzymana na lodzie. Przechowywać w temperaturze -20 °C i rozmrozić na lodzie przed użyciem.
- Izolowanie krypt
- W celu wyizolowania jelita cienkiego należy złożyć mysz w ofierze zgodnie z krajowymi przepisami i regulacjami, a następnie położyć zwierzę na grzbiecie i umyć brzuch 70% etanolem. Wykonaj podłużne nacięcie linii środkowej od pachwiny do mostka. Najpierw przetnij skórę, a następnie tkankę podskórną. Usuń jelito cienkie z jelita ślepego do żołądka. Krypty wyizolowane z dwunastnicy, jelita czczego i jelita krętego można wykorzystać do hodowli organoidów.
- Przemyć wyizolowane jelito cienkie wstępnie schłodzonym roztworem soli fizjologicznej buforowanej fosforanami bez wapnia i magnezu (PBS0).
- Pokrój tkankę na kawałki o długości 3-5 cm i użyj nożyczek, aby rozciąć ją wzdłużnie. Rozprowadź tkankę za pomocą kleszczy.
- Zeskrob kosmki za pomocą szkiełka nakrywkowego. Uwaga, zbyt duża siła spowoduje rozdarcie tkanki i zmniejszy wydajność krypt w kolejnych krokach.
- Przenieść tkankę do probówki o pojemności 50 ml zawierającej wstępnie schłodzony PBS0 za pomocą kleszczy. Umyj fragmenty tkanki przez energiczne potrząsanie i zmień PBS0. Powtórz 2-3 razy lub do momentu, gdy PBS0 stanie się mniej mętny.
- Inkubować tkankę w probówce o pojemności 50 ml zawierającej 30 ml PBS0 z 1 mM kwasem etylenodiaminotetraoctowym (EDTA) przez 30 minut w temperaturze 4 °C na wałku probówkowym.
- Energicznie wstrząsnąć probówką i przenieść tkankę do innej probówki o pojemności 50 ml zawierającej 30 ml PBS0 z 5 mM EDTA. Roztwór 1 mM EDTA (poprzednio zawierający tkankę) będzie zawierał mieszaninę krypt i kosmków. Frakcja ta nie nadaje się do wysiewu organoidów, ponieważ często zawiera wysoki procent kosmków.
- Inkubować tkankę przez 1 godzinę w temperaturze 4 °C na wałku rurowym.
- Energicznie wstrząśnij probówką i zbierz roztwór do czystej probówki o pojemności 50 ml. Potwierdzić obecność krypt i oszacować ich liczbę, np. zliczając krypty w 50 μl za pomocą mikroskopu świetlnego. Oblicz objętość potrzebną do uzyskania 50-100 krypt i przenieś ją do probówki o pojemności 1,5 ml.
- Wirować w temperaturze 300 x g przez 5 minut. Wyrzucić supernatant, ponownie zawiesić osad w 50 μl matrycy podstawowej i wysiać nasiona na wstępnie podgrzanej 24-dołkowej płytce. Inkubuj płytkę w inkubatorze do hodowli tkankowych przez 5-15 minut, aby matryca podstawowa uległa polimeryzacji.
- Nakładka z 500 μl podłoża ENR (patrz Tabela 1). Około 24 godziny po wysianiu organoidy pokażą mały okrągły torbielowaty kształt, a po kolejnych 2-3 dniach widoczne staną się pączkujące struktury. Zmieniaj na nowe nośniki ENR co 3 dni.
- Pasaż kultur organoidowych co 7 dni.
- Przekazywanie i konserwacja organoidów
- Utrzymuj organoidy, odświeżając pożywkę co 3 dni i przechodząc 1:3 lub 1:5, gdy światło wypełnia się martwymi komórkami, mniej więcej co 7 dni.
- Rozbić kopułę macierzy podstawowej pożywką za pomocą końcówki pipetmana o pojemności 1 ml i przenieść ją ze studzienki do probówki o pojemności 1,5 ml.
- Mechanicznie rozdzielić organoidy poprzez pipetowanie około 50 razy przy użyciu drobnej końcówki (np. 200 μl).
- Wirować z prędkością 300 x g przez 5 min.
- Odrzucić supernatant i ponownie zawiesić osad w 150-250 μl matrycy podstawowej. Nasiona umieścić na wstępnie podgrzanej 24-dołkowej płytce (50 μl matrycy podstawowej/studzienki). Przed wysiewem odpipetuj matrycę podstawną raz w górę iw dół, aby pokryć ściankę końcówki. Pipetować powoli, aby uniknąć pęcherzyków i nasion na środku studzienki, aby zapobiec rozprzestrzenianiu się macierzy podstawowej. Pożądane jest, aby w środku studni znajdowała się kopuła z matrycy piwnicznej.
- Inkubować w inkubatorze do hodowli tkankowych przez 5-15 minut, aby matryca podstawowa uległa polimeryzacji. Nakładka z 500 μl pożywki ENR na studzienkę.
3. Leczenie organoidów SI przed infekcją
UWAGA: Rysunek 1 ilustruje procedurę transdukcji.
- Zamień ENR na pożywkę ENRWntNic (patrz Tabela 1) i hoduj organoidy w tym podłożu przez co najmniej 3 dni lub do momentu, gdy przyjmą morfologię torbielowatą. Wnt3a zwiększa liczbę komórek macierzystych i komórek Panetha, podczas gdy nikotynamid (Nic) poprawia wydajność hodowli.
4. Produkcja wirusów
- Na infekcję potrzebna jest jedna 150-milimetrowa miska komórek Platinum-E. Wysiewaj około 5 x 10⁶ komórek z 15-18 ml pożywki (DMEM + 10% FBS) w obecności puromycyny (1 μg/ml) i blasticydyny (10 μg/ml). Komórki transfekcyjne po 2-3 dniach, gdy osiągną 70-80% konfluencji. Zmień pożywkę na DMEM + 10% FBS bez puromycyny i blastycydyny przed transfekcją.
- Dodać 30 μg retrowirusowego konstruktu DNA i 240 μl polietylenininu (PEI) do oddzielnych probówek zawierających 1 ml opti-MEM. Wymieszać i inkubować w temperaturze pokojowej przez 5 minut.
- Połączyć oba roztwory i inkubować w temperaturze pokojowej przez 20-30 minut. Dodać całą mieszaninę do pożywki komórek Platinum-E i ostrożnie wstrząsnąć płytką, aby zapewnić równomierne rozprowadzenie kompleksów DNA-PEI.
- Inkubować komórki Platinum-E z mieszaniną transfekcji przez noc i odświeżyć pożywkę następnego dnia. Trzymaj komórki w nowym podłożu przez 2 dni.
- Zebrać tylko pożywkę do probówki Falcona o pojemności 50 ml, przepuścić przez filtr 0,45 μm i odwirować przy 8 000 x g w temperaturze 4 °C przez 12-16 godzin. Odrzucić supernatant i ponownie zawiesić osad w 250 μl pożywki transdukcyjnej (patrz Tabela 1).
5. Przygotowanie fragmentu organoidu
- Do jednej infekcji potrzebna jest jedna studzienka z płytki 24-dołkowej. Rozbić kopułę macierzy podstawnej pożywką za pomocą końcówki pipetmana o pojemności 1 ml i przenieść ją do probówki o pojemności 1,5 ml.
- Użyj drobniejszego końcówka do objętości (np. końcówki o pojemności 200 μl), aby mechanicznie rozbić organoidy poprzez pipetowanie (30-50 razy). Roztwór stanie się mętny i nie powinny być widoczne żadne całe organoidy.
- Wirować w temperaturze pokojowej, 900 x g przez 5 min.
- Odrzucić supernatant i ponownie zawiesić osad w 500 μl rekombinowanej proteazy klasy hodowli komórkowej (np. TrypLE). Inkubować w temperaturze 37 °C przez 5 minut. Po inkubacji należy sprawdzić wielkość fragmentów organoidu za pomocą mikroskopii świetlnej, zliczając liczbę komórek w jednym fragmencie. Idealne są fragmenty zawierające 5-10 komórek. Jeśli większość fragmentów zawiera większą liczbę komórek, czas inkubacji można jednorazowo wydłużyć o 2 minuty.
- Zakończyć proces dysocjacji, dodając 500 μl pożywki ENR.
- Odwirować w temperaturze pokojowej, 900 x g przez 5 min. Usunąć supernatant i utrzymać osad na lodzie lub w temperaturze 4 °C.
6. Transdukcja retrowirusowa
- Połączyć fragmenty organoidów z 250 μl roztworu retrowirusowego (z sekcji 4.5) w jednym dołku na 48-dołkowej płytce. Delikatnie wymieszać, powoli pipetując, używając końcówki pipetmana o pojemności 1 ml.
- Uszczelnij płytkę za pomocą Parafilm.
7. Spinokulation i poszycie
- Odwirować płytkę w temperaturze 32 °C, 600 x g, przez 1 godzinę. Ostrożnie usunąć Parafilm i inkubować płytkę w inkubatorze do hodowli tkankowych przez 6 godzin.
8. Zasiewanie zainfekowanych fragmentów organoidów
- Przenieść zakażone fragmenty organoidów i pożywki transdukcyjne ze studzienki do probówki o pojemności 1,5 ml i wirować w temperaturze 900 x g przez 5 minut.
- Odrzucić sklarowany osad i umieścić probówkę zawierającą osad na lodzie na 5 minut do ostygnięcia. Dodać 100 μl matrycy podstawowej i ponownie zawiesić granulki, pipetując powoli w górę i w dół.
- Krople nasion o objętości 50 μl "mieszanki macierzy podstawowej i komórek" na nowej 24-dołkowej płytce. Inkubować płytkę w temperaturze 37 °C przez 5-15 minut, aż do zestalenia się matrycy podstawowej.
- Dodać pożywkę transdukcyjną bez polibrenu do studzienek i inkubować płytkę w inkubatorze do hodowli tkankowych. Zmieniaj nośniki co 2-3 dni.
9. Wybór
- Selekcję należy rozpocząć po 2-3 dniach, dodając do podłoża puromycynę (1 μg/ml).
- Gdy fragmenty zaczną tworzyć organoidy, zastąp pożywkę transdukcyjną pożywką ENR uzupełnioną puromycyną (1 μg/ml).
10. Leczenie organoidów SI po infekcji
- Hodowla transdukowanych organoidów zgodnie z protokołem "Pasażowanie i utrzymywanie organoidów" (sekcja 2.2.1). Po 1-2 tygodniach organoidy SI odzyskają swoje pączkujące struktury.
- Po pojawieniu się pączkujących struktur indukuj ekspresję miRNA lub cDNA poprzez dodanie 4-hydroksytamoksyfenu (4-OHT) w stężeniu roboczym 1 μM. Należy zauważyć, że ten krok jest ważny tylko w przypadku stosowania wektorów retrowirusowych z Addgene (pMSCV-loxp-dsRed-loxp-eGFP-Puro-WPRE (32702), pMSCV-loxp-dsRed-loxp-3xHA-Puro-WPRE (32703) i pMSCV-FLIP-puro-dsRed-GFP-miRNA (32704)) i organoidów eksprymujących Cre-ERT2.
11. Potwierdzenie infekcji i ekspresja/supresja interesującego genu
- W przypadku stosowania wektorów retrowirusowych z Addgene (32702, 32703 i 32704) skuteczność transdukcji można potwierdzić poprzez obserwację ekspresji dsRed. Co więcej, ekspresję lub supresję genu będącego przedmiotem zainteresowania można potwierdzić za pomocą Western Blot, przy użyciu epitopu GFP lub 3xHA (w przypadku nadekspresji genu) i qPCR (w przypadku knockdownu genu), jak pokazano w Koo i wsp.4.
Wyniki
Organoidy są gotowe do podziału, gdy centralny lumen ciemnieje z powodu obecności martwych komórek (Rysunek 2). Po 2-3 dniach wstępnej obróbki organoidy powinny przyjąć okrągłą morfologię torbielowatą (Rysunek 3). Zwiększa to liczbę komórek macierzystych, co poprawia szansę na uzyskanie stabilnej integracji. Wielkość pelletu wirusowego może się różnić po wirowaniu supernatantu wirusowego, co najprawdopodobniej wynika ze zmiennego udziału resztek komórkowych w wielkości osadu. Nie zaobserwowano wyraźnej korelacji z wydajnością transdukcji. Podczas procedury selekcji organoidy nietransdukowane obumrą, natomiast te z trwałą integracją przetrwają. Białko fluorescencyjne z retrowirusa MSCV-eGFP można zaobserwować w komórkach pochodzących z przeżyłych organoidów o morfologii torbielowatej w ciągu 2-3 dni po transdukcji (Rysunek 4).

Rycina 1. Schemat procedury transdukcji retrowirusowej. Przed infekcją organoidy są wstępnie traktowane pożywką ENRWntNic, aż do momentu przyjęcia struktury cystycznej (krok 1). Jako linia komórek pakujących wykorzystywane są komórki Platinum-E, które hoduje się do osiągnięcia 70-80% konfluencji. Następnie dokonuje się transfekcji konstruktem retrowirusowym przy użyciu PEI. Wirusy są zbierane po 2 dniach (krok 2). Organoidy poddaje się trypsynizacji w celu uzyskania fragmentów zawierających od 1 do 10 komórek (krok 3), a następnie są one infekowane (krok 4). Po zastosowaniu spinokulacji w celu zwiększenia wydajności infekcji (krok 5), zainfekowane fragmenty organoidów są wysiewane (krok 6), a po 2-3 dniach można przeprowadzić selekcję klonów pozytywnych ze stabilną integracją (krok 7).

Rysunek 2. Reprezentatywny obraz organoidów po 4–6 dniach hodowli. Światło jest wypełnione martwymi komórkami, przez co wydaje się ciemne. Organoidy na tym etapie są gotowe do pasażowania.
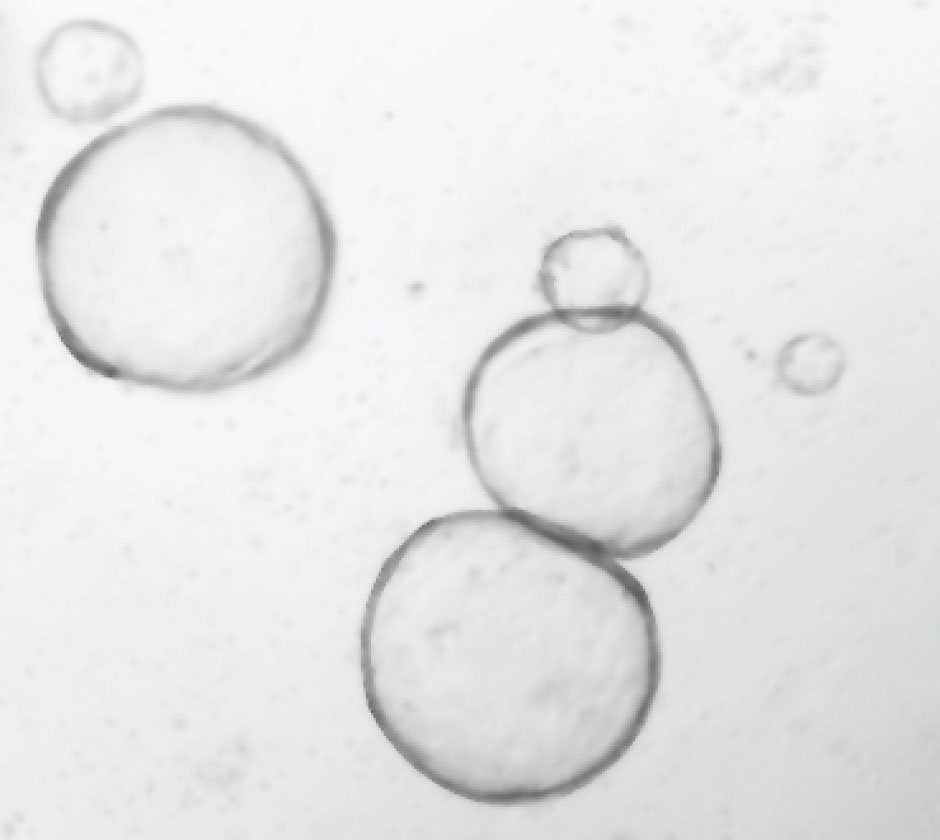
Rycina 3. Reprezentatywny obraz organoidów jelita cienkiego hodowanych w pożywce ENRWntNic przez 3-4 dni. Organoidy przyjmują morfologię torbielowatą.
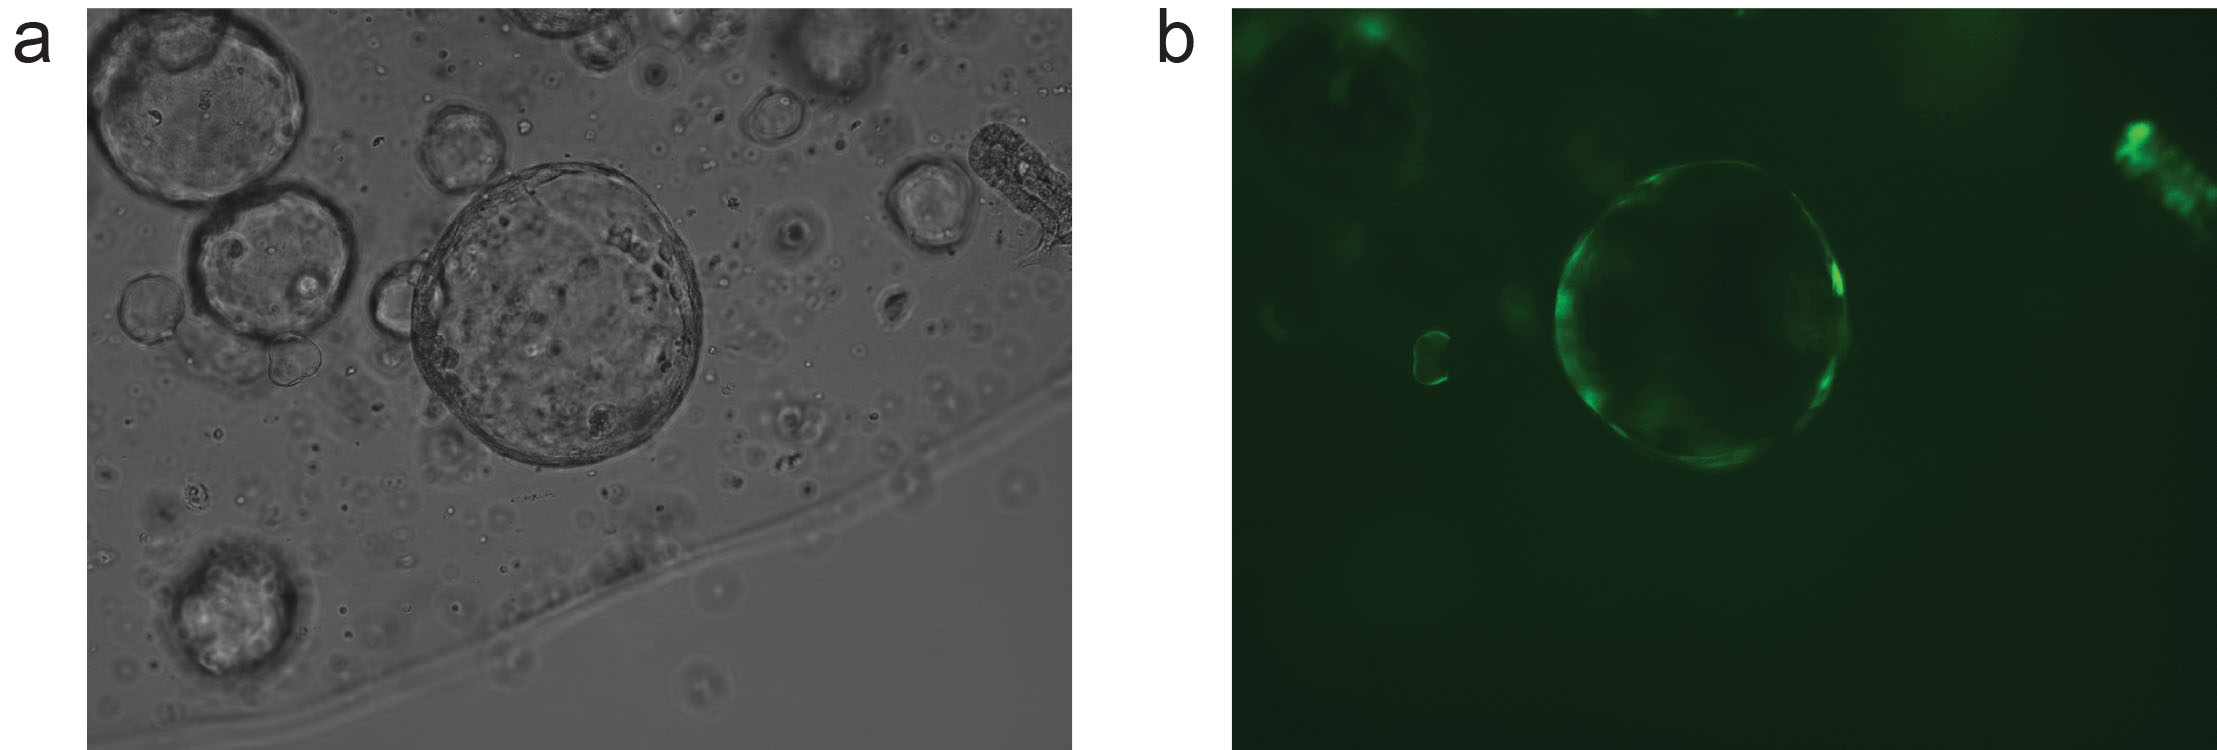
Rycina 4. Reprezentacyjny obraz organoidów jelita cienkiego (a), które wykazują ekspresję transgenu wirusowego (b, eGFP).
| Advanced DMEM/F12 +++ | |
| Przechowywać w 4 °C przez 4 tygodnie | |
| Advanced DMEM/F12 | 500 ml |
| Glutamax 100x | 5 ml |
| Hepes 1 M | 5 ml |
| Antybiotyki 100x | 5 ml |
| Pożywka ENRWntNic (na 20 ml) | |
| Przechowywać w 4 °C przez 2 tygodnie | |
| Advanced DMEM/F12 +++ | 7.2 ml |
| Suplement B27 (50x) | 400 µl |
| Suplement N2 (100x) | 200 µl |
| n-Acetylocysteina (500 mM) | 50 µl |
| mysi EGF (500 µg/ml) | 2 µl |
| mysi Noggin (100 µg/ml) | 20 µl |
| Pożywka kondycjonowana R-Spondin | 2 ml |
| Pożywka kondycjonowana Wnt3a | 10 ml |
| Nikotynamid (1 M) | 200 µl |
| Pożywka do transdukcji (na 20 ml) | |
| Przygotować na świeżo | |
| Pożywka ENRWntNic | 20 ml |
| Y-27632 (10 µM) | 20 µl |
| Polybrene (8 µg/ml) | 20 µl |
| Pożywka ENR (na 20 ml) | |
| Przechowywać w 4 °C przez 4 tygodnie | |
| Advanced DMEM/F12 +++ | 17.4 ml |
| Suplement B27 (50x) | 400 µl |
| Suplement N2 (100x) | 200 µl |
| n-Acetylocysteina (500 mM) | 50 µl |
| mysi EGF (500 µg/ml) | 2 µl |
| mysi Noggin (100 µg/ml) | 20 µl |
| Pożywka kondycjonowana R-Spondin | 2 ml |
| Pożywki dla komórek Platinum-E (na 500 ml) | |
| Przechowywać w 4 °C przez 12 tygodni | |
| DMEM | 449.45 ml |
| Płodowa surowica bydlęca (FBS) | 50 ml |
| Puromycyna (1 μg/ml) | 50 µl |
| Blastycydyna (10 μg/ml) | 500 µl |
Tabela 1. Skład pożywek: Advanced DMEM/F12 +++, pożywka ENRWntNic, pożywka do transdukcji, pożywka ENR oraz pożywka dla komórek Platinum-E.
Dyskusja
Aby osiągnąć wysoką wydajność transdukcji, pewne aspekty są krytyczne. Jednym z nich jest wstępna obróbka organoidów pożywką ENRWntNic do momentu, aż przyjmą okrągły torbielowaty kształt. Zwiększa to liczbę komórek macierzystych, a tym samym szansę na uzyskanie stabilnej integracji transgenu, a także zwiększa przeżywalność organoidów SI podczas całej procedury transdukcji. Kolejnym parametrem jest czas inkubacji po spinokulacji. Zbyt krótka lub zbyt długa inkubacja skutkuje odpowiednio słabą wydajnością transdukcji i słabą przeżywalnością organoidów. Etap spinokulacji nie jest niezbędny, chociaż znacznie zwiększa odsetek transdukowanych organoidów. Wreszcie, wirus o wysokim mianie jest kluczem do udanej transdukcji. Jest to zależne od rodzaju opakowania, linii komórkowej i wirusa. Stwierdzono, że połączenie linii komórkowej Platinum-E i wirusa mysich komórek macierzystych (MSCV) wytwarza miano wystarczająco wysokie do transdukcji organoidów.
Poniżej znajdują się wskazówki dotyczące rozwiązywania problemów, które mogą pomóc w osiągnięciu udanej transdukcji. Po pierwsze, jeśli transfekcja linii komórek pakujących jest słaba, upewnij się, że zbieg komórek wynosi 70-80%, a czas inkubacji połączonej mieszaniny PEI-DNA wynosi od 20 do 30 minut. Przeżywalność organoidów podczas transdukcji w dużym stopniu zależy od wielkości fragmentu. Zbyt długa trypsynizacja powoduje, że większość fragmentów składa się z mniej niż 3 komórek, a tym samym zmniejsza przeżywalność organoidów. Kolejnym czynnikiem jest aktywność pożywki kondycjonowanej Wnt, jeśli aktywność jest zbyt niska, jej zwiększenie poprzez dodanie CHIR99021 w stężeniu roboczym 5 μM może zwiększyć przeżywalność. CHIR99021 hamuje GSK3, co powoduje zwiększoną sygnalizację Wnt. Ponadto Y-27362, który zapobiega anoikis, jest dodawany do pożywki transdukcyjnej w celu poprawy przeżywalności organoidów, ponieważ organoidy są rozpadane na fragmenty (zawierające 1-10 komórek) przed transdukcją. Jak wspomniano powyżej, czas inkubacji po spinokulacji nie powinien przekraczać 6 godzin. Wreszcie, jeśli obserwuje się słabą transdukcję, należy wziąć pod uwagę wyżej wymienione czynniki wpływające na miano wirusa i limit wielkości wstawki dla wektora retrowirusowego. Skuteczność knockdownu jest w dużym stopniu zależna od miRNA. Ponieważ wydajność różni się w zależności od kombinacji genu docelowego i miRNA, warto wykonać badanie przesiewowe wydajności, aby zidentyfikować te, które działają najlepiej.
Technika ta ogranicza się do zjawisk nabłonkowych układu organoidowego. W przyszłości możliwe będzie badanie chorób zakaźnych lub o podłożu immunologicznym poprzez współhodowlę patogenów lub rekonstytucję ze składnikami pochodzącymi z układu odpornościowego. Co więcej, retrowirusy mogą przenosić tylko wkładki o stosunkowo niewielkich rozmiarach. W związku z tym naturalnie występujące regiony regulatorowe muszą zostać wykluczone, a zatem ekspresja transgenu nie może naśladować ekspresji genu endogennego. Jak wspomniano powyżej, skuteczność knockdown zależy od docelowego genu i miRNA. Jeśli nie zostanie znalezione miRNA o odpowiedniej wydajności knockdown, może to ograniczyć zastosowanie tej techniki dla tego konkretnego genu docelowego.
Teoretycznie organoidy są kompatybilne ze wszystkimi znormalizowanymi technikami manipulacyjnymi stosowanymi w liniach komórkowych. Transdukcja retrowirusowa była pierwszą metodą, która została opisana4, a ostatnio dostępna stała się transgeneza BAC (sztucznego chromosomu bakteryjnego)5. Przy całkowitym czasie generacji wynoszącym 2-3 tygodnie, po transfekcji plazmidu wirusa do linii komórkowej opakowania, jest on znacznie szybszy niż generacja myszy transgenicznej (tg). Zachowując in vivo architekturę kosmków kryptowych, a jednocześnie zawierających komórki macierzyste, a także wszystkie zróżnicowane linie komórkowe nabłonka jelitowego, system hodowli organoidów wypełnia lukę między tg zwierzęcą a wcześniej stosowaną hodowlą komórkową.
Opisany tutaj protokół zapewnia metodę przeprowadzania analizy fenotypowej nabłonka endodermalnego in vitro poprzez badania przyrostu i utraty funkcji. To sprawia, że możliwe jest zajęcie się fizjologicznie istotnymi pytaniami w biologii dorosłych komórek macierzystych, przy minimalnym zapotrzebowaniu na myszy tg. Na przykład można uniknąć generowania myszy z warunkowym nokautem, stosując organoidy pochodzące z nowonarodzonych mutantów ze śmiertelnością okołoporodową6. Ponadto technika ta może być zastosowana do organoidów pochodzących od wcześniej ustalonych myszy z nokautem w celu zbadania roli paralogów poprzez wykonanie dodatkowego knockdown7,8.
Po ustaleniu organoidów jelita cienkiego, adaptacja oryginalnego protokołu hodowli umożliwiła hodowlę nabłonka trzustki, wątroby, okrężnicy i żołądka9-11. Ponadto ludzkie organoidy jelitowe i organoidy nowotworowe pochodzą z normalnych biopsji u ludzi, biopsji pierwotnego gruczolaka i raka jelita grubego10. Protokół infekcji wirusowych można łatwo rozszerzyć na tego typu organoidy i zapewnia bezprecedensowy sposób przeprowadzania badań funkcjonalnych w tkankach pochodzenia ludzkiego.
Podsumowując, transdukcja retrowirusowa organoidów jelita cienkiego jest cennym źródłem do badania utrzymania, różnicowania i decyzji o losie komórek macierzystych, a także sygnalizacji komórkowej i interakcji komórka-komórka.
Oświadczenia
Autorzy nie mają nic do ujawnienia. Autorzy nie mają zadeklarowanego konfliktu interesów.
Podziękowania
Koo BK i Mustata RC są wspierane przez Sir Henry Dale Fellowship z Wellcome Trust, a Andersson-Rolf A jest wspierany przez Radę Badań Medycznych (MRC). Fink J jest wspierany przez Wellcome Trust 4-letnie studia doktoranckie.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Zaawansowany DMEM/F12 | Invitrogen | 12634-034 | |
| Glutamax 100x | Invitrogen | 35050-068 | |
| HEPES 1 M | Invitrogen | 15630-056 | |
| Penicylina-streptomycyna 100x | Invitrogen | 15140-122 | |
| B27 suplement 50x | Invitrogen | 17504-044 | |
| N2 suplement 100x | Invitrogen | 17502-048 | |
| n-acetylocysteina 500 mM | Sigma-Aldrich | A9165-5G | |
| Mysz EGF 500 µ g/ml | Invitrogen Biosource | PMG8043 | |
| Mouse Noggin 100 & mikro; g/ml | Pożywka | ||
| R-Spondin | Kondycjonowana pożywka jest generowana z komórek HEK293, szczegółowe informacje można znaleźć w Sato i Clevers 2013. | ||
| kondycjonowana Wnt | Kondycjonowane podłoże jest generowane z komórek L, szczegółowe informacje można znaleźć w Sato i Clevers 2013. | ||
| Nikotynamid 1 M | Sigma | N0636 | |
| Y-27632 10 &mikro; M | Sigma | Y0503-1MG | |
| Polybrene (8 &mikro; g / ml) | Sigma | H9268-5G | |
| Standard BD Matrigel Matrix | BD Biosciences | 356231 | Ekstrakt z macierzy piwnicznej (Cultrex PathClear BME Reduced Growth Factor Type 2, 3533-005-02) dostarczony przez AMSBIO może być stosowany jako alternatywa. |
| Płytka 24-dołkowa | Greiner Bio One | 662960 | |
| Płytka 48-dołkowa | Greiner Bio One | 677980 | |
| CHIR99021 | Sigma | A3734-1MG | |
| Komórki Platinum-E | Cell Biolabs | RV-102 | |
| Puromycin | Invitrogen | A1113802 | |
| Blasticidin | Invitrogen | A1113902 | |
| Polietylenomina (PEI) | Polysciences | 23966 | |
| opti-MEM | Life Technologies | 51985-034 | |
| TrypLE | Invitrogen | 12605-010 | |
| Parafilm | Sigma | P7793-1EA | |
| 4-OHT | Sigma | H7904 |
Bibliografia
- Sato, T., et al. Single Lgr5 stem cells build crypt-villus structures in vitro without a mesenchymal niche. Nature. 459, 262-265 (2009).
- Sato, T., Clevers, H. Growing self-organizing mini-guts from a single intestinal stem cell: mechanism and applications. Science. 340, 1190-1194 (2013).
- Stelzner, M., et al. A nomenclature for intestinal in vitro cultures. American journal of physiology. Gastrointestinal and liver physiology. 302, G1359-G1363 (2012).
- Koo, B. K., et al. Controlled gene expression in primary Lgr5 organoid cultures. Nature. 9, 81-83 (2012).
- Schwank, G., Andersson-Rolf, A., Koo, B. K., Sasaki, N., Clevers, H. Generation of BAC Transgenic Epithelial Organoids. PloS one. 8, e76871(2013).
- Mustata, R. C., et al. Lgr4 is required for Paneth cell differentiation and maintenance of intestinal stem cells ex vivo. EMBO reports. 12, 558-564 (2011).
- Lau, W., et al. Lgr5 homologues associate with Wnt receptors and mediate R-spondin signalling. Nature. 476, 293-297 (2011).
- Koo, B. K., et al. Tumour suppressor RNF43 is a stem-cell E3 ligase that induces endocytosis of Wnt receptors. Nature. 488, 665-669 (2012).
- Huch, M., et al. Unlimited in vitro expansion of adult bi-potent pancreas progenitors through the Lgr5/R-spondin axis. The EMBO journal. 32, 2708-2721 (2013).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141, 1762-1772 (2011).
- Huch, M., et al. In vitro expansion of single Lgr5+ liver stem cells induced by Wnt-driven regeneration. Nature. 494, 247-250 (2013).
Przedruki i uprawnienia
