Test bioreporterowy całej komórki z Burkholderia sartisoli RP037-mChe został opracowany do wykrywania frakcji zanieczyszczenia organicznego (tj. fluoru) dostępnego do degradacji bakteryjnej po aktywnym transporcie przez grzybnię wypełniającą pory wypełnione powietrzem w systemie modelowym nienasyconym wodą.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Podejście bioreporterowe oparte na całej komórce do oceny transportu i biodostępności zanieczyszczeń organicznych w systemach nienasyconych wodą
W tym artykule
Podsumowanie
Streszczenie
Biodostępność zanieczyszczeń jest warunkiem ich efektywnej biodegradacji w glebie. Średnie stężenie nasypowe zanieczyszczenia nie jest jednak odpowiednią miarą jego dostępności; Biodostępność zależy raczej od dynamicznego oddziaływania potencjalnego transferu masy (strumienia) związku do komórki drobnoustroju i zdolności tej ostatniej do degradacji związku. Wykazano, że w nienasyconych wodą częściach gleby grzybnia pokonuje ograniczenia biodostępności poprzez aktywny transport i mobilizację związków organicznych w zakresie centymetrów. Podczas gdy zakres transportu opartego na grzybni może być łatwo określony ilościowo za pomocą środków chemicznych, weryfikacja biodostępności zanieczyszczeń dla komórek bakteryjnych wymaga metody biologicznej. Odnosząc się do tego ograniczenia, wybraliśmy fluoren WWA (FLU) jako związek modelowy i opracowaliśmy nienasycony wodą modelowy mikrokosmos łączący przestrzennie oddzielone źródło punktowe FLU i rozkładającą FLU bakterię bioreporterową Burkholderia sartisoli RP037-mChe za pomocą sieci grzybni Pythium ultimum. Ponieważ bioreporter ulega ekspresji eGFP w odpowiedzi na strumień PAH do komórki, ekspozycja i degradacja FLU bakterii może być monitorowana bezpośrednio w mikrokosmosach za pomocą konfokalnej laserowej mikroskopii skaningowej (CLSM). CLSM i analizy obrazowe wykazały znaczny wzrost ekspresji eGFP w obecności P. ultimum w porównaniu z kontrolami bez grzybni lub FLU, co wskazuje na biodostępność FLU dla bakterii po transporcie za pośrednictwem grzybni. Wyniki CLSM zostały poparte analizami chemicznymi w identycznych mikrokosmosach. Opracowany mikrokosmos okazał się odpowiedni do badania biodostępności zanieczyszczeń i jednoczesnej wizualizacji interakcji między bakteriami a grzybnią.
Wprowadzenie
Gleba jest gęsto zaludniona przez szeroką gamę mikroorganizmów1,2, takich jak bakterie. Jednak warunki w tym siedlisku są trudne, zwłaszcza pod względem dostępności wody3. Bakterie muszą stale poszukiwać optymalnych warunków w niejednorodnych środowiskach4, ale brak ciągłych filmów wodnych powoduje ograniczoną mobilność5 i utrudnia im swobodne rozprzestrzenianie się. Również szybkość dyfuzji substancji rozpuszczonych (np. składników odżywczych) jest obniżona w warunkach nienasyconych6. W związku z tym bakterie i składniki odżywcze są często fizycznie oddzielone, a dostępność składników odżywczych jest ograniczona3. W związku z tym wektor transportu związków chemicznych, który nie wymaga ciągłej fazy wodnej, może pomóc w przezwyciężeniu tych ograniczeń. W rzeczywistości wiele mikroorganizmów, takich jak grzyby i lęgniowce, rozwinęło nitkowatą formę wzrostu, umożliwiając im wzrost w wypełnionych powietrzem przestrzeniach porowych, docierając w ten sposób i mobilizując na duże odległości również fizycznie oddzielone składniki odżywcze7 i substancje węglowe8. Mogą nawet działać jako biologiczne wektory transportowe, które dostarczają bakteriom cukry i inne źródła energii9. Pobieranie i transport w organizmach grzybni wykazano również w przypadku hydrofobowych zanieczyszczeń organicznych, takich jak wielopierścieniowe węglowodory aromatyczne (WWA) w Pythium ultimum10 lub w arbuskularnych grzybach mikoryzowych11. Ponieważ WWA są wszechobecnymi i słabo rozpuszczalnymi w wodzie zanieczyszczeniami12 w glebie, transport za pośrednictwem grzybni może pomóc w zwiększeniu biodostępności zanieczyszczeń dla potencjalnych degraderów bakteryjnych. Podczas gdy całkowita ilość transportu zanieczyszczeń może być określona ilościowo bezpośrednio za pomocą środków chemicznych10, biodostępność zanieczyszczeń transportowanych przez grzybnię do rozkładających się bakterii i innych organizmów nie może być łatwo oceniona.
Poniższy protokół przedstawia metodę oceny wpływu grzybni na biodostępność zanieczyszczeń dla degraderów bakteryjnych w bezpośredni sposób; pozwala na zbieranie informacji o czasoprzestrzennym wpływie zanieczyszczeń na ekosystemy mikrobiologiczne. Opisujemy, jak stworzyć skomplikowany nienasycony system mikrokosmosu naśladujący interfejsy powietrze-woda w glebie, łącząc fizycznie oddzielone źródło punktowe PAH z bakteriami bioreporterowymi rozkładającymi WWA za pośrednictwem wektorów transportu grzybni. Ponieważ transport drogą powietrzną jest wykluczony, wpływ transportu opartego na grzybni na biodostępność WWA dla bakterii może być badany w wyizolowany sposób. Bardziej szczegółowo, trójpierścieniowy fluoren WWA, organizm grzybni Pythium ultimum i bakteria bioreporterowa Burkholderia sartisoli RP037-mChe13 zostały zastosowane w opisanych konfiguracjach mikrokosmosu. Bakteria B. sartisoli RP037-mChe została pierwotnie skonstruowana do badania strumieni fenantrenu do komórki14 i ulega ekspresji wzmocnionego białka zielonej fluorescencji (eGFP) w wyniku strumienia PAH do komórki, podczas gdy czerwona fluoryzująca mCherry ulega ekspresji konstytutywnej. Szczegółowych informacji na temat budowy reportera udzielają Tecon et al. 13 We wstępnych testach bakteria nie wykazywała zdolności do pływania, a jedynie bardzo powolne rojenie. Był w stanie powoli migrować na strzępkach Pythium ultimum, gdy był stosowany jako gęsta zawiesina na strzępkach. Ponieważ bakterie były osadzone w agarozie w poniższym protokole, migracja strzępek nie nastąpiła.
Za pomocą konfokalnej laserowej mikroskopii skaningowej (CLSM), bakterie bioreporterowe mogą być wizualizowane bezpośrednio w mikrokosmosach, a ekspresja eGFP może być określana ilościowo w stosunku do ilości komórek (proporcjonalna do sygnału mCherry) za pomocą oprogramowania ImageJ. Pozwala to na jakościowe porównanie biodostępności w różnych scenariuszach (tj. wyższej lub niższej). Stwierdzono, że FLU jest biodostępny po transporcie grzybni przez P. ultimum (tj. był wyższy niż w kontroli negatywnej). Ponadto protokół opisuje, w jaki sposób określić ilościowo całkowitą ilość transportu za pośrednictwem grzybni za pomocą środków chemicznych oraz zweryfikować biodostępność zanieczyszczeń przy użyciu włókien szklanych pokrytych silikonem (włókna SPME) w identycznych mikrokosmosach. Wyniki uzyskane przy użyciu tego układu mikrokosmosu zostały opublikowane i omówione dla kombinacji P. ultimum, fluorenu i B. sartisoli RP037-mChe15. W tym miejscu nacisk kładziony jest na szczegółowy opis metody i identyfikację potencjalnych pułapek protokołu, aby dostarczyć tej wiedzy do potencjalnych dalszych zastosowań. Dalsze zastosowania mogą obejmować różne gatunki grzybów, bakterii (np. z zanieczyszczonych miejsc) i inne zanieczyszczenia (np. pestycydy) lub zaopatrzenie w zanieczyszczenia (np. starzejące się gleby).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie naczyń, szkiełek i komór inkubacyjnych
- Przygotować następujące materiały dla każdego mikrokosmosu: jedno duże plastikowe dno szalki Petriego (d = 10 cm), jedno zmodyfikowane (patrz krok 1.2) małe plastikowe dno szalki Petriego (d = 5 cm) z pokrywką oraz jedno szkiełko do komory licznikowej z trzema wgłębieniami.
- Pobrać odpowiednią liczbę dna szalek Petriego (d = 5 cm). Za pomocą piły usunąć część rantu, aby dokładnie pasowały do szkiełka (długość krawędzi 26 mm). W celu sterylizacji układu namoczyć dna szalek i pokrywki w 70% etanolu przez noc (O/N), a następnie suszyć przez co najmniej 2 hr w komorze z laminarnym przepływem powietrza pod światłem UV. Przechowywać szalki w szczelnie zamkniętym plastikowym pojemniku, który również był naświetlany światłem UV przez 2 h.
- Przetrzeć odpowiednią liczbę szkiełek 70% etanolem i pozostawić do wyschnięcia. Zawinąć szkiełka w folię aluminiową i umieścić w piecu muflowym na 5 hr w temperaturze 450 °C w celu usunięcia ewentualnych zanieczyszczeń.
- Przygotować szklane komory inkubacyjne z pokrywkami. Oczyścić je 70% etanolem i naświetlać otwarte komory światłem UV przez co najmniej 2 hr w komorze z laminarnym przepływem powietrza.
UWAGA: W tym celu można zastosować duże deskatory (średnica około 30 cm) z pokrywkami; każdy deskator może pomieścić do dziesięciu zestawów mikrokosmosów.
2. Przygotowanie pożywek i kultur
- Aby przeprowadzić 20 równoległych mikrokosmosów, należy przygotować 100 ml zmodyfikowanego podłoża tryptono-drożdżowego (mTY)14, około 150 ml minimalnego podłoża 21C16 (MM), 5 ml agaru na podłożu minimalnym (MMA; 0,5%, w/v), trzy płytki z agarem ziemniaczano-dekstrozowym (PDA; 1,5%, w/v) dla P. ultimum, cztery puste płytki, jedną płytkę PDA zawierającą 2 mg L-1 cykloheksymidu, cztery płytki z agarozą (3%, w/v) zawierające 0,3 g ml-1 węgla aktywnego oraz 40 mg FLU w porcjach po 2 mg.
- Przygotować mTY zawierające 50 mg L-1 kanamycyny (kanamycyna jest niezbędna do utrzymania plazmidu reporterowego eGFP) oraz MM zawierające 10 mM octanu do hodowli bakterii. Użyć MM bez octanu do przygotowania 0,5% MMA w celu unieruchomienia bakterii w mikrokosmosach i wylać płytki (każda po 20 ml) z 1,5% PDA do hodowli Pythium ultimum i przygotowania mikrokosmosów.
- Zaszczepić strzępki P. ultimum na trzech świeżych płytkach PDA i inkubować w ciemności w temperaturze 25 °C przez około 72 godz. Należy upewnić się, że płytki zostały całkowicie porośnięte świeżą i puszystą grzybnią.
- Zaszczepić dwie kultury B. sartisoli RP037-mChe w 50 ml mTY z zapasu w glicerolu. Inkubować w temperaturze 30 °C przy obrotach kolby 230 rpm przez noc (O/N).
- Zmierzyć gęstość optyczną (OD) kultury przy 578 nm i wirować przy 1 000 x g przez 10 min (dla B. sartisoli RP037-mChe oczekiwana wartość OD578 wynosi około 1,0, a komórki znajdują się w fazie wykładniczej). Odlać nadsącz i zawiesić komórki ponownie w odpowiedniej ilości MM, aby uzyskać OD578 na poziomie 0,4. Zaszczepić 20 ml MM zawierającego 50 mg L-1 kanamycyny za pomocą 400 µl zawiesiny komórkowej. Inkubować w temperaturze 30 °C przy obrotach kolby 230 rpm przez noc (O/N).
- Zmierzyć OD578 kultury w MM (dla B. sartisoli RP037-mChe oczekiwana wartość OD578 wynosi około 0,2, a komórki znajdują się we wczesnej fazie wykładniczej). Wirować kulturę przy 2 000 x g przez 10 min i zawiesić komórki ponownie w odpowiedniej ilości MM, aby uzyskać OD na poziomie 0,4. Wymieszać 50 µl zawiesiny komórkowej z 500 µl ciepłego, płynnego MMA w probówkach 2 ml i przechowywać w temperaturze 50 °C do momentu użycia. Do każdego mikrokosmosu użyć 150 µl komórek w MMA.
- Wylać płytki z żelem agarozowym zawierającym węgiel aktywny. Roztopić agarozę (3%; w/v) w wodzie dwukrotnie destylowanej. Dokładnie wymieszać z węglem aktywnym (0,3 g ml-1) i wylać mieszaninę do plastikowych szalek Petriego (d = 10 cm).
3. Montaż mikrokosmosu
UWAGA: Kompletna konfiguracja mikrokosmosu została przedstawiona schematycznie na Rysunku 1. Prosimy o odniesienie się do Rysunku 1 przy każdym z poniższych poszczególnych kroków. Następujące etapy opisują przygotowanie próbki (SAM) z wektorami transportu grzybni oraz trzech różnych układów kontrolnych (CONAIR, CONNEG, CONPOS). Podsumowanie wszystkich różnych konfiguracji znajduje się w Tabeli 1.
- Przygotować odpowiednią liczbę szalek Petriego oraz szkiełek i naświetlać je promieniowaniem UV w komorze z laminarnym przepływem powietrza przez 30 min.
- Umieścić małą szalkę Petriego wewnątrz większej i wsunąć szkiełko w szczelinę małej szalki. Pobrać próbkę ciepłej zawiesiny komórkowej w MMA i nanieść 150 µl do środkowej wgłębienia jednego szkiełka. Powtarzać ten krok, aż wszystkie środkowe wgłębienia szkiełek zostaną wypełnione MMA. Odczekać 5 min do stężenia MMA.
- Użyć wycinaka do korka o średnicy 1 cm, aby wyciąć okrągłe krążki z czystej płytki PDA. Umieścić jeden krążek w odległości 2 mm obok MMA wewnątrz małej szalki Petriego. Dodać go w celu promowania wzrostu grzybni w układzie (PDA 3 na Rysunku 1).
- Wyciąć zakrzywione fragmenty PDA jako bariery mechaniczne. Użyć czystego i sterylnego dna małej szalki Petriego i docisnąć je do płytki PDA. Za pomocą szpatułki wyciąć kolejny, mniejszy pierścień w odległości 0,5 cm w głąb agaru, co pozwoli uzyskać pierścień PDA.
- Wyciąć fragment, który dokładnie pasuje do szczeliny małej szalki Petriego w układzie mikrokosmosu, i umieścić go w szczelinie na wierzchu szkiełka. Upewnić się, że odległość między MMA a okrągłą barierą PDA wynosi około 2 mm. Zamknąć pokrywę małej szalki Petriego, delikatnie dociskając ją do bariery PDA.
- Powtórzyć kroki 3.4 i 3.4.1 z płytką PDA zawierającą 2 g L-1 cykloheksymidu.
UWAGA: Jest to układ kontrolny dla transportu drogą powietrzną (CONAIR) w kierunku komórek bioreportera, ponieważ wzrost grzybni jest hamowany przez cykloheksymid i nie przerasta ona MMA.
- Użyć wycinaka do korka o średnicy 1 cm, aby wyciąć okrągłe krążki z czystej płytki PDA. Użyć innego wycinaka o średnicy 0,5 cm, aby wyciąć środek pierwszego krążka. Umieścić powstały mały pierścień PDA w odległości 1 mm obok bariery PDA (PDA 1 na Rysunku 1).
- Dodać 2 mg FLU do otworu w PDA 1. Użyć wycinaka do korka o średnicy 1 cm, aby wyciąć okrągłe krążki z płytek PDA przerośniętych P. ultimum i umieścić jeden krążek (PDA 2 na Rysunku 1) dnem do góry na pierścieniu PDA, tak aby mata grzybni była skierowana w stronę kryształków FLU.
- Powtórzyć poprzedni krok bez dodawania kryształków FLU.
UWAGA: Jest to układ kontrolny negatywny (CONNEG) służący do określenia fluorescencji tła komórek bioreportera.
- Powtórzyć poprzedni krok bez dodawania kryształków FLU.
- Użyć wycinaka do korka o średnicy 1 cm, aby wyciąć okrągłe krążki z agaru zawierającego węgiel aktywny. Umieścić cztery krążki w każdym układzie mikrokosmosu, aby dodatkowo zmniejszyć stężenie gazowego FLU (Rysunek 1).
- Przygotować kontrolę pozytywną (CONPOS). Dodać kilka kryształków FLU do 200 µl zawiesiny komórkowej MMA i umieścić ją w jednym wgłębieniu pustego szkiełka.
- Umieścić szalkę Petriego (d = 10 cm) z proszkiem węgla aktywnego na dnie komory inkubacyjnej, aby zminimalizować stężenie gazowego FLU w komorze. Ponadto ustawić na dnie od czterech do pięciu zlewków o pojemności 50 ml z wodą sterylną, aby utrzymać wysoką wilgotność w komorze.
- Przenieść układy mikrokosmosów do komór inkubacyjnych i inkubować w temperaturze 25 °C przez 96 hr. Rozmieścić próbki losowo w różnych komorach wzrostu, aby wykluczyć wpływ lokalizacji.
UWAGA: Ten czas inkubacji dotyczy oomyceta P. ultimum. Może być on inny dla innych organizmów.
- Przenieść układy mikrokosmosów do komór inkubacyjnych i inkubować w temperaturze 25 °C przez 96 hr. Rozmieścić próbki losowo w różnych komorach wzrostu, aby wykluczyć wpływ lokalizacji.
4. Konfokalna mikroskopia skaningowa
- Idealnie jest zastosować układ CLSM z mikroskopem w pozycji pionowej.
UWAGA: Może on być wyposażony w konwencjonalne lasery oferujące np. linie wzbudzania 488, 561 i 633 nm lub w przestrajalne białe źródło laserowe. - Do akwizycji obrazów należy zastosować następujące ustawienia: wzbudzenie: 490 nm (eGFP) oraz 585 nm (mCherry) przy odpowiedniej intensywności lasera (jednoczesne wzbudzenie); zakresy emisji: 500 do 550 nm (eGFP) oraz 605 do 650 nm (mCherry); obiektyw: 63X NA 0,9 imersyjny wodny (ze względu na dużą odległość roboczą); wielkość kroku dla stosów z (z-stacks): 0,5 µm.
- Otwórz układ mikrokosmosu i za pomocą skalpela usuń PDA 1, 2, 3 oraz barierę PDA. Połóż szkiełko nakrywkowe na MMA i delikatnie dociśnij, aby usunąć pęcherzyki powietrza. Zamocuj preparat na stoliku mikroskopu. Dodaj kroplę wody na wierzch nakrywki i korzystając z ustawień mCherry, zlokalizuj komórki bioreportera w próbce.
- Wykonaj szybki przegląd próbki i zoptymalizuj stosunek sygnału do szumu, korzystając z tablicy lookup table typu glow-over-under dla kanału czerwonego (mCherry) i zielonego (eGFP). Wybierz losową pozycję w próbce, aby przeanalizować fluorescencję bioreportera.
UWAGA: strzępki mogą wykazywać autofluorescencję w zakresie emisji bioreportera (np. zieloną autofluorescencję)17. W takim przypadku należy wybrać obszary pozbawione strzępek. - Zdefiniuj i zarejestruj stosy z dla każdej pozycji w kanale zielonym (eGFP) i czerwonym (mCherry). Unikaj fotoblaknięcia próbki spowodowanego długą ekspozycją na światło epifluorescencyjne lub laserowe.
- Powtórz poprzedni krok dla dziesięciu losowych, równomiernie rozłożonych pozycji.
- Powtórz wszystkie kroki, stosując te same ustawienia dla wszystkich próbek z toru testowego (SAM), CONAIR , CONNEG oraz CONPOS.
5. Analiza obrazu
UWAGA: Do analizy fluorescencji czerwonej (mCherry) i zielonej (eGFP) w zarejestrowanych stosach z (z-stacks), spośród innych opcji, można wykorzystać bezpłatne oprogramowanie ImageJ18 (http://rsb.info.nih.gov/ij/download.html).
- Upewnij się, że zainstalowano wtyczkę logi_tool (http://downloads.openmicroscopy.org/bio-formats/4.4.10/).
- Otwórz plik w programie ImageJ. Wybierz opcję „split channels” i zamknij kanał zielony. Użyj makra „mCherry area”, dostarczonego jako uzupełniający plik z kodem, aby określić powierzchnię czerwonej fluorescencji w stosie z (z-stack). Dostosuj preferowane ustawienia w makrze (oznaczone pogrubieniem).
- Wynikiem jest tabela z pomiarami pikseli powyżej progu (i powyżej zdefiniowanego rozmiaru minimalnego) w stosie z.
UWAGA: Suma wszystkich wartości stanowi całkowitą liczbę czerwonych pikseli (powierzchnię) w stosie.
- Wynikiem jest tabela z pomiarami pikseli powyżej progu (i powyżej zdefiniowanego rozmiaru minimalnego) w stosie z.
- Otwórz plik w programie ImageJ. Wybierz opcję „split channels” i zamknij kanał czerwony. Użyj makra „eGFP int”, dostarczonego jako uzupełniający plik z kodem, aby określić intensywność zielonej fluorescencji w stosie z. Dostosuj preferowane ustawienia w makrze (oznaczone pogrubieniem).
- Wynikiem jest tabela z średnimi intensywnościami oraz powierzchnią wszystkich zielonych obiektów powyżej progu (i powyżej zdefiniowanego rozmiaru minimalnego) w stosie z. Aby obliczyć całkowitą intensywność zielonych pikseli w stosie, pomnóż każdą średnią intensywność przez odpowiadającą jej powierzchnię.
- Oblicz względną indukcję eGFP (eGFPrel):
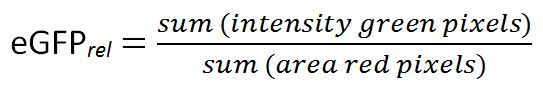 (1)
UWAGA: Ponieważ mCherry jest eksprimowane konstytutywnie, wynikowa wartość eGFPrel jest miarą względną ilości eGFP eksprimowanej przez określoną liczbę komórek. Więcej informacji na temat obliczania eGFPrel znajduje się w Tabeli 3.
6. Ilościowe oznaczenie związków chemicznych
UWAGA: Układy mikrokosmosów mogą być również wykorzystywane do ilościowego oznaczenia chemicznego ilości przemieszczonego FLU, z zastosowaniem lub bez zastosowania abiotycznego pochłaniacza zanieczyszczeń.
- Owiń fiolki szklane 15 ml, fiolki GC/MS 1 ml wraz z wkładami w folię aluminiową. Wypełnij tygle do odparowania Na2SO4; umieść wszystkie elementy w piecu muflowym na 5 hr w temperaturze 450 °C w celu usunięcia ewentualnych zanieczyszczeń. Przechowuj Na2SO4 w aktywnym eksyكاتهrze.
- Potnij szklane włókna powlekane PDMS na odcinki o długości 0,5 cm. Przemyj włókna, wstrząsając nimi przez cztery cykle po 2 hr w świeżym metanolu. Powtórz etapy płukania jeszcze cztery razy, używając wody ultrapure i przechowuj czyste włókna w wodzie ultrapure w szczelnej fiolce szklanej.
- Przygotuj 1,5 L mieszaniny toluen/aceton (3:1, v/v) zawierającej 10 µg L-1 fenantrenu-d10.
- Wykonaj kroki 1, 2 i 3 protokołu. Przygotuj mikrokosmosy bez komórek bioreportera w celu zbadania transportu FLU (SAM(-) oraz CONAIR(-)) oraz z komórkami bioreportera (SAM) w celu weryfikacji degradacji FLU.
- Opcjonalnie (bez komórek bioreportera): Za pomocą precyzyjnej pincety umieść trzy szklane włókna powlekane PDMS (zazwyczaj stosowane w eksperymentach SPME) wewnątrz MMA w próbce SAM(-) jako sztuczny i mierzalny absorbent zanieczyszczeń.
- Wyjmij włókna szklane za pomocą precyzyjnej pincety i przenieś każde z nich do fiolki GC/MS z wkładem.
- Dodaj 200 µl toluenu, wstrząsaj pionowo przez noc (O/N) i przeanalizuj za pomocą GC/MS. Użyj ustawień podanych w Tabeli 2.
- Przenieś MMA z przeciwległej wnęki do szklanej fiolki 15 ml i dodaj około trzech szpatułek Na2SO4. Wymieszaj dokładnie szpatułką i dodaj 10 ml rozpuszczalnika. Wymieszaj roztwór w wortexie i wstrząsaj poziomo przez noc (O/N) w ciemności.
- Przenieś 100 µl próbki do fiolki GC/MS z wkładem. Dodaj 10 µl acenaftylenu-d08 (10 mg L-1) i przeanalizuj za pomocą GC/MS, stosując ten sam program, który opisano w punkcie 6.4.3.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Przedstawione tutaj wyniki zostały już wcześniej opublikowane15. Szczegółową dyskusję dotyczącą mechanizmów i kwestii środowiskowych można znaleźć w treści artykułu.
Po zarejestrowaniu obrazów za pomocą CLSM można przeprowadzić projekcję maksymalnej intensywności, korzystając z odpowiedniego oprogramowania mikroskopu lub programu ImageJ, aby uzyskać pierwszy podgląd próbki oraz kontroli (Rycina 2). W dalszej kolejności zestawy danych mogą zostać rzutowane w inny spo...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Przedstawiona konfiguracja mikrokosmosu okazała się odpowiednia do badania biodostępności przestrzennie oddzielonych substancji chemicznych dla organizmów degradujących po ich pobraniu i transporcie przez grzybnię. Zapobiega to potencjalnemu transportowi w fazie gazowej związków częściowo lotnych, a komórki bakteryjne bioreportera mogą być wizualizowane bez skomplikowanego przygotowania próbek, a tym samym przy minimalnym zakłóceniu tego wrażliwego układu. Jednocześnie można łatwo przeprowadzić analizę chemiczną próbki, ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnego interesu finansowego.
Podziękowania
Finansowanie przez Niemiecką Fundację Ochrony Środowiska (DBU) jest potwierdzone. Autorzy dziękują Ute Kuhlicke za pomoc techniczną w analizie CLSM oraz Birgit Würz, Ricie Remer i Janie Reichenbach za wykwalifikowaną pomoc eksperymentalną. Autorzy pragną szczególnie podziękować prof. Janowi Roelofowi van der Meerowi i dr. Robinowi Teconowi za owocną dyskusję i dostarczenie szczepu bioreporterowego. Uczestniczy w programie badawczym "Chemikalia w środowisku" (CITE) Stowarzyszenia Helmholtza.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Mikroskop konfokalny | Leica | TCS SP5X, LAS AF - Wersja 2.6.1; lub równoważny CLSM | |
| GC HP 7890 Series GC i Agilent 5975C MSD | Agilent | można użyć odpowiednika GC/MS kolumna | |
| kapilarna GC J& W 121-5522 | Agilent | ||
| Świder korkowy | Fisher Scientific | 12863952 | lub dowolny inny |
| Szkiełka nakrywkowe | Marienfeld | 107222 | Wysokowydajne, nr 1.5H |
| GC/MS fiolki | WICOM | WIC 47080 | |
| GC/MS 2 ml | WICOM | WIC 41150 | |
| Pokrywki / septy do fiolek z nakrętką | DIONEX | 49463 / 049464 | |
| Pokrywki do fiolek GC/MS | WICOM | WIC 43948/B | |
| Szkiełka obiektywowe | Menzel | zwykłe | |
| włókna szklane powlekane PDMS | Polymicro Technologies, Inc. | V (PDMS) = 13,55 ± 0,02 &mikro; l m-1 | |
| Petri Szalki małe / duże | Greiner | 633-102 / 628-102 | |
| Fiolki z nakrętką 40 ml | DIONEX | 48783 | innych szklanych Fiolki |
| zakrętką 60 ml | DIONEX | 48784 | można stosować inne fiolki szklane |
| Acenaphthylene d08 | Dr. Ehrenstorfer | C 20510100 | |
| Aceton | Carl Roth | 9372.2 | |
| Węgiel aktywny | Sigma-Aldrich | 242276-1kg | |
| Agaroza | Carl Roth | 2267.4 | |
| Fluorene | Fluka | 46880 | |
| Siarczan kanamycyny | Carl Roth | T832.2 | 50 mg L-1 |
| Metanol | Carl Roth | P7171 | |
| Minimalny Średnie: 100 ml Roztwór 1 + 25 ml Roztwór 2 + 5 ml Roztwór 3 ad. 1,000 ml aqua dest | |||
| Roztwór 1 | |||
| Siarczan amonu | Carl Roth | 3746.1 | 5 g L-1 |
| Chlorek magnezu x 6 H2O | Carl Roth | 2189.1 | 1 g L-1 |
| Azotan wapnia x 4 H2O | Carl Roth | P740.1 | 0.5 g L-1 |
| Solution 2 | |||
| Fosforan disodowy | Carl Roth | P030.1 | 55.83 g L-1 |
| Fosforan monopotasowy | Carl Roth | 3904.1 | 20 g L-1 |
| Roztwór 3 (pH 6,0) | |||
| Disodowy EDTA | MERCK | 1084180250 | 0,8 g L-1 |
| chlorek żelaza(II) x 4 H2O | MERCK | 1038610250 | 0,3 g L-1 |
| chlorek kobaltu(II) x 6 H2O | Carl Roth | T889.3 | 4 mg L-1 |
| Chlorek manganu(II) x 1 H2O | Carl Roth | 4320.2 | 10 mg L-1 |
| Siarczan miedzi(II) | Carl Roth | P023.1 | 1 mg L-1 |
| Molibdenian sodu x 2 H2O | Carl Roth | 0274.1 | 3 mg L-1 |
| Chlorek | MERCK | 1088160250 | 2 mg L-1 |
| Chlorek litu | Carl Roth | P007.1 | 0,5 mg L-1 |
| Chlorek cyny(II) x 2 H2O | Carl Roth | 4473.1 | 0,5 mg L-1 |
| Kwas borowy | Riedel-de-Haen | 11606 | 1 mg L-1 |
| bromek potasu | Carl Roth | A137.1 | 2 mg L-1 |
| Jodek potasu | Carl Roth | 6750.1 | 2 mg L-1 |
| chlorek baru | Carl Roth | 4453.1 | 0,5 mg L-1 |
| MMA | Minimalna pożywka + agaroza 0,2% | ||
| Fenantren d10 | Dr. Ehrenstorfer | C 20920100 | |
| Agar z dekstrozą ziemniaczaną: 24 g bulionu L-1 + bakto-agar 1,5%; pH 6,8 | |||
| Rosół ziemniaczany i dekstroza | Difco/ Beckton Dickinson | 254920 | |
| Bacto-agar | Difco/ Beckton Dickinson | 214040 | |
| Octan sodu x 3 hydr. | Carl Roth | 6779.1 | |
| Siarczan sodu | MERCK | 1066495000 | |
| Toluen | MERCK | 1083252500 | |
| mTY medium: 3 g L-1 ekstrakt drożdżowy, 5 g L-1 bacto tryptone i 50 mM NaCl | |||
| Ekstrakt drożdżowy | Merck | 1037530500 | |
| Tryptone | Serva | 4864702 | |
| Chlorek sodu | Carl Roth | 3957.1 | |
| ImageJ z wtyczką | http://rsb.info.nih.gov/ij/download.html i http://downloads.openmicroscopy.org/bio-formats/4.4.10 | ||
| Pythium ultimum szczep 67-1 | Uzyskany z laboratorium dr Christopha Keela; Zakład Mikrobiologii Podstawowej, Uniwersytet w Lozannie, Szwajcaria | ||
| Burkholderia sartisoli RP037-mChe | Uzyskany z laboratorium prof. Jana Roelofa van der Meera; Wydział Mikrobiologii Podstawowej, Uniwersytet w Lozannie, Szwajcaria |
Bibliografia
- Holden, P. A., Fierer, N. Microbial processes in the vadose zone. Vadose Zone Journal. 4, 1-21 (2005).
- Whitman, W. B., Coleman, D. C., Wiebe, W. J. Prokaryotes: The unseen majority. Proceedings of the National Academy of Sciences. 95, 6578-6583 (1998).
- Kieft, T. L., et al. Microbial abundance and activities in relation to water potential in the vadose zones of arid and semiarid sites. Microbial ecology. 26, 59-78 (1993).
- Wang, G., Or, D. Aqueous films limit bacterial cell motility and colony expansion on partially saturated rough surfaces. Environ. Microbiol. 12, 1363-1373 (2010).
- Griffin, D. M. Water Potential Relations in Soil Microbiology SSSA Special Publication. Parr, J. F., Gardner, W. R., Elliott, L. F. , Soil Science Society of America. 141-151 (1981).
- Papendick, R. I., Camprell, G. S. Water Potential Relations in Soil Microbiology SSSA Special Publication. Parr, J. F., Gardner, W. R., Elliott, L. F. , Soil Science Society of America. 1-22 (1981).
- Boswell, G. P., Jacobs, H., Davidson, F. A., Gadd, G. M., Ritz, K. Functional consequences of nutrient translocation in mycelial fungi. J. Theor. Biol. 217, 459-477 (2002).
- Jennings, D. H. Translocation of solutes in fungi. Biol. Rev. Camb. Philos. Soc. 62, 215-243 (1987).
- Bais, H. P., Weir, T. L., Perry, L. G., Gilroy, S., Vivanco, J. M. The role of root exudates in rhizosphere interactions with plants and other organisms. Annu. Rev. Plant Biol. 57, 233-266 (2006).
- Furuno, S., et al. Mycelia promote active transport and spatial dispersion of polycyclic aromatic hydrocarbons. Environ. Sci. Technol. 46, 5463-5470 (2012).
- Gao, Y., Cheng, Z., Ling, W., Huang, J. Arbuscular mycorrhizal fungal hyphae contribute to the uptake of polycyclic aromatic hydrocarbons by plant roots. Bioresour. Technol. 101, 6895-6901 (2010).
- Semple, K. T., Morriss, A. W. J., Paton, G. I. Bioavailability of hydrophobic organic contaminants in soils: fundamental concepts and techniques for analysis. Eur. J. Soil. Sci. 54, 809-818 (2003).
- Tecon, R., Binggeli, O., vander Meer, J. R. Double-tagged fluorescent bacterial bioreporter for the study of polycyclic aromatic hydrocarbon diffusion and bioavailability. Environ. Microbiol. 11, 2271-2283 (2009).
- Tecon, R., Wells, M., vander Meer, J. R. A new green fluorescent protein-based bacterial biosensor for analysing phenanthrene fluxes. Environ. Microbiol. 8, 697-708 (2006).
- Schamfuss, S., et al. Impact of mycelia on the accessibility of fluorene to PAH-degrading bacteria. Environ. Sci. Technol. 47, 6908-6915 (2013).
- Smibert, R. M., Krieg, R. M., et al. Manual of methods for general bacteriology. Gerhardt, P., Murray, R. G. E., Costilow, R. N., Nester, E. W., Wood, W. A., Krieg, N. R., Phillips, G. B. 19, American Society for Microbiology. Washington, D.C. 409-443 (1981).
- Wu, C. H., Warren, H. L. Natural autofluorescence in fungi and its correlation with viability. Mycologia. 76, 1049-1058 (1984).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat. Methods. 9, 671-675 (2012).
- Pedersen, C., Sylvia, D. Ch. 8 Concepts in Mycorrhizal Research. Handbook of Vegetation Science. Mukerji, K. G. Vol. 19, Springer. Netherlands. 195-222 (1996).
- Furuno, S., et al. Fungal mycelia allow chemotactic dispersal of polycyclic aromatic hydrocarbon-degrading bacteria in water-unsaturated systems. Environ. Microbiol. 12, 1391-1398 (2010).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
