Heligmosomoides polygyrus to mysi nicień o potężnych zdolnościach immunomodulacyjnych, które są bardzo podobne do tych z bardzo rozpowszechnionej infekcji ludzkim robakiem pasożytniczym. W tym miejscu opisujemy protokół długoterminowego utrzymania cyklu życiowego H. polygyrus.
Artykuł metodologiczny
Hodowla Heligmosomoides polygyrus: immunomodulującego pasożyta nicieni i wydzielanych przez niego produktów
W tym artykule
Podsumowanie
Streszczenie
Heligmosomoides polygyrus (dawniej znany jako Nematospiroides dubius, a także określany przez niektórych jako H. bakeri) to robak żołądkowo-jelitowy, który wykorzystuje wiele mechanizmów immunomodulacyjnych do wywoływania przewlekłych infekcji u myszy i bardzo przypomina powszechne infekcje ludzkimi robakami pasożytniczymi. H. polygyrus był szeroko badany w dziedzinie regulacji immunologicznej pochodzącej od robaków pasożytniczych i stwierdzono, że silnie tłumi eksperymentalne modele alergii i autoimmunizacji (zarówno w przypadku aktywnej infekcji, jak i izolowanych wydzielanych produktów). Protokół opisany w tym artykule przedstawia zarządzanie cyklem życiowym H. polygyrus w celu konsekwentnej produkcji larw L3, odzyskiwania dorosłych pasożytów i zbierania ich produktów wydalniczo-wydzielniczych (HES).
Wprowadzenie
Heligmosomoides polygyrus to naturalny mysi robak żołądkowo-jelitowy, który jest blisko spokrewniony z bardzo rozpowszechnionymi ludzkimi pasożytami nicieni 1. W przeciwieństwie do innych modeli nicieni, takich jak Nippostrongylus brasiliensis, H. polygyrus konsekwentnie ustanawia przewlekłą infekcję u myszy jako bezpośredni wynik wielu silnych mechanizmów immunomodulacyjnych, które wykorzystuje do tłumienia odpowiedzi immunologicznej gospodarza 2.
H. polygyrus ma bezpośredni cykl życiowy: zakaźne larwy L3 są spożywane przez transmisję feko-oralną (lub podawane przez zgłębnik w warunkach laboratoryjnych), po czym migrują do warstwy podsurowiczej dwunastnicy i torbu przed powrotem do światła jelita jako dorosłe robaki około ośmiu dni po początkowym zakażeniu. Krycie i produkcja jaj następuje w 10 dniu, a od 14 dnia można zbierać dorosłe robaki w celu hodowli i pobierania produktów wydalniczych i wydzielniczych. H. polygyrus wchodzi również w interakcję z mikroflorą komensalną, ze zwiększoną obecnością pałeczek kwasu mlekowego u zakażonych podatnych myszy 4-6 i zwiększonym poziomem infekcji H. polygyrus po ekspozycji myszy na Lactobacilli 6.
Wykazano, że aktywne zakażenie H. polygyrus chroni przed immunopatologią w wielu zwierzęcych modelach autoimmunizacji 7-10, zapalenia jelita grubego 11,12 i alergii 13-16. W związku z tym istnieje duże zainteresowanie potencjałem cząsteczek wydalniczo-wydzielniczych tego pasożyta ("HES") do obniżania patologii in vivo 17,18. Rzeczywiście, efekty ochronne obserwuje się po leczeniu myszy produktami HES 19 poprzez szlaki, które są obecnie identyfikowane 18,20. W tym miejscu opisujemy protokół niezawodnej produkcji Heligmosomoides polygyrus i odzyskiwania wydzielanych przez niego produktów, które mogą być dalej wykorzystywane do szeregu funkcjonalnych badań biochemicznych i immunologicznych.
Protokół
UWAGA: Wszystkie procedury w tym protokole są wykonywane zgodnie z wytycznymi określonymi przez Ministerstwo Spraw Wewnętrznych Wielkiej Brytanii i Służby Weterynaryjne Uniwersytetu w Edynburgu.
1. Zakażenie myszy przez zgłębnik
- Larwy Heligmosomoides polygyrus L3 należy przechowywać w wodzie destylowanej przez okres do sześciu miesięcy w temperaturze 4 °C.
- Przed użyciem przemyć larwy L3 trzykrotnie w wodzie destylowanej: odwirować przy 300 x g przez 10 minut (z hamulcem), usunąć wszystko oprócz 500 μl wody (aby uniknąć zakłócenia granulowanych larw L3) i za każdym razem ponownie zawiesić osad .
- Do trzeciego prania dodaj wodę do dokładnej objętości (zwykle 40 ml) i odessaj 20 μl z naciętą końcówką o objętości 200 μl, aby poszerzyć jej otwór. Umieścić dwie próbki o objętości 20 μl na powierzchni szalki hodowlanej o średnicy 60 mm i policzyć larwy L3 (zwykle ruchome i najlepiej oglądać je pod 50-krotnym powiększeniem za pomocą mikroskopu preparacyjnego). Zawiesić końcowe osady w wodzie destylowanej do stężenia 2 000 larw L3 na ml.
- W celu produkcji cyklu życiowego należy zainfekować 8-tygodniowe myszy F1 (C57BL/6xCBA) 400 larwami H. polygyrus L3 w 200 μl wody destylowanej przez zgłębnik doustny (myszy należy przytrzymać w pozycji pionowej za kark szyi i delikatnie wprowadzić igłę przez usta i przełyk do żołądka). Przed każdym zakażeniem dokładnie wymieszać (larwy szybko osadzają się w wodzie) i odessać 200 μl do strzykawki o pojemności 1 ml; Użyj dedykowanej igły do zgłębnika z zaokrąglonym końcem. W przypadku eksperymentalnego zakażenia młodszych myszy (w wieku 6-8 tygodni) lub innych szczepów wsobnych (np. C57BL/6 lub BALBc) należy zainfekować myszy 200 larwami L3.
2. Rozmnażanie i utrzymanie H. polygyrus
- Umieść węgiel drzewny na środku dużej plastikowej wanny i pozwól, aby zimna woda z kranu spływała po niej przez co najmniej 30 minut (niemyty węgiel aktywny jest toksyczny dla larw L3). Spuść wodę z wanny i umieść węgiel drzewny na dwóch warstwach chłonnego papieru, pozostawiając go wystawionym na działanie powietrza w pomieszczeniu do całkowitego wyschnięcia.
- Jeśli potrzebne są jaja, najpierw zeskrob kał z okrężnicy za pomocą kleszczy (i nożyczek, jeśli to konieczne). Jeśli potrzebna jest duża liczba larw L3, umieść myszy na siatce drucianej i zbieraj granulki kału przez kilka dni.
- Wymieszaj kał z granulowanym węglem drzewnym w stosunku co najmniej 1:1, aby uzyskać konsystencję wystarczająco wilgotną, aby przylegała do bibuły filtracyjnej. Rozsmaruj cienką warstwę na środku zwilżonej bibuły filtracyjnej na szalce Petriego i umieść ją w wilgotnym pudełku (dodaj wilgotny ręcznik papierowy i naczynie z wodą) w ciemności na 12-14 dni.
- Począwszy od 7 dnia, należy usunąć larwy L3 i zebrać je co najmniej dwa razy przed wyrzuceniem papieru. Larwy tworzą pierścień wokół krawędzi bibuły filtracyjnej; Wyjąć bibułę filtracyjną z płytki Petriego i wypłukać larwy pozostałe z płytki (za pomocą pipety i 5 ml sterylnej wody na płytkę) do probówki o pojemności 50 ml.
- Zdjąć bibułę filtracyjną i zebrać pozostałe larwy pozostawione na płytce z wodą destylowaną do probówki o pojemności 50 ml. Odwirować roztwór ściekowy o stężeniu 300 x g przez 10 minut. Larwy należy trzykrotnie przemyć wodą destylowaną, a następnie przechowywać w temperaturze 4 °C w ilości do 50 ml wody destylowanej, aż będą potrzebne.
UWAGA: Larwy pozostają żywotne i zakaźne przez co najmniej 6 miesięcy.
3. Kolekcja dorosłych robaków H. polygyrus
- Zmodyfikowaną aparaturę Baermanna należy wcześniej przygotować, jak pokazano na rysunku 1.
- Ubój myszy czternaście dni po zakażeniu.
- Umyj brzuch 70% etanolem. Przetnij skórę na brzuchu i odciągnij do tyłu, aby odsłonić przednią ścianę brzucha. Wykonaj nacięcie w linii środkowej, aby wejść do jamy otrzewnej.
- Usuń całe jelito cienkie i grube (od bliższej dwunastnicy do dystalnej odbytnicy). Umieść na suchej szalce Petriego.
- Wyprostuj jelito na całej jego długości, wytnij okrężnicę zawierającą kał, a następnie umieść ją w osobnym naczyniu do przygotowania jajek.
- Wytnij proksymalne 20 cm jelita cienkiego, które zawiera dorosłe robaki – identyfikowane przez stosunkowo grubą ścianę dwunastnicy i często czerwony wygląd spowodowany robakami wewnątrzświetlnymi. Umieścić na szalce Petriego o średnicy 100 mm z 5 ml roztworu Hanksa, ogrzanego do temperatury 37 °C (dwie próbki na szalkę).
- Otwórz wypełnioną robakami proksymalną część jelita wzdłuż nożyczek (najlepsze są do tego nożyczki z okrągłymi końcami) i zeskrob wnętrze wyściółki jelita za pomocą dwóch szklanych szkiełek, aby usunąć robaki. Następnie wyrzuć czystą ścianę jelita.
- Wrzuć robaki do małych muślinowych woreczków, zamknij zszywki i zabezpiecz spinaczami do papieru wokół krawędzi szklanego lejka (Rysunek 1).
- Napełnij lejek roztworem Hanksa i dodaj około 4 szalki Petriego robaków do każdego lejka.
- Umieść aparaturę w inkubatorze o temperaturze 37 °C na 1-2 godziny, delikatnie mieszając w połowie, aby usunąć zanieczyszczenia z preparatu jelitowego, które mogą zasłaniać filtr muślinowy. Należy uważać, aby nie wysypać zanieczyszczeń na zewnątrz woreczka muślinowego – spowoduje to zanieczyszczenie końcowego preparatu HES. Dorosłe robaki powinny powoli migrować przez muślinową tkaninę i osiąść na dnie szklanej probówki. Ostrożnie odłącz probówkę od gumowego węża łączącego nad zlewem (uważając, aby w tym momencie nie zgubić robaków).
- Za pomocą plastikowej pipety przenieś robaki do probówki o pojemności 50 ml i przemyj sześć razy roztworem Hanksa (pozwól robakom osiąść grawitacyjnie, usuń podłoże paskiem, dodaj 40 ml roztworu Hanksa i powtórz pięć razy).
UWAGA: od tego momentu kultura robaków musi być utrzymywana w sterylności.- Przenieś do okapu z przepływem laminarnym i umyj kolejne sześć razy w sterylnym roztworze Hanksa uzupełnionym 100 U/ml penicyliny i 100 μg/ml streptomycyny, gotowym do hodowli in vitro.
- Policz dorosłe robaki, które zostały odzyskane, pobierając dwie próbki o objętości 20 μl pobrane z żółtą końcówką naciętą w celu poszerzenia jej otworu; spodziewaj się około 50% ilości zaszczepionych larw.
4. Ustawianie kultur dla HES: przygotowanie podłoża, mycie dorosłych robaków
- Namocz robaki z 3.11 w około 10 ml RPMI uzupełnionym 10% gentamycyną przez 20 minut, pozostawiając probówkę pod kątem, aby upewnić się, że robaki są całkowicie zakryte.
- Wykonaj to w okapie z przepływem laminarnym: przemyj ponownie sześć razy roztworem Hanksa (uzupełnionym 5 j./ml penicyliny i 5 μg/ml streptomycyny).
- Przygotować pożywkę dla H. polygrus.
- Zachowując sterylność w okapie z przepływem laminarnym, do 500 ml RPMI1640 dodać 11,1 ml 45% glukozy (stężenie końcowe 1,2%, ponieważ RPMI1640 zawiera 0,2% glukozy), 5 ml 100x Penicyllina-Streptomycyna (stężenie końcowe 5 U/ml penicyliny, 5 μg/ml streptomycyny), 5 ml L-glutaminy (stężenie końcowe 2 mM) i 5 ml Gentamycyny (stężenie końcowe 1%). Nie dodawaj FCS.
- Porcje robaków umieścić w wentylowanych kolbach T25, ok. 1 000 robaków w 15 ml pożywki H. polygyrus na kolbę i umieścić pionowo w inkubatorze o temperaturze 37 °C (5% CO2) na 3 tygodnie.
5. Przygotowanie HES
- Pożywki hodowlane zawierające HES należy pobierać z kultur w odstępach nie dłuższych niż dwa razy w tygodniu, odkładając na bok pierwsze pobranie po 24 godzinach hodowli (ze względu na wysoki poziom zanieczyszczenia LPS i białkami gospodarza – mogą być przetwarzane oddzielnie lub odrzucane). Każdą kolekcję należy przechowywać oddzielnie i wyraźnie oznaczyć datą i numerem partii. Za każdym razem zastępować równą objętością podłoża H. polygyrus.
- Odwirować pożywkę zawierającą HES przy 400 x g przez 5 min. Następnie przesterylizuj filtr przez filtry o niskiej zawartości białka 0,2 μm do probówek o pojemności 50 ml. Przechowywać w zamrażarce w temperaturze -20 °C, wyraźnie oznaczonej datą zbioru robaków i datą pobrania HES.
- Po 21 dniach zbierania HES z hodowli wyrzuć robaki.
- Zebrać 500-1 000 ml supernatantu HES (zwykle z zamrożonego bulionu, nie licząc pierwszego 24-godzinnego zbioru) i stężyć na filtrze 3 000 MWCO w urządzeniu do ultrafiltracji pod ciśnieniem azotu.
UWAGA: Bądź bardzo ostrożny, aby filtr nie wysechł.- Aby ustawić urządzenie filtrujące, najpierw umyj membranę 3 kDa błyszczącą stroną do dołu w 1-litrowej zlewce z wodą destylowaną przez 3 x 20 minut, mieszając. Zamontuj urządzenie do ultrafiltracji zgodnie z instrukcjami producenta z membraną filtracyjną błyszczącą stroną do góry. Umieścić w komorze w temperaturze 4 °C i przepuścić przez nią 50 ml wody destylowanej przed rozpoczęciem zagęszczania połączonego HES.
- W razie potrzeby dodać każdą probówkę HES do urządzenia filtrującego (100-140 ml dziennie), aż objętość zostanie zagęszczona do 2-5 ml.
- W celu usunięcia zanieczyszczeń z pożywki hodowlanej zawierającej HES, dodać 50 ml PBS wolnego od pirogenów do urządzenia filtrującego, a następnie zagęścić do około 2 ml. Powtórzyć ten krok dwukrotnie (łącznie 150 ml PBS). Przenieść HES do probówki o pojemności 15 ml, przefiltrować, wysterylizować (z filtrem 0,2 μm) w okapie z przepływem laminarnym i zmierzyć stężenie białka za pomocą spektrofotometru (E280 = 10) lub testu Bradforda.
- Podwielokrotność, oznaczyć etykietą z numerem partii i datą, a następnie zamrozić w temperaturze -80 °C.
- Przed użyciem należy wykonać chromogenny test LAL zgodnie z protokołami producenta na każdej partii HES. Jeśli poziomy LPS są większe niż 1 U LPS na 1 μg białka, należy rozważyć niestosowanie tej partii do eksperymentów in vivo lub hodowli in vitro.
- Przetwarzaj HES zebrany po 24 godzinach oddzielnie w ten sam sposób; będzie on zawierał LPS i niektóre białka gospodarza i, chociaż nie nadaje się do eksperymentów funkcjonalnych, jest użytecznym źródłem pojedynczych cząsteczek, które można wyizolować przez oczyszczanie powinowactwa przeciwciał monoklonalnych.
Wyniki
Podatność na zakażenie H. polygyrus jest w dużej mierze kontrolowana przez tło genetyczne szczepu myszy (Tabela 1); myszy C57BL/6 i CBA wykazują wysoką podatność 21,22. W celu utrzymania cyklu życiowego pasożyta wybrano hybrydę F1 między tymi dwoma szczepami ze względu na jej zdolność do zniesienia znacznie wyższego obciążenia nicieniami bez wystąpienia zachorowalności (nadmiernego uszkodzenia nabłonka jelitowego) w porównaniu z którymkolwiek ze szczepów rodzicielskich. Do utrzymania cyklu życiowego u myszy F1 stosuje się gavage doustny 400 larw L3 (co skutkuje obciążeniem dorosłymi nicieniami pokazanym na Rysunku 2), natomiast w eksperymentach na homozygotycznych szczepach inbredowych (np. C57BL/6 lub BALBc) zazwyczaj stosuje się dawkę 200 larw L3. Jednakże dawkę tę należy być może zmniejszyć w zależności od kofaktorów środowiskowych, które mogą się różnić między ośrodkami dla zwierząt, takich jak różnice w florze jelitowej.
Partie HES wykazały powtarzalną skuteczność w testach funkcjonalnych oraz w składzie białkowym; ponadto, po analizie supernatantów z każdego kolejnego tygodnia hodowli, aż do łącznego okresu 4 tygodni, stwierdzono, że profile białkowe są bardzo podobne (Rysunek 3). Kiedy stężenie HES jest mierzone metodą Bradforda (patrz 5.5), całkowita zawartość białka wynosi zazwyczaj około 1 mg/ml (Rysunek 4).
Alternatywną metodą zagęszczania HES jest zastosowanie koncentratora odśrodkowego (np. membrana Vivaspin z progiem odcięcia 3-kDa), w którym próbki wiruje się z prędkością do 4,000 g w wirówce z rotorem kątowym, usuwając sole buforowe i składniki o niskiej masie cząsteczkowej. Koncentracja odśrodkowa najlepiej sprawdza się przy małych objętościach przetwarzania (1-10 ml) i jest ograniczona do maksymalnego stopnia zagęszczenia wynoszącego około 30x.
Podczas pobierania HES kluczowe jest unikanie kontaminacji. Aby zapobiec zanieczyszczeniu cząsteczkami gospodarza, odrzucamy pożywki zawierające HES z pierwszych 24 h po pozyskaniu dorosłych robaków z jelit myszy. Ilość kontaminacji LPS w każdej partii HES oznaczamy za pomocą chromogenicznego testu LAL (patrz 5.7). 1 U LPS odpowiada ok. 100 pg LPS, a poziomy poniżej tej wartości uznaje się za pomijalne 23. W naszych badaniach większość partii HES znajduje się znacznie poniżej tego limitu, a średnie stężenie LPS w HES wynosiło 0,23 U/µg (Rysunek 5). Wywołanie efektów LPS w modelach patologii in vivo (na przykład supresja odpowiedzi astmatycznej) wymaga co najmniej 10 ng LPS 23. Zatem podanie in vivo 5 µg HES z partii zawierającej 100 pg LPS/µg HES dostarczy 500 pg LPS, co jest wartością znacznie poniżej stężenia efektywnego, przy którym LPS staje się problemem.
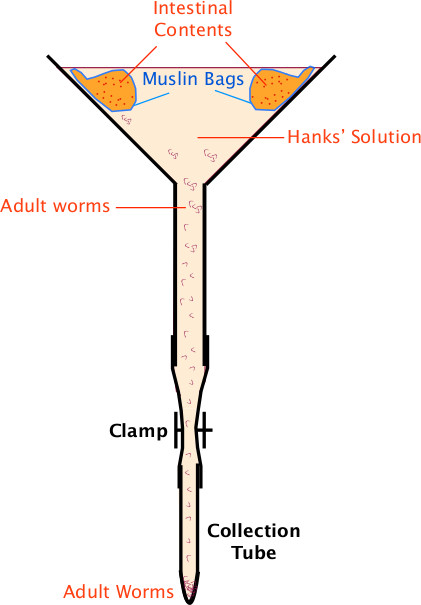
Rysunek 1: Aparatura Baermanna Konfiguracja aparatury Baermanna do zbierania dorosłych H. polygyrus (opisana w sekcji 2).
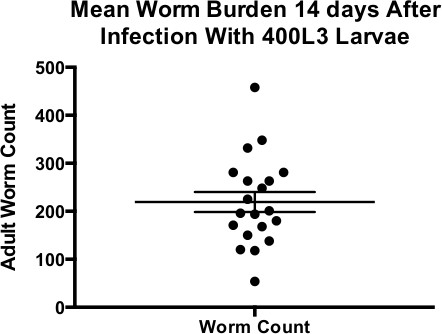
Rycina 2: Średnie obciążenie robakami 14 dni po zakażeniu 400 larwami L3 Średnie obciążenie robakami 14 dni po zakażeniu 400 larwami L3. Przedstawione punkty danych pochodzą z 19 oddzielnych serii zakażeń myszy C57BL/6xCBA. Przedstawiono średnią ± SEM.
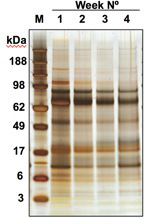
Rysunek 3: Profile białkowe HES z kolejnych tygodni hodowli Profil SDS-PAGE białek HES pobranych w kolejnych tygodniach hodowli.
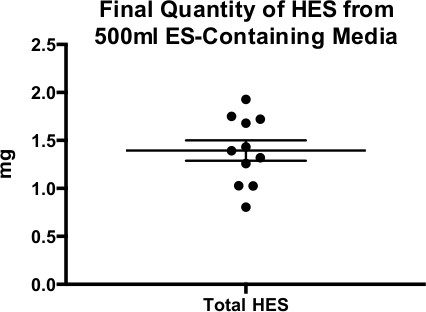
Rycina 4: Końcowa ilość HES z 500 ml pożywki zawierającej ES Wydajność białka HES z 11 różnych partii pochodzących z około 500 ml nadsączu hodowli. Przedstawiono średnią ± SEM.
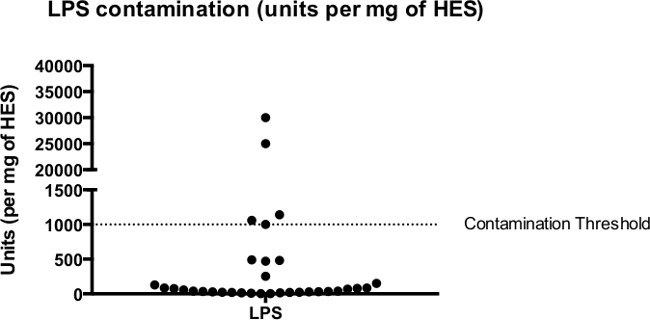
Rycina 5: Zanieczyszczenie HES LPS Poziomy zanieczyszczenia LPS w 41 partiach HES zmierzone za pomocą testu limulocytowego (LAL). Mediana stężenia LPS = 86 U na mg HES.
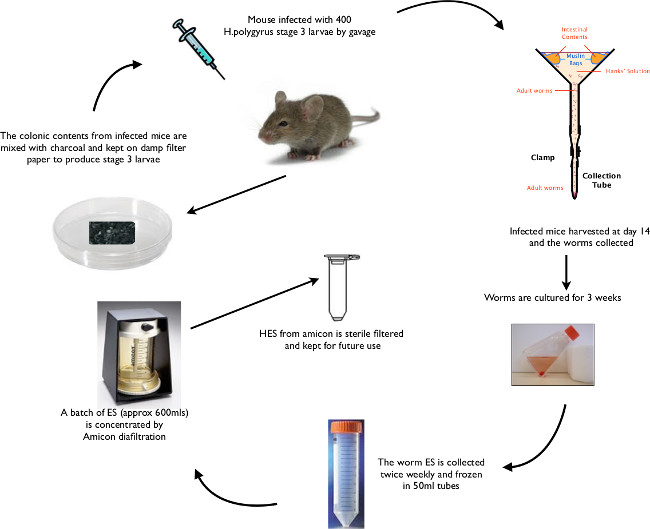
Rycina 6: Animowany schemat H. polygyrus Cykl życia Podsumowanie kluczowych etapów cyklu życiowego: od podania doustnego larw L3, przez odzyskiwanie larw i dorosłych osobników, aż po izolację HES.
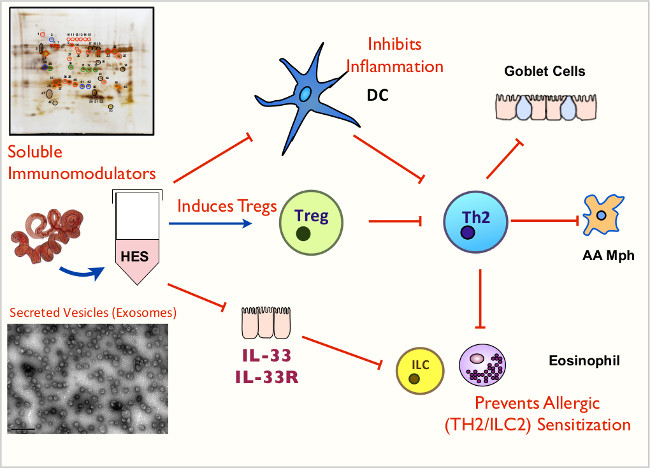
Rycina 7: Animowany schemat HES i jego funkcji Kluczowe efekty immunomodulacyjne rozpuszczalnych mediatorów i egzosomów zawartych w HES.
| Genotyp (oraz szczep tła) | Fenotyp infekcji pierwotnej | Bibliografia |
| Linie inbredowe | ||
| A/J, CBA, C3H | Wysoka podatność | 22,29 |
| C57BL/6 i C57BL/10 | Wrażliwy | 22,30 |
| BALB/c, DBA/2, 129/J | Poziom średniozaawansowany | 22,31 |
| NIH, SJL, SWR | Niska podatność | 22,32 |
| Transgeniczne dla cytokin lub receptorów cytokinowych | ||
| IL-1β-/- | Bardziej podatny | 33 |
| IL-1R-/- | Mniejsza podatność (a); brak zmian w podatności, lecz zwiększona liczba ziarniniaków (b) | (a) 33 |
| (b) 34 | ||
| Transgeniczne myszy IL-2Rβ (C57BL/6) | Oporny | 35 |
| IL-4-/- | Wyższa płodność | 36 |
| IL-4R-/- (C57BL/6 lub BALB/c) | Wysoka podatność | 22 |
| IL-6–/– (BALB/c lub C57BL/6) | Wysoka oporność | 37 |
| Transgeniczne (FVB) dla IL-9 | Oporny | 38 |
| IL-21R –/– (C57BL/6) | Niedobór Th2, zmniejszone tworzenie ziarniniaków | 39,40 |
| IL-25-/- (BALB/c) | Bardziej podatne | 33 |
| IL-33R (T1/ST2) -/- (BALB/c) | Brak zmian w podatności | 33 |
| TGFβRIIdn (C57BL/6) | Wysoki poziom Th1, zwiększona podatność | 41,42 |
| Transgeniczne dla markerów limfocytów T | ||
| CD28–/– (BALB/c) | Nieznacznie wyższa płodność | 43 |
| CD86 (B7-2)–/– (BALB/c) | Wyższa płodność | 44 |
| OX40L–/– (BALB/c) | Wyższa płodność | 45 |
| Transgeniczne loci odporności wrodzonej | ||
| myszy z nokautem receptora interferonu typu 1 (IFNAR)-/- (C57BL/6) | Wyższa płodność, więcej ziarniniaków | 34 |
| MyD88–/– (C57BL/6) | Większa oporność, więcej ziarniniaków | 34 |
| C-KitW/Wv (WBB6) | Bardziej podatny | 46,47 |
Tabela 1: Pierwotne zakażenia H. polygyrus u genetycznie zróżnicowanych oraz celowanych genowo szczepów myszy.
Dyskusja
Cykl życiowy H. polygyrus przebiega w niezawodnie spójny sposób. Po naturalnym spożyciu lub doustnym zgłębniku larw L3 w dniu 0, torbiele zaczynają tworzyć się pod błoną surowiczą dwunastnicy w 5 dniu, przechodząc w linienie larwalne, a następnie pojawiając się jako dorosłe robaki w świetle jelita od 10 dnia, jaja można zobaczyć w kale od 14 dnia, a ziarniniaki są widoczne na powierzchni surowiczości dwunastnicy od 21 dnia. Protokół opisany powyżej (i podsumowany na rycinie 6) pozwala na wysokoprzepustową produkcję produktów wydalniczo-wydzielniczych H. polygyrus (HES), a także na niezawodne odzyskiwanie żywotnych larw L3 do przyszłych infekcji eksperymentalnych i związanych z cyklem życia.
Wykazano, że zakażenie H. polygyrus działa ochronnie w modelach astmy zależnych od OVA lub Der p 1 (alergen roztoczy kurzu domowego)14. Co więcej, tłumienie zapalenia dróg oddechowych może być przenoszone za pomocą limfocytów T regulatorowych CD4 + CD25 + 14 lub limfocytów Bregulatorowych B CD19 + CD23 24 od nieuczulonych myszy zakażonych H. polygyrus. W modelach autoimmunizacji wykazano, że zakażenie H. polygyrus jest supresyjne w eksperymentalnym modelu autoimmunologicznego zapalenia mózgu i rdzenia kręgowego (EAE) stwardnienia rozsianego 9, a supresja może być przenoszona za pomocą limfocytów T CD4 + lub limfocytów B CD19 + od zakażonych myszy 24.
Produkty wydalniczo-wydzielnicze Heligmosomoides polygyrus (HES) modulują odpowiedź immunologiczną gospodarza i hamują stan zapalny za pośrednictwem Th2 za pomocą wielu mechanizmów (opisanych na rycinie 7), w tym: a) hamowania odpowiedzi komórek dendrytycznych na stymulację 25, b) indukcji limfocytów T regulatorowych CD4 + Foxp3 + 18 . oraz c) blokada produkcji Ił-33 20. Wykazano, że HES jest ochronny, gdy jest podawany w momencie uczulenia lub prowokacji w modelu OVA-ałun astmy 19, a także gdy jest podawany donosowo z alergenem ekstraktu Alternaria 20, poprzez hamowanie wczesnego uwalniania IL-33. Unikanie zanieczyszczenia HES LPS jest często kluczowe dla powodzenia przyszłych eksperymentów immunologicznych. W przedstawionym tutaj protokole kluczowymi krokami w osiągnięciu tego celu są zapewnienie, że zanieczyszczenia znajdujące się w muślinowych workach aparatu Baermanna nie dostaną się do końcowego preparatu HES (patrz 2.10) oraz odłożenie roztworu ES z pierwszych 24 godzin hodowli (patrz 5.1).
W ostatnich latach HES został dokładnie scharakteryzowany na poziomie proteomicznym z ponad 370 odrębnymi zidentyfikowanymi białkami 26,27. Ponadto ES z larw 4. stadium poddano analizie proteomicznej 28. Trwające prace obejmują scharakteryzowanie głównych składników glikanowych HES, o których wiadomo, że są silnie immunogenne 3, oraz wydzielanych mikro-RNA, które są zamknięte w pęcherzykach lub egzosomach o długości 50-100 nm (Buck i wsp., przedłożone do publikacji). Dzięki ustanowieniu powtarzalnych protokołów pobierania ES z tego wysoce immunomodulującego pasożyta oraz przy obszernych danych proteomicznych identyfikujących składniki molekularne HES, przygotowano grunt pod identyfikację i testowanie terapeutyczne pojedynczych cząsteczek H. polygyrus , które mogą pośredniczyć w kluczowych skutkach dla układu odpornościowego gospodarza.
Oświadczenia
Autorzy nie pozostają w konflikcie interesów.
Podziękowania
Autorzy są finansowani przez Wellcome Trust poprzez Edinburgh Clinical Academic Track (C.J.C.J.) i Programme Grant (Y.H., and R.M.M.) oraz fundusze Fellowship (J.R.G.), BBSRC (G.C.), American Asthma Foundation (E.R., H.J.McS. i R.M.M.), Asthma UK (H.J.M.) oraz Rainin Foundation (D.J.S. i R.M.M.).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Koncentrator Amicon | Millipore | 5112 | Model 8050 50 ml http://www.emdmillipore.com/INTL/en/product/Stirred-Cell-Model-8050,-50%C2%A0mL,MM _NF-5122 |
| Buforowany roztwór soli Hanksa | Sigma | H9394 | 500 ml http://www.sigmaaldrich.com/catalog/product/sigma/h9394?lang=en®ion=GB |
| Penicylina streptomycyna | Invitrogen | 15070-063 | 100 ml http://www.lifetechnologies.com/order/catalog/product/15070063 |
| L-glutamina | Invitrogen | 25030-081 | 200 MM 100ml https://www.lifetechnologies.com/order/catalog/product/25030081?ICID=search-25030081 |
| Węgiel aktywny | Merck | 1.09624.0500 | 18-35 mesh http://www.merckmillipore.com/GB/en/product/Charcoal-activated,MDA_CHEM-109624 |
| Roztwór glukozy | Sigma | G8769 | 100 ml 45% roztwór http://www.sigmaaldrich.com/catalog/product/sigma/g8769?lang=en®ion=GB |
| Probówki Falcon | Sarstedt | 62.547.254 | 50 ml http://www.scribd.com/doc/124320105/Sarstedt-Falcon |
| Kolby T25 | Sigma | CLS430639 | Kolba wentylowana 25cm http://www.sigmaaldrich.com/catalog/product/sigma/cls430639?lang=en®ion=GB |
| Chromogenny test LAL | Lonza | 50-647U | QCL-1000 test http://www.lonza.com/products-services/pharma-biotech/endotoxin-detection/endotoxin-detection-assays/endpoint-chromogenic-lal-assay.aspx |
| Gentamycyna | Gibco | 15710-049 | 100 ml http://www.lifetechnologies.com/order/catalog/product/15710072 |
| Roswell Park Memorial Institute (RPMI) 1640 | Gibco | 11875093 | 500 ml; bez L-glutaminy http://www.lifetechnologies.com/order/catalog/product/11875093 |
Bibliografia
- Monroy, F. G., Enriquez, F. J. Heligmosomoides polygyrus : a model for chronic gastrointestinal helminthiasis. Parasitol. Today. 8, 49-54 (1992).
- Maizels, R. M., et al. Immune modulation and modulators in Heligmosomoides polygyrus infection. Exp. Parasitol. 132, 76-89 (2012).
- Hewitson, J. P., et al. Heligmosomoides polygyrus elicits a dominant nonprotective antibody response directed at restricted glycan and peptide epitopes. J Immunol. 187, 4764-4777 (2011).
- Walk, S. T., Blum, A. M., Ewing, S. A., Weinstock, J. V., Young, V. B. Alteration of the murine gut microbiota during infection with the parasitic helminth Heligmosomoides polygyrus. Inflamm Bowel Dis. 16, 1841-1849 (2010).
- Rausch, S., et al. Small intestinal nematode infection of mice Is associated with increased enterobacterial loads alongside the intestinal tract. PLoS ONE. 8, e74026(2013).
- Reynolds, L. A., et al. Commensal-pathogen interactions in the intestinal tract: Lactobacilli promote infection with, and are promoted by, helminth parasites. Gut Microbes. 5, 10-19 (2014).
- Saunders, K. A., Raine, T., Cooke, A., Lawrence, C. E. Inhibition of autoimmune type 1 diabetes by gastrointestinal helminth infection. Infect Immun. 75, 397-407 (2007).
- Liu, Q., et al. Helminth infection can reduce insulitis and type 1 diabetes through CD25- and IL-10-independent mechanisms. Infect Immun. 77, 5347-5358 (2009).
- Donskow-Łysoniewska, K., Krawczak, K., Doligalska, M. Heligmosomoides polygyrus: EAE remission is correlated with different systemic cytokine profiles provoked by L4 and adult nematodes. Exp Parasitol. 132, 243-248 (2012).
- Mishra, P. K., Patel, N., Wu, W., Bleich, D., Gause, W. C. Prevention of type 1 diabetes through infection with an intestinal nematode parasite requires IL-10 in the absence of a Th2-type response. Mucosal Immunol. 6, 297-308 (2013).
- Sutton, T. L., et al. Anti-Inflammatory mechanisms of enteric Heligmosomoides polygyrus infection against trinitrobenzene sulfonic acid-induced colitis in a murine model. Infect Immun. 76, 4772-4782 (2008).
- Hang, L., et al. Heligmosomoides polygyrus bakeri infection activates colonic Foxp3+ T cells enhancing their capacity to prevent colitis. J Immunol. 191, 1927-1934 (2013).
- Bashir, M. E., Andersen, P., Fuss, I. J., Shi, H. N., Nagler-Anderson, C. An enteric helminth infection protects against an allergic response to dietary antigen. J Immunol. 169, 3284-3292 (2002).
- Wilson, M. S., et al. Suppression of allergic airway inflammation by helminth-induced regulatory T cells. J. Exp. Med. 202, 1199-1212 (2005).
- Kitagaki, K., et al. Intestinal helminths protect in a murine model of asthma. J Immunol. 177, 1628-1635 (2006).
- Hartmann, S., et al. Gastrointestinal nematode infection interferes with experimental allergic airway inflammation but not atopic dermatitis. Clin Exp Allergy. 39, 1585-1596 (2009).
- Pritchard, D. I., Lawrence, C. E., Appleby, P., Gibb, I. A., Glover, K. Immunosuppressive proteins secreted by the gastrointestinal nematode parasite Heligmosomoides polygyrus. Int. J. Parasitol. 24, 495-500 (1994).
- Grainger, J. R., et al. Helminth secretions induce de novo T cell Foxp3 expression and regulatory function through the TGF-β pathway. J Exp Med. 207, 2331-2341 (2010).
- McSorley, H. J., et al. Suppression of type 2 immunity and allergic airway inflammation by secreted products of the helminth Heligmosomoides polygyrus. Eur. J. Immunol. 42, 2667-2682 (2012).
- McSorley, H. J., Blair, N. F., Smith, K. A., McKenzie, A. N. J., Maizels, R. M. Blockade of IL-33 release and suppression of type 2 innate lymphoid cell responses by helminth secreted products in airway allergy. Mucosal Immunol. 7, 1068-1078 (2014).
- Behnke, J. M., Menge, D. M., Noyes, H. Heligmosomoides bakeri: a model for exploring the biology and genetics of restance to chronic gastrointestinal nematode infections. Parasitology. 136, 1565-1580 (2009).
- Filbey, K. J., et al. Innate and adaptive type 2 immune cell responses in genetically controlled resistance to intestinal helminth infection. Immunology and Cell Biology. 92, 436-448 (2014).
- Bortolatto, J., et al. Toll-like receptor 4 agonists adsorbed to aluminium hydroxide adjuvant attenuate ovalbumin-specific allergic airway disease: role of MyD88 adaptor molecule and interleukin-12/interferon-gamma axis. Clin Exp Allergy. 38, 1668-1679 (2008).
- Wilson, M. S., et al. Helminth-induced CD19+CD23hi B cells modulate experimental allergic and autoimmune inflammation. Eur J Immunol. 40, 1682-1696 (2010).
- Segura, M., Su, Z., Piccirillo, C., Stevenson, M. M. Impairment of dendritic cell function by excretory-secretory products: A potential mechanism for nematode-induced immunosuppression. Eur J Immunol. 37, 1887-1904 (2007).
- Hewitson, J. P., et al. Proteomic analysis of secretory products from the model gastrointestinal nematode Heligmosomoides polygyrus reveals dominance of Venom Allergen-Like (VAL) proteins. J Proteomics. 74, 1573-1594 (2011).
- Moreno, Y., et al. Proteomic analysis of excretory-secretory products of Heligmosomoides polygyrus assessed with next-generation sequencing transcriptomic information. PLoS Negl Trop Dis. 5, e1370(2011).
- Hewitson, J. P., et al. Secretion of protective antigens by tissue-stage nematode larvae revealed by proteomic analysis and vaccination-induced sterile immunity. PLOS Pathogens. 9, e1003492(2013).
- Prowse, S. J., Mitchell, G. F. On the choice of mice for dissection of strain variations in the development of resistance to infection with Nematospiroides dubius. Austral J Exp Biol Med. 58, 603-605 (1980).
- Behnke, J. M., Robinson, M. Genetic control of immunity to Nematospiroides dubius: a 9-day anthelmintic abbreviated immunizing regime which separates weak and strong responder strains of mice. Parasite Immunol. 7, 235-253 (1985).
- Zhong, S., Dobson, C. Heligmosomoides polygyrus: resistance in inbred, outbred, and selected mice. Exp. Parasitol. 82, 122-131 (1996).
- Behnke, J. M., et al. Genetic variation in resistance to repeated infections with Heligmosomoides polygyrus bakeri, in inbred mouse strains selected for the mouse genome project. Parasite Immunol. 28, 85-94 (2006).
- Zaiss, M. M., et al. IL-1β suppresses innate IL-25 and IL-33 production and maintains helminth chronicity. PLoS Pathog. 9, e1003531(2013).
- Reynolds, L. A., et al. MyD88 signaling inhibits protective immunity to the gastrointestinal helminth parasite Heligmosomoides polygyrus. J Immunol. , (2014).
- Morimoto, M., Utsumiya, K. Enhanced protection against Heligmosomoides polygyrus in IL-2 receptor β-chain overexpressed transgenic mice with intestinal mastocytosis. J Vet Med Sci. 73, 849-851 (2011).
- Urban, J. F., Katona, I. M., Paul, W. E., Finkelman, F. D. Interleukin 4 is important in protective immunity to a gastrointestinal nematode infection in mice. Proc. Natl. Acad. Sci. USA. 88, 5513-5517 (1991).
- Smith, K. A., Maizels, R. M. IL-6 controls susceptibility to helminth infection by impeding Th2 responsiveness and altering the Treg phenotype in vivo. Eur J Immunol. 44, 150-161 (2014).
- Hayes, K. S., Bancroft, A. J., Grencis, R. K. Immune-mediated regulation of chronic intestinal nematode infection. Immunol Rev. 201, 75-88 (2004).
- Fröhlich, A., et al. IL-21 receptor signaling is integral to the development of Th2 effector responses in vivo. Blood. 109, 2023-2031 (2007).
- King, I. L., Mohrs, K., Mohrs, M. A nonredundant role for IL-21 receptor signaling in plasma cell differentiation and protective type 2 immunity against gastrointestinal helminth infection. J Immunol. 185, 6138-6145 (2010).
- Ince, M. N., et al. Role of T cell TGF-β signaling in intestinal cytokine responses and helminthic immune modulation. Eur J Immunol. 39, 1870-1878 (2009).
- Reynolds, L. A., Maizels, R. M. Cutting Edge: In the absence of TGF-β signaling in T cells, fewer CD103+ regulatory T cells develop, but exuberant IFN-γ production renders mice more susceptible to helminth infection. J Immunol. 189, 1113-1117 (2012).
- Ekkens, M. J., et al. Memory Th2 effector cells can develop in the absence of B7-1/B7-2, CD28 interactions, and effector Th cells after priming with an intestinal nematode parasite. J Immunol. 168, 6344-6351 (2002).
- Greenwald, R. J., et al. B7-2 is required for the progression but not the initiation of the type 2 immune response to a gastrointestinal nematode parasite. J. Immunol. 162, 4133-4139 (1999).
- Ekkens, M. J., et al. The role of OX40 ligand interactions in the development of the Th2 response to the gastrointestinal nematode parasite Heligmosomoides polygyrus. J. Immunol. 170, 384-393 (2003).
- Hashimoto, K., et al. Immunity-mediated regulation of fecundity in the nematode Heligmosomoides polygyrus--the potential role of mast cells. Parasitology. 137, 881-887 (2010).
- Hepworth, M. R., et al. Mast cells orchestrate type 2 immunity to helminths through regulation of tissue-derived cytokines. Proc Natl Acad Sci U S A. 109, 6644-6649 (2012).
Przedruki i uprawnienia
