Oogeneza Drosophila nadal jest wyjątkowo przydatna w badaniach nad proliferacją i dziedziczeniem mitochondriów. Manuskrypt ten opisuje szczegółowy protokół używany do oznaczania replikującego się mitochondrialnego DNA (mtDNA) w dorosłych jajnikach Drosophila za pomocą 5-etynylo-2'-deoksyurydyny (EdU), co ułatwia odkrycie mechanizmów związanych z dziedziczeniem mitochondriów, które wcześniej były dyskusyjne.
Artykuł metodologiczny
In Situ Znakowanie replikacji mitochondrialnego DNA w dorosłych jajnikach Drosophila za pomocą barwienia EdU
W tym artykule
Podsumowanie
Streszczenie
Genom mitochondrialny jest dziedziczony wyłącznie przez linię matczyną. Zrozumienie, w jaki sposób mitochondrium i jego genom są proliferowane i przekazywane z pokolenia na pokolenie przez żeński oocyt, ma fundamentalne znaczenie. Ze względu na wykonalność genetyczną i elegancką, uporządkowaną prostotę, z jaką przebiega rozwój oocytów, oogeneza Drosophila stała się nieocenionym systemem do badań mitochondrialnych. Metodę znakowania EdU (5-etynylo-2'-deoksyurydyny) wykorzystano do wykrycia replikacji mitochondrialnego DNA (mtDNA) w jajnikach Drosophila. Metoda ta jest lepsza od metody znakowania BrdU (5-bromo-2'-deoksyurydyny), ponieważ pozwala na dobrą konserwację strukturalną i skuteczną penetrację barwnika fluorescencyjnego w tkankach pełnomocowanych.
Tutaj opisujemy szczegółowy protokół oznaczania replikującego mitochondrialnego DNA w dorosłych jajnikach Drosophila za pomocą EdU. Niektóre rozwiązania techniczne są oferowane w celu poprawy żywotności jajników, utrzymania ich zdrowia podczas preparacji i zapewnienia wysokiej jakości obrazowania. Wizualizacja nowo zsyntetyzowanego mtDNA w jajnikach nie tylko ujawnia uderzający czasowy i przestrzenny wzorzec replikacji mtDNA poprzez oogenezę, ale także pozwala na proste ilościowe określenie replikacji mtDNA w różnych perturbacjach genetycznych i farmakologicznych.
Wprowadzenie
Oprócz genomu jądrowego, każda komórka eukariotyczna zawiera również tysiące kopii małego kolistego DNA w macierzy mitochondrialnej. Podczas gdy mitochondrialne DNA (mtDNA) koduje niezbędne podjednostki łańcucha transportu elektronów, większość proteomu mitochondrialnego, w tym wszystkie czynniki replikacji i transkrypcji mtDNA, jest kodowana przez genom jądrowy. W przeciwieństwie do genomu jądrowego, który podlega mendlowskim prawom dziedziczenia, zwierzęcy genom mitochondrialny jest dziedziczony wyłącznie przez linię matczyną. Dlatego zrozumienie, w jaki sposób mtDNA jest proliferowane i przekazywane z pokolenia na pokolenie przez żeński oocyt, ma fundamentalne znaczenie. Trwa jednak debata na temat tego, w jaki sposób replikacja mtDNA jest regulowana w żeńskiej linii zarodkowej. Ponadto powszechnie akceptowana teoria wąskiego gardła mtDNA dla transmisji mtDNA sugeruje, że populacja mtDNA w pierwotnych komórkach rozrodczych jest podpróbkowana do stosunkowo niewielkiej liczby podczas rozwoju 12. Oznacza to również, że replikacja mtDNA jest regulowana czasowo i przestrzennie podczas oogenezy. W związku z tym wykrycie replikacji mtDNA in situ podczas rozwoju linii zarodkowej ułatwi zrozumienie mechanizmu dziedziczenia mtDNA.
Oogeneza Drosophila dostarcza genetycznie elastycznego systemu do badania replikacji i transmisji mtDNA. W każdym z dwóch jajników Drosophila znajduje się 16-20 niezależnych ciągów komór jajowych zwanych jajnikami 3, które są funkcjonalnymi jednostkami produkcji jaj (patrz ryc. 1A). Każdy jajnik zawiera postępującą liniową organizację oogenezy, w której przedni wierzchołek składa się ze struktury zwanej germarium. Germarium jest dalej podzielone na cztery regiony, które zawierają komórki rozrodcze na różnych etapach rozwoju. W regionie 1 komórki macierzyste linii rozrodczej przechodzą asymetryczny podział w celu wytworzenia komórek potomnych zwanych cystoblastami. Region 2a zawiera cystoblasty, które zakończyły swój ostateczny podział. Cystoblasty przechodzą cztery rundy podziału, w wyniku których powstają grupy 16-komórkowe. 16 komórek pozostaje połączonych ze sobą mostkami cytoplazmatycznymi zwanymi kanałami pierścieniowymi. Tylko jedna z komórek zobowiązuje się do różnicowania jako oocyt, podczas gdy pozostałe 15 rozwija się jako poliploidalne komórki pielęgniarskie. Proponuje się, aby niezbędna struktura cytoplazmatyczna, znana jako dymos, ułatwiała tworzenie kanałów pierścieniowych, określała polarność torbieli i interakcje komórka pielęgniarka-oocyt 4,5. Gdy torbiele przesuwają się w kierunku regionu 2b, struktury torbieli rozciągają się na całej szerokości zarodka i stają się bardziej związane z komórkami pęcherzykowymi. Struktury germarium kończą się regionem 3 zawierającym pierwszą komorę pączkującą jaja. Następnie komory jajowe są montowane na tylnym końcu germarium, które przechodzą przez jajnik w 14 morfologicznie odrębnych stadiach. Wzrost oocytu zależy od komórek pielęgniarskich, które transportują białka, mRNA i struktury endobłonowe (np. Golgiego) przez kanały pierścieniowe do oocytu. Podczas oogenezy Drosophila stwierdzono, że część mitochondriów w każdej 16-komórkowej torbieli była związana z dymem, przemieszczała się przez kanały pierścieniowe i była dostarczana do pojedynczego oocytu w dużej masie zwanej ciałem Balbiani 6. Zaproponowano, aby zjawisko to przyczyniło się do kontroli jakości dziedziczenia mitochondriów przez żeńskie jajniki.
Wykrywanie syntezy mtDNA polega na włączeniu znakowanych prekursorów DNA do DNA komórkowego. Tradycyjnie, analog nukleozydu 5-bromo-2'-deoksyurydyny tymidyny (BrdU) stosowano do znakowania replikacji mtDNA w komórkach hodowli tkankowej 7,8. Jednak znakowanie BrdU oparte na przeciwciałach ma kilka ograniczeń, szczególnie w przypadku barwienia tkanek w całości. Jedną z głównych wad znakowania BrdU jest to, że wymaga denaturacji DNA w celu odsłonięcia epitopu BrdU, tak aby mógł on zostać wykryty przez przeciwciało anty-BrdU. Próbka musi zostać poddana obróbce w trudnych warunkach denaturacji, takich jak chemikalia (np. kwas solny lub mieszaniny metanolu i kwasu octowego), ciepło lub mineralizacja za pomocą DNazy, które mogą zakłócić strukturę próbki i skomplikować następującą procedurę barwienia 9,10.
Tutaj alternatywny analog tymidyny 5-etynylo-2'-deoksyurydyna (EdU) jest używany do oznaczania replikującego się mitochondrialnego DNA w jajnikach dorosłych Drosophila. Ta metoda jest szybsza i bardzo czuła. EdU jest łatwo włączany do DNA komórkowego podczas replikacji DNA. Następujące wykrywanie opiera się na reakcji "kliknięcia", katalizowanej Cu (I) reakcji kowalencyjnej między końcową grupą alkinową a fluorescencyjnym azydkiem 10. Ponieważ reakcja nie wymaga denaturacji próbki, pozwala na dobrą konserwację strukturalną. Co więcej, wielkość azydku barwnika wynosi zaledwie 1/500 wielkości cząsteczki przeciwciała 10, co umożliwia szybką i skuteczną penetrację całych tkanek. Użyliśmy tej metody do wykrycia replikacji mtDNA podczas oogenezy Drosophila i znaleźliśmy uderzający wzór przestrzenny w regionie germarium jajnika Drosophila 11, co skłoniło nas do zaproponowania zależnego od replikacji mechanizmu selektywnego dziedziczenia mtDNA. Przedstawiamy tutaj szczegółowy protokół znakowania EdU replikacji mtDNA w jajnikach Drosophila. Aby zademonstrować zastosowanie protokołu, przetestowaliśmy również replikację mtDNA w mutancie mtDNA Drosophila (mt:CoIT300I) 11, a także z różnorodnym traktowaniem rozprzęgaczy mitochondriów, które rozpraszają potencjał błony mitochondrialnej i potencjalnie zakłócają replikację mtDNA.
Protokół
1. Pobieranie i sekcja tkanek
- W każdej fiolce zawierającej suche drożdże hoduje się 10 dorosłych samic much z 10 samcami przez 2-3 dni.
Uwaga: Utrzymanie dobrze odżywionych samic much poprawi ogólną jakość i wydajność produkcji jajników oraz ułatwi preparację. - Znieczulij samice much na podkładce dla much z dwutlenkiem węgla (CO2 ).
- Pod stereoskopem umieść kilka kropli pożywki RT (pożywka Schneidera Drosophila uzupełniona 10% płodową surowicą bydlęcą (FBS)) na podkładce preparcyjnej. Przeprowadź wszystkie procedury preparacyjne w pożywce, aby utrzymać tkanki przy życiu i w zdrowiu.
- Chwyć utuczoną samicę muchy ostrymi kleszczami z cienkim nosem w dolnej części klatki piersiowej. Użyj innego zestawu kleszczy, aby delikatnie pociągnąć za skrajną tylną część muchy, aż tkanki w jamie brzusznej zostaną odsłonięte. Odłącz dwa jajniki od innych tkanek (np. jelit).
Uwaga: Każdy jajnik ma nieprzezroczystą strukturę, która składa się z 16-20 przyczepionych jajników. - Aby zwiększyć penetrację odczynników, otwórz jajniki, rozsuwając je i kilkakrotnie przesuwając końcówki kleszczy między każdym jajnikiem. Utrzymuj jajniki połączone w jajniku, aby zminimalizować utratę tkanek podczas kolejnych zabiegów.
- Natychmiast przenieś jajniki do probówki mikrowirówkowej o pojemności 1,5 ml zawierającej 500 μl pożywki Drosophila firmy Schneider z 10% FBS.
- Powtórz sekcję i zbierz 10-15 jajników do każdej probówki mikrowirówkowej.
2. Etykietowanie EdU
- Odessać pożywkę w każdej probówce i zastąpić 500 μl pożywki Schneider's Drosophila z 10% FBS zawierającą 7 μM afidikoliny.
Uwaga: Afidikolina służy do blokowania syntezy jądrowego DNA poprzez hamowanie polimerazy DNA α bez wpływu na replikację mtDNA 7,12. Możliwe jest zwiększenie stężenia afidikoliny do 70 μM w celu uzyskania lepszego hamowania. Roztwór podstawowy 3-30 mM afidikoliny w DMSO może być przechowywany w ciemności w temperaturze -20 °C przez okres do 6 tygodni. - Aby jajniki były zdrowe, upewnij się, że są zanurzone w roztworach podczas zmiany pożywki. Użyj pożywki Drosophila firmy Schneider z 10% FBS w kroku 2.6.
- Inkubuj jajniki przez 3 godziny w temperaturze pokojowej na stołowym bujaku z delikatnym obracaniem.
- W przypadku leczenia farmakologicznego, np. 4-trifluorometoksyfenylohydrazonu (FCCP) cyjanku karbonylu (FCCP) do rozprzęgania mitochondrialnego, należy dodać odpowiednie stężenie leku (np. 10 μM FCCP) do pożywki po 2 godzinach leczenia afidikoliną. Kontynuuj inkubację przez kolejną 1 godzinę.
- Usunąć pożywkę zawierającą afidikolinę z lekiem lub bez. Krótko przepłukać jajniki pożywką (afidikolina nie jest konieczna) dwa razy.
- Dodać 1 ml pożywki zawierającej 10 μM EdU i 7 μM afidikoliny i kontynuować inkubację w temperaturze pokojowej przez 2 godziny. Przechowywać roztwór podstawowy 10 mM EdU (w DMSO) w temperaturze -20 °C.
- Usunąć pożywkę zawierającą EdU i afidikolinę. Umyć pożywką (bez afidikoliny) dwa razy po 3 minuty.
3. Utrwalanie i przepuszczalność tkanek
- Przygotować 4% roztwór paraformaldehydu w roztworze soli fizjologicznej buforowanej fosforanem (PBS, pH 7,4).
Uwaga: Użyliśmy dostępnego na rynku paraformaldehydu przechowywanego w ampułkach z nacięciem. Otwórz nową ampułkę i rozcieńcz do 4% przed użyciem.
UWAGA: Formaldehyd jest toksyczny; Należy obchodzić się z nim pod wyciągiem z ochroną skóry i oczu. - Utrwal jajniki 4% paraformaldehydem przez 20 minut w temperaturze pokojowej z delikatnym obracaniem.
- Usunąć utrwalacz i przemyć jajniki dwukrotnie w 1 ml 3% BSA w PBS przez 5 minut za każdym razem.
- Aby przepuszczalność tkanek, usuń roztwór myjący i dodaj 1 ml 0,5% Triton X-100 w PBS. Inkubować w temperaturze pokojowej przez 20 minut.
- Usunąć roztwór permeabilizacyjny i przemyć dwukrotnie w 1 ml 3% BSA w PBS.
4. Wykrywanie EdU
Uwaga: Wykrywanie EdU opiera się na chemii "klik", katalizowanej przez Cu(I) [3+2] cykloaddycji 13, która dodaje fluorescencyjne azydki do końcowej grupy alkinowej EdU, a cząsteczka fluorescencyjna jest poddawana późniejszej detekcji. Ponieważ Cu(I), który łatwo utlenia się do niekatalitycznych form Cu(II), jest wymagany do katalizowania reakcji, zaleca się redukcję siarczanu Cu(II) in situ w celu otrzymania Cu(I). Oznacza to, że siarczan Cu(II) jest stosowany w obecności reduktora, takiego jak kwas askorbinowy (zwany dalej "dodatkiem buforowym") do wytwarzania miedzi (I).
- Przed eksperymentem należy przygotować roztwór roboczy azydku Alexa Fluor (azydek Alexa Fluor 488, azydek Alexa Fluor 555 lub inne, w zależności od preferowanego fluoroforu, które są dalej nazywane "azydkiem barwnika"), buforu reakcyjnego EdU i dodatku buforowego EdU zgodnie z instrukcjami producenta.
- Rozpuść barwnik azydkowy w 70 μl DMSO. Roztwór roboczy należy przechowywać w temperaturze -20 °C przez okres do 1 roku.
- Przygotować świeży bufor reakcyjny EdU, rozcieńczając 10-krotny bufor reakcyjny EdU wodą dejonizowaną.
Uwaga: Po użyciu przechowywać pozostały 1x roztwór w temperaturze 4 °C. Roztwór 1x jest stabilny do 6 miesięcy. - Przygotować 10-krotny roztwór podstawowy dodatku buforowego EdU, całkowicie rozpuszczając proszek w 2 ml wody dejonizowanej.
Uwaga: Ten roztwór podstawowy jest stabilny przez okres do 1 roku w temperaturze -20 °C. Jeśli roztwór zmieni kolor na brązowy, uległ degradacji i należy go wyrzucić.
- Koktajl reakcyjny EdU należy za każdym razem przygotować na świeżo i zużyć w ciągu 15 minut od przygotowania. Aby uzyskać powtarzalne wyniki, należy upewnić się, że składniki reakcji są utrzymywane w tych samych proporcjach.
- Przygotuj świeży roztwór 1x dodatku buforowego EdU, rozcieńczając 10x roztwór podstawowy (przygotowany w kroku 4.1.3) 1:10 w wodzie dejonizowanej. Użyj tego roztworu tego samego dnia.
- Przygotuj 1 ml koktajlu reakcyjnego EdU, łącząc następujące składniki w kolejności: 860 μl 1x bufor reakcyjny EdU, 40 μl CuSO4, 2,5 μl azydku barwnika, 100 μl 1x dodatek buforowy EdU.
Uwaga: Ważne jest, aby składniki zostały dodane w celu zapewnienia optymalnej wydajności.
- Usunąć PBS z 3% BSA i dodać 0,5 ml koktajlu reakcyjnego EdU do każdej probówki. Inkubować w temperaturze pokojowej przez 30 minut z delikatnym obracaniem. Próbki należy chronić przed światłem.
- Usunąć koktajl reakcyjny EdU i przemyć raz 1 ml 3% BSA w PBS.
- Próbki należy przemyć raz 1 ml PBS.
5. Oznaczanie przeciwciał
Uwaga: Wykonaj znakowanie przeciwciał po barwieniu EdU. Jeśli nie jest wymagane dodatkowe barwienie, można przejść bezpośrednio do montażu i obrazowania. Ważne jest, aby próbki były chronione przed światłem we wszystkich poniższych procedurach.
- Usuń roztwór myjący. Zablokować jajniki w 1 ml roztworu blokującego zawierającego 0,2% BSA i 0,1% Triton X-100 w PBS na 30 minut.
- Usunąć roztwór blokujący i zastąpić go pierwszorzędowym przeciwciałem rozcieńczonym w roztworze blokującym (np. mysia podjednostka syntazy ATP α przeciwciało, rozcieńczenie 1:1,000). Inkubować w ciemności w temperaturze 4 °C O/N.
- Przemyć próbki 1 ml roztworu blokującego 3 razy, za każdym razem po 10 minut. Aby zminimalizować tło, umyj je jeszcze dwa razy po 30 minut. Usuń roztwór blokujący.
- Inkubować z przeciwciałem drugorzędowym rozcieńczonym w roztworze blokującym (np. kozie przeciwciało drugorzędowe przeciwko myszom Alexa Fluor 568, rozcieńczenie 1:200) przez 2 godziny w RT.
Uwaga: Użyj innego koloru niż ten sprzężony z EdU. - Powtórz kroki prania wykonane w kroku 5.3.
- Spłucz raz 1 ml PBS, aby usunąć detergent.
6. Montaż i obrazowanie
- Ostrożnie usunąć cały PBS i natychmiast przykryć jajniki 50 μl pożywki montażowej (z DAPI lub bez).
Uwaga: Użyj podłoża montażowego, które nie twardnieje podczas oddzielania jajników od siebie. Jajniki mogą być przechowywane w podłożu montażowym w temperaturze 4 °C przez okres do tygodnia. - Odetnij końcówkę końcówki pipety i użyj jej do ostrożnego przeniesienia jajników na szkiełko mikroskopowe.
- Całkowicie oddziel każdy jajnik ostrymi kleszczami z cienkim noskiem pod mikroskopem stereoskopowym. Usuń tkanki łączące na tylnym końcu i etapie 14 lub komorach dojrzałych jaj. Komory młodych jaj znajdują się na przednim końcu i są przezroczyste.
- Wyrównaj komory na jajka za pomocą kleszczy tak, aby nie zachodziły na siebie.
- Powoli opuść szklane szkiełko nakrywkowe # 1,5 na próbki. Pozostawić podłoże montażowe do polimeryzacji przez kilka godzin w temperaturze pokojowej. Uszczelnić przezroczystym lakierem do paznokci.
- Obraz jest przenoszony następnego dnia lub przechowywany w temperaturze 4 °C przed obrazowaniem.
- Wizualizacja pod mikroskopem konfokalnym dzięki obiektywowi 63X z olejkiem. Przechwytywanie trójwymiarowych obrazów z-stacks.
Uwaga: W późniejszych stadiach komór jajowych występuje silny sygnał EdU, a w osłonce nabłonkowej fluorescencja tła. Badając znakowanie EdU w danym germarium, należy unikać zarodków, które nakładają się na inne tkanki lub komory jajowe w późniejszym stadium lub w ich pobliżu.
Wyniki
Powyższy protokół umożliwia wizualizację struktur punktowych związanych z mitochondriami (Rysunek 1B-C), które wskazują na replikację mitochondrialnego DNA podczas oogenezy u Drosophila. Punkty EdU zlokalizowano w mitochondriach znakowanych barwieniem na podjednostkę alfa syntazy ATP (Rysunek 2). Obserwowane sygnały nie występowały w jajnikach traktowanych bromkiem etydium 11, inhibitorem replikacji mtDNA 14, co potwierdza, że punkty te rzeczywiście znakują replikujące się mtDNA. Do zahamowania barwienia DNA jądrowego bez wpływu na replikację mtDNA zastosowano afidikolinę (Rysunek 2). Bez zastosowania afidikoliny intensywne sygnały EdU znakowały jądra komórkowe, a punkty mtDNA były ledwo wykrywalne (Rysunek 3). Jednak w obecności afidikoliny wbudowanie w jądra zostało drastycznie ograniczone i zaobserwowano wiele punktów związanych z mitochondriami.
W komorach jajowych znajdujących się za germarium obserwuje się wysoki poziom replikacji mtDNA (Rysunek 1B). Co istotne, replikacja mtDNA w germarium wykazuje wzorzec przestrzenny. Jak wskazuje liczba punktów EdU, w regionie 1 germarium występuje umiarkowany poziom replikacji mtDNA, natomiast w regionie 2A niemal nie stwierdzono wbudowania EdU (Rysunek 1C). W miarę przesuwania się cysty do regionu 2B germarium, replikacja mtDNA zostaje wznowiona, a liczba punktów EdU w tylnej cysty regionu 2B jest znacznie wyższa niż w regionie 2A (Rysunek 1C). W szczególności intensywne wbudowanie EdU skoncentrowane było wokół kanałów pierścieniowych oraz struktur fusomy, barwionych za pomocą białka hu li tai shao (Hts). mtDNA nadal replikowało się na wysokim poziomie w regionie 3 germarium (Rysunek 1C)
Aby wykazać powiązanie konkretnych genów lub zastosowanego leczenia z proliferacją mtDNA, jajniki Drosophila można poddać manipulacjom genetycznym lub leczeniu farmakologicznemu. Potraktowaliśmy jajniki różnymi stężeniami FCCP, klasycznego mitochondrialnego protonofora, który rozprasza potencjał błony mitochondrialnej. Jako kontrolę zastosowano DMSO, który nie wpłynął na replikację mtDNA (Rysunek 4A). Wysokie dawki FCCP (10 µM) niemal całkowicie zahamowały replikację mtDNA w całym germarium (Rysunek 4D). Niemniej jednak niższe stężenia FCCP (2 lub 5 µM) miały niewielki wpływ na replikację mtDNA w regionie 1, ale zahamowały replikację w regionach 2B i 3 (Rysunek 4B-C), co sugeruje, że regiony 2B i 3 są bardziej wrażliwe na zaburzenia mitochondrialne lub charakteryzują się względnie wolniejszą kinetyką replikacji. Powyższe wyniki wskazują, że replikacja mtDNA jest powiązana z aktywnością mitochondriów. W szczególności różne regiony germarium w odmienny sposób reagowały na upośledzenie funkcji mitochondriów.
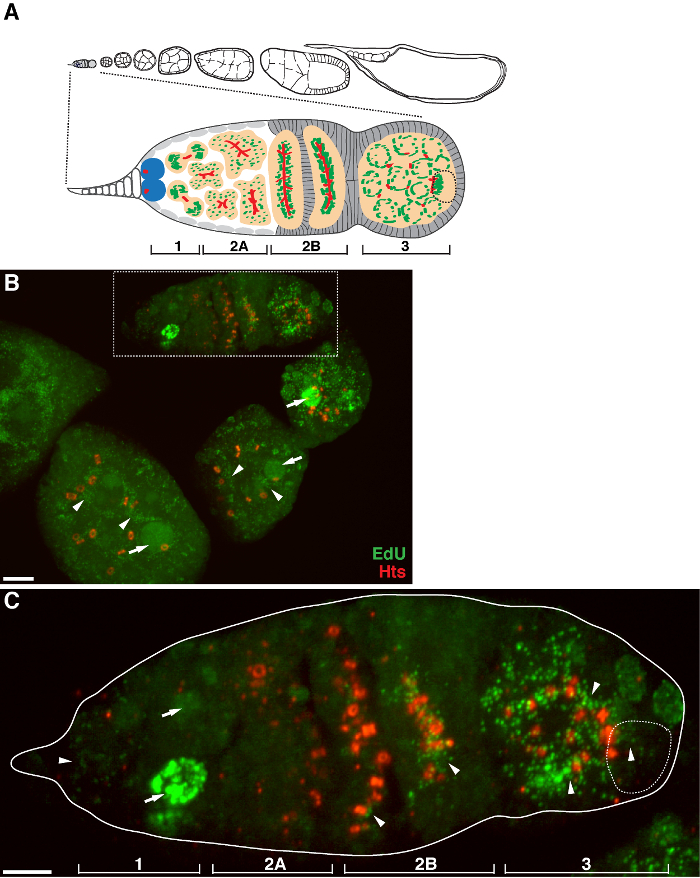
Rysunek 1. Replikacja mtDNA podczas oogenezy u Drosophila. (A) Schemat owarioli Drosophila oraz powiększony widok germarium. Owariola przedstawia od lewej do prawej, od strony przedniej do tylnej, kolejne etapy rozwoju komór jajowych. W germarium pokazano fusomę (czerwony), komórki macierzyste linii zarodkowej (niebieski), mitochondria (zielony), przyszły oocyt (linia przerywana, rozpoznany po położeniu, strukturze fusomy i skupiskach mitochondriów), rozwijające się cyster (brzoskwiniowy) oraz cztery regiony rozwojowe. (B) Reprezentatywna projekcja stosu z-stack owarioli typu dzikiego, znakowanej EdU oraz przeciwciałem przeciwko Hts-RC, markerem kanałów pierścieniowych i fusomy. W obecności afidikoliny EdU została włączona do mtDNA (groty strzałek) i jąder (strzałki). Pasek skali, 10 µm. (C) Powiększony widok germariów zaznaczonych w ramce na rysunku B. Wskazano cztery regiony rozwojowe. Pasek skali, 5 µm 11 . Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
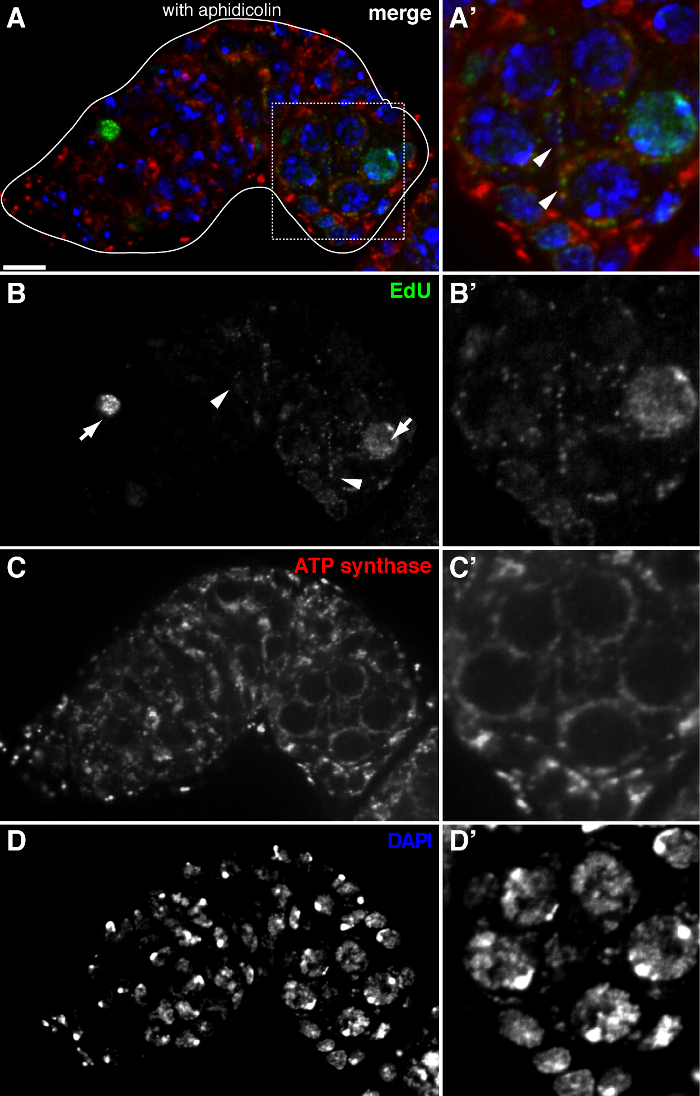
Rycina 2. replikacja mtDNA w Muszka owocówka germarium zwizualizowane poprzez wbudowanie EdU z zastosowaniem afidikoliny. (A)-(D) reprezentatywny przekrój konfokalny germarium typu dzikiego wykazujący wbudowanie EdU (zielony, b) oraz mitochondria, znakowane barwieniem na podjednostkę alfa syntazy ATP (czerwony, C), a także jądra komórkowe, znakowane barwnikiem DAPI (kolor niebieski, D) z preinkubacją z afidikoliną, inhibitorem polimerazy DNA-α. (A'-D') Powiększony obraz obszaru zaznaczonego ramką w (A) przedstawiające wbudowanie EdU (B'), mitochondria (C') oraz jądra (D'). W obecności afidykoliny wbudowywanie do jądra (strzałki) jest zredukowane, a wiele punktów zlokalizowano wewnątrz mitochondriów (groty strzałek). Paski skali, 10 µmRysunek został zmodyfikowany na podstawie 11. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
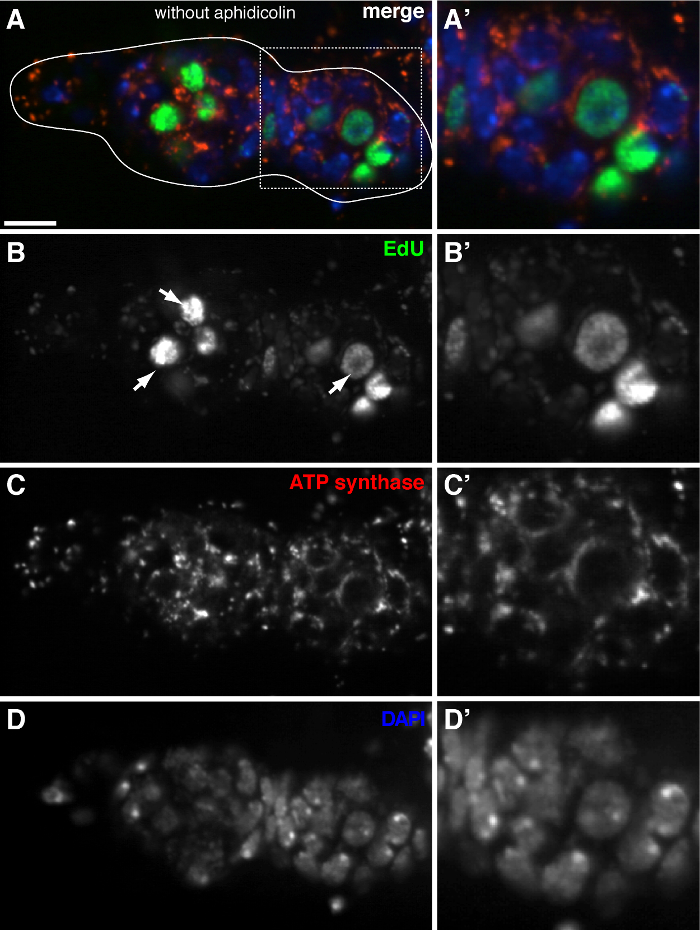
Rycina 3. Replikacja mtDNA jest ledwo wykrywalna w germarium Drosophila bez zastosowania afidikoliny. (A)-(D) Reprezentatywny przekrój konfokalny germarium typu dzikiego ukazujący wbudowanie EdU (zielony), mitochondria zaznaczone barwieniem podjednostki alfa syntazy ATP (czerwony) oraz jądra komórkowe znakowane barwieniem DAPI (niebieski) w obecności inhibitora polimerazy DNA-α, afidikoliny. (A'-D') Powiększony obraz obszaru zaznaczonego ramką w (A) ukazujący wbudowanie EdU (B'), mitochondria (C') oraz jądra (D'). Bez afidikoliny intensywne sygnały EdU znakują jądra (strzałki), a punkty mtDNA są ledwo wykrywalne. Paski skali, 10 µm. Rycina została zmodyfikowana na podstawie 11. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
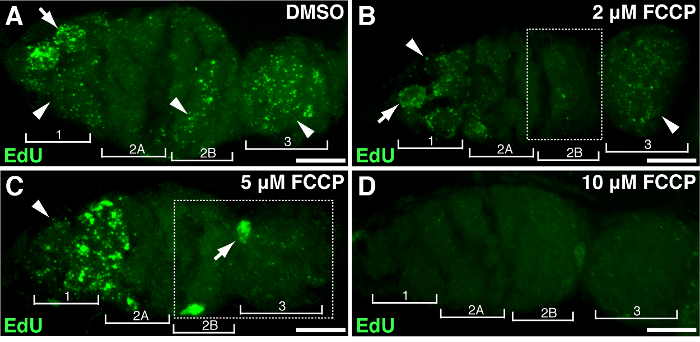
Rycina 4. Odsprzęgacz mitochondrialny upośledza replikację mtDNA. Reprezentatywne projekcje stosu z (z-stack) przedstawiające germarium typu dzikiego traktowane DMSO (A) lub odsprzęgaczem mitochondrialnym FCCP w stężeniach 2 µM (B), 5 µM (C), 10 µM (D) podczas wbudowywania EdU. Zwróć uwagę na upośledzone znakowanie EdU w regionie 2B traktowanym 2 µM FCCP (B) oraz w regionach 2B i 3 traktowanych 5 µM FCCP (obramowane ramkami). Przedstawiono cztery regiony rozwojowe. Strzałki: DNA jądrowe; groty strzałek: mtDNA. Pasek skali, 10 µm. Rycina została zmodyfikowana na podstawie 11. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Dyskusja
Znakowanie EdU to nowatorska i skuteczna metoda wykrywania syntezy DNA w proliferujących komórkach, która opiera się na włączaniu i barwieniu analogów nukleozydów w nowo zsyntetyzowanym DNA. Ta metoda jest lepsza od metody etykietowania BrdU, ponieważ jest szybsza i bardzo czuła. Co ważniejsze, pozwala na dobrą konserwację strukturalną i skuteczną penetrację barwnika EdU w całych tkankach 9, 10. Historycznie, jako lepsza alternatywa dla znakowania BrdU, znakowanie EdU było używane do badania replikacji jądrowego DNA podczas fazy S cyklu komórkowego. Afidikolina jest inhibitorem polimerazy DNA α, która jest główną polimerazą do replikacji jądrowego DNA w fazie S 1215. Replikacja mtDNA odbywa się za pomocą polimerazy DNA γ, która jest niewrażliwa na leczenie afidikoliną. W związku z tym leczenie afidikoliną przed i w trakcie inkubacji EdU znacznie hamowało inkorporację EdU do jądrowego DNA. Należy zauważyć, że afidikolina może być stabilna przez kilka tygodni, jeśli jest odpowiednio przechowywana, a skuteczność afidikoliny w hamowaniu replikacji jądrowego DNA była zmienna w naszych rękach. Jajniki lub komory jajowe z silnym znakowaniem jądrowym DNA powinny być wyłączone z dalszych analiz danych.
Replikację mtDNA można łatwo zwizualizować jako puncta w cytoplazmie, co zapewnia również prosty sposób ilościowego określenia poziomu replikacji mtDNA poprzez zliczenie liczby EdU puncta, znormalizowanej do całkowitej objętości cytoplazmy. Oprogramowanie do obrazowania może być stosowane do automatycznej identyfikacji punktów EdU na obrazach mikroskopowych, co jest szczególnie przydatne w przypadku analiz obliczeniowych dużych zbiorów danych. Należy jednak podjąć środki ostrożności, ponieważ niepełne zahamowanie replikacji jądrowego DNA może prowadzić do włączenia EdU do odrębnych loci na chromosomie i objawienia się jako puncta wewnątrz jądra. Również w innych przypadkach intensywność inkorporacji EdU do replikacji mtDNA może być słaba, podczas gdy tło i szum mogą być wysokie. W związku z tym należy dokładnie określić poszczególne parametry do automatycznych analiz obrazu. Zaleca się również, aby obrazy były badane wprawnymi oczami, aby upewnić się, że zidentyfikowano prawidłowe punkty EdU.
Wizualizacja nowo zsyntetyzowanego mtDNA podczas oogenezy Drosophila daje możliwość zbadania, w jaki sposób replikacja mtDNA jest regulowana w warunkach fizjologicznych lub patologicznych, poprzez przeprowadzenie eksperymentu na muszkach poddanych różnym zaburzeniom farmakologicznym lub genetycznym. W poprzednim badaniu test inkorporacji EdU przeprowadzono w zmutowanym mtDNA Drosophila mt:CoIT300I11. Ponadto, aby zakłócić potencjał błony mitochondrialnej, jajniki traktowano różnymi stężeniami rozprzęgacza mitochondriów FCCP lub 2,4-dinitrofenolu (DNP) przed włączeniem EdU. W zależności od celów eksperymentalnych i charakterystyki leku, można zastosować różne metody skutecznego dostarczania. W przypadku dorosłych much narkotyki mogą być prezentowane w postaci pary (np. etanolu i kokainy) 16,17 lub narkotyki mogą być wstrzykiwane do brzucha, gdzie szybko dyfundują po całym ciele 18. Najczęstszą praktyką jest dodawanie leków do pokarmu dla much lub bibuły filtracyjnej nasyconej sacharozą/lekami. Na przykład inhibitor składania mikrotubul, kolchicyna, podawano muszkom przez 2-3 dni przed rozwarstwieniem jajników 19. Dlatego ważne jest, aby ocenić sposób dostarczania leku i dobrać odpowiednie stężenia.
Aby zapewnić pomyślne obrazowanie replikacji mtDNA w jajnikach Drosophila , należy starannie wykonać kilka krytycznych kroków. Przede wszystkim niezbędne jest zachowanie żywotności i zdrowia jajników podczas rozwarstwiania i inkorporacji EdU (kroki 1 i 2). Pożywka Schneider's Drosophila z FBS musi być podgrzana do RT przed użyciem. Należy zminimalizować bezpośredni kontakt komór na jaja z narzędziami sekcyjnymi lub końcówkami pipet. Jajniki powinny być cały czas zanurzone w roztworach, aby uniknąć odwodnienia. Niewłaściwe obchodzenie się z tkankami może łatwo doprowadzić do słabych sygnałów fluorescencyjnych lub ich braku. Na etapie montażu tkanki jajniki powinny być oddzielone od siebie i rozłożone na szkiełku mikroskopowym. Upewnij się, że komory na jajka nie są ułożone jedna na drugiej. Zauważyliśmy, że komory jajowe poza etapem 14 wykazywały niewielką inkorporację EdU. Dodatkowo, ze względu na duży rozmiar, komory jajowe w późnym stadium często powodują, że sąsiednie młodsze komory jajowe są nieostre. Dlatego zaleca się odrzucenie komór jajowych w późnym stadium.
Tutaj przedstawiamy szczegółowy protokół znakowania replikującego mtDNA w dorosłych jajnikach Drosophila . Metoda ta pozwala na prostą kwantyfikację replikacji mtDNA w warunkach różnych zaburzeń genetycznych i farmakologicznych i będzie przydatna do analizy mechanizmów leżących u podstaw rozwojowej biogenezy mitochondriów i dziedziczenia mtDNA.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy K. Delaneyowi za komentarze do manuskryptu. Praca ta była wspierana przez Narodowy Program Stacjonarny Instytutu Serca, Płuc i Krwi (NHLBI).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Schneidera" s Drosophila medium | Invitrogen | 21720-024 | |
| FBS | Invitrogen | 10100-147 | |
| Para kleszczy Dumont #5 | Fine Science Tools | 11252-20 | |
| Aphidicolin | Sigma | A0781 | Aliquot po rozpuszczeniu w DMSO. Unikaj powtarzającego się rozmrażania i zamrażania. Chronić przed światłem. Można zużyć w ciągu 6 tygodni po rozpuszczeniu. |
| FCCP | Sigma | C2920 | |
| DMSO | Sigma | D2650 | |
| Paraformaldehyd, 16% Mikroskopia elektronowa klasy EM | Sciences | 15710 | Formaldehyd jest toksyczny; należy się z nim obchodzić w dygestorium z ochroną skóry i oczu. |
| PBS | KD Medical | RGF-3190 | |
| BSA | Sigma | A7030 | |
| Triton X-100 | Sigma | T9284 | |
| Zestaw do obrazowania Click-iT EdU Alexa Fluor 488 | Invitrogen | C10337 | EdU, CuSO4, azydek Alexa Fluor 488, bufor reakcyjny EdU i dodatek buforowy Edu |
| W zestawie znajduje się podjednostka i przeciwciało mysiej syntazy ATP (15H4C4) | MitoSciences | Ab14748 | 1:1,000 rozcieńczenie |
| Mysie przeciwciało Hts (klon RC) | Badania rozwojowe Hybridoma Bank (DSHB) | hts RC | 1:1,000 rozcieńczenie |
| Kozioł anty-mysie Alexa Fluor 568 przeciwciało drugorzędowe | Invitrogen | A-11004 | 1:200 rozcieńczenie |
| Vectashield z DAPI | Vector Laboratories | H-1500 | |
| Szkiełka nakrywkowe szklane, #1,5 22 mm x 22 mm | Fisher Scientific | 12-541-B | |
| Szkiełko mikroskopowe | Fisher Scientific | 22-038-103 | |
| Lakier do paznokci | Elf | Wiele pigmentów stosowanych w lakierach do paznokci jest fluorescencyjnych i wypłukuje się do próbek. Należy używać wyłącznie bezbarwnego lakieru do paznokci. |
Bibliografia
- Taylor, R. W., Turnbull, D. M. Mitochondrial DNA mutations in human disease. Nat Rev Genet. 6 (5), 389-402 (2005).
- Wallace, D. C., Chalkia, D. Mitochondrial DNA genetics and the heteroplasmy conundrum in evolution and disease. Cold Spring Harb Perspect Biol. 5 (11), a021220(2013).
- Spradling, A. C. The development of Drosophila melanogaster. , Cold Spring Harbor Lab. Press. (1993).
- Riechmann, V., Ephrussi, A. Axis formation during Drosophila oogenesis. Curr Opin Genet Dev. 11 (4), 374-383 (2001).
- Lin, H., Yue, L., Spradling, A. C. The Drosophila fusome, a germline-specific organelle, contains membrane skeletal proteins and functions in cyst formation. Development. 120 (4), 947-956 (1994).
- Cox, R. T., Spradling, A. C. A Balbiani body and the fusome mediate mitochondrial inheritance during Drosophila oogenesis. Development. 130 (8), 1579-1590 (2003).
- Davis, A. F., Clayton, D. A. In situ localization of mitochondrial DNA replication in intact mammalian cells. J Cell Biol. 135 (4), 883-893 (1996).
- Iborra, F. J., Kimura, H., Cook, P. R. The functional organization of mitochondrial genomes in human cells. BMC Biol. 2, (2004).
- Rakic, P. Neurogenesis in adult primate neocortex: an evaluation of the evidence. Nat Rev Neurosci. 3 (1), 65-71 (2002).
- Salic, A., Mitchison, T. J. A chemical method for fast and sensitive detection of DNA synthesis in vivo. Proc Natl Acad Sci U S A. 105 (7), 2415-2420 (2008).
- Hill, J. H., Chen, Z., Xu, H. Selective propagation of functional mitochondrial DNA during oogenesis restricts the transmission of a deleterious mitochondrial variant. Nat Genet. 46 (4), 389-392 (2014).
- Lentz, S. I., et al. Mitochondrial DNA (mtDNA) Biogenesis: Visualization and Duel Incorporation of BrdU and EdU Into Newly Synthesized mtDNA In Vitro. Journal of Histochemistry & Cytochemistry. 58 (2), 207-218 (2010).
- Tornoe, C. W., Christensen, C., Meldal, M. Peptidotriazoles on solid phase: [1,2,3]-triazoles by regiospecific copper(i)-catalyzed 1,3-dipolar cycloadditions of terminal alkynes to azides. J Org Chem. 67 (9), 3057-3064 (2002).
- Horwitz, H. B., Holt, C. E. Specific inhibition by ethidium bromide of mitochondrial DNA synthesis in physarum polycephalum. J. Cell Biol. 49, 546-553 (1971).
- Huberman, J. A. New views of the biochemistry of eucaryotic DNA replication revealed by aphidicolin, an unusual inhibitor of DNA polymerase alpha. Cell. 23 (3), 647-648 (1981).
- McClung, C., Hirsh, J. Stereotypic behavioral responses to free-base cocaine and the development of behavioral sensitization in Drosophila. Curr Biol. 8 (2), 109-112 (1998).
- Moore, M. S., et al. Ethanol intoxication in Drosophila: Genetic and pharmacological evidence for regulation by the cAMP signaling pathway. Cell. 93 (6), 997-1007 (1998).
- Dzitoyeva, S., Dimitrijevic, N., Manev, H. Gamma-aminobutyric acid B receptor 1 mediates behavior-impairing actions of alcohol in Drosophila: adult RNA interference and pharmacological evidence. Proc Natl Acad Sci U S A. 100 (9), 5485-5490 (2003).
- Koch, E. A., Spitzer, R. H. Multiple effects of colchicine on oogenesis in Drosophila: induced sterility and switch of potential oocyte to nurse-cell developmental pathway. Cell Tissue Res. 228 (1), 21-32 (1983).
Przedruki i uprawnienia
