Identyfikacja nowych celów leków, które przechodzą od testów przedklinicznych do badań na ludziach, jest priorytetem naukowym. W tym celu opisujemy tutaj podejście genomiki funkcjonalnej do badania wpływu wyczerpania genów na sferoidy linii komórek nowotworowych, które bardziej odpowiednio modelują nowotwory u ludzi in vivo.
Artykuł metodologiczny
Wykorzystanie badań przesiewowych genomiki funkcjonalnej do identyfikacji potencjalnie nowych celów leków w hodowlach sferoidalnych komórek nowotworowych
W tym artykule
Podsumowanie
Streszczenie
Identyfikacja funkcjonalnych zdarzeń powodujących raka jest kluczowa dla pogłębienia naszego zrozumienia biologii nowotworów i niezbędna do odkrycia nowej generacji nowych celów terapeutycznych. Staje się oczywiste, że potrzebne są bardziej złożone modele raka, aby w pełni docenić czynniki napędzające nowotworzenie in vivo i zwiększyć skuteczność nowych terapii, które umożliwiają przejście od modeli przedklinicznych do badań klinicznych.
Tutaj prezentujemy metodologię generowania jednolitych i powtarzalnych sferoid nowotworowych, które mogą być poddane funkcjonalnemu badaniu przesiewowemu siRNA. Te sferoidy wykazują wiele cech, które można znaleźć w guzach litych, które nie występują w tradycyjnej kulturze dwuwymiarowej. Pokazujemy, że kilka powszechnie stosowanych linii komórkowych raka piersi jest podatnych na ten protokół. Ponadto dostarczamy dane potwierdzające zasadność z wykorzystaniem linii komórkowej raka piersi BT474, potwierdzając ich zależność od amplifikacji receptora naskórkowego czynnika wzrostu HER2 i mutacji kinazy 3-fosfatydyloinozytolo-4,5-bifosforanu (PIK3CA) podczas hodowli jako sferoidy nowotworowe. Wreszcie, jesteśmy w stanie dalej badać i potwierdzać przestrzenny wpływ tych zależności za pomocą immunohistochemii.
Wprowadzenie
Guzy lite wykazują znaczną niejednorodność histologiczną, genetyczną i mikrośrodowiskową wewnątrz guza, co stanowi dla klinicystów poważne wyzwanie w skutecznym leczeniu pacjentów. Większość modeli wykorzystywanych do identyfikacji nowatorskich terapii celowanych nie obejmuje wielu z tych cech. Rzeczywiście, obecne terapie celowane stosowane w klinice zostały opracowane w ciągu ostatniej dekady przy użyciu podejść przesiewowych, które opierają się na liniach komórek rakowych hodowanych w warunkach dwuwymiarowej (2D) hodowli. Chociaż przyniosło to różne sukcesy, takie jak inhibitory receptorowej kinazy tyrozynowej, staje się oczywiste, że potrzebne są bardziej złożone modele raka, aby w pełni docenić czynniki napędzające nowotworzenie in vivo i zwiększyć liczbę nowych terapii, które przechodzą od modeli przedklinicznych do badań klinicznych. Co więcej, obecnie dobrze uznaje się, że systemy hodowli 2D nie odzwierciedlają zachowania in vivo 1,2. Na przykład w słabo unaczynionych nowotworach, gdy zapotrzebowanie na tlen i składniki odżywcze w mikrośrodowisku przewyższa podaż, rozwijają się regiony wysokich i niskich porodów. Obecność niskiego poziomu tlenu (niedotlenienie) w nowotworach, wykryta przez immunohistochemiczne barwienie skrawków guza dla ustalonych markerów hipoksji, takich jak anhydraza węglanowa IX (CAIX), koreluje z gorszym wynikiem klinicznym w raku piersi 3,4 Zatem włączenie cech takich jak hipoksja do modeli przesiewowych może zwiększyć naszą zdolność do odkrywania nowych celów terapeutycznych, które będą bardziej skuteczne in vivo. Rzeczywiście, skuteczne celowanie w agresywne nowotwory, które zawierają niedotlenienie, jest priorytetem klinicznym 5.
Zmiana tradycyjnego badania przesiewowego siRNA 2D, w celu dokładniejszego podsumowania elementów warunków napotykanych przez komórki nowotworowe w mikrośrodowisku guza, doprowadziła do identyfikacji kilku genów, które okazały się ważne dla wzrostu guza in vivo. Obejmują one funkcjonalne badania przesiewowe genomu wykonywane w warunkach niskiej surowicy6, w warunkach niedotlenienia7 oraz w skojarzeniu8. Na przykład wyciszenie kinazy 6-fosfofrukto-2-kinazy/fruktozy-2,6-bifosfatazy 4 (PFKFB4), białka odpowiedzialnego za regulację węgla wchodzącego do glikolizy, wywołało apoptozę tylko w liniach raka prostaty pochodzących z przerzutów, gdy są hodowane w niskiej surowicy. Wyciszenie PFKFB4 w normalnych liniach komórkowych prostaty w tych samych warunkach nie przyniosło żadnego efektu, podczas gdy wyczerpanie PFKFB4 całkowicie zneutralizowało wzrost ksenoprzeszczepów linii komórkowej raka prostaty 6.
W rozszerzonym panelu linii komórkowych raka piersi, wyciszenie transportera monokarboksylazy 4 (MCT4) preferencyjnie prowadziło do zmniejszenia wzrostu linii komórkowych w warunkach niskiej zawartości tlenu. Podatność ta została potwierdzona in vivo w ortotropowych ksenoprzeszczepach linii komórkowej raka piersi. Być może najbardziej uderzające jest to, że wyciszenie syntetazy acetylo-CoA 2 (ACSS2), enzymu odpowiedzialnego za przekształcanie octanu w acetylo-CoA, zmniejszyło liczbę komórek rakowych w warunkach stresu odżywczego (niski poziom tlenu i surowicy), ale miało niewielki lub żaden wpływ w normalnych warunkach hodowli 8. Ablacja ACSS2 wpłynęła na wzrost ksenoprzeszczepów raka piersi i prostaty, co sugeruje, że gradienty składników odżywczych nie istnieją w izolacji w mikrośrodowisku guza i że komórki znajdujące się w tych regionach są niezbędne do progresji guza 8. Ponadto stwierdzono również, że ACSS2 jest ważny w glejakach i rakach wątrobowokomórkowych 9,10, co sugeruje, że zwiększona aktywność ACSS2 w nowotworach może być podstawowym mechanizmem wspierającym wzrost w niesprzyjających warunkach.
Podsumowując, te badania dowodzą, że podsumowanie warunków napotkanych in vivo i przeprowadzenie badań przesiewowych siRNA pozwala na identyfikację genów niezbędnych do przeżycia raka. Oprócz wpływu na wzrost komórek rakowych 2D w warunkach stresu związanego ze składnikami odżywczymi, wyczerpanie docelowych genów w tych badaniach hamowało wzrost sferoidalnych linii komórek rakowych, odzwierciedlając to, co zaobserwowano w ksenoprzeszczepach nowotworowych 6,8. Tak więc sferoidy linii komórek rakowych zawierają kilka warunków występujących w mikrośrodowisku guza, które nadają wrażliwość na wyciszenie ACSS2. Rzeczywiście, sferoidy wykazują gradienty składników odżywczych (surowica i tlen), zmiany pH, trójwymiarowy (3D) kontakt komórka-komórka, ale także zmiany w szybkości proliferacji z komórkami przechodzącymi zatrzymanie cyklu komórkowego i apoptozę. Przykładem tego jest obecność w sferoidach nowotworowych obszarów martwiczych, cechy niespotykanej w tradycyjnej kulturze 2D.
Sferoidy komórek rakowych były już używane jako bardziej biologicznie istotne modele do badań przesiewowych inhibitorów małych cząsteczek, ale pozwala to tylko na walidację skuteczności związku lub zmianę przeznaczenia związków pierwotnie zaprojektowanych dla innych chorób 11. Obecne metody badań przesiewowych sferoidów nie pozwalają na analizę ubytku określonych genów w sposób wysokoprzepustowy i o wysokiej zawartości. Tutaj po raz pierwszy opisujemy funkcjonalny potok genomiki do odkrywania specyficznych zależności genów przy użyciu technologii małych interferujących RNA (siRNA) w sferoidach linii komórek nowotworowych. Zaprojektowaliśmy specjalną bibliotekę z siRNA ukierunkowanymi na 200 najczęściej mutowanych genów w ludzkim raku piersi i oceniliśmy wpływ wyczerpania genów na rozmiar sferoidów i aktywność metaboliczną w sferoidach raka piersi BT474. Byliśmy w stanie solidnie i powtarzalnie wykryć wpływ wyciszania ERBB2 i PIK3CA w hodowlach 3D. Ponadto mogliśmy ocenić wpływ zubożenia genów na architekturę przestrzenną sferoidów BT474 za pomocą immunohistochemii.
Protokół
1. Przygotowanie 96-dołkowych płytek siRNA
UWAGA: Zewnętrzne krawędzie płytki 96-dołkowej są bardziej podatne na parowanie w porównaniu do innych studni, dlatego ogranicz ilość siRNA do 60 na płytkę 96-dołkową. Wypełnij zewnętrzne studzienki zwykłym podłożem lub PBS, aby to ograniczyć. Ponadto zaleca się sprawdzenie poprawności trafień w celu złagodzenia odchyleń płyty.
- Rozcieńczyć siRNA do 250 - 500 ng/μl w zredukowanej pożywce surowicy (zgodnie z zaleceniami producenta) i podsycić 10 μl do odpowiednich studzienek płytki o bardzo niskim przyłączeniu. Wykonaj wszystkie badania przesiewowe w trzech egzemplarzach.
UWAGA: Włącz odpowiednie kontrole siRNA nieukierunkowane (negatywne) i zabijające (dodatnie, takie jak UBB i PLK1) w projekcie płytki, aby zapewnić ocenę skuteczności transfekcji. Użycie płytek o niskim przyczepie do pracy siRNA ma kluczowe znaczenie, ponieważ komórki zostaną dodane do mieszaniny transfekcyjnej. Nie możemy wykluczyć, że niektórzy producenci ultra niskie płytki mocujące mogą mieć subtelny wpływ na wzrost sferoidów. W związku z tym zalecamy, aby zostały one przetestowane przez użytkownika końcowego. - Przykryć płyty uszczelkami samoprzylepnymi i przechowywać w temperaturze -20 °C.
2. Odwrotna transfekcja linii komórkowej
- W dniu sita rozmrozić płytki w temperaturze pokojowej i wirować przez 5 minut przy 1 000 x g za pomocą wirówki stołowej. Dodać 10 μl zredukowanej pożywki surowicy zawierającej odczynnik do zoptymalizowanej transfekcji do każdego dołka za pomocą pipety wielokanałowej. Pozostaw płytki na 15 minut, aby powstały kompleksy transfekcyjne zawierające siRNA.
UWAGA: W badaniu tym wykorzystano linię komórkową raka piersi BT474 do funkcjonalnych badań przesiewowych genomu (hodowana w DMEM o wysokim poziomie glukozy (Dulbecco's Modified Eagle Medium) uzupełnionym 10% płodową surowicą bydlęcą (FBS) i antybiotykami). - Trypsynizować komórki, które mają być poddane badaniom przesiewowym (0,05% trypsyny i 0,53 mM EDTA) aż do odłączenia od kolby, zneutralizować przy użyciu odpowiedniej objętości pożywki specyficznej dla linii komórkowej i wirować przez 5 minut przy 1,000 x g na wirówce stołowej w celu usunięcia trypsyny. Ponownie zawieś komórki z odpowiednią objętością pożywki i określ dokładny numer komórki za pomocą licznika komórek.
UWAGA: Zazwyczaj 5,000 komórek na studzienkę wystarcza do powstania sferoidów w większości badanych linii komórkowych. Ważne jest, aby dokładnie policzyć komórki jako zawiesinę pojedynczej komórki w celu dokładnego porównania rozmiarów. - Rozcieńczyć komórki do 5 000 komórek na 180 μl w zimnym podłożu (4 °C).
UWAGA: Dodanie odtworzonych składników matrycy membrany podstawnej wpłynie negatywnie na wydajność transfekcji i zaleca się, aby nie stosować jej. Optymalizacja linii komórkowych w celu potwierdzenia zdolności tworzenia sferoidów i skuteczności knockdown powinna być przeprowadzona przed badaniem przesiewowym. - Przenieść zawiesinę komórkową do zbiornika, pipetować do mieszania i dodać 180 μl do każdego dołka 96-dołkowej płytki o bardzo niskim przyłączeniu, zawierającej siRNA przygotowane wcześniej (2.1).
- Odwirować płytkę o sile 1 000 x g we wstępnie schłodzonej wirówce o temperaturze 4 °C przez 10 minut, a następnie powrócić do inkubatora do hodowli tkankowych o temperaturze 37 °C.
- UWAGA: Komórki pojawią się jako mozaika na dnie studzienek. W ciągu następnych 12 - 24 godzin komórki połączą się ze sobą, tworząc pojedynczą kulę.
- Po 24 godzinach obserwuj, jak komórki tworzą pojedynczą sferoidę w środku studzienki. Dodaj 100 μl kompletnego podłoża do każdej studzienki, aby pobudzić wzrost.
- Uzupełnij podłoże po trzech dniach. Delikatnie usuń 100 μl podłoża z każdej studzienki i dodaj 100 μl świeżego podłoża.
- W dniu 7 należy określić ilościowo automatyczny rozmiar sferoidy na czytniku płytek, który może ilościowo monitorować wzrost sferoidów w czasie (patrz punkt 3).
- Następnie należy określić żywotność komórek za pomocą luminescencyjnego barwnika żywotności komórek (patrz sekcja 4).
3. Automatyczne pozyskiwanie obrazów
- Zeskanuj płytki na laboratoryjnym cytometrze do obrazowania na mikrodołku w 7 dniu.
- Otwórz oprogramowanie, wybierz następujące opcje: "Płytka 96-dołkowa", wybierz odpowiedni typ płytki i wprowadź nazwę eksperymentu. UWAGA: Wszelkie dodatkowe informacje można również dodać do oprogramowania.
- Wybierz aplikację "Tumorsphere". Zmień ostrość tak, aby sferoida była ostra i miała optymalny kontrast.
UWAGA: Zalecamy "ostrość na podstawie obrazu", ponieważ spodziewane są znaczne różnice w rozmiarach sferoidów. - Wybierz studnie, które wymagają skanowania i "Rozpocznij skanowanie".
- Korzystając z oprogramowania skanera płyt, upewnij się, że maska obiektu dokładnie odzwierciedla rozmiar sferoidy. W tym celu należy dostosować średnicę kolonii, dylatację granicy, minimalną grubość i ustawienia precyzji, specyficzne dla każdej badanej linii komórkowej 11,12,
UWAGA: Obszar sferoidy zostanie następnie obliczony przy użyciu algorytmu oprogramowania. Na przykład, aby dokładnie obliczyć powierzchnię sferoid BT474 hodowanych przez siedem dni, ustaw precyzję na "wysoką" i ustaw minimalną średnicę kolonii na 200 μM. W ten sposób powinna powstać odpowiednia maska sferoidalna reprezentatywna dla obszaru sferoidalnego.
UWAGA: Dane te można następnie wyeksportować z urządzenia za pomocą funkcji eksportu w postaci pliku danych z adnotacjami. Data to mediana płytki znormalizowana, połączona i przeanalizowana za pomocą wskaźnika z lub ściśle standaryzowanej średniej różnicy (SSMD) w celu zidentyfikowania siRNA, które miały statystycznie istotny wpływ na obszar sferoidalny.
4. Określanie żywotności komórek
- Po obliczeniu powierzchni sferoidalnej określić żywotność za pomocą luminescencyjnego barwnika do żywotności komórek. Przygotuj odczynnik zgodnie z instrukcjami producenta.
- Ostrożnie usuń 100 μl podłoża z każdej studzienki i dodaj 100 μl barwnika żywotności. Inkubuj płytki przez 15 minut, a następnie skanuj za pomocą czytnika płytek luminescencyjnych.
UWAGA: Dane te można następnie wyeksportować z urządzenia za pomocą funkcji eksportu w postaci pliku danych z adnotacjami. Data to znormalizowana mediana płytki, połączona i przeanalizowana za pomocą wskaźnika z lub ściśle standaryzowanej średniej różnicy (SSMD) w celu zidentyfikowania siRNA, które miały statystycznie istotny wpływ na żywotność sferoidalną.
Wyniki
Testy sferoidów w płytkach 96-dołkowych o ultra-niskiej adhezji zapewniają wysokoprzepustową ocenę fenotypową potencjalnej onkogenności w kontekście, który lepiej odwzorowuje warunki fizjologiczne występujące w guzach in vivo. Rzeczywiście, linie komórek nowotworowych MCF10DCIS.com i BT474 tworzą zwarte struktury sferoidalne (Rycina 1A), a badanie immunohistologiczne przekrojów sferoidów wykazało wyraźne zmiany przestrzenne w morfologii komórkowej i jądrowej. Z biegiem czasu niektóre sferoidy, takie jak sferoidy BT474, rozwijają obszary nekrotyczne, co jest częstą cechą agresywnych guzów litych (Rycina 1B). Niektóre sferoidy nie wykształcają rdzeni nekrotycznych, jak w przypadku linii komórkowej MDA-MB-231, lecz wykazują wyraźne zróżnicowanie w obrębie markera proliferacyjnego Ki67, który koreluje odwrotnie z ekspresją rozszczepionej kaspazy-3, markera apoptozy (Rycina 1C). Aby potwierdzić, że wiele linii komórkowych jest rzeczywiście podatnych na wyciszanie genów za pomocą siRNA, komórki BT474, MCF10DCIS.com, MDA-MB-231 i JIMT1 poddano odwrotnej transfekcji siRNA przez siedem dni. Obecność odczynnika do transfekcji (mock) lub transfekcja kontrolnych siRNA nie miała wpływu na żywotność sferoidów, natomiast wyciszenie niezbędnego genu Ubikwityny B (UBB) znacząco zmniejszyło żywotność sferoidów we wszystkich badanych liniach komórkowych (Rycina 1D).
Zaprojektowaliśmy ludzką bibliotekę siRNA obejmującą geny najczęściej mutujące w nieeselekcjonowanych rakach piersi, ER+, HER2+ oraz rakach potrójnie ujemnych. Biblioteka ta składa się z genów o znanej funkcji, takich jak MYC, PIK3CA i TP53, oraz z genów, których wpływ na kancerogenezę nie został jeszcze ustalony. Przesiew zawiera również kilka niecelujących kontrolnych siRNA (Kontrola #1, Kontrola #2) oraz siRNA celujące w geny niezbędne do przeżycia, takie jak PLK1 i UBB, które służą jako kontrole śmierci komórkowej (Tabela 1). Wybraliśmy linię komórkową raka piersi BT474, ponieważ łatwo tworzy ona sferoidy bez dodatku zrekonstruowanej błony podstawnej, jest uznaną, standardową linią komórkową i posiada znaną architekturę genomiczną. Przykładowo, komórki BT474 są dodatnie pod kątem receptora estrogenowego (ER+), wykazują nadekspresję ludzkiego receptora dla czynnika wzrostu naskórkowego 2 (HER2+) oraz posiadają mutacje w genach TP53 (E285K) i PIK3CA (K111N)13.
Stosując opisany powyżej protokół, monitorowaliśmy wpływ deplekcji genów na wielkość i żywotność sferoidów po siedmiu dniach odwrotnej transfekcji siRNA (Rysunek 1E). Co ciekawe, większość genów nie wywarła istotnego wpływu na powierzchnię ani żywotność sferoidów (Rysunek 2A). Wyciszenie FOXO3, PIK3CA, ERBB2 i SF3B1 doprowadziło do najbardziej znaczącej i powtarzalnej redukcji wielkości sferoidów. Redukcja ta została zaobserwowana również w przypadku żywotności sferoidów po wyciszeniu ERBB2 i SF3B1. Z optymizmem potwierdziliśmy wpływ wyciszenia PIK3CA, ERBB2 i SF3B1 na wielkość sferoidów przy użyciu mikroskopii w świetle przechodzącym (Rysunek 2B). Wcześniej zidentyfikowaliśmy SF3B1 jako gen niezbędny w licznych modelach linii komórkowych, zatem siSF3B1 stanowi dobrą kontrolę zabijającą obok UBB 14. Co ciekawe, spośród wszystkich 200 genów tylko wyciszenie E-Cadherin doprowadziło do istotnego wzrostu żywotności sferoidów (Rysunek 2A). Analiza morfologii sferoidów wykazała, że wyciszenie E-Cadherin spowodowało całkowity rozpad architektury sferoidu, przy czym żywe komórki osiadły na dnie studzienki o niskim powinowactwie do przylegania (Rysunek 2B). Ręczna ponowna analiza danych z przesiewu objętości sferoidów wykazała, że zjawisko to również zostało zaobserwowane, ale zostało usunięte z kwantyfikacji powierzchni, ponieważ obiekt przekraczał ustawione ograniczenia wielkości. Jak wcześniej podkreślono, komórki BT474 nadmiernie ekspresują receptorową kinazę tyrozynową HER2 i posiadają onkogeniczną mutację w PIK3CA (K111N). Potwierdziliśmy, że wyciszenie ERBB2 i PIK3CA prowadzi do zmniejszenia żywotności sferoidów, podczas gdy transfekcja kontrolami nietargetującymi nie wywarła żadnego wpływu (Rysunek 2C).
Następnie zbadaliśmy wpływ wyciszenia za pomocą siRNA na histologię sferoidów. Sferoidy BT474 poddano transfekcji odwrotnej z wykorzystaniem kontrolnego siRNA nietarczującego oraz siRNA skierowanych przeciwko PIK3CA, ERBB2 i UBB. Wyciszenie ERBB2 i UBB spowodowało zmniejszenie poziomu markera proproliferacyjnego Ki67 w porównaniu z kontrolnym siRNA (Rysunek 2D). Aktywację proapoptotycznego markera rozszczepionej kaspazy-3 zaobserwowano jedynie po wyciszeniu UBB, co sugeruje, że usunięcie HER2 i PIK3CA nie prowadziło do apoptozy, lecz działało cytostatycznie, a nie cytotoksycznie. Rzeczywiście, wyciszenie HER2 i PIK3CA spowodowało wzrost ekspresji białka p27 odpowiedzialnego za zatrzymanie cyklu komórkowego w porównaniu ze sferoidami poddanymi transfekcji kontrolnej.
Podsumowując, wyniki te wykazują, że wzrost komórek BT474 w formie sferoidów 3D jest napędzany przez onkogenne szlaki sygnałowe HER2 i PIK3CA. Co ważniejsze, wyniki te dowodzą, że możliwe jest solidne i powtarzalne zaprojektowanie oraz wdrożenie spersonalizowanej biblioteki przesiewowej siRNA obejmującej setki genów w sferoidach linii komórkowej raka.
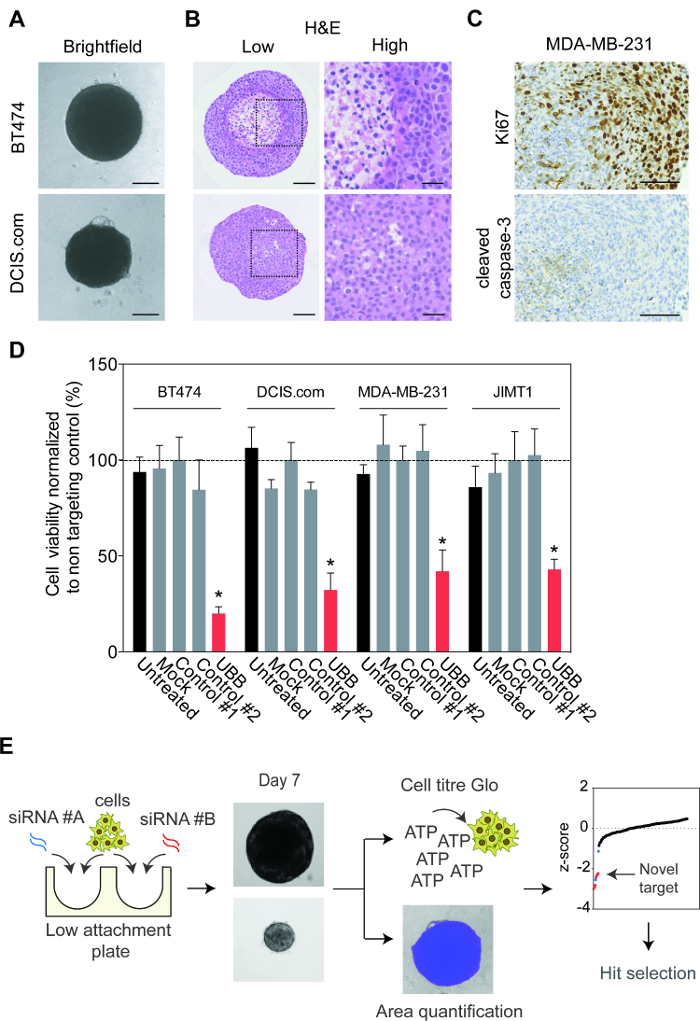
Rysunek 1: Optymalizacja linii komórkowych do wzrostu trójwymiarowego. A. Linie komórkowe raka piersi, MCF10DCIS.com i BT474, hodowano na płytkach o niskim przywieraniu przez 7 dni. Reprezentatywne obrazy w świetle przechodzącym wykonano przy użyciu mikroskopu odwróconego. Paski skali = 100 µm. B. Sferoidy MCF10DCIS.com i BT474 były hodowane przez 28 dni. 100 μL świeżej pożywki uzupełniano co 3–4 dni. Sferoidy utrwalono w 3,8% formaldehydzie, zatopiono w parafinią, wykonano ich przekroje i zabarwiono hematoksyliną i eozyną (H&E). Przedstawiono reprezentatywne obrazy przy niskim i wysokim powiększeniu. Paski skali oznaczają 100 µm i 33 µmodpowiednio. C. Sferoidy MDA-MB-231 hodowano przez 21 dni. 100 μL świeżej pożywki uzupełniano co 3-4 dni. Sferoidy utrwalono w 3,8% formaldehydzie, zatopiono w bloku, wykonano ich przekroje i zabarwiono pod kątem Ki67 oraz rozszczepionej kaspazy-3. Przedstawiono reprezentatywne obrazy. Paski skali = 100 µm. D. Linie komórkowe BT474, MCF10DCIS.com, MDA-MB-231 i JIMT1 poddano odwrotnej transfekcji za pomocą mock (sam odczyn do transfekcji), kontrolnych siRNA oraz siRNA przeciwko UBB, a następnie wirowano płytki o bardzo niskim stopniu przylegania w celu utworzenia sferoidów. Świeżą pożywkę (100 µl) dodawano w dniach 1. i 4. Po 7 dniach określono przeżywalność komórek. Dane przedstawiają średnią ± SD z dwóch niezależnych powtórzeń biologicznych wykonanych w trzech powtórzeniach technicznych, znormalizowanych względem kontroli nr 1. Istotność statystyczną obliczono za pomocą nieparzystego testu t Studenta (p< 0.05). E. Schemat blokowy podsumowujący protokół odwrotnej transfekcji wykorzystany do funkcjonalnego badania zależności genowej w sferoidach linii komórkowych nowotworowych. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
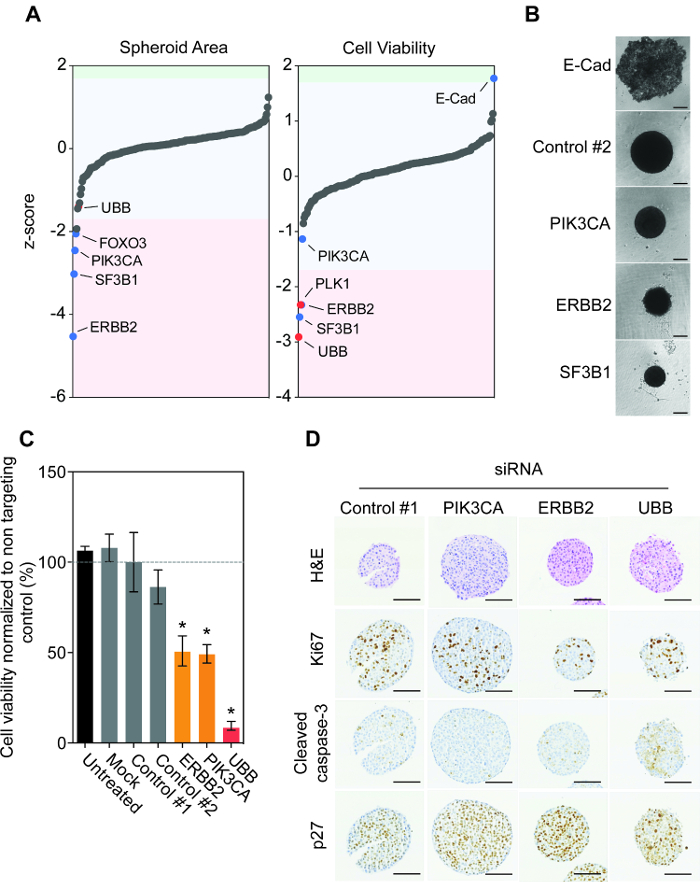
Rycina 2: Funkcjonalne badanie genomiczne sferoidów BT474 ujawnia zależności onkogenne. A. Komórki BT474 poddano odwrotnej transfekcji z wykorzystaniem biblioteki siRNA siGENOME dla 200 genów ludzkich w trzech powtórzeniach. Obserwowano wielkość i żywotność sferoidów. Surowe wartości danych znormalizowano względem mediany płytki, a następnie obliczono wartości z-score w celu zidentyfikowania istotnych wartości odstających, przekraczających 1,7-krotność odchylenia standardowego mediany płytki. 15Zwróć uwagę na geny odstające: ERBB2, SF3B1, PLK1, UBB oraz E-cad. siRNA, które znacząco zwiększyły lub zmniejszyły powierzchnię i żywotność sferoidów, są zaznaczone kolorem niebieskim i czerwonym, przy czym kolor czerwony oznacza kontrolne siRNA. B. Komórki poddano transfekcji odwrotnej za pomocą niecelującego siRNA kontrolnego lub siRNA przeciwko E-kadherynie (E-Cad), PIK3CA, ERBB2 lub UBB, a następnie wirowano w płytce o ultra-niskiej adhezji w celu utworzenia sferoidów. Po 7 dniach wykonano reprezentatywne obrazy sferoidów w jasnym polu za pomocą mikroskopu odwróconego. Paski skali = 100 µm. C. Komórki poddano odwrotnej transfekcji za pomocą siRNA kontrolnego (non-targeting), PIK3CA, ERBB2 lub UBB, a następnie wiruowano w płytce o bardzo niskim stopniu adhezji w celu utworzenia sferoidów. Po 7 dniach ilościowo określono żywotność komórek. Dane przedstawiają średnią ± SD z dwóch niezależnych powtórzeń biologicznych wykonanych w trzech powtórzeniach technicznych, znormalizowanych względem kontroli nr 1. Istotność statystyczną obliczono za pomocą nieparzystego testu t Studenta (p < 0.05). D. Po 7 dniach sferoidy utrwalono, zatopiono, wykonano ich przekroje i wybarwiono hematoksyliną (H&E).&E, Ki67, rozszczepiona kaspaza-3 i p27. Przedstawiono obrazy reprezentatywne. Paski skali = 100 µmZauważ H&Sferoidy siControl wydają się mniejsze ze względu na artefakt przetwarzania oraz wybór poszczególnych, nienaruszonych sferoidów do barwienia. Nie wpływa to jednak negatywnie na zmiany zaobserwowane na obrazach z Probate oraz wyniki żywotności komórek. Prosimy o kliknięcie tutaj, aby wyświetlić powiększoną wersję tej figury.
| 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 | 9 | 10 | 11 | 12 |
| Kontrolny niecelowany 1 | TP53 | DST | KMT2C | Nieleczona grupa 1 | FCGBP | ARID1B | FBXM7 | TTC40 | Kontrolny niecelujący 2 | ||
| GATA3 | TTN | MUC12 | MUC4 | AHNAK | HUWEI1 | DNAH11 | ITPR2 | ABCA13 | CREBBP | ||
| MAP2K4 | PIK3CA | F5 | APOB | ANKRD30A | MUC17 | DNAH17 | LAMA2 | ACE | CSMD2 | ||
| STARD9 | USH2A | FAT3 | LPR2 | CSMD3 | MYO18B | DNAH5 | MDN1 | ARHGAP5 | DNAH9 | ||
| CXCR3 | MUC16 | RB1 | PKHD1L1 | DNAH2 | SYNE2 | DYNC1H1 | PCLO | CACNA1B | ERBB2 | ||
| PLK1 | SYNE1 | LYST | PTEN | SPTA1 | Nieleczone 2 | VHL | RYR1 | COL6A3 | UBB | ||
| 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 | 9 | 10 | 11 | 12 |
| Kontrolny niecelujący 1 | ENAM | RYR2 | BRCA2 | Nieleczona grupa 1 | FMN2 | HECW1 | LAMB4 | SI | Nietargetujący 2 | ||
| FHOD3 | MACF1 | RYR3 | C2ORF16 | DMD (Dystrofia mięśniowa Duchenna) | FRG1 | HERC2 | MYH11 | STAB1 | ZDBF2 | ||
| GOLGA6L2 | NEB | SMG1 | CACNA1E | DNA14 | GCC2 | HIVEP2 | NIPBL | TANC1 | ZNF536 | ||
| HMCN1 | NF1 | UBR5 | CACNA1F | DYNC2H1 | GON4L | HYDIN | PKD1L1 | TF | ANK3 | ||
| HRNR | OBSCN | USP34 | CYMA5 | FAM208B | GPR112 | ITSN2 | RNF213 | TPR | ASPM | ||
| PLK1 | PCDH15 | XIRP2 | COL7A1 | FLG2 | Nieleczona 2 | VHL | SAGE1 | UNC80 | UBB | ||
| 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 | 9 | 10 | 11 | 12 |
| Kontrola nietargetująca 1 | DCHS2 | MUC5B | ZFHX4 | Nieleczona 1 | MYO9A | SPHKAP | CXORF22 | NCOR1 | VPS13D | ||
| ATR | DMXL2 | MXRA5 | ANK2 | KIAA1210 | PRUNE2 | TCHH | DANH6 | NOTCH2 | ANKRD12 | ||
| BIRC6 | DNAH10 | TENM1 | ATM | LRP1 | SCN10A | VPS13C | DNAH7 | SPEN | C5ORF42 | ||
| CDH1 | DNAH3 | PEG3 | DIDO1 | MAP1A | SCN2A | IPTR3 | ERBB3 | SRRM2 | CCDC88A | ||
| CUBN | NOCK11 | RELN | DNAH8 | MED12 | SHROOM2 | CEP350 | FAT4 | SZT2 | CHD4 | ||
| PLK1 | EYS | SACS | KIAA1109 | MED13 | Nieleczona grupa 2 | VHL | KMT2A | VPS13A | UBB | ||
| 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 | 9 | 10 | 11 | 12 |
| Niekierowany | QSER1 | ARID1A | WDFY3 | Nieleczona 1 | SDK1 | TEX15 | LAMA1 | Kontrolny non-targeting 2 | |||
| COL14A1 | SHROOM3 | ATRX | EFCAB5 | SF3B1 | CBFB | AHNAK2 | |||||
| CSMD1 | TBX3 | KIAA0947 | FOXA1 | ITPR1 | DDX3X | KIF4A | |||||
| MEFV | UBR4 | MYCBP2 | INPPL1 | FLG | HECTD4 | FAT2 | |||||
| MGAM | VCAN | NBEAL1 | MAP3K1 | AKAP9 | GPR98 | FOXO3 | |||||
| PLK1 | ZNF462 | SETX | NRP1 | HERC1 | Nieleczona 2 | VHL | UBB | ||||
Tabela 1: Układ płytek i dekonwolucja ludzkiej biblioteki siRNA. Tabela zawiera zawartość każdej z pul siRNA oraz układ płytek o niskim przywieraniu użytych w przesiewaniu.
Dyskusja
Trójwymiarowe modele nowotworów są coraz częściej wykorzystywane do oceny skuteczności znanych i nowych związków, które zostały zaprojektowane do selektywnego zabijania komórek nowotworowych. Sferoidy komórek rakowych to struktury, które wykazują warunki bardziej podobne do tych występujących w nowotworach in vivo, dlatego związki, które mają zwiększoną skuteczność w 3D, mają większe szanse na działanie in vivo. Metody te nie pozwalają jednak na identyfikację potencjalnie nowych celów, które nie były przedmiotem projektowania leków, które mogłyby mieć znaczną skuteczność w leczeniu raka.
Opracowaliśmy podejście oparte na genomice funkcjonalnej siRNA, które pozwoliło na trwałe wyciszenie genów przez okres do siedmiu dni w sferoidach linii komórek nowotworowych. Istnieje kilka krytycznych etapów protokołu, które wymagają optymalizacji przed wykonaniem badania przesiewowego siRNA. Niezbędna jest zdolność do tworzenia powtarzalnych, żywotnych sferoid na dużą skalę. Ponadto należy rygorystycznie zoptymalizować odpowiednie warunki transfekcji. Sugerujemy wypróbowanie kilku różnych odczynników do transfekcji z odpowiednimi kontrolami niecelującymi i zabijającymi przed przystąpieniem do badania przesiewowego. Udało nam się wykazać, że kilka powszechnie stosowanych linii komórkowych raka piersi, a mianowicie BT474, MCF10DCIS.com, MDA-MB-231 i JIMT1 było podatnych na transfekcję siRNA. Ponadto dostarczamy dane potwierdzające zasadność badań przesiewowych 200 najczęściej mutowanych genów w raku piersi w sferoidach BT474, potwierdzając ich zależność od amplifikacji HER2 i mutacji onkogennej PIK3CA. Co ciekawe, wyciszenie czynnika transkrypcyjnego FOXO3 spowodowało zmniejszenie rozmiaru sferoidy, ale nie miało znaczącego wpływu na żywotność. Wiadomo, że FOXO3 reguluje odpowiedź na niedotlenienie, zmieniając zdolność metaboliczną komórek rakowych, umożliwiając im łatwiejsze przystosowanie się do środowiska16. Ta rola może potencjalnie zakłócać odczyt żywotności komórek, ponieważ wykrywa obfitość ATP, jednego z głównych produktów metabolizmu komórkowego.
Na poparcie obserwacji zmniejszenia wielkości sferoidów wykazano, że wyciszenie FOXO3 w ksenoprzeszczepach HeLa upośledzało wzrost guza i indukowało apoptozę 17. Ważne jest, aby pamiętać, że niektóre geny mogą wpływać na zdolność komórek rakowych do zachowania architektury 3D, co może skutkować fałszywie dodatnimi wynikami. Na przykład knockdown E-kadheryny spowodował rozpuszczenie struktury sferoidalnej BT474. Zostało to wcześniej zgłoszone przy użyciu przeciwciał ukierunkowanych na E-Kadherynę 18. Podobnie jak w przypadku każdej platformy przesiewowej, potencjalne cele powinny zostać ponownie poddane badaniom przesiewowym w celu oceny odtwarzalności zaobserwowanego efektu. Technika ta ma swoje ograniczenia, a mianowicie przejściowy charakter knockdownu genu za pośrednictwem siRNA. Trwałe wyciszenie dłuższe niż siedem dni nie było możliwe do osiągnięcia w przypadku siRNA.
Zaletą tego podejścia jest to, że można je łączyć z różnymi innymi barwnikami biometrycznymi, nie tylko tymi, które oceniają żywotność sferoidów, na przykład dostarczając informacji przestrzennych o hipoksji sferoidalnej lub monitorując komórki poddawane apoptozie. Co więcej, ponieważ skany za pomocą czytnika płytek są stosunkowo szybkie i nieinwazyjne, wpływ siRNA na rozmiar sferoidów można ocenić w czasie, a nie tylko w eksperymentalnym punkcie końcowym. Rzeczywiście, obecnie badamy kilka z tych możliwości w ramach naszych badań przesiewowych. Alternatywnym podejściem, które wykorzystuje kultury 3D do identyfikacji nowych zależności, jest wykorzystanie bibliotek chemicznych, które hamują albo szeroki zakres celów, albo określone rodziny białek. Rzeczywiście, Bitler i wsp. wykorzystano to ukierunkowane podejście do zidentyfikowania interakcji syntetycznej letalności między statusem ARID1A a inhibitorami EZH2 w rakach jasnokomórkowych jajnika 19. Odkrycie technologii edycji genów CRISPR-Cas9 pozwoliło również na opracowanie genetycznych badań przesiewowych w hodowlach organoidów i in vivo. Podejście to jest jednak uzależnione od posiadania odpowiednich pomieszczeń dla zwierząt i może być zbyt kosztowne 20.
Podsumowując, uważamy, że nakreśliliśmy protokół, który dokładniej modeluje gradienty tlenu i składników odżywczych, które są cechami mikrośrodowiska guza in vivo, umożliwiając identyfikację nowych celów nowotworowych lub solidną walidację ustalonych celów. Co więcej, nasz protokół może być stosowany do każdego rodzaju linii komórkowej, która tworzy sferoidy, a zatem może być rutynowo stosowany w społeczności badawczej zajmującej się rakiem do wysokoprzepustowych badań przesiewowych siRNA.
Oświadczenia
Opłaty za otwarty dostęp zostały wsparte przez Nexcelom Bioscience, LLC.
Podziękowania
Autorzy chcieliby podziękować Fredrikowi Walbergowi (FACS i ośrodek obrazowania, ICR) za pomoc w mikroskopii. Ta praca została sfinansowana przez Breast Cancer Now. RN jest laureatką stypendium Breast Cancer Now Career Development Fellowship (2011MaySF01).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Lullaby | Oz Nauki biologiczne | LL70500 | Odczynnik do transfekcji na bazie lipidów |
| Viromer | Lipocalyx | VB-01LB-01 | wirusopodobny odczynnik do transfekcji polimerów |
| Ultra-niska płytka mocująca | Płytka 96-dołkowa Corning | CLS7007 | 96-dołkowa |
| Uszczelki płytek foliowych | ThermoFisher | AB-0626 | |
| Barwnik żywotności komórek luminescencyjnych | Promega | G7570 | CellTitre-Glo |
| (200 μ L) | Starlab | S1111-0806 | |
| Końcówki do pipet (10 μ L) | Końcówki | S1111-3800 | |
| (1 000 μ L) | Pipety | S1122-1830 | |
| (5 ml) | Sarstedt | 86.1253.025 | |
| Pipety serologiczne (10 ml) | Sarstedt | 86.1254.025 | |
| Pipety serologiczne (25 ml) | Sarstedt | 86.1685.020 | |
| RPMI Media | GIBCO | 11875-093 | |
| DMEM Media | GIBCO | 11965-084 | |
| Opti-MEM | GIBCO | 31985070 | |
| Feta surowica bydlęca | GIBCO | 16140063 | |
| siRNA | Dharmacon | Biblioteka Cherry picked | |
| Countess Licznik komórek | ThermoFisher Scientific | AMQAX1000 | |
| Szkiełka z komorą zliczania komórek | ThermoFisher Scientific | C10312 | |
| Celigo S | Nexcelom | firma | |
| Victor X5 | Perkin Elmer | firma kontaktowa | |
| Wirówka stołowa | Różne | ||
| Axisovert Odwrócony mikroskop jasnego pola | firma | kontaktowa Hodowla | |
| tkankowa CO2; Inkubator | Różne | ||
| Pipety wielokanałowe | Różne |
Bibliografia
- Seton-Rogers, S. E., et al. Cooperation of the ErbB2 receptor and transforming growth factor beta in induction of migration and invasion in mammary epithelial cells. Proc Natl Acad Sci U S A. 101 (5), 1257-1262 (2004).
- Debnath, J., Muthuswamy, S. K., Brugge, J. S. Morphogenesis and oncogenesis of MCF-10A mammary epithelial acini grown in three-dimensional basement membrane cultures. Methods. 30 (3), 256-268 (2003).
- Chia, S. K., et al. Prognostic significance of a novel hypoxia-regulated marker, carbonic anhydrase IX, in invasive breast carcinoma. J Clin Oncol. 19 (16), 3660-3668 (2001).
- Trastour, C., et al. HIF-1alpha and CA IX staining in invasive breast carcinomas: prognosis and treatment outcome. Int J Cancer. 120 (7), 1451-1458 (2007).
- Wilson, W. R., Hay, M. P. Targeting hypoxia in cancer therapy. Nat Rev Cancer. 11 (6), 393-410 (2011).
- Ros, S., et al. Functional metabolic screen identifies 6-phosphofructo-2-kinase/fructose-2,6-biphosphatase 4 as an important regulator of prostate cancer cell survival. Cancer Discov. 2 (4), 328-343 (2012).
- Baenke, F., et al. Functional screening identifies MCT4 as a key regulator of breast cancer cell metabolism and survival. J Pathol. 237 (2), 152-165 (2015).
- Schug, Z. T., et al. Acetyl-CoA synthetase 2 promotes acetate utilization and maintains cancer cell growth under metabolic stress. Cancer Cell. 27 (1), 57-71 (2015).
- Mashimo, T., et al. Acetate is a bioenergetic substrate for human glioblastoma and brain metastases. Cell. 159 (7), 1603-1614 (2014).
- Comerford, S. A., et al. Acetate dependence of tumors. Cell. 159 (7), 1591-1602 (2014).
- Vinci, M., Box, C., Eccles, S. A. Three-dimensional (3D) tumor spheroid invasion assay. J Vis Exp. (99), e52686(2015).
- Vinci, M., Box, C., Zimmermann, M., Eccles, S. A. Tumor spheroid-based migration assays for evaluation of therapeutic agents. Methods Mol Biol. 986, 253-266 (2013).
- Barretina, J., et al. The Cancer Cell Line Encyclopedia enables predictive modelling of anticancer drug sensitivity. Nature. 483 (7391), 603-607 (2012).
- Maguire, S. L., et al. SF3B1 mutations constitute a novel therapeutic target in breast cancer. J Pathol. 235 (4), 571-580 (2015).
- Brough, R., et al. Functional viability profiles of breast cancer. Cancer Discov. 1 (3), 260-273 (2011).
- Ferber, E. C., et al. FOXO3a regulates reactive oxygen metabolism by inhibiting mitochondrial gene expression. Cell Death Differ. 19 (6), 968-979 (2012).
- Jensen, K. S., et al. FoxO3A promotes metabolic adaptation to hypoxia by antagonizing Myc function. EMBO J. 30 (22), 4554-4570 (2011).
- Ivascu, A., Kubbies, M. Diversity of cell-mediated adhesions in breast cancer spheroids. Int J Oncol. 31 (6), 1403-1413 (2007).
- Bitler, B. G., et al. Synthetic lethality by targeting EZH2 methyltransferase activity in ARID1A-mutated cancers. Nat Med. 21 (3), 231-238 (2015).
- Dow, L. E., et al. Inducible in vivo genome editing with CRISPR-Cas9. Nat Biotechnol. 33 (4), 390-394 (2015).
Przedruki i uprawnienia
Przeglądaj więcej artykułów
Sferoidy komórek nowotworowychfunkcjonalny screening siRNAhodowla sferoidów guzareceptor epidermalnego czynnika wzrostufosfatydyloinozyto-45-bisfosforanowa 3-kinazaanaliza immunohistochemicznalinie komórkowe raka piersihodowla trójwymiarowawpływ wyciszania genówkwantyfikacja za pomocą czytnika płytek
