Proponujemy protokół do identyfikacji kwasów tłuszczowych bez potrzeby ich oczyszczania. Łączy informacje o czasach retencji z widmami masowymi trzech rodzajów pochodnych kwasów tłuszczowych: estrów metylowych kwasów tłuszczowych (FAME), pochodnych 4,4-dimetyloksazoliny (DMOX) i estrów 3-pirydylokarbinylu (pikolinylu).
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Identyfikacja kwasów tłuszczowych w Bacillus cereus
W tym artykule
Podsumowanie
Streszczenie
Gatunki Bacillus zawierają rozgałęzione łańcuchy i nienasycone kwasy tłuszczowe (FA) o różnych pozycjach gałęzi metylowej (iso lub anteiso) i podwójnego wiązania. Zmiany w składzie FA odgrywają kluczową rolę w adaptacji bakterii do środowiska. Modyfikacje te pociągają za sobą zmianę stosunku FA rozgałęzionych iso do anteiso oraz proporcji FA nienasyconych w stosunku do nasyconych FA, z wiązaniami podwójnymi utworzonymi w określonych pozycjach. Precyzyjna identyfikacja profilu FA jest niezbędna do zrozumienia mechanizmów adaptacyjnych gatunków Bacillus.
Wiele FA firmy Bacillus nie jest dostępnych na rynku. Zaproponowana w niniejszym dokumencie strategia identyfikuje FA poprzez połączenie informacji o czasie retencji (poprzez obliczenie równoważnej długości łańcucha (ECL)) z widmami masowymi trzech rodzajów pochodnych FA: estrów metylowych kwasów tłuszczowych (FAME), pochodnych 4,4-dimetyloksazoliny (DMOX) i estru 3-pirydylokarbinylu (pikolinylu). Ta metoda może zidentyfikować FA bez konieczności oczyszczania nieznanych FA.
Porównanie profili chromatograficznych FAME przygotowanych z Bacillus cereus z komercyjną mieszanką wzorców pozwala na identyfikację FA nasyconych prostym łańcuchem, obliczenie ECL i hipotezy dotyczące tożsamości innych FA. FAME rozgałęzionych nasyconych FA, iso lub anteiso, wykazują stałe ujemne przesunięcie ECL w porównaniu z liniowo nasyconymi FA o tej samej liczbie atomów węgla. FAME nienasyconych FA mogą być wykrywane na podstawie masy ich jonów molekularnych i powodują dodatnie przesunięcie ECL w porównaniu z odpowiadającymi im nasyconymi FA.
Pozycja rozgałęzień FA i pozycja podwójnych wiązań nienasyconych FA można zidentyfikować na podstawie widm masowych jonizacji elektronów odpowiednio pikolinylu i pochodnych DMOX. Podejście to identyfikuje wszystkie nieznane nasycone rozgałęzione FA, nienasycone FA o prostym łańcuchu i nienasycone rozgałęzione FA z ekstraktu B. cereus.
Wprowadzenie
Chromatografia gazowa (GC) z użyciem estru metylowego kwasów tłuszczowych (FAME) jest podstawową metodą charakterystyki lipidów. Szybko oddziela i określa ilościowo różne kwasy tłuszczowe (FA) w próbce po krótkim etapie ekstrakcji. Pochodne estrów metylowych są wysoce lotne, stabilne i obojętne w kierunku kolumny chromatograficznej, co pozwala uniknąć pików ogonowych. Ich identyfikacja jest dość prosta, gdy próbka składa się z dobrze znanych FA, ponieważ profile chromatograficzne są publikowane lub porównywane z wzorcami. Ponadto wielokrotne wstrzykiwanie wzorców kalibracyjnych w celu ilościowego oznaczania różnych FA nie jest wymagane, biorąc pod uwagę ich prawie stałą reakcję na detekcję płomieniowo-jonizacyjną (FID)1.
Oprócz FID, detekcja spektrometrii mas (MS) dostarcza uzupełniającego zestawu informacji do potwierdzania FAME. Jednakże, gdy FAME są ładowane za pomocą jonizacji elektronowej (EI), uzyskane widma nie zawsze pozwalają na identyfikację drobnej struktury FA. Na przykład pozycja rozgałęzienia (tj. rozgałęziona grupa metylowa) jest trudna do przewidzenia, ponieważ jony diagnostyczne są trudne do wykrycia1, a charakterystyczna zmiana w obfitości jonów docelowych jest zależna od maszyny, co uniemożliwia korzystanie z bibliotek widm masowych2. Kolejnym wyzwaniem jest zidentyfikowanie pozycji podwójnych wiązań, ponieważ EI powoduje migrację podwójnych wiązań. W związku z tym izomery FA o różnych pozycjach wiązań podwójnych nie mogą być rozróżniane na podstawie ich widm masowych. Na szczęście opracowano inne narzędzia do identyfikacji FA. Na przykład obecność i położenie rozgałęzień lub wiązań podwójnych w FA można wywnioskować, obliczając równoważną długość łańcucha (ECL)3.
Inne metody derywatyzacji dają różne widma masowe, zależne od lokalizacji podwójnego wiązania lub rozgałęzionej grupy metylowej. Pochodne 4,4-dimetyloksazoliny (DMOX)4 pozwalają na łatwą identyfikację pozycji podwójnych wiązań jednonienasyconych kwasów tłuszczowych. Pochodne estru 3-pirydylokarbinylowego (estru pikolinylowego) pozwalają na jednoznaczną identyfikację lokalizacji FArozgałęzionych metylo 5. Połączenie informacji o retencji chromatograficznej (ECL) i widmach masowych (DMOX i pikolinylu) pozwala na identyfikację większości FA bez konieczności stosowania skomplikowanych metod oczyszczania, co jest wymagane dla widma magnetycznego rezonansu jądrowego (NMR), niepodważalnej metody charakterystyki strukturalnej1.
Bakterie z rodzaju Bacillus, które obejmują niektóre ludzkie i zwierzęce patogeny, są zdolne do kolonizacji bardzo zróżnicowanych nisz i dlatego są szeroko rozpowszechnione w środowisku6. Wśród rodzaju Bacillus na skład FA wpływa nisza ekologiczna gatunku z modulacjami we wzorcach FA w celu przystosowania się do szerokiego zakresu zmian środowiskowych (np. pożywki wzrostowej, temperatury, pH itp.)7-9. Ze względu na względną jednorodność wzorca FA u różnych gatunków z rodzaju Bacillus podczas wzrostu w znormalizowanych warunkach, określenie składu FA jest jednym z podstawowych kryteriów stosowanych do zdefiniowania gatunku Bacillus. Unikalną cechą rodzaju Bacillus jest obfitość FA o rozgałęzionych łańcuchach zawierających12-17 atomów węgla 10-12, przy czym stosunek izomerów iso i anteiso jest kluczowym wyznacznikiem adaptacji do warunków środowiskowych. Gatunki Bacillus przystosowują się również do wahań środowiskowych poprzez zmianę proporcji nienasyconych kwasów tłuszczowych. U niektórych gatunków, takich jak Bacillus cereus, dwie desaturazy kwasów tłuszczowych tworzą podwójne wiązania w różnych pozycjach łańcucha alkilowego13 o różnych rolach w adaptacji9. Przykład rodzaju Bacillus ilustruje, jak ważne jest precyzyjne określenie pozycji podwójnego wiązania i rozgałęzienia FA. Reasumując, identyfikacja wzorców Bacillus FA ma kilka użytecznych zastosowań. W niniejszym artykule proponujemy nowatorskie podejście GC-MS do identyfikacji wzorca Bacillus FA, które pokonuje nieodłączne ograniczenia klasycznej analizy GC-MS.
To innowacyjne podejście może być stosowane bezpośrednio na surowym materiale biologicznym i składa się z kombinacji istniejących technik: informacji o czasach retencji (ECL) i widmach masowych różnych pochodnych FA (FAME, DMOX i ester pikolinylu).
Używamy następującej nomenklatury FA. i, A i N oznaczają odpowiednio ISO, anteiso metylowe rozgałęzione i prostołańcuchowe kwasy tłuszczowe. Nienasycone FA zostały nazwane przez C: d, gdzie C to liczba atomów węgla w kwasie tłuszczowym, a d to liczba wiązań podwójnych. Δx wskazuje położenie wiązania podwójnego, gdzie wiązanie podwójne znajduje się na x-tym wiązaniu węgiel-węgiel, licząc od końca kwasu karboksylowego.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Hodowle bakteryjne
- Przygotować lawn bakterii (Bacillus cereus szczep ATCC 14579), rozprowadzając 100 µl nocnej kultury szczepu inkubowanej w 30 °C w LB (podłoże Luria-Bertani) na powierzchni płytki z agarem LB. Inkubować płytkę przez noc w 30 °C.
2. ECL: Równoważna Długość Łańcucha
- Oblicz ECL zgodnie z następującym wzorem:
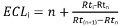 gdzie:
i to analizowana substancja rozpuszczona;
n to liczba węgli nasyconego estru metylowego kwasu tłuszczowego o prostym łańcuchu eluującego przed substancją I;
n+1 to liczba węgli nasyconego estru metylowego kwasu tłuszczowego o prostym łańcuchu eluującego po substancji I;
Rti, Rtn, Rt(n+1) to czasy retencji pików FAME opisanych powyżej.
UWAGA: Czasy retencji nasyconych estrów metylowych kwasów tłuszczowych o prostym łańcuchu należy wyznaczyć poprzez wtryskiwanie mieszaniny standardów (BAME).
3. Przygotowanie i analiza FAME
- Aby uzyskać kwasy tłuszczowe lipidów, należy zebrać komórki bakteryjne poprzez zeskrobanie kolonii z płytki z agarem, a następnie przenieść 40 mg (masa świeża, odpowiadająca 109 żywych komórek bakterii do szklanej probówki o pojemności 10 ml z nakrętką i uszczelką z PTFE.
- Przeprowadzenie transestryfikacji metodą wiązania estrowego14,15 szczegóły opisano poniżej.
- Do świeżych komórek bakteryjnych dodać 5 ml 0,2 M KOH w metanolu i inkubować w 37 °C przez 1 h. Reakcja ta polega na metanolizie w środowisku zasadowym, w wyniku której następuje rozrywanie wiązań estrowych w lipidach i powstanie estrów metylowych kwasów tłuszczowych.
- Dodać 1 ml 1 M kwasu octowego, aby obniżyć pH do 7,0. Sprawdzić wartość pH za pomocą pasków pomiarowych.
- Dodać 3 ml heksanu w celu ekstrakcji FAME.
- Przenieść nadsącz (fazę organiczną) do czystych probówek i zagęścić poprzez odparowanie w temperaturze pokojowej pod stałym przepływem azotu, aby uzyskać około 200 µl ekstraktu. Przenieś próbkę do fiolki do GC z wkładką.
- Wprowadź ekstrakty do systemu chromatografii gazowej sprzężonej z spektrometrią mas (GC-MS).
4. Warunki GC/MS
- Próbki FAME wstrzyknąć do urządzenia GC-MS wyposażonego w kolumnę kapilarną ZB-WAX (długość 30 m; średnica 0,25 mm; grubość warstwy 0,25 µm).
- Temperaturę wlewki (w trybie bezpodziałowym) ustawić na 250 °C. Jako gaz nośny zastosować hel z prędkością liniową 37 cm/sec. Temperaturę termostatu utrzymać na poziomie 50 °C przez 1 min, następnie zwiększać w tempie 20 °C/min do 190 °C, a następnie w tempie 2 °C/min do temperatury końcowej 230 °C.
- W przypadku MS zarejestrować widma mas za pomocą jonizacji elektronowej (EI) przy 70 eV i ustawić akwizycję całkowitego prądu jonowego w zakresie od 50 do 400 jednostek masy atomowej (amu) (2 skany/sec).
- W razie potrzeby wstrzyknąć pochodne DMOX i pikolinilowe w tych samych warunkach, z wyjątkiem programu temperatury termostatu, zgodnie z poniższymi parametrami:
DMOX: 50 °C (1 min), 20 °C/min do 210 °C i 2 °C/min do 240 °C (5 min);
Pikolinilowe: 6 °C (1 min), 20 °C/min do 220 °C i 2 °C/min do 250 °C (20 min).
5. Przygotowanie estrów pikolinilowych z FAME16
- Odparować ekstrakt FAME z sekcji 3 w strumieniu azotu (co najmniej 10 mg suchej substancji) i rozpuścić w 1 ml suchego dichlorometanu.
- Przygotować 1,0 M roztwór potasu tert-butanolan potasu w tetrahydrofuranie.
- Do 0,1 ml roztworu przygotowanego w kroku 5.2 dodać ekstrakt FAME oraz 0,2 ml 3-pirydynometanolu.
- Podgrzać roztwór w temperaturze 40 °C przez 30 min w zamkniętej fiolce.
- Po ochłodzeniu do temperatury pokojowej dodać oczyszczoną wodę dejonizowaną (2 ml, patrz Tabela materiałów) oraz heksanu (4 ml). Wymieszać za pomocą wibratora typu vortex, odczekać do rozdzielenia się faz, a następnie zebrać fazę organiczną.
- Osusz próbkę, dodając bezwodny siarczan sodu, aż faza organiczna stanie się całkowicie klarowna. Przenieś ją do czystej probówki. Następnie odparuj do 200 µlPrzenieś próbkę do fiolki do GC z wkładką.
6. Przygotowanie DMOX z FAME17
- Odparować ekstrakt FAME z Sekcji 3 w strumieniu azotu (co najmniej 10 mg suchej masy).
- Do suchego ekstraktu FAME dodać 250 mg 2-amino-2-metylopropanolu. Przepłukać naczynie azotem, zamknąć korkiem i umieścić w bloku grzejnym na noc w temperaturze 190 °C.
- Po ochłodzeniu do temperatury pokojowej dodać do probówki 3 ml dichlorometanu oraz 5 ml oczyszczonej wody dejonizowanej (zob. Tabela materiałów).
- Wstrząsać do rozdzielenia faz, a następnie usunąć fazę wodną.
- Przemyć fazę organiczną 5 ml wody. Wstrząsać do rozdzielenia faz, a następnie usunąć fazę wodną.
- Osuszyć poprzez dodawanie bezwodnego siarczanu sodu, aż faza organiczna stanie się całkowicie przejrzysta, i przenieść ją do czystej probówki. Odparować w strumieniu azotu do uzyskania objętości 200 µl. Przenieść próbkę do fiolki do GC z wkładką.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Strategia identyfikacji FA z komórek bakteryjnych przedstawiona jest na Rysunku 1. Każdy etap dostarcza komplementarnych informacji spektralnych lub informacji o retencji chromatograficznej. Krok 1 polega na wstępnej identyfikacji FA z wykorzystaniem roztworu wzorcowego. Krok 2 umożliwia interpretację widm EI dla FAME oraz ich ECL w celu wstępnej identyfikacji produktów. Krok 3 pozwala na określenie dokładnego miejsca rozgałęzienia w rozgałęzionych FA. Na koniec, krok 4 s...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Profile chromatogramu FA przedstawione w tabeli 1 odpowiadają B. cereus ATCC 14579 wyhodowanemu na powierzchni płytki agarowej. Podobne profile uzyskano, gdy bakteria była hodowana w napowietrzonym płynnym podłożu w tej samej temperaturze8. W przypadku bakterii hodowanych w pożywkach płynnych, biomasa bakteryjna jest zbierana przez odwirowanie pożywki wzrostowej i może być myta zgodnie z wcześniej opisanymi protokołami w zależności od warunków wzrostu8,19. Identyfikacja róż...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Autorzy są wdzięczni Thomasowi Misonowi za jego wsparcie techniczne, a Rachel Kopec za poprawienie manuskryptu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| GC/MS | Shimadzu | QP2010 | |
| kolumna kapilarna ZB WAX | Phenomenex | 7HG-G007-11 | 30 m x 0,25 mm x 0,25 &mikro; |
| m Metanol Lichrosolv | VWR | 1.06018.2500 | |
| wodorotlenek potasu | Aldrich | P1767 | |
| THF | Hipersolv Chromanorm | 28559.320 | |
| Dichlorometan | Hipersolv Chromanorm | 23373.320 | |
| Heksan | Hipersolv Chromanorm | 24575.320 | |
| 3-pirydynemetanol | Aldrich | P6-680-7 | |
| tertiobutlenek potasu | Aldrich | 156671 | |
| 2-amino-2-metylo-1-propanol | A-9879 | ||
| MiliQ Academic | Millipore | ZMQS50001 | |
| Bakteryjny ester metylowy kwasu bakteryjnego (BAME) Mix | Sigma-Aldrich | 47080-U Supelco |
Bibliografia
- Christie, W. W., Han, X. Lipid Analysis 4th Edition. , Oily press. (2010).
- HÜbschmann, H. -J. Handbook of GC-MS: fundamental and application. Third edition. , Wiley-vch. (2015).
- Sasser, M. Identification of Bacteria by Gas Chromatography of Cellular Fatty Acids. MIDI Technical note. 101, 1-6 (1990).
- Spitzer, V. Structure analysis of fatty acids by gas chromatography - Low resolution electron impact mass spectrometry of their 4,4-dimethyloxazoline derivatives - A review. Prog Lipid Res. 35 (4), 387-408 (1996).
- Harvey, D. J. Advances in lipid methodology. Volume 1. Christie, W. W. , Oily press. Dundee. 19-80 (1992).
- Diomande, S. E., Nguyen-The, C., Guinebretière, M. -H., Broussolle, V., Brillard, J. Role of fatty acids in Bacillus environmental adaptation. Front Microbiol. 6, (2015).
- Brillard, J., et al. Identification of Bacillus cereus Genes Specifically Expressed during Growth at Low Temperatures. Appl Environ Microbiol. 76 (8), 2562-2573 (2010).
- de Sarrau, B., et al. Influence of Anaerobiosis and Low Temperature on Bacillus cereus Growth, Metabolism, and Membrane Properties. Appl Environ Microbiol. 78 (6), 1715-1723 (2012).
- Diomandé, S. E., et al. Involvement of the CasK/R two-component system in optimal unsaturation of the Bacillus cereus fatty acids during low-temperature growth. Int J Food Microbiol. 213, 110-117 (2015).
- Berkeley, R. C. W., Heyndrickx, M., Logan, N., De Vos, P. Applications and Systematics of Bacillus and Relatives. Berkeley, R. C. W. , Blackwell Science Publ. 1-7 (2002).
- Kämpfer, P. Limits and Possibilities of Total Fatty Acid Analysis for Classification and Identification of Bacillus Species. System. Appl. Microbiol. 17 (1), 86-98 (1994).
- Kaneda, T. Fatty-acids of genus bacillus - example of branched-chain preference. Bacteriol Rev. 41 (2), 391-418 (1977).
- Chazarreta Cifre, L., Alemany, M., de Mendoza, D., Altabe, S. Exploring the Biosynthesis of Unsaturated Fatty Acids in Bacillus cereus ATCC 14579 and Functional Characterization of Novel Acyl-Lipid Desaturases. Appl Environ Microbiol. 79 (20), 6271-6279 (2013).
- Sasser, M., et al. Identification of Bacillus anthracis from culture using gas chromatographic analysis of fatty acid methyl esters. J AOAC Int. 88 (1), 178-181 (2005).
- Schutter, M. E., Dick, R. P. Comparison of fatty acid methyl ester (FAME) methods for characterizing microbial communities. Soil Sci Soc Am J. 64 (5), 1659-1668 (2000).
- Destaillats, F., Angers, P. One-step methodology for the synthesis of FA picolinyl esters from intact lipids. J Am Oil Chem Soc. 79 (3), 253-256 (2002).
- Fay, L., Richli, U. Location of double-bonds in polyunsaturated fatty-acids by gas-chromatography mass-spectrometry after 4,4-dimethyloxazoline derivatization. J Chromatogr. 541 (1-2), 89-98 (1991).
- Zhang, J. Y., Yu, Q. T., Liu, B. N., Huang, Z. H. Chemical modification in mass spectrometry IV-2-alkenyl-4,4-dimethyloxazolines as derivatives for the double bond location of long-chain olefinic acids. Biol Mass Spect. 15 (1), 33-44 (1988).
- de Sarrau, B., et al. Unsaturated fatty acids from food and in the growth medium improve growth of Bacillus cereus under cold and anaerobic conditions. Food Microbiol. 36 (2), 113-122 (2013).
- Miwa, T. K., Mikolajczak, K. L., Earle, F. R., Wolff, I. A. Gas chromatographic characterization of fatty acids.Identification constants for mono- and dicarboxylic methyl esters. Anal Chem. 32 (13), 1739-1742 (1960).
- van Den Dool, H., Kratz, P. A generalization of the retention index system including linear temperature programmed gas-liquid partition chromatography. J Chromatogr A. 11, 463-471 (1963).
- Stransky, K., Jursik, T., Vitek, A. Standard equivalent chain length values of monoenic and polyenic (methylene interrupted) fatty acids. J High Res Chromatogr. 20 (3), 143-158 (1997).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
Tagi
Identyfikacja kwas w t uszczowychchromatografia gazowa sprz ona z spektrometri masestry metylowe kwas w t uszczowychr wnowa na d ugo a cuchapochodne 44 dimetylooksazolinyester 3 pirydylkarbinylowyrozga zione kwasy t uszczowenienasycone kwasy t uszczowepozycja rozga zienia metylowegopozycja wi zania podw jnego
