Przedstawiamy protokół do preparowania i hodowli embrionalnych kości śródstopia z dnia 15 (E15). Ten wysoce fizjologiczny model kostnienia śródchrzęstnego ex vivo zapewnia warunki bliższe sytuacji in vivo niż komórki w hodowli jednowarstwowej lub 3D i jest niezbędnym narzędziem do badania wzrostu i rozwoju kości.
Artykuł metodologiczny
Hodowla mysich embrionalnych kości śródstopia: fizjologiczny model kostnienia śródchrzęstnego
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Podstawowy proces kostnienia śródchrzęstnego jest ściśle regulowany u zdrowego osobnika, aby zapobiec zaburzeniom rozwoju i/lub wzrostowi kości podłużnej. W związku z tym konieczne jest, abyśmy pogłębili naszą wiedzę na temat mechanizmów molekularnych leżących u podstaw takich zaburzeń, aby zapewnić postępy w kierunku korzyści dla pacjentów ludzi i zwierząt. Posiew eksplantatów narządów śródstopia myszy jest wysoce fizjologicznym modelem ex vivo do badania kostnienia endochrzęstnego i wzrostu kości, ponieważ tempo wzrostu kości w hodowli naśladuje obserwowane in vivo. Wyjątkowo, hodowla narządów śródstopia umożliwia badanie chondrocytów w różnych fazach chondrogenezy i utrzymuje interakcje komórka-komórka i komórka-macierz, zapewniając w ten sposób warunki bliższe sytuacji in vivo niż komórki w hodowli jednowarstwowej lub 3D. Protokół ten szczegółowo opisuje skomplikowane wypreparowanie zarodków śródstopia z tylnej kończyny mysich zarodków E15 oraz późniejsze analizy, które można wykonać w celu zbadania kostnienia śródchrzęstnego i podłużnego wzrostu kości.
Wprowadzenie
Szkielet jest bardzo skomplikowanym, dynamicznym i złożonym organem, który ma szereg funkcji od lokomocji po homeostazę jonów. Szkielet, składający się z kości i chrząstki, składa się z funkcjonalnie odrębnych populacji komórek, które działają w celu utrzymania jego strukturalnej, biochemicznej i mechanicznej integralności 1. Jedną z podstawowych funkcji szkieletu jest jego rola w rozwoju i wzroście. Procesy te wymagają orkiestracji wielu populacji komórkowych, które są regulowane przez ścisłą kontrolę hormonalną i genetyczną.
Z wyjątkiem płaskich kości, np. łopatki, czaszki i mostka, szkielet ssaków powstaje w procesie znanym jako kostnienie śródchrzęstne. Proces ten, regulowany zarówno molekularnie, jak i przestrzennie, rozpoczyna się od kondensacji komórek mezenchymalnych pochodzących głównie z mezodermy 2. Pod wpływem czynnika transkrypcyjnego SOX9 komórki we wnętrzu kondensacji różnicują się w chondrocyty, wyrażając i wydzielając składniki macierzy zewnątrzkomórkowej specyficzne dla chrząstki (ECM), takie jak kolagen typu II i agrekan. Komórki na obrzeżach kondensacji wyrażają kolagen typu I i tworzą okołochrzęstne, wyznaczając perspektywiczną kość 3. Później osteoprogenitory okołochrzęstne różnicują się w osteoblasty, kierowane przez ekspresję czynników transkrypcyjnych, Runx2 i osterix 4. Prowadzi to do przewagi osteoblastów, a warstwa ta zostaje przemianowana na okostną, która tworzy zmineralizowany kołnierz kostny wokół środkowej części kości. Penetracja naczyniowa okostnej i inwazja rusztowania chrzęstnego następuje ze sobą, przynosząc ze sobą hematopoetycznie pochodzące komórki resorpcji kości, osteoklasty, które resorpują resztki chondrocytów i znaczną część macierzy chrzęstnej 5. Powstałe przestrzenie są wypełniane przez osteoprogenitory, dając początek pierwotnemu ośrodkowi kostnienia, który stopniowo zajmuje rdzeń trzonu i łączy się z okostną. Inne komórki dają początek szpikowi kostnemu. Około narodzin naczynia krwionośne i osteoprogenitorzy przenikają do bogatej w chrząstki macierzy po obu stronach (nasady) rozwijającego się trzonu, tworząc wtórne centrum kostnienia. Pomiędzy nasadą a trzonem na obu końcach kości długich znajduje się pasmo chrząstki - płytka wzrostu nasady - która jest odpowiedzialna za koordynację liniowego wzrostu wszystkich kości długich 6.
Chondrocyty na płytce wzrostu początkowo się rozprzestrzeniają, a następnie przechodzą przez morfologicznie odrębne strefy, koordynowane przez sekwencyjną ekspresję czynników transkrypcyjnych i wzrostu. Kulminacją tej sekwencji zdarzeń jest wyjście z cyklu komórkowego i przerost chondrocytów w centrum tego prekursora chrząstki. Przerostowe chondrocyty wykazują silną ekspresję kolagenu typu X i metaloproteinazy macierzy-13 (MMP13), a ich znaczne zwiększenie objętości w kierunku wzrostu podłużnego zapewnia największy wkład we wzrost kości u ssaków 7,8. Ponadto przerostowe chondrocyty mineralizują otaczające je ECM poprzez uwalnianie pęcherzyków macierzy, struktur ograniczonych błoną wyspecjalizowanych do produkcji amorficznego fosforanu wapnia poprzez włączenie fosfataz (tkankowej niespecyficznej fosfatazy alkalicznej (TNAP) i PHOSPHO1) oraz białek kanałujących wapń (aneksyny) 9-11. Ta zwapniała chrząstka jest atakowana przez naczynia krwionośne z leżącego poniżej szpiku, co powoduje rekrutację osteoklastów i resorpcję macierzy. Następnie następuje migracja osteoblastów i wyrównanie do powierzchni zwapniałych resztek chrząstki, gdzie tworzą one warstwę osteoidu, która ulega szybkiej mineralizacji. Tkana kość pierwotnej gąbczastej jest później przebudowywana na kość blaszkowatą wtórnej gąbczastej 12. Zespolenie nasadowe powoduje ustanie kostnienia śródchrzęstnego 13.
Kostnienie śródchrzęstne jest ściśle regulowane przez wiele hormonów endokrynnych i parakrynnych oraz czynników wzrostu, aby zapobiec zaburzeniom rozwoju i/lub podłużnemu wzrostowi kości 14. Lepsze zrozumienie mechanizmów molekularnych i komórkowych leżących u podstaw tych procesów jest zatem niezbędne w naszym dążeniu do postępów klinicznych z korzyścią dla ludzi. Wcześniejsze badania nad podobieństwami i różnicami między płytkami wzrostowymi w różnym wieku, o różnych lokalizacjach i gatunkach znacznie poszerzyły nasze zrozumienie mechanizmów fizjologicznych otaczających dynamikę płytek wzrostu 15,16. Jednak badanie izolowanych chondrocytów jest trudne, ponieważ usunięcie chondrocytów z ich środowiska może prowadzić do odróżnicowania, któremu towarzyszy utrata ekspresji kluczowych markerów, takich jak Col2a117.
Hodowla eksplantatów narządów śródstopia myszy, zapoczątkowana przez prof. Elisabeth Burger i współpracowników w Holandii, jest wysoce fizjologicznym modelem ex vivo do badania kostnienia śródchrzęstnego i wzrostu kości jako tempa wzrostu kości w kulturze naśladującego obserwowane in vivo 18. Wyjątkowo, hodowla narządów śródstopia umożliwia badanie chondrocytów w różnych fazach chondrogenezy i utrzymuje interakcje komórka-komórka i komórka-macierz, zapewniając w ten sposób warunki bliższe sytuacji in vivo niż komórki w hodowli 19-21. Co więcej, model ten pozwala na bezpośrednie badanie liniowego wzrostu kości, co nie jest możliwe w pierwotnych hodowlach chondrocytów. Pozwala również na oddzielenie czynników ogólnoustrojowych i lokalnych, co pozwala na szczegółową analizę lokalnych skutków na płytkę wzrostową.
Hodowla kości śródstopia pozwala na badanie wielu parametrów. Codzienne pomiary całkowitej długości i zmineralizowanych obszarów zaczątków można wykonywać za pomocą standardowej mikroskopii z kontrastem fazowym i oprogramowania do analizy obrazu. Histologiczne, hybrydyzacja in situ i barwienie immunohistologiczne mogą być łatwo wykonywane na odcinkach śródstopia, co pozwala na przestrzenną rozdzielczość zarówno jednostek komórkowych, jak i molekularnych, co stanowi główną zaletę w porównaniu z tradycyjnymi metodami hodowli komórkowych. Podejście immunohistochemiczne obejmuje wykrywanie i kwantyfikację wychwytu 5-bromo-2'-deoksyurydyny (BrdU) przez proliferujące chondrocyty 22. Dodatkowo można przeprowadzić dalsze przetwarzanie tkanek śródstopia, aby umożliwić dalszą analizę ekspresji mRNA (RT-qPCR), analizę białek i sygnalizacji wewnątrzkomórkowej (Western blotting) lub składu lipidów (spektrometria mas). W większości dotychczasowych badań wykorzystuje się zarodkowe kości śródstopia, a nie śródstopie zwierząt po urodzeniu. Chociaż oba modele mogą być pouczające, badanie kości embrionalnych ma kilka zalet: rosną one szybciej i mogą być wykorzystane do badania inicjacji i progresji procesu mineralizacji 23-25.
Ten protokół szczegółowo opisuje zawiłe rozbiory embrionalnych kości śródstopia z tylnej kończyny embrionalnych zarodków mysich w dniu 15 (E15). Ponadto wykazano wzrost i mineralizację anatomicznie odrębnych kości śródstopia.
Protokół
Procedury z udziałem zwierząt były przeprowadzane zgodnie z brytyjską ustawą o zwierzętach (procedury naukowe) z 1986 r., a zwierzęta były utrzymywane zgodnie z opublikowanym przez Ministerstwo Spraw Wewnętrznych Kodeksem postępowania w zakresie trzymania i opieki nad zwierzętami hodowanymi, dostarczanymi lub wykorzystywanymi do celów naukowych.
UWAGA: Eksperymenty przeprowadzone na myszach C57Bl/6J typu dzikiego są dobrze znane i opisane poniżej. Embrionalne kości śródstopia z różnych szczepów myszy mogą być podobnie hodowane in vitro, chociaż ich tempo wzrostu i mineralizacji może różnić się od opisanych w niniejszym dokumencie.
1. Warunki sekcji i przygotowanie narzędzi
- Wszystkie prace związane z przygotowaniem pożywki, sekcjami tkanek i hodowlą należy wykonać w okapie z przepływem laminarnym, aby zapewnić sterylność pożywki i zaczątków zarodka.
- Przed użyciem pozostawić pożywkę do zrównoważenia pożywek i pożywek preparacyjnych przez co najmniej 1 godzinę w inkubatorze o temperaturze 37 °C, 5% CO2 .
- Wysterylizuj nożyczki do rozwarstwiania, pęsety Dumont #5 i Dumont #4 wraz z parą mikronożyczek superFine Vannas (8 cm proste, ostrza 3 mm) przez autoklawowanie. Po autoklawowaniu przed użyciem zanurz sprzęt do preparacji w 70% etanolu.
2. Przygotowanie pożywek preparacyjnych i hodowlanych
- Przygotować podłoże preparacyjne
- Rozcieńczyć α-Minimum Essential (bez nukleozydów, αMEM) w roztworze soli fizjologicznej buforowanej fosforanami (PBS) (1:13) i ponownie zawiesić albuminę surowicy bydlęcej (BSA) w stężeniu 2 mg/ml przed sterylizacją filtracyjną przez filtr strzykawkowy o średnicy 0,22 μm i średnicy 33 mm.
UWAGA: Pożywkę preparacyjną można przygotować, wysterylizować filtrem i przechowywać w porcjach w temperaturze -20 °C przez czas nieokreślony.
- Rozcieńczyć α-Minimum Essential (bez nukleozydów, αMEM) w roztworze soli fizjologicznej buforowanej fosforanami (PBS) (1:13) i ponownie zawiesić albuminę surowicy bydlęcej (BSA) w stężeniu 2 mg/ml przed sterylizacją filtracyjną przez filtr strzykawkowy o średnicy 0,22 μm i średnicy 33 mm.
- Przygotuj pożywkę hodowlaną
- Wyhodować zarodkowe kości śródstopia w 300 μl pożywki hodowlanej (w każdym dołku na 24-dołkowej płytce hodowlanej). Przygotować pożywkę, dodając 0,2% w/v BSA; 5 μg/ml fosforanu kwasu L-askorbinowego; 1 mM β-glicerofosforan (βGP; opcjonalnie – patrz sekcja wyników); 0,05 mg/ml gentamycyny i 1,25 μg amfoterycyny B do αMEM i filtra sterylizować przez filtr strzykawkowy 0,22 μm o średnicy 33 mm.
3. Mysia embrionalna sekcja śródstopia i hodowla
- Ubój ciężarnej myszy, w której znajdują się 15-dniowe zarodki, poprzez zwichnięcie szyjki macicy zgodnie z wytycznymi Ministerstwa Spraw Wewnętrznych w Wielkiej Brytanii.
- Ułóż zwierzę na wznak i zdezynfekuj skórę, spryskując ją 70% etanolem. Za pomocą nożyczek preparacyjnych wykonaj duże nacięcie w linii środkowej, penetrując zarówno skórę, jak i otrzewną, aby odsłonić jamę brzuszną.
- Zlokalizuj dwa rogi macicy zwierzęcia w grzbietowej części jamy ciała. Usuń rogi macicy, najpierw uwalniając każdą macicę z mezometrium poprzez ostrożne nacięcia nożyczkami preparacyjnymi, a następnie na koniec odcinając rogi macicy u ich podstawy. Umieść rogi macicy w podłożu preparacyjnym.
- Oddziel każdy zarodek, przecinając miejsca zagnieżdżenia się wzdłuż rogu macicy i usuń zarodki z ich indywidualnych woreczków za pomocą kleszczy. Usuwanie zarodków przez dekapitację zgodnie z wytycznymi Ministerstwa Spraw Wewnętrznych w Wielkiej Brytanii.
- Po zdezynfekowaniu skóry poprzez spryskanie 70% etanolem, za pomocą mikronożyczek Vannas usuń tylne kończyny z zarodków poprzez nacięcie wokół bliższej części kości udowej. Zapewnia to usunięcie jak największej części tylnej kończyny. Umieść tylne kończyny na szalce Petriego zanurzonej w pożywce preparacyjnej przed wycięciem śródstopia.
- Pod mikroskopem preparacyjnym zacznij usuwać skórę otaczającą stopę zarodkową, ściskając ją i ściągając za pomocą pęsety #5, jednocześnie przytrzymując tylną kończynę stabilnie za pomocą pęsety #4. Najskuteczniej wykonuje się to poprzez chwycenie skóry mniej więcej na poziomie kości piszczelowej i pociągnięcie w kierunku paliczków. Użycie nożyczek na tym etapie do cięcia bardzo cienkiej skóry nie jest wymagane.
- Ostrożnie przytrzymaj stęp stopy embrionalnej pęsetą #4 i usuń pierwszą i piątą kość śródstopia, ściskając w pobliżu stępu za pomocą pęsety #5 i wyrzuć.
- Trzymając stopę w tej samej pozycji, użyj pęsety #5, aby rozbić tkanki łączne między trzema pozostałymi paliczkami i śródstopiem. Włóż końcówkę pęsety #5 do stawu między paliczkami a śródstopiem, aby usunąć paliczki z kości śródstopia.
- Na koniec użyj pęsety #5, aby przerwać tkanki łączne między stępem a śródstopiem. Ponownie umieść końcówkę pęsety #5 w przestrzeni stawowej między stępem a śródstopiem i delikatnie uwolnij kości śródstopia od stępu.
- Delikatnie podnieś wolne kości śródstopia pęsetą #4 i umieść w świeżym podłożu preparacyjnym.
UWAGA: Staranna sekcja powinna dostarczyć 6 kości śródstopia z każdego zarodka. - Po wypreparowaniu wszystkich wymaganych kości śródstopia ostrożnie umieścić kości śródstopia pojedynczo w wstępnie podgrzanych 24-dołkowych płytkach zawierających 300 μl pożywki hodowlanej. Hodowla kości śródstopia w temperaturze 37 °C w inkubatorze o stężeniu 5 % CO2 przez okres do 14 dni.
UWAGA: Nie zmieniaj pożywki kultur E15 do co najmniej 5 dnia hodowli, ponieważ wpływa to na ich zdolność mineralizacji 26. Przyczyny tego są niejasne, ale liniowy wzrost i mineralizacja macierzy mogą być zależne od stymulacji przez czynniki wzrostu uwalniane z kości śródstopia.
4. Analiza i manipulacja posiewami śródstopia
- W dniu sekcji (dzień 0) należy wykonać wstępne pomiary podłużne za pomocą mikroskopu z dołączoną kamerą cyfrową i oprogramowaniem do analizy obrazu. Zmierz długość centralnej strefy mineralizacji, gdy pojawi się ona po kilku dniach hodowli.
- Okresowo, w razie potrzeby, wykonuj dalsze pomiary (zwykle co 2dni) aż do ostatniego dnia posiewu, w którym to momencie kości śródstopia są przetwarzane w zależności od wymaganych wyników (omówionych we wprowadzeniu).
- Uzupełnij pożywkę hodowli narządów śródstopia różnymi czynnikami egzogennymi, np. czynnikami wzrostu, hormonami i środkami farmakologicznymi od 0 dnia hodowli 22,24. We wszystkich badaniach tego rodzaju wymagane jest kontrolowanie nieleczonych kości śródstopia.
UWAGA: Chociaż zaleca się, aby kości kontrolne były równoważne z odnogą przeciwległą, nie stwierdzono żadnych różnic w liniowym wzroście lub potencjale mineralizacji hodowanych E15 2, 3 i 4 kości śródstopia (patrz poniżej, ryc. 2).
Wyniki
Celem niniejszej metody była izolacja embrionalnych kości śródstopia i ich hodowla w celu zbadania podłużnego wzrostu kości oraz mineralizacji ECM. Zastosowanie opisanego tutaj protokołu pozwoliło na pomyślną dysekcję embrionalnych kości śródstopia, co zostało potwierdzone w badaniu za pomocą mikroskopii świetlnej. Pomiary kości śródstopia, przeprowadzone zgodnie z instrukcjami przedstawionymi na Rysunku 1, wykazały ich zdolność do wzrostu wzdłużnego oraz mineralizacji ECM (Rysunki 2 i 3). Mineralizacja macierzy jest najpierw zauważalna w środkowej części trzonu zalążka kostnego i jest łatwo obserwowalna pod mikroskopem świetlnym. Barwienie nie jest wymagane, choć zastosowanie kalceiny może usprawnić wizualizację nowo powstałego minerału.
Dotychczasowe badania z wykorzystaniem embrionalnych kości śródstopia 22,27,28 opierały się na łączeniu wypreparowanych 2.nd, 3.rd i 4.th (trzech środkowych) kości śródstopia, przy założeniu, że wzrost i mineralizacja in vitro są porównywalne. Jednak rozwój kości śródstopia myszy in vivo wykazuje, że w 3.rd i 4.th palcach mineralizacja pojawia się wcześniej niż we wszystkich pozostałych kościach śródstopia i paliczkach 29. Ocena potencjału wzrostu i mineralizacji oddzielnie izolowanych i hodowanych kości śródstopia 2.nd, 3.rd i 4.th z zarodków w dniu E15 nie wykazała istotnych różnic w wyglądzie ani zakresie mineralizacji po 7 dniach hodowli (Rysunek 2). W okresie hodowli nie stwierdzono różnic w procentowym wzroście w stosunku do wartości wyjściowej. Ponieważ nie odnotowano różnic w potencjale mineralizacji, standardowy protokół łączenia 2.nd, 3.rd i 4.th kości śródstopia wydaje się być zasadny w przyszłych badaniach.
Tradycyjnie badacze dodawali βGP do pożywek stosowanych do hodowli embrionalnych kości śródstopia w celu promowania mineralizacji ECM. Wykazano jednak w badaniach hodowli komórkowych, że w przypadku dodania enzymu TNAP do pożywek osteogennych zawierających βGP, dochodzi do ektopowego odkładania minerału hydroksyapatytu nawet w nieobecności komórek 30. Aby zbadać wpływ różnych substratów i agonistów mineralizacji na zdolność do mineralizacji kości śródstopia, hodowano kości śródstopia E15 w pożywkach zawierających szereg suplementów, a obrazy i pomiary długości rejestrowano codziennie. Wyniki wskazały, że kości śródstopia E15 nadal rosną i mineralizują swoją ECM w nieobecności βGP. Kości śródstopia E15 hodowane w pożywkach zawierających wyłącznie kwas askorbinowy wykazały wzrost długości i stopień mineralizacji porównywalny z kośćmi śródstopia hodowanymi w obecności βGP (Rycina 3).
Wykazaliśmy również, że lentiwirusy mogą być wykorzystane do transfekcji egzogennego DNA w hodowlach kości śródstopia. W niniejszym doświadczeniu pomyślnie przeprowadzono transfekcję kości śródstopia w dniu 0 hodowli (i.e. w dniu sekcji), stosując 2 x 10⁶ cząsteczek wirusa zawierających białko GFP (green fluorescent protein) na jedną kość śródstopia. Aby umożliwić transdukcję wirusową, do hodowli jednocześnie dodano polybrene w rozcieńczeniu 1:500. Hodowle inkubowano przez 7 dni, nie wymieniając medium, co jest niezbędne do zajścia mineralizacji kości śródstopia w stadium E15, a następnie inkubowano przez 5 min z barwnikiem 4',6-diamidino-2-phenylindole (DAPI) i poddano bezpośredniej wizualizacji za pomocą mikroskopu konfokalnego (Rysunek 4). Nasze eksperymenty dowodzące koncepcji wyraźnie wskazują na efektywną transdukcję. Wskazane byłoby jednak zbadanie przekrojów przez całą długość kości śródstopia w celu oceny stopnia ich transfekcji oraz skuteczności manipulacji genetycznej.
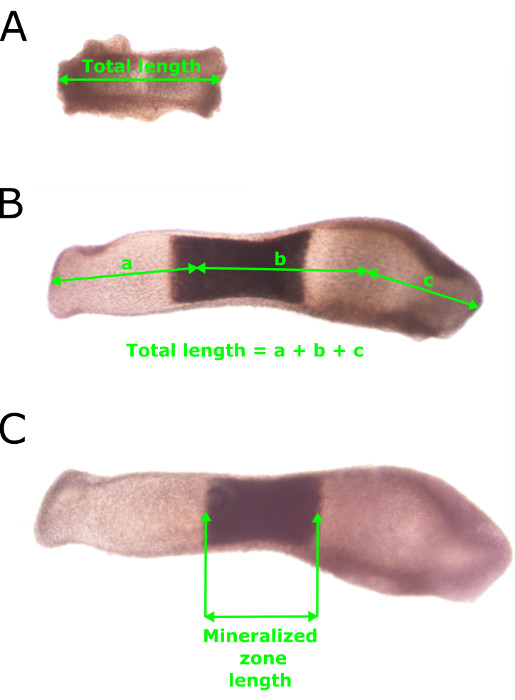
Rycina 1: Standardowa metodologia pomiaru długości i strefy mineralizacji embrionalnych kości śródstopia. (A) Pomiary całkowitej długości kości śródstopia embrionów E15 w dniu 0 hodowli (dzień sekcji), wykonane przez środek kości śródstopia. (B) Pomiary całkowitej długości podłużnej kości śródstopia po siedmiu dniach hodowli. Należy zwrócić uwagę na lekkie zakrzywienie kości śródstopia. (C) Pomiar długości strefy mineralizacji po siedmiu dniach hodowli. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
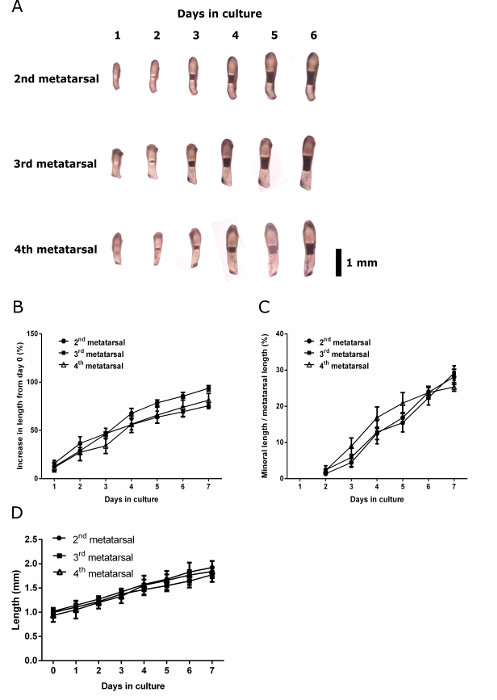
Rysunek 2: Zdolność do wzrostu i mineralizacji anatomicznie odrębnych kości śródstopia zarodków E15. Przeprowadzono obrazowanie i pomiary 2., 3. i 4. kości śródstopia z kończyny tylnej myszy E15. (A) Obrazy seryjne 2., 3. i 4. kości śródstopia w całym okresie hodowli. (B) Procentowy przyrost długości względem dnia 0 w każdym dniu hodowli. (C) Długość zmineralizowana 2., 3. i 4. kości śródstopia w okresie hodowli wyrażona jako procent całkowitej długości kości śródstopia. Dane przedstawiono jako średnią ± błąd standardowy średniej (S.E.M), (n = 6). (D) Długości kości śródstopia myszy C57Bl/6J w każdym dniu hodowli. Dane przedstawiono jako średnią ± odchylenie standardowe (n = 6). Czarny pasek = 1 mm. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
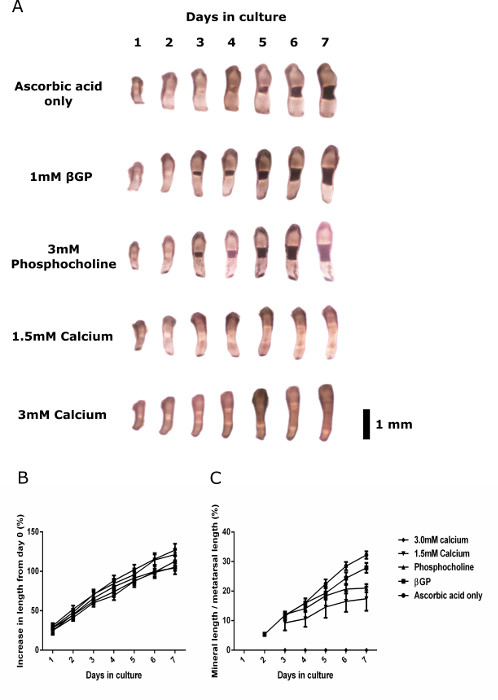
Rycina 3: Zdolność wzrostu i mineralizacji kości śródstopia typu dzikiego w stadium E15 hodowanych w różnych mediach osteogennych. (A) Serie obrazów kości śródstopia hodowanych w mediach zawierających wyłącznie kwas askorbinowy, 1 mM βGP, 3 mM fosfocholinę, 1,5 mM chlorek wapnia lub 3 mM chlorek wapnia. (B) Procentowy przyrost długości kości śródstopia od dnia 0 hodowanych z różnymi suplementami. (C) Długość zmineralizowanej części kości śródstopia hodowanych w różnych mediach wyrażona jako procent całkowitej długości kości śródstopia. Dane przedstawiono jako średnia ± błąd standardowy średniej (S.E.M), (n = 6). Czarny pasek = 1 mm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
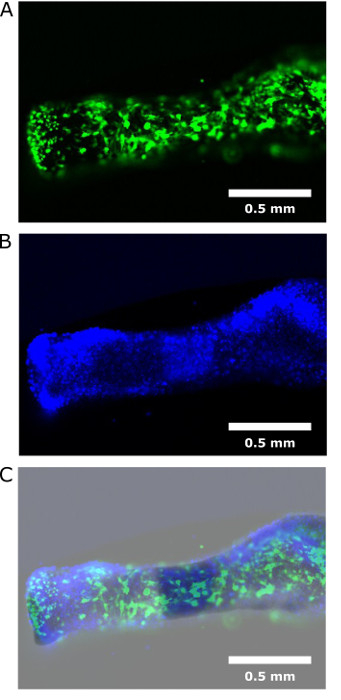
Rysunek 4: Transfekcja kości śródstopia E15 cząsteczkami wirusa GFP. (A) Kości śródstopia E15 zostały poddane transfekcji cząsteczkami wirusa GFP w celu potwierdzenia koncepcji. (B) Kości zabarwiono DAPI w celu wizualizacji DNA. (C) Obrazy z podwójnym barwieniem wykazały pomyślną transfekcję wirusem GFP w całej objętości kości śródstopia. Białe paski = 0,5 mm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
Hodowla mysich embrionalnych kości śródstopia zapewnia wysoce fizjologiczny model wzrostu i mineralizacji endochrzęstnej. Wczesne badania potwierdziły, że śródstopie myszy E15 podlega normalnemu wzorcowi wzrostu i różnicowania szkieletu. Komórki chrząstki (chondrocyty) i kości (osteoblasty i osteoklasty) oraz ich odpowiednie matryce kolagenowe są nie do odróżnienia od tych obserwowanych in vivo. Istnieją jednak pewne uznane ograniczenia tego modelu. Szybkość różnicowania osteoklastów jest upośledzona, podobnie jak wzrost kości (ale nie różnicowanie chrząstki). Wzrost kości jest o około 50% wolniejszy niż obserwowany in vivo i może być spowodowany niedoborem czynników ogólnoustrojowych, które wpływają na wytwarzanie czynników miejscowych (np. IGF-1, BMP itp.) 31. Wiadomo również, że kość jest wrażliwa na środowisko mechaniczne i dotyczy to również hodowanych kości śródstopia, które reagują na zmiany obciążenia mechanicznego 32,33. Dlatego w sytuacjach bez obciążenia, jak opisano w niniejszym protokole, mineralizacja i resorpcja minerałów mogą być zagrożone. Niemniej jednak model śródstopia oferuje możliwość bezpośredniego pomiaru liniowego wzrostu kości, co nie jest możliwe za pomocą systemów hodowli in vitro 2D i 3D.
Przedstawiliśmy wyczerpujący opis protokołu zaangażowanego w sekcję i hodowlę mysich kości śródstopia E15 i rzeczywiście, po raz pierwszy potwierdzamy zasadność łączenia2., 3. i 4. kości śródstopia do eksperymentów.
Kości śródstopia z grupy E17/E18 są powszechnie wykorzystywane do badania mechanizmów wzrostu kości ze względu na ich niezwykły potencjał do wzrostu ex vivo przez długi czas (tj. powyżej 14 dni w hodowli). Są one dobrze ugruntowanym modelem do badania roli czynników wzrostu we wzroście podłużnym zarodka. Ponadto preparacja i hodowla śródstopia po urodzeniu jest powszechnie stosowana w celu nakreślenia mechanizmów otaczających wzrost kości po urodzeniu, ponieważ rozumie się, że wzrost kości po urodzeniu i wzrost kości płodu są regulowane w różny sposób 21. Wzrost kości obserwowany w hodowanych śródstopiu po urodzeniu jest jednak znacznie mniejszy niż obserwowany w zaczątkach embrionalnych 25,34, co ogranicza ich potencjał w badaniach długoterminowych i podkreśla bardziej ogólnoustrojowy wpływ na wzrost kości na tym etapie pourodzeniowym. Rzeczywiście, 3-dniowe śródstopie po urodzeniu myszy jest zazwyczaj najnowszym etapem, który można wykorzystać do uzyskania mierzalnego wzrostu 34.
Tutaj opisujemy nasz protokół izolacji zarodkowych kości śródstopia w E15. Brak minerału hydroksyapaptytu w kościach śródstopia E15 oznacza, że stanowią one bezkonkurencyjny model do badania nie tylko mechanizmów otaczających wzrost kości podłużnej, ale także inicjacji mineralizacji szkieletu. Zmineralizowana macierz końcowej strefy chondrocytów przerostowych stanowi rusztowanie dla atakujących osteoblastów w celu wytworzenia specyficznej dla kości macierzy (osteoidu), która jest następnie mineralizowana, a zatem ta początkowa mineralizacja jest niezbędna do pomyślnego i funkcjonalnego tworzenia kości 35. Rzeczywiście, wiele ostatnich doniesień wykorzystujących kości śródstopia E15 potwierdziło ich unikalną zdolność do badania procesu mineralizacji 28,36,37. Ponadto naukowcy opisali zastosowanie kości śródstopia E15 jako modelu angiogenezy 38, podkreślając potencjał embrionalnych kości śródstopia jako modelu poza środowiskiem wzrostu/mineralizacji kości.
Opisany przez nas protokół wymaga jedynie standardowego sprzętu laboratoryjnego, w tym okapu z przepływem laminarnym, mikroskopu preparacyjnego do przeprowadzenia sekcji oraz inkubatora CO2 do hodowli wyciętych rudymentów. Co więcej, bardzo podstawowa pożywka hodowlana zawierająca αMEM, BSA, antybiotyki, leki przeciwgrzybicze i kwas L-askorbinowy (kofaktor w syntezie hydroksyproliny i hydroksylizyny, dwóch niezbędnych aminokwasów do produkcji kolagenu 39) pozwala uniknąć stosowania nieokreślonych dodatków, takich jak surowice zwierzęce. Tradycyjnie, badacze dodawali βGP do pożywki używanej do hodowli embrionalnych kości śródstopia, ale jak ujawniono w naszych wynikach, użycie dodatkowego źródła fosforanów nie jest wymagane do pomyślnej mineralizacji w tym systemie hodowli. Jest to ważne odkrycie w naszym dążeniu do zrozumienia mechanizmów leżących u podstaw mineralizacji ECM.
Śródstopie zostało wcześniej zakażone adenowirusami zawierającymi dominująco-ujemne formy Smad2 w celu zbadania roli przekształcającego czynnika wzrostu β w regulacji rozwoju kości długich 40. W tym miejscu ujawniamy również udaną transfekcję kości śródstopia typu dzikiego E15 z cząsteczkami wirusa GFP, co wskazuje, że techniki lentiwirusowe można łatwo zastosować do manipulowania ekspresją genów w kulturach śródstopia. Podobnie, system hodowli narządów śródstopia jest doskonałym modelem, w którym można porównać wzrost kości genetycznie zmienionych myszy, aby lepiej zrozumieć rolę konkretnego genu w procesie wzrostu kości. W naszych poprzednich badaniach wykorzystaliśmy system hodowli narządów śródstopia w celu określenia roli supresora sygnalizacji cytokin-2 (SOCS2) we wzroście kości śródchrzęstnej. Wykorzystując kości śródstopia myszy z niedoborem SOCS2, wykazaliśmy, że hormon wzrostu jest w stanie symulować ich wzrost podłużny niezależnie od insulinopodobnego czynnika wzrostu (IGF-1), w przeciwieństwie do kości śródstopia typu dzikiego, które nie reagują na leczenie hormonem wzrostu 34,41. Podkreśla to stopień, w jakim można manipulować posiewami śródstopia w celu zbadania wpływu różnych genów i/lub czynników egzogennych na wzrost kości śródchrzęstnej.
Podsumowując, szczegółowo opisaliśmy metodę udanej ekstrakcji i hodowli embrionalnych kości śródstopia, którą można manipulować i badać za pomocą różnych analiz. Ten model ex vivo utrzymuje interakcje komórka-komórka i komórka-macierz, a także zawiera chondrocyty w różnych fazach chondrogenezy, zapewniając w ten sposób bardziej fizjologiczny model niż komórki w hodowli jednowarstwowej lub 3D. Posiewy narządów śródstopia są zatem unikalnym modelem do badania mechanizmów molekularnych odpowiedzialnych za kostnienie śródchrzęstne i mają zasadnicze znaczenie dla lepszego zrozumienia zarówno fizjologii, jak i patofizjologii kości
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Jesteśmy wdzięczni Radzie ds. Badań nad Biotechnologią i Naukami Biologicznymi (BBSRC) za finansowanie DH (BB/J01446X/1), CF & VEM (Institute Strategic Programme Grant Funding BB/J004316/1). Dziękujemy również Arthritis Research UK za finansowanie dla KAS (20413). Dziękujemy Pani Elaine Seawright za jej pomoc w szczegółowo opisanych eksperymentach, dr Neilowi Mackenzie za pomoc w technikach lentiwirusowych oraz Panu Darrenowi Smithowi i Panu Alexowi Robertsonowi (Roslin Institute BRF) za ich pomoc w badaniach na zwierzętach.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Nożyczki preparacyjne | World Precision Instruments | 14393 | Autoklaw sterylizować przed użyciem |
| Pęseta Dumont #5 | World Precision Instruments | 500342 | Autoklaw sterylizować przed użyciem |
| Pęseta Dumont #4 | World Precision Instruments | 500339 | Autoklaw sterylizować przed użyciem |
| Nożyczki SuperFine Vannas | World Precision Instruments | ||
| Etanol absolutny | Fisher Scientific | E/0650DF/17 | Rozcieńczony do 70% v/v w dH2O |
| α-MEM bez nukleozydów | Thermo Fischer Scientific | ||
| Albumina surowicy bydlęcej | Sigma Aldrich | A3059 | |
| Filtry strzykawkowe (0,22 μ m) Czterowodny sól wapniowo-chlorek fosforoniny o średnicy 33 mm | Merck Millipore | SLGP033RS | |
| Tetrahydrat chlorku fosfocholiny | Sigma Aldrich | P0378 | Dodać bezpośrednio do pożywki przed eksperymentem |
| Kwas L-askorbinowy-2-fosforan | Sigma Aldrich | A8960 | Uzupełnić zapas w dawce 5 mg / ml i podwielokrotność w -20 ° C |
| Chlorek wapnia dwuwodny | Sigma Aldrich | C5080 | Uzupełnij zapas w 150 mM i podwielokrotność w -20 & deg; C |
| β-glicerofosforan sól disodowa hydrat Sigma | Aldrich | G9422 | Uzupełnij zapas w 1mM i podwielokrotność w -20 ° C |
| Gentamycyna | Thermo Fischer Scientific | ||
| Amfoterycyna B | Thermo Fischer Scientific | ||
| Płytki 24-dołkowe poddane hodowli komórkowych Nunc | Thermo Fischer Scientific | ||
| Polybrene | Sigma Aldrich | H9268 | |
| DAPI | Thermo Fischer Scientific | Zobacz materiał D3571 |
Bibliografia
- Farquharson, C., Staines, K. The skeleton: no bones about it. J. Endocrinol. 211, 107-108 (2011).
- Berendsen, A. D., Olsen, B. R. Bone development. Bone. 80, 14-18 (2015).
- Kronenberg, H. M. Developmental regulation of the growth plate. Nature. 423, 332-336 (2003).
- Komori, T. Regulation of bone development and extracellular matrix protein genes by RUNX2. Cell Tissue Res. 339, 189-195 (2010).
- de Crombrugghe, B., Lefebvre, W. Regulatory mechanisms in the pathways of cartilage and bone formation. Curr. Opin. Cell Biol. 13, 721-727 (2001).
- Hall, B. K. Bones and Cartilage: Developmental and Evolutionary Skeletal Biology. , Elsevier Academic Press. (2005).
- Farquharson, C., Jefferies, D. Chondrocytes and longitudinal bone growth: The development of tibial dyschondroplasia. Poult. Sci. 79, 994-1004 (2000).
- Cooper, K. L., et al. Multiple phases of chondrocyte enlargement underlie differences in skeletal proportions. Nature. 495, 375-378 (2013).
- Wuthier, R. E., Lipscomb, G. F. Matrix vesicles: structure, composition, formation and function in calcification. Front. Biosci. 16, 2812(2011).
- Roberts, S., Narisawa, S., Harmey, D., Millan, J. L., Farquharson, C. Functional involvement of PHOSPHO1 in matrix vesicle-mediated skeletal. J. Bone Miner. Res. 22, 617-627 (2007).
- Cui, L., Houston, D. A., Farquharson, C., MacRae, V. E. Characterisation of matrix vesicles in skeletal and soft tissue mineralisation. Bone. 87, 147-158 (2016).
- Brighton, C. T. Structure and Function of Growth Plate. Clin. Orthop. , 22-32 (1978).
- Shim, K. S. Pubertal growth and epiphyseal fusion. Annals of pediatric endocrinology & metabolism. 20, 8-12 (2015).
- Staines, K. A., Pollard, A. S., McGonnell, I. M., Farquharson, C., Pitsillides, A. A. Cartilage to bone transitions in health and disease. J. Endocrinol. 219, R1-R12 (2013).
- Hunziker, E. B., Schenk, R. K., Cruzorive, L. M. Quantitation of Chondrocyte Performance in Growth-Plate Cartilage During Longitudinal Bone-Growth. Journal of Bone and Joint Surgery-American. 69A, 162-173 (1987).
- Breur, G. J., Vanenkevort, B. A., Farnum, C. E., Wilsman, N. J. Linear Relationship Between The Volume Of Hypertrophic Chondrocytes And The Rate Of Longitudinal Bone-Growth In Growth Plates. J. Orthop. Res. 9, 348-359 (1991).
- Ma, B., et al. Gene expression profiling of dedifferentiated human articular chondrocytes in monolayer culture. Osteoarthritis Cartilage. 21, 599-603 (2013).
- Thesingh, C. W., Burger, E. H. The role of mesenchyme in embryonic long bones as early deposition site for osteoclast progenitor cells. Dev. Biol. 95, 429-438 (1983).
- Scheven, B. A., Hamilton, N. J. Longitudinal bone growth in vitro: effects of insulin-like growth factor I and growth hormone. Acta endocrinologica. 124, 602-607 (1991).
- Coxam, V., Miller, M. A., Bowman, M. B., Miller, S. C. Ontogenesis of IGF regulation of longitudinal bone growth in rat metatarsal rudiments cultured in serum-free medium. Archives of physiology and biochemistry. 104, 173-179 (1996).
- Andrade, A. C., Chrysis, D., Audi, L., Nilsson, O. Methods to study cartilage and bone development. Endocr Dev. 21, 52-66 (2011).
- Mushtaq, T., Bijman, P., Ahmed, S. F., Farquharson, C. Insulin-like growth factor-I augments chondrocyte hypertrophy and reverses glucocorticoid-mediated growth retardation in fetal mice metatarsal cultures. Endocrinology. 145, 2478-2486 (2004).
- Owen, H. C., Miner, J. N., Ahmed, S. F., Farquharson, C. The growth plate sparing effects of the selective glucocorticoid receptor modulator, AL-438. Mol. Cell. Endocrinol. 264, 164-170 (2007).
- MacRae, V. E., Farquharson, C., Ahmed, S. F. The restricted potential for recovery of growth plate chondrogenesis and longitudinal bone growth following exposure to pro-inflammatory cytokines. J. Endocrinol. 189, 319-328 (2006).
- Chagin, A. S., Karimian, E., Sundstrom, K., Eriksson, E., Savendahl, L. Catch-up growth after dexamethasone withdrawal occurs in cultured postnatal rat metatarsal bones. J. Endocrinol. 204, 21-29 (2010).
- Haaijman, A., et al. Inhibition of terminal chondrocyte differentiation by bone morphogenetic protein 7 (OP-1) in vitro depends on the periarticular region but is independent of parathyroid hormone-related peptide. Bone. 25, 397-404 (1999).
- Haaijman, A., Dsouza, R. N., Bronckers, A., Goei, S. W., Burger, E. H. OP-1 (BMP-7) affects mRNA expression of type 1, II, X collagen, and matrix Gla protein in ossifying long bones in vitro. J. Bone Miner. Res. 12, 1815-1823 (1997).
- Staines, K. A., et al. MEPE is a novel regulator of growth plate cartilage mineralization. Bone. 51, 418-430 (2012).
- Kaufman, M. The atlas of mouse development. , 3, Academic Press. (1992).
- Boskey, A. L., Roy, R. Cell Culture Systems for Studies of Bone and Tooth Mineralization. Chem. Rev. 108, 4716-4733 (2008).
- Minkin, C., et al. Skeletal development and formation of osteoclast-like cells from in situ progenitors in fetal mouse metatarsals cultured in chemically defined. Bone Miner. 12, 141-155 (1991).
- Kleinnulend, J., Veldhuijzen, J. P., Burger, E. H. Increased calcification of growth plate cartilage as a result of compressive force in vitro. Arthritis Rheum. 29, 1002-1009 (1986).
- Kleinnulend, J., Veldhuijzen, J. P., Vanstrien, M. E., Dejong, M., Burger, E. H. Inhibition of osteoclastic bone-resorption by mechanical stimulation in vitro. Arthritis Rheum. 33, 66-72 (1990).
- Dobie, R., et al. Increased linear bone growth by GH in the absence of SOCS2 is independent of IGF-1. J. Cell. Physiol. 230, 2796-2806 (2015).
- Heilig, J., Paulsson, M., Zaucke, F. Insulin-like growth factor 1 receptor (IGF1R) signaling regulates osterix expression and cartilage matrix mineralization during endochondral ossification. Bone. 83, 48-57 (2016).
- Huesa, C., et al. The functional co-operativity of tissue-nonspecific alkaline phosphatase (TNAP) and PHOSPHO1 during initiation of skeletal mineralization. Biochemistry and Biophysics Reports. 4, 196-201 (2015).
- Staines, K. A., et al. Endochondral Growth Defect and Deployment of Transient Chondrocyte Behaviors Underlie Osteoarthritis Onset in a Natural Murine Model. Arthritis & Rheumatology. 68, 880-891 (2016).
- Song, W., et al. The fetal mouse metatarsal bone explant as a model of angiogenesis. Nature Protocols. 10, 1459-1473 (2015).
- Libby, P., Aikawa, M. Vitamin C, collagen, and cracks in the plaque. Circulation. 105, 1396-1398 (2002).
- Alvarez, J., Serra, R. Unique and redundant roles of Smad3 in TGF-beta-mediated regulation of long bone development in organ culture. Dev. Dyn. 230, 685-699 (2004).
- Pass, C., MacRae, V. E., Huesa, C., Ahmed, S. F., Farquharson, C. SOCS2 is the critical regulator of GH action in murine growth plate chondrogenesis. J. Bone Miner. Res. 27, 1055-1066 (2012).
Przedruki i uprawnienia
