Wirusy lub pęcherzyki zewnątrzkomórkowe były wychwytywane immunologicznie za pomocą nanocząsteczek magnetycznych 15 nm sprzężonych z przeciwciałami rozpoznającymi antygeny powierzchniowe. Uchwycone wiriony lub pęcherzyki znakowano fluorescencyjnymi przeciwciałami przeciwko innym antygenom powierzchniowym. Powstałe kompleksy rozdzielono w silnym polu magnetycznym i przeanalizowano za pomocą konwencjonalnych cytometrów przepływowych wyzwalanych fluorescencją.
Artykuł metodologiczny
Wirometria przepływowa do analizy widm antygenowych wirionów i pęcherzyków zewnątrzkomórkowych
W tym artykule
Podsumowanie
Streszczenie
Komórki uwalniają małe pęcherzyki zewnątrzkomórkowe (EV) do otaczających mediów. Po infekcji wirusowej komórki uwalniają również wiriony, które mają ten sam rozmiar co niektóre EV. Zarówno wiriony, jak i EV przenoszą białka komórek, które je wygenerowały i są antygenowo niejednorodne. Pomimo swojej różnorodności, zarówno wirusy, jak i pojazdy elektryczne charakteryzowały się głównie analizą masową. W tym miejscu opisujemy oryginalną metodę wysokoprzepustową opartą na nanotechnologii, która umożliwia charakterystykę antygenów na pojedynczych małych cząstkach za pomocą zwykłych cytometrów przepływowych. Wirusy lub pęcherzyki zewnątrzkomórkowe zostały wychwycone immunologicznie za pomocą nanocząstek magnetycznych (MNP) o długości 15 nm sprzężonych z przeciwciałami rozpoznającymi jeden z antygenów powierzchniowych. Uchwycone wiriony lub pęcherzyki inkubowano z przeciwciałami fluorescencyjnymi przeciwko innym antygenom powierzchniowym. Powstałe kompleksy oddzielono na kolumnach magnetycznych od niezwiązanych przeciwciał i przeanalizowano za pomocą konwencjonalnych cytometrów przepływowych wyzwalanych przy fluorescencji. Metoda ta ma szerokie zastosowanie i może być stosowana do charakteryzowania składu antygenowego dowolnych wirusowych i niewirusowych małych cząstek wytwarzanych przez komórki in vivo i in vitro. W tym miejscu podajemy przykłady zastosowania tej metody do oceny rozkładu markerów komórek gospodarza na poszczególnych cząsteczkach HIV-1, do badania dojrzewania poszczególnych wirionów dengi (DENV) oraz do badania pęcherzyków zewnątrzkomórkowych uwalnianych do krwiobiegu.
Wprowadzenie
Komórki w organizmach wielokomórkowych mają wiele indywidualnych cech, które mogą być albo unikalne dla danej komórki, albo przynajmniej należeć do unikalnych grup komórek. Nawet hodowane sklonowane komórki wykazują indywidualne cechy, o czym świadczy ich zróżnicowana morfologia. Indywidualność komórki znajduje również odzwierciedlenie w wytwarzanych przez nią produktach. W przypadku infekcji wirusowej cząsteczki wirusa mogą przenosić białka z komórek, które je wyprodukowały. Na przykład w przypadku wirusa HIV wiele białek komórek gospodarza jest osadzonych w otoczce wirusa, a wirusy wytwarzane przez różne komórki mogą przenosić te charakterystyczne białka 1,2 lub "sygnatury komórkowe".
Nawet bez infekcji, komórki uwalniają do otaczających mediów małe pęcherzyki zewnątrzkomórkowe (EV). Biogeneza tych pęcherzyków i ich struktura w wielu przypadkach przypomina biogenezę wirusów, zwłaszcza retrowirusów. W ostatnich latach stało się jasne, że pojazdy elektryczne, które początkowo były uważane za "pył płytkowy" 3, stanowią ważny fizjologiczny system komunikacji między komórkami. Wraz z dwoma innymi systemami komunikacji międzykomórkowej, a mianowicie interakcjami kontaktowymi komórka-komórka i uwolnionymi rozpuszczalnymi cząsteczkami, EV koordynują normalną fizjologię i są zmieniane w różnych patologiach 4,5 w tym infekcje wirusowe 6,7.
Chociaż zarówno uwolnione cząsteczki wirusa, jak i pęcherzyki zewnątrzkomórkowe są bardzo różnorodne, charakteryzują się głównie analizą masową, w której gubi się ich indywidualne cechy. Metoda podobna do cytometrii przepływowej, która fenotypuje komórki na podstawie różnych antygenów powierzchniowych, jest potrzebna do scharakteryzowania pojedynczych cząstek wirusowych i wirusopodobnych. Niestety, EV lub małe wiriony nie mogą być analizowane przy użyciu standardowych metod cytometrii przepływowej, ponieważ są zbyt małe, aby wygenerować sygnał rozpraszający światło, na którym opiera się większość cytometrów do wyzwalania. Aby obejść to ograniczenie, można zastosować wyzwalanie fluorescencyjne. Jeśli jednak EV lub wiriony są barwione przeciwciałami fluorescencyjnymi, trudno jest je odróżnić od wolnych przeciwciał i ich agregatów ze względu na ich podobną fluorescencję i porównywalne rozmiary.
Ostatnio opracowaliśmy opartą na nanotechnologii metodę wysokiej przepustowości, która pozwala na charakteryzację antygenów na pojedynczych małych cząstkach za pomocą cytometrów o regularnym przepływie 8,9. Używamy MNP do immunologicznego wychwytywania interesujących nas cząstek, jak to zostało opisane przez inne grupy dla różnych zastosowań 10,11,12,13; Jednak nasza nowatorska technika pozwala na wychwytywanie pojedynczych określonych celów, a następnie fenotypowanie tych wychwyconych cząstek za pomocą cytometrii przepływowej z wykorzystaniem wyzwalania fluorescencji, a nie rozpraszania światła, bez zakłóceń ze strony swobodnie unoszących się przeciwciał. Metoda ta ma szerokie zastosowanie i może być stosowana do charakteryzowania składu antygenowego dowolnej wirusowej i niewirusowej małej cząstki wytwarzanej przez komórki in vivo i in vitro, pod warunkiem dostępności specyficznych przeciwciał fluorescencyjnych przeciwko antygenom powierzchniowym. Zastosowaliśmy już tę technikę do zbadania kilku problemów biologicznych.
W szczególności oceniliśmy rozkład markerów komórek gospodarza na poszczególnych cząsteczkach HIV-1 9, badaliśmy dojrzewanie poszczególnych wirusów dengi (DENV) na podstawie analizy ich białek powierzchniowych 14 i badaliśmy EV uwalniane do krwiobiegu zdrowych ochotników i pacjentów z ostrym zespołem wieńcowym (ACS). Chociaż opiera się na podobnej zasadzie, zastosowanie nowej techniki wymagało opracowania konkretnych protokołów, które opisano poniżej.
Protokół
1. Sprzężenie nanocząstek magnetycznych (MNP)
- Stosować komercyjną procedurę sprzęgania i odczynniki do łączenia MNP z przeciwciałami (Abs) (zwykle 1 mg). Stosuje się nanocząstki tlenku żelaza z kwasem karboksylowym jako grupami reaktywnymi.
- Jeśli przeciwciała mają objętość większą niż 0,5 ml, należy skoncentrować za pomocą koncentratora 100K. Wirować z prędkością 2 000 x g przez 3-5 minut.
- Na zakończenie procedury, po dodaniu 10 μl buforu hartującego, przenieść MNP do probówki o wymiarach 12 mm x 75 mm i dodać 3 ml buforu do przemywania / przechowywania. Umieścić rurkę w środkowym otworze separatora magnetycznego i pozostawić na noc w temperaturze 4 °C.
- Sprawdź, czy wszystkie MNP zebrały się z boku probówki, a następnie ostrożnie odpipetuj cały płyn. Dodaj 3 ml świeżego buforu do mycia/przechowywania i umieść z powrotem w magnesie.
- Po kilku godzinach sprawdź, czy MNP zostały zebrane z boku probówki, a następnie odpipetuj płyn. Użyć 2 ml buforu do przemywania/przechowywania w celu ponownego zawieszenia MNP i przechowywać w temperaturze 4 °C.
- Sprawdzić, czy Abs są sprzężone z MNP, znakując je odpowiednim fluorescencyjnym fragmentem przeciwciała Fab (np. kozim przeciwciałem anty-mysim, jeśli używa się mysiego monoklonalnego Ab do wychwytywania, jak opisano w sekcji 2) i uruchomić na cytometrze przepływowym.
2. Znakowanie przeciwciał sprzężonych z MNP
- Połączyć 60 μl (3,9 x 10¹² cząstek) MNP (na warunek) i 5 μl (z 200 μg/ml roztworu handlowego) znakowane fragmenty Fab, specyficzne dla izotypu wychwytywanego Ab w probówce do mikrowirówki o pojemności 1,5 ml.
- Inkubować w temperaturze pokojowej (RT) przez 30 minut z ciągłym mieszaniem.
- Wstępnie zwilżyć koncentrator 100K 300 μl soli fizjologicznej buforowanej fosforanami (PBS) i wirować w mikrowirówce przy 1 500 x g przez 5 minut.
- Oczyść oznakowane kompleksy na kolumnie 100K. Wirować mieszaninę z kroku 2.2 w mikrowirówce o stężeniu 1 500 x g przez 5 minut, przemyć 200 μl PBS i odzyskać początkową objętość.
3. Użycie znakowanych kompleksów Ab-MNP do wychwytywania interesujących cząsteczek (wirusów lub EV)
- Inkubować wstępnie znakowane MNP 60 μl (3,9 x 10¹² cząstek) z preparatem HIV (60 μl) lub EV (100 μl).
- Przygotuj preparaty EV różnymi metodami. Tutaj oczyść EV na gradientach sacharozy, zbierz je z osocza ubogiego w płytki krwi za pomocą odczynników do wytrącania egzosomów lub wyizoluj bezpośrednio z osocza 8.
UWAGA: Optymalne proporcje muszą być określone dla każdego eksperymentu i są zależne od stężenia wirusa/EV w preparacie. Frakcja MNP-Ab powinna być o ~106 wyższa w stosunku do stężenia frakcji wirusa/EV.
- Przygotuj preparaty EV różnymi metodami. Tutaj oczyść EV na gradientach sacharozy, zbierz je z osocza ubogiego w płytki krwi za pomocą odczynników do wytrącania egzosomów lub wyizoluj bezpośrednio z osocza 8.
- Inkubować 40 minut w temperaturze 37 °C z delikatnym mieszaniem w przypadku wirusów lub 1 godzinę w temperaturze 4 °C w przypadku pojazdów elektrycznych.
- Dodaj 2,5% mysiej IgG / ludzkiej IgG, aby zablokować wiązanie Fc, delikatnie wirować, inkubować 3-5 minut w temperaturze pokojowej.
- Dodać zalecane przez producenta lub ograniczone stężenia każdego wykrytego Abs i inkubować dodatkowe 20 minut w temperaturze pokojowej.
4. Oddzielanie wirionów (lub EV) wychwyconych przez MNP od niezwiązanych przeciwciał za pomocą kolumn magnetycznych
- Przygotuj magnetyczną kolumnę separacyjną do użycia, umieszczając ją w magnesie separatora.
- Wstępnie zwilżyć kolumnę 500 μl buforu do przemywania (2 mM kwasu etylenodiaminotetraoctowego (EDTA), 0,5% albuminy surowicy bydlęcej (BSA) w PBS). Pozwolić, aby bufor płuczący przepłynął przez kolumnę.
- Dodaj kompleksy MNP-wirus/MNP-EV do kolumny i pozwól, aby cała ciecz przez nią przepłynęła. Dodać 500 μl buforu do płukania do kolumny, pozwalając na przejście całej objętości.
- Powtórz mycie buforem do płukania jeszcze 2 razy.
- Wyjmij kolumnę z magnesu i umieść ją w probówce o wymiarach 12 mm x 75 mm w celu zebrania zatrzymanych kompleksów MNP-wirus/MNP-EV. Pozostaw kolumnę w rurze z dala od magnesu na 3 minuty. Dodaj 200 μl PBS i pozwól kulkom spłynąć grawitacyjnie, dodaj kolejne 200 μl PBS i po elucji utrwal 200 μl 4% paraformaldehydu.
UWAGA: Paraformaldehyd jest podejrzewany jako czynnik rakotwórczy i należy się z nim obchodzić w przewiewnym kapturze i należy nosić rękawice. - Aby określić ilościowo pojedyncze wiriony/EV, użyj ustawień wolumetrycznych na próbniku o wysokiej przepustowości (HTS) lub tuż przed akwizycją dodaj dobrze wymieszane kulki cytometrii przepływowej.
5. Analiza wirusów/EV przechwyconych przez MNP za pomocą cytometru przepływowego
- Rozgrzej cytometr przepływowy przez 30 minut.
- Uruchom koraliki kontroli jakości.
- Ustaw próg fluorescencji MNP lub znakowanych wirusów/EV. Użyj PBS z filtrem 0,22 μm jako progu, aby zmniejszyć "szum" tła. Ustaw próg, dostosowując napięcie PMT na poziomie, na którym filtrowany PBS nie daje żadnych zdarzeń lub daje bardzo mało zdarzeń.
- Uruchamiaj próbki na niskim poziomie. (Użyj dodatkowego filtra liniowego 0,04 μm dla płynu osłonowego umieszczonego szeregowo za standardowym filtrem osłonowym 0,2 μm, aby jeszcze bardziej wyeliminować fałszywe zdarzenia).
6. Ocena efektywności przechwytywania
- Wychwytywać fluorescencyjnie znakowane EV lub HIV za pomocą MNP-Abs, jak opisano w 3.1, 3.2. (EV mogą być oznaczone barwnikiem membranowym lub za pomocą ich ładunku 15; HIV może być oznaczony za pomocą barwnika kodowanego genowo 16, lub za pomocą barwnika błonowego 12,17).
- Przygotować kolumnę separacji magnetycznej zgodnie z opisem w (4.1-4.2).
- Dodaj kompleksy MNP-wirus/MNP-EV do kolumny i pozwól, aby cała ciecz przepłynęła (przepływ przez frakcję). Zbierz przepływ przez frakcję w probówce.
- Postępować z frakcją zatrzymaną na kolumnie, jak opisano w (4.4-4.5).
- Powtórzyć procedurę wychwytywania dla przepływu frakcji z 6.3 z późniejszym oddzieleniem (4.1-4.5).
- Przeanalizuj zatrzymane frakcje z pierwszego i drugiego wychwytu, uruchamiając je na cytometrze, który jest ustawiony na wyzwalanie na fluorescencyjnym etykiecie EV lub HIV. Aby ocenić efektywność, porównaj liczbę zdarzeń w obu frakcjach.
7. Dostosowanie protokołu do konkretnych zadań
UWAGA: Podczas gdy protokół może być stosowany do analizy HIV i EV, jak opisano powyżej, do analizy DENV powinny zostać wprowadzone następujące modyfikacje:
- Inkubować wiriony z 1 μM DiI w ciemności przez 30 minut w temperaturze pokojowej. Po inkubacji oczyścić wybarwionego wirusa przez odwirowanie w pożywce o gradinie gęstości (10%, 20%, 25% i 35%) przy 240 000 x g przez 1,5 godziny w temperaturze 4 °C bez przerwy. Zbierz frakcję między warstwami średnimi gradientu gęstości od 20% do 25% 14.
- Inkubować DiI znakowane DENV 1 x 10⁷ (60 μl) z zalecanymi przez producenta lub ograniczonymi stężeniami detekcji Ab w obecności 2,5% mysiej IgG przez 20 minut w RT.
- Inkubować mieszaninę z wstępnie znakowanymi 60 μl (3,9 x 10¹² cząstek) kompleksów Ab MNP-capture przez 40 minut w temperaturze 37 °C, delikatnie mieszając.
- Oddziel wynikowe kompleksy z niezwiązanych Abs na kolumnach magnetycznych, jak opisano powyżej, i przeanalizuj na cytometrze przepływowym.
Wyniki
Selektywne wychwytywanie antygenów komórkowych przez wiriony HIV-1
Dzięki „wirometrii przepływowej” możliwe jest obecnie obrazowanie antygenów komórkowych na pojedynczych cząsteczkach wirusów. Jako przykład przeanalizowano dwa antygeny komórkowe przenoszone przez HIV-1: LFA-1 i HLA-DR. Wcześniej dwa te antygeny zidentyfikowano w preparatach HIV-1 analizowanych zbiorczo 1. Przygotowano MNP sprzężone z jednym z przeciwciał przeciwko białku Env HIV, VRC01, i za pomocą tych MNP wyizolowano wiriony HIV-1 (HIV-1LAI.04 lub HIV-1SF162 produkowane w monocytach krwi obwodowej (PBMC)). Dodatkowo wiriony te znakowano przeciwciałem 2G12, innym przeciwciałem anty-Env. Wirometria przepływowa wykazała wysoką heterogenność wirionów HIV-1 pod względem obecności LFA-1 i HLA-DR. Średnio 16,7 ±2,0% (n = 6) i 8,6 ±0,3% (n = 3) wirionów HIV-1LAI.04 przenosiło odpowiednio LFA-1 i HLA-DR. Tylko 4,8 ±0,6% (n = 3) wszystkich wirionów było pozytywnych pod kątem obu antygenów. W przypadku drugiego szczepu HIV-1, HIV-1SF162, antygeny te były obecne odpowiednio na 20,0 ±4,4% (n = 6) i 10,8 ±1,3% (n = 6) wirionów, natomiast oba antygeny przenosiło 6,5 ±0,4% (Rycina 1).
Rozkład białek komórkowych zależał od rodzaju komórek, w których replikował się wirus. Zainfekowane HIV komórki Jurkat produkowały wiriony różniące się antygenowo od tych produkowanych przez zainfekowane PBMC. Wiriony HIV-1LAI 0.4 produkowane przez komórki Jurkat zawierały odpowiednio 1,6 ±1,4% (n = 3) LFA-1 oraz 1,6±0,7% (n = 4) HLA-DR. W przypadku wirionów HIV-1SF162 produkowanych w komórkach Jurkat parametry te wynosiły odpowiednio 7,2 ±2,5% (n = 3) oraz 5,6 ±2,7% (n = 4). Zatem skład antygenowy (przynajmniej w odniesieniu do HLA-DR i LFA-1) był różny dla HIV-1LAI.04 produkowanego przez dwa różne typy komórek (p <0,02).
Wirocytometria przepływowa w ocenie wirusa dengi
Dojrzewanie DENV wiąże się z ekspresją białka prM na wirionach. Zastosowaliśmy wirometrię przepływową, aby ocenić, jaka frakcja DENV produkowanych w komórkach BHK-1 oraz w komórkach LoVo stanowi wirusy dojrzałe. Wiriony barwiono lipidowym barwnikiem DiI. Analiza poszczególnych wychwyconych wirionów wykazała obecność prM w 48,2 ±5,3% (n = 8) cząsteczek DENV. W przeciwieństwie do tego, 84,5 ±3,4% (n = 4) DENV produkowanych w komórkach LoVo posiadało prM. Pozostałe wiriony, odpowiednio 51,8 ±5,3% (n = 8) oraz 15,5 ±3,4% (n = 4), były prM-ujemne (Ryc. 2). Zatem wirometria przepływowa może być wykorzystana do odróżnienia w pełni dojrzałych pojedynczych cząsteczek DENV od niedojrzałych (lub częściowo dojrzałych) wirionów DENV.
Pęcherzyki zewnątrzkomórkowe uwalniane do krwiobiegu zdrowych ochotników oraz pacjentów z ostrym zespołem wieńcowym (ACS)
Aby zbadać różne podgrupy EV u pacjentów z ACS oraz u zdrowych osób z grupy kontrolnej, wyizolowano EV z osocza ubogopłytkowego (PPP) za pomocą fluorescencyjnych MNP sprzężonych z przeciwciałami przeciwko CD31, CD41a lub CD63. EV wychwycone przez CD31-MNP barwiono pod kątem CD41a i CD63, EV wychwycone przez CD41a-MNP barwiono pod kątem CD31 i CD63, a EV wychwycone przez CD63-MNP barwiono pod kątem CD31 i CD41a (Rysunek 3).
Liczba EV uchwyconych przez CD31-MNPs i wykazujących dodatni wynik dla jednego lub dwóch przeciwciał detekcyjnych u pacjentów z ACS wynosiła 3,359 [2,328; 5,472] EVs/µl w porównaniu z 1,272 [714; 2,157] EVs/µl u zdrowych ochotników (p = 0.001). Całkowita liczba EV uchwyconych przez CD63 u pacjentów z ACS w porównaniu ze zdrowymi ochotnikami wynosiła 3,541 [1,318; 5,173] EVs/µl vs. 806 [488; 2,112] EVs/µl (p = 0.007). W osoczu pacjentów z ACS liczba EV uchwyconych przez CD41a-MNPs wynosiła 4,752 [3,238; 7,173] EVs/µl, podczas gdy w osoczu zdrowych ochotników liczba ta była znacząco niższa i wynosiła 2,623 [1,927; 4,188] EVs/µl (p = 0.015). Ogólnie nasze wyniki wskazują, że choć liczba EV była w większości zwiększona u pacjentów z ACS, skala tego wzrostu różniła się w zależności od subpopulacji EV.
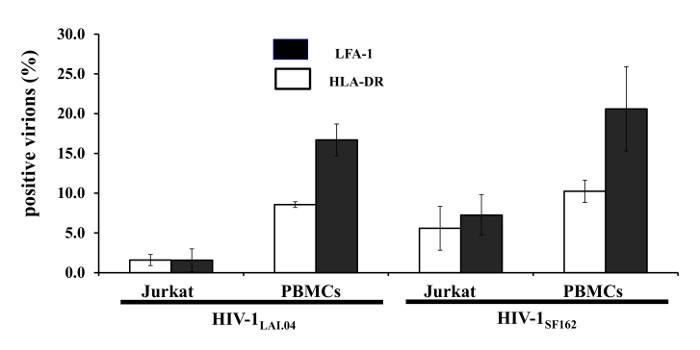
Rysunek 1: Selektywna inkorporacja antygenów komórkowych do wirionów HIV-1 replikujących się w różnych typach komórek. Wiriony HIV (HIV-1LAI.04 lub HIV-1SF162) uwalniane przez PBMC lub komórki Jurkat zostały wychwycone za pomocą VRC01-MNPs i znakowane drugim przeciwciałem anty-gp120 2G12 oraz specyficznymi przeciwciałami przeciwko HLA-DR i LFA-1. Znakowane preparaty poddano analizie przepływowej pod kątem HLA-DR (białe słupki) i LFA-1 (czarne słupki). Średnie ± SEM z trzech do sześciu eksperymentów 9. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
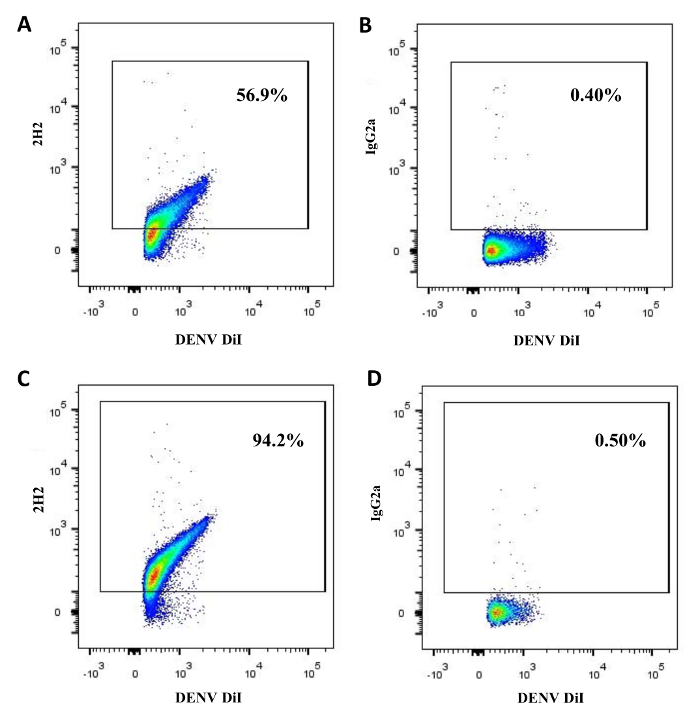
Rysunek 2: Stan dojrzewania wirionów DENV. Wiriony DENV produkowane w komórkach BHK-21 (A, B) lub w komórkach LoVo (C, D) znakowano lipidowym barwnikiem DiI, a następnie, po ultracentryfugacji w medium gradientowym, barwiono na białko prM przeciwciałami 2H2 (A, C) lub izotypową kontrolą IgG2a (B, D). Znakowane wiriony wychwycono następnie za pomocą 3H5-1-MNPs i poddano analizie przepływowej 14. Aby wyświetlić powiększoną wersję tego rysunku, kliknij tutaj.
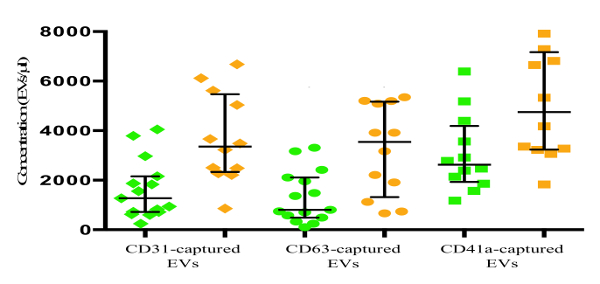
Rycina 3: Analiza EV od pacjentów z ACS i zdrowych kontroli. EV z osocza zostały wychwycone za pomocą CD31-MNP, CD63-MNP lub CD41a-MNP, a następnie barwione odpowiednio przeciwciałami przeciwko CD41a i CD63, przeciwko CD31 i CD41a oraz przeciwko CD31 i CD63. Wychwycone EV, zabarwione przynajmniej jednym z przeciwciał detekcyjnych, zostały zwizualizowane i policzone w analizie cytometrycznej. Dane przedstawiono na wykresie punktowym z medianą i rozstępem międzykwartylnym (IQR). Symbole zielone: zdrowi ochotnicy (kontrola), symbole brązowe: pacjenci z ACS. Prosimy kliknąć tutaj, aby zobaczyć powiększoną wersję tej ryciny.
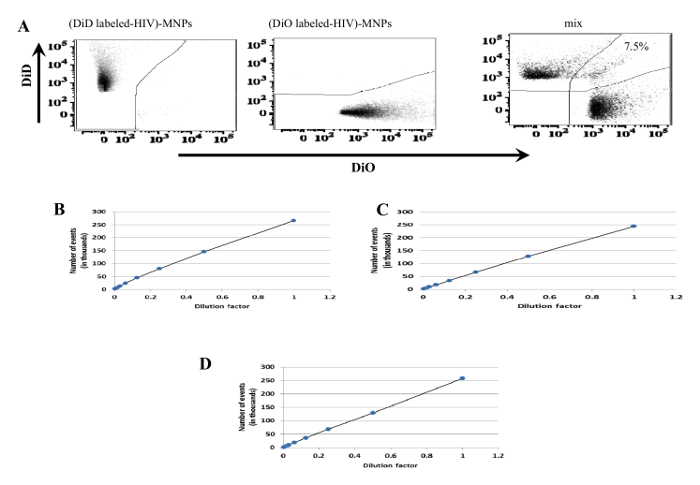
Rycina 4: Ocena frakcji zdarzeń w cytometrii przepływowej reprezentujących pojedyncze wiriony. (A) HIV-1. Zawiesinę wirionów podzielono na dwie części i zabarwiono odpowiednio DiD (panel lewy) lub DiO (panel środkowy). Po zmieszaniu zawiesinę zawierającą dwa różnie zabarwione wiriony przechwycono za pomocą VRC01-MNPs i poddano wirometrii przepływowej (panel prawy). Agregaty (zdarzenia dwukolorowe) stanowiły mniej niż 10% całkowitej liczby zdarzeń. (B-D) DENV. Zawiesinę wirionów zabarwionych DiI rozcieńczano seryjnie dwukrotnie od 1:2 do 1:256 i analizowano za pomocą HTS na cytometrze przepływowym (B). DiI-DENVs znakowano przeciwciałami 2H2 (C) lub przechwytywano DiI-DENVs za pomocą 3H5-1-MNPs (D). Preparaty C i D poddano następnie seryjnemu rozcieńczaniu dwukrotnemu od 1:2 do 1:256 i analizowano za pomocą HTS 14. Wiriony nie wykazują tendencji do agregacji, ponieważ we wszystkich przypadkach stwierdzono liniową korelację między czynnikiem rozcieńczenia a liczbą zdarzeń. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
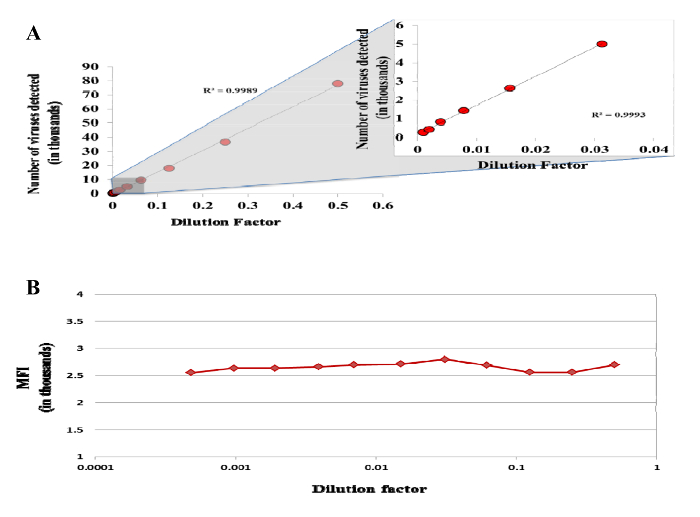
Rysunek 5: Detekcja pojedynczych cząsteczek za pomocą cytometru przepływowego. Zawiesina DENV barwiona DiI była rozcieńczana dwukrotnie w szeregu od 1:2 do 1:2,048, a następnie analizowana przy użyciu HTS na cytometrze przepływowym. (A) Liczba wykrytych wirusów w funkcji czynnika rozcieńczenia. (B) Mediana intensywności fluorescencji (MFI) DENV znakowanego DiI 14. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
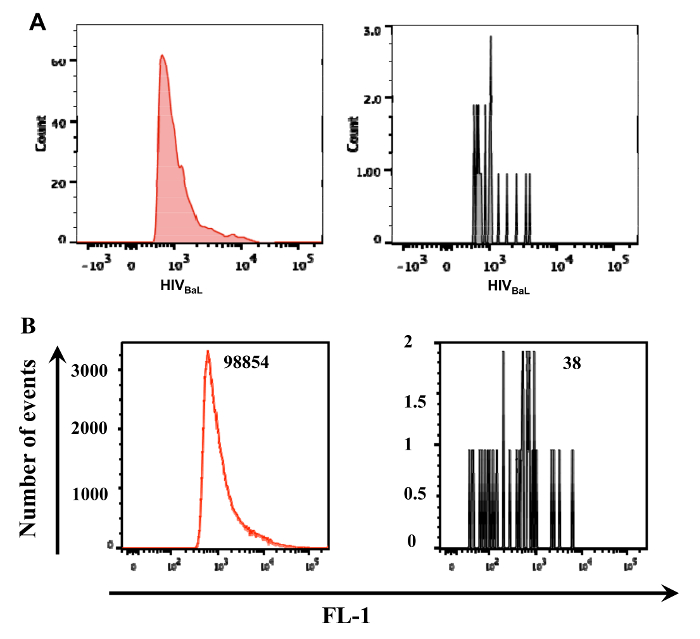
Rycina 6: Ocena frakcji wirionów i pęcherzyków zewnątrzkomórkowych wychwyconych za pomocą nanocząsteczek magnetycznych (MNP) sprzężonych ze swoistymi przeciwciałami. Oznakowane wiriony HIV-1 lub pęcherzyki zewnątrzkomórkowe (EV) wyłapywano za pomocą nanocząsteczek magnetycznych (MNP) sprzężonych ze specyficznymi przeciwciałami, a następnie poddawano analizie w wirionometrii przepływowej. Po rozdzieleniu na kolumnach magnetycznych analizowano frakcje przepływowe (niezatrzymane) pod kątem obecności wirionów lub EV, których nie udało się wyłapać w pierwszym przebiegu.A) Znakowany HIV-1 BaL wiriony wyłapano za pomocą 2G12-MNP (lewy panel). frakcję przepływową odzyskano i poddano pomiarom za pomocą cytometrii przepływu wirusów (prawy panel)W pierwszym cyklu wychwycono około 95% interesujących nas wirionów.B) Znakowane pęcherzyki zewnątrzkomórkowe (EVs) zostały wychwycone za pomocą nanopocząsteczek magnetycznych (MNPs) anty-CD81 i wyizolowane na kolumnach magnetycznych (panel lewy). frakcję przepływową odzyskano i poddano analizie (panel prawy)W pierwszym cyklu przechwycono około 99% poszukiwanych pęcherzyków. 8. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Dyskusja
Konwencjonalne cytometry przepływowe pozostają głównym narzędziem do analizy komórek na podstawie ich właściwości fizycznych i chemicznych na poziomie indywidualnym 18. Podstawowe zasady cytometrii przepływowej nie uległy zmianie od czasu jej opracowania: komórka, która przechodzi przez wiązkę laserową i rozprasza światło, stanowi zdarzenie, które wyzwala zapis widm fluorescencyjnych emitowanych przez przeciwciała fluorescencyjne związane z komórkami. Mniejsze cząstki poniżej 300 nm nie mogą być wykryte przez rozpraszanie boczne cytometru, ponieważ rozpraszają więcej światła pod większymi kątami, przy których większość cytometrów przepływowych nie zbiera światła 18. Opisana tutaj technika pozwala na identyfikację i analizę wielu antygenów na wielu pojedynczych wirusach lub EV za pomocą konwencjonalnych cytometrów przepływowych z wyzwalaniem fluorescencji.
Krytycznymi etapami w ramach protokołu jest sprzężenie przeciwciał z MNP. Nasze eksperymenty przeprowadzono przy użyciu nanocząstek tlenku żelaza o długości fali 15 nm z kwasem karboksylowym jako grupą reaktywną, jak opisano wcześniej 9. Według producenta każdy MNP 15 nm może wiązać maksymalnie 20 przeciwciał; wiążemy około 10 przeciwciał na 15 nm MNP. Oszacowanie to opiera się na ilości przeciwciał przed i po sprzężeniu oraz liczbie kulek/ml mierzonej za pomocą charakterystyki nanocząstek i oprzyrządowania do wymiarowania. Zasadniczo sprzężenie może powodować agregację cząstek i jest niepożądane. Aby sprawdzić, czy agregacja nie odbywa się w naszym protokole, sprawdziliśmy to za pomocą oprzyrządowania do charakteryzowania i wymiarowania nanocząstek. Przyrząd ten mierzy średnicę hydrodynamiczną cząstek, która obejmuje warstwę powłoki i przeciwciała, a nie tylko rdzeń o długości fali 15 nm. Odkryliśmy, że większość sprzężonych kulek znajduje się na pojedynczym piku (średni pik przy 64,7 ±4,2 nm przy 90% wszystkich zdarzeń poniżej 73 ±7,3 nm). Mieszanie kompleksów Ab-MNP z wirionami lub EV w odpowiedniej proporcji jest ważne, aby MNP były w stężeniu o kilka rzędów wyższym niż EV/wiriony. Ma to kluczowe znaczenie dla zapewnienia, że analizowane są pojedyncze EV/wiriony. Unikaj zbiegów okoliczności, uruchamiając cytometr przy niskim przepływie. Upewnij się, że akwizycja jest wyzwalana przy fluorescencji i użyj kontroli objętościowej do pomiaru stężenia przechwyconych jednostek.
Jednak MNP mogą agregować EV lub wiriony poprzez sieciowanie lub wiązanie dwóch lub więcej wirionów z tą samą nanocząstką. Aby to sprawdzić, należy przeprowadzić test agregacji zgodnie z opisem na rysunku 4 . Nawet pojedynczo wychwycone wiriony lub EV mogą jednocześnie wejść w wiązkę laserową cytometru przepływowego. Spowodowałoby to fałszywie dodatnie wyniki dla dwóch różnych antygenów. Aby tego uniknąć, cytometr przepływowy należy ustawić zgodnie z opisem, a preparaty rozcieńczyć. Można sprawdzić, czy zachodzi zbieg okoliczności, stosując tę samą strategię, która została opisana w poprzednim punkcie. Również brak koincydencji można zweryfikować, analizując seryjne rozcieńczenia preparatu i udowadniając, że liczba zdarzeń maleje liniowo wraz z rozcieńczeniem, podczas gdy średnia intensywność fluorescencji fluorescencyjnie barwionego antygenu pozostaje stała we wszystkich rozcieńczeniach (ryc. 5). Inną kwestią jest to, że można przechwycić zbyt mało wirusów/pojazdów elektrycznych. Może to wynikać z rzeczywistego niedoboru wirusów/EV, które przenoszą antygeny, przez które są wychwytywane przez określone MNP. Alternatywnie, skuteczność wychwytywania jest niska z różnych powodów (np. nieefektywne sprzężenie przeciwciał z MNP, odchylenie od stosunków MNP do wirionów/EV opracowanych dla tego protokołu itp.). Aby uniknąć tej ostatniej możliwości, skuteczność wychwytywania powinna być szczegółowo oceniona. Zazwyczaj sprawność powinna wynosić około 90%, jak na rysunku 6.
Różne przeciwciała mogą interferować z powodu przeszkód sterycznych ze sobą lub z przeciwciałami sprzężonymi z MNP. Aby sprawdzić, czy tak się nie stało, należy przetestować protokół odwrotnego przechwytywania (zgodnie z opisem w sekcji 7. Krótko mówiąc, wiriony lub EV powinny być najpierw wybarwione za pomocą detektora fluorescencyjnego Abs, a następnie wychwycone przez kompleksy Ab-MNP, a następnie oddzielone od swobodnie pływających Abs na kolumnach magnetycznych.
Wirometria przepływowa ma znaczące zalety w stosunku do istniejących metod analizy składu antygenowego wirionów lub EV. Rutynowe metody biochemiczne informują o ogólnej obecności poszczególnych białek w preparatach, ale nie dostarczają informacji na temat niejednorodności wirionów lub EV. Obejmuje to wychwytywanie immunologiczne wirionów lub EV na dużych dostępnych na rynku cząstkach. Takie cząstki mają zazwyczaj średnicę kilku mikronów, a każda z nich może wychwytywać setki lub tysiące wirionów lub EV. W związku z tym każda kolejna analiza uśrednia właściwości wirionów/EV wychwyconych przez jedną cząstkę. Natomiast wirometria przepływowa wykorzystuje MNP o średnicy 10-15 nm, a przy opisanym protokole co najmniej 90% zdarzeń reprezentuje pojedynczy wirion lub pojedynczy EV.
Głównym ograniczeniem jest to, że cała populacja wirionów lub EV w preparacie może nie być analizowana, a tylko te, które są wychwytywane. W związku z tym wybór antygenu, za pomocą którego wychwytywane są wiriony lub EV, staje się krytyczny. Ponadto, w przeciwieństwie do cytometrii przepływowej, liczba różnych antygenów (liczba przeciwciał fluorescencyjnych przeciwko różnym antygenom) jest ograniczona przez małą powierzchnię wirionów lub EV. Wreszcie, różne przeciwciała mogą ponownie sterycznie interferować ze sobą ze względu na małą (w porównaniu z komórkami) powierzchnię.
Obecny protokół może być dostosowany do analizy dowolnego wirusa lub EV dowolnego pochodzenia, pod warunkiem, że dostępne są specyficzne przeciwciała, przez które można je wychwycić. Analiza antygenów na poszczególnych wirionach pozwala naukowcom zająć się patogenezą różnych frakcji populacji wirusów. Co więcej, identyfikacja poszczególnych EV w osoczu może umożliwić prześledzenie pochodzenia EV do poszczególnych komórek oraz dostarczenie informacji o normalnych lub patologicznych stanach tych komórek i narządów, w których się znajdują.
Oświadczenia
Autorzy deklarują brak konfliktu interesów.
Podziękowania
To dzieło AA, SZ, WF, J-C. G i LM były wspierane przez NICHD Intramural Program. Prace MV były wspierane przez grant rządu Federacji Rosyjskiej #14.B25.31.0016.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Materiały | |||
| Karboksylowe magnetyczne zestawy do koniugacji nanocząstek tlenku żelaza | Ocean Nanotech | ICK-15-005 | |
| Filtr odśrodkowy Amicon Ultra-4 z membraną Ultracel-100 | Millipore | UFC810024 | |
| 5 ml probówka PP z okrągłym dnem, bez nasadki | Falcon | 352002 | |
| poddany obróbce DEPC Jakość wody | Biologiczna | 351-068-131 | |
| Separator magnetyczny SuperMAG-01 | Ocean Nanotech | SuperMAG-01 | |
| Zenon R-Phycoerythrin Mouse IgG1 Zestaw do etykietowania | Thermo Fisher Scientific | Z25055 | |
| Urządzenia odśrodkowe Nanosep z membraną Omega 100k | Pall Corp | OD100C34 | |
| EDTA 0,5 M | Corning Cellgro | 46-034-CI | |
| Roztwór albuminy surowicy bydlęcej | Sigma-Aldrich | A9576-50ML | |
| PBS | Gibco | 10010-23 | |
| Paraformaldehyd, klasa EM, Oczyszczony | EMS | 15710 | |
| 123 sztuki eKoraliki | eBioscience | 01-1234-42 | |
| Koraliki CytoCount | Dako | S2366 | |
| Koraliki liczące AccuCheck | Invitrogen | PCB100 | |
| i Zestaw koralików śledzących (CST) | BD Bioscience | 642412 | |
| Vybrant DiI Roztwór do etykietowania komórek | Thermo Fisher Scientific | V22885 | |
| Nazwa | Firma | Numer katalogowy | Komentarze |
| Equipment | |||
| &mikro; Kolumna MACS | Miltenyi Biotec | 130-042-701 | |
| OctoMACS Separator magnetyczny | Miltenyi Biotec | 130-042-108 | |
| Nanodrop | ThermoFisher | brak | |
| NanoSight NS300 | Malvern | brak | |
| BD Cytometr przepływowy LSRII | BD Bioscience | none | |
| Nazwa | Firma | Numer katalogowy | Komentarze |
| >Software | |||
| Flowjo | oprogramowanie Flowjo | ||
| BD FACSDiva software | BD |
Bibliografia
- Tremblay, M. J., Fortin, J. F., Cantin, R. The acquisition of host-encoded proteins by nascent HIV-1. Immunol Today. 19 (8), 346-351 (1998).
- Santos, S., Obukhov, Y., Nekhai, S., Bukrinsky, M., Iordanskiy, S. Virus-producing cells determine the host protein profiles of HIV-1 virion cores. Retrovirology. 9, 65(2012).
- Wolf, P. The nature and significance of platelet products in human plasma. Br J Haematol. 13 (3), 269-288 (1967).
- Piccin, A., Murphy, W. G., Smith, O. P. Circulating microparticles: pathophysiology and clinical implications. Blood Rev. 21 (3), 157-171 (2007).
- Bernal-Mizrachi, L., et al. High levels of circulating endothelial microparticles in patients with acute coronary syndromes. Am Heart J. 145 (6), 962-970 (2003).
- Rozmyslowicz, T., et al. Platelet- and megakaryocyte-derived microparticles transfer CXCR4 receptor to CXCR4-null cells and make them susceptible to infection by X4-HIV. Aids. 17 (1), 33-42 (2003).
- Bhattarai, N., et al. GB virus C particles inhibit T cell activation via envelope E2 protein-mediated inhibition of TCR signaling. J Immunol. 190 (12), 6351-6359 (2013).
- Arakelyan, A., Ivanova, O., Vasilieva, E., Grivel, J. C., Margolis, L. Antigenic composition of single nano-sized extracellular blood vesicles. Nanomedicine. 11 (3), 489-498 (2015).
- Arakelyan, A., Fitzgerald, W., Margolis, L., Grivel, J. C. Nanoparticle-based flow virometry for the analysis of individual virions. J Clin Invest. 123 (9), 3716-3727 (2013).
- Yang, H., Liang, W., He, N., Deng, Y., Li, Z. Chemiluminescent labels released from long spacer arm-functionalized magnetic particles: a novel strategy for ultrasensitive and highly selective detection of pathogen infections. ACS Appl Mater Interfaces. 7 (1), 774-781 (2015).
- Tang, Y., et al. Highly sensitive and rapid detection of Pseudomonas aeruginosa based on magnetic enrichment and magnetic separation. Theranostics. 3 (2), 85-92 (2013).
- Borlido, L., Azevedo, A. M., Roque, A. C., Aires-Barros, M. R. Magnetic separations in biotechnology. Biotechnol Adv. 31 (8), 1374-1385 (2013).
- Xi, Z., et al. Selection of HBsAg-Specific DNA Aptamers Based on Carboxylated Magnetic Nanoparticles and Their Application in the Rapid and Simple Detection of Hepatitis B Virus Infection. ACS Appl Mater Interfaces. 7 (21), 11215-11223 (2015).
- Zicari, S., et al. Evaluation of the maturation of individual Dengue virions with flow virometry. Virology. 488, 20-27 (2016).
- Lai, C. P., et al. Visualization and tracking of tumour extracellular vesicle delivery and RNA translation using multiplexed reporters. Nat Commun. 6, 7029(2015).
- McDonald, D., et al. Visualization of the intracellular behavior of HIV in living cells. J Cell Biol. 159 (3), 441-452 (2002).
- Morcock, D. R., et al. Elimination of retroviral infectivity by N-ethylmaleimide with preservation of functional envelope glycoproteins. J Virol. 79 (3), 1533-1542 (2005).
- Shapiro, H. M. Practical Flow Cytometry. , John Wiley & Sons, Inc. 101-223 (2005).
Przedruki i uprawnienia
