Tutaj opisujemy oczyszczanie pęcherzyków błony zewnętrznej (OMV) Legionella pneumophila (L. pneumophila) z płynnych kultur. Te oczyszczone pęcherzyki są następnie wykorzystywane do leczenia makrofagów w celu analizy ich potencjału prozapalnego.
Artykuł metodologiczny
Legionella pneumophila (Legionella pneumophila) Pęcherzyki błony zewnętrznej: izolacja i analiza ich potencjału prozapalnego na makrofagach
W tym artykule
Podsumowanie
Streszczenie
Bakterie są w stanie wydzielać różne cząsteczki za pośrednictwem różnych systemów wydzielniczych. Oprócz wydzielania cząsteczek do przestrzeni zewnątrzkomórkowej lub bezpośrednio do innej komórki, bakterie Gram-ujemne mogą również tworzyć pęcherzyki błony zewnętrznej (OMV). Te pęcherzyki błonowe mogą dostarczać swój ładunek na duże odległości, a ładunek jest chroniony przed degradacją przez proteazy i nukleazy.
Legionella pneumophila (L. pneumophila) to wewnątrzkomórkowy, Gram-ujemny patogen, który powoduje ciężką postać zapalenia płuc. U ludzi infekuje makrofagi pęcherzykowe pęcherzyków płucnych, gdzie blokuje degradację lizosomalną i tworzy wyspecjalizowaną wakuolę replikacyjną. Ponadto L. pneumophila wytwarza OMV w różnych warunkach wzrostu. Aby zrozumieć rolę OMV w procesie infekcji ludzkich makrofagów, opracowaliśmy protokół oczyszczania pęcherzyków błony bakteryjnej z płynnej hodowli. Metoda opiera się na różnicowym ultrawirowaniu. Wzbogacone OMV zostały następnie przeanalizowane pod kątem zawartości białka i lipopolisacharydów (LPS), a następnie wykorzystano je do leczenia ludzkiej linii komórek monocytowych lub makrofagów pochodzących ze szpiku kostnego myszy. Odpowiedzi prozapalne tych komórek analizowano za pomocą testu immunoenzymatycznego. Ponadto przeanalizowano zmiany w późniejszej infekcji. W tym celu badano bakteryjną replikację L. pneumophila w makrofagach za pomocą testów jednostek tworzących kolonie.
Tutaj opisujemy szczegółowy protokół oczyszczania OMV L. pneumophila z płynnej hodowli za pomocą ultrawirowania oraz dalszej analizy ich potencjału prozapalnego na makrofagach.
Wprowadzenie
Bakterie mogą wydzielać czynniki wirulencji za pomocą różnych mechanizmów1. Oprócz dobrze znanych systemów wydzielniczych, bakterie Gram-ujemne mogą wymieniać informacje i dostarczać czynniki wirulencji za pośrednictwem pęcherzyków błony zewnętrznej (OMV), które są małymi, sferoidalnymi pęcherzykami o średnicy 10-300 nm i dwuwarstwowej strukturze błony. Są wydzielane w różnych środowiskach wzrostu (kultura płynna, kultura stała i biofilmy) i we wszystkich fazach wzrostu2,3. OMV są ważnym środkiem transportu (np. dla białek, adhezyn, toksyn i enzymów, a także dla LPS, który znajduje się na powierzchni OMV)4. Ładunek wewnątrzświetlny jest chroniony przed degradacją proteolityczną, dzięki czemu jest w stanie działać na duże odległości, a pęcherzyki można znaleźć w płynach ustrojowych i odległych narządach5,6,7,8. Mogą być nie tylko rozpoznawane i wychwytywane przez komórki eukariotyczne9,10, ale ponadto są w stanie ułatwić wiązanie bakterii i ich inwazję do komórek gospodarza4. Legionella pneumophila (L. pneumophila) jest bakterią Gram-ujemną, która może uwalniać OMV. W ludzkim płucu infekuje przede wszystkim makrofagi pęcherzykowe pęcherzyków płucnych, mimo że jego naturalnym gospodarzem są ameby słodkowodne11. Zakażenie L. pneumophila może powodować chorobę legionistów, ciężką postać zapalenia płuc12. Blokuje fuzję fagosomu i lizosomu w komórce gospodarza. Rekrutuje również organelle gospodarza, w wyniku czego tworzona jest nisza replikacyjna, wakuola zawierająca Legionellę (LCV)13,14. Degradacja lizosomów jest hamowana nie tylko przez translokację białek efektorowych przez system wydzielania typu IV, ale także przez uwalnianie OMVs15.
Oczyszczanie OMV z kultur bakteryjnych jest wymagane do analizy ich wpływu na komórki biorców. Wcześniejsze badania koncentrowały się na zawartości białka w OMV L. pneumophila oraz na wpływie pęcherzyków na komórki nabłonka pęcherzyków płucnych16, ale późniejsze badania z wykorzystaniem przeszczepów ludzkiej tkanki płucnej wykazały, że OMV L. pneumophila są wychwytywane przez makrofagi pęcherzykowe 17.
Ponieważ OMV prezentują wzorce molekularne związane z patogenami (PAMPs) i inne antygeny bakteryjne, mogą mieć wpływ na infekcję komórek eukariotycznych i modulować odpowiedź immunologiczną gospodarza18. L. pneumophila OMV szybko łączą się z błonami komórkowymi gospodarza, a ponadto aktywują błoniaste TLR219. Ponieważ wiadomo, że OMV L. pneumophila stymulują makrofagi i komórki nabłonkowe w sposób prozapalny16,17, przeanalizowaliśmy wpływ OMV na proces infekcji u makrofagów ludzkich i mysich.
Tutaj opisujemy protokół hodowli L. pneumophila w płynnej hodowli, aby wyizolować wydzielane OMV przez różnicowe ultrawirowanie i ocenić wpływ pęcherzyków na eukariotyczne komórki gospodarza, bezpośrednio lub po infekcji.
Protokół
1. Przygotowanie pożywki i płytek z agarem
- Przygotuj 1 L pożywki płynnej (YEB). Rozpuść 10 g ACES i 10 g ekstraktu drożdżowego w 900 mL wody destylowanej. Dostosuj pH do 6,9 za pomocą KOH (5 N). Dodaj 10 mL L-cysteiny (0,4 g w 10 mL wody destylowanej) oraz 10 mL Fe(NO3)3x9H2O (0,25 g w 10 mL wody destylowanej). Dopełnij objętość do 1 L wodą destylowaną i wysterylizuj roztwór poprzez filtrację (rozmiar porów: 0,22 µm). Przechowuj w temperaturze 4 °C.
- Przygotuj płytki z buforowanym agarem z ekstraktem drożdżowym i węglem aktywnym (BCYE). Rozpuść 10 g ACES i 10 g ekstraktu drożdżowego w 900 mL wody destylowanej. Dostosuj pH do 6,9 za pomocą KOH (5 N). Dodaj 15 g agaru i 2,5 g węgla aktywnego. Dopełnij objętość do 1 L wodą destylowaną i wysterylizuj w autoklawie.
- Do schłodzonego BCYE (około 50 °C) dodaj 10 mL L-cysteiny (0,4 g w 10 mL wody destylowanej) oraz 10 mL Fe(NO3)3x9H2O (0,25 g w 10 mL wody destylowanej; oba roztwory wysterylizowane przez filtrację przez pory 0,22-µm). Wlej pożywkę na płytki i przechowuj w temperaturze 4 °C.
2. Hodowla L. pneumophila
- Wysiać szczep Corby L. pneumophila (typ dziki, WT) na płytki z agarem BCYE i inkubować w temperaturze 37 °C przez 3 dni. Zaszczepić 10 mL bulionu YEB przy OD600 wynoszącej 0,3 bakteriami L. pneumophila z płytki prekultury; inkubować bakterie w temperaturze 37 °C na inkubatorze obrotowym (150 rpm) przez 6 h.
- Zweryfikować czystość hodowli płynnej poprzez wysianie 100 µL zawiesiny na płytkę z agarem krwią. Inkubować przez noc w temperaturze 37 °C.
- Dodać pozostałą hodowlę płynną do 90 mL świeżego medium YEB i inkubować na inkubatorze obrotowym (37 °C i 150 rpm) do osiągnięcia OD600 na poziomie 3,0-3,5, co zajmuje około 16-20 h.
3. Przygotowanie i kwantyfikacja OMV L. pneumophila
UWAGA: Wszystkie poniższe etapy wirowania należy przeprowadzać w warunkach sterylnych i w temperaturze 4 °C.
- Odwirować kulturę w cieczy przy 4,000 x g przez 20 min w celu osadzenia bakterii. Przenieść naddatek do nowych probówek do wirowania, usunąć osad bakteryjny i powtórzyć wirowanie (4,000 x g przez 20 min). Powtórzyć ten krok raz.
- Przefiltrować pozostały naddatek dwukrotnie przez filtr sterylny (rozmiar porów: 0.22 µm). Przenieść wolny od bakterii naddatek do probówek do ultrawirowania i ultrawirować przy 100,000 x g przez 3 h.
- Zlać naddatek i go usunąć. Resuspendować osad OMV w sterylnym roztworze soli fosforanowo-buforowanej (PBS) i ultrawirować (100,000 x g przez 3 h), aby usunąć zanieczyszczające białka i LPS.
- Usunąć naddatek i resuspendować osad OMV w 500 µL sterylnego PBS. Wysiać 20 µL na płytkę z agarem krwi oraz na płytkę z agarem BCYE, aby wykluczyć zanieczyszczenie przygotowanych pęcherzyków bakteriami. Inkubować płytkę z agarem krwi przez noc, a płytkę z agarem BCYE przez 3 dni (obie w temperaturze 37 °C).
- Oznaczyć ilość białka otrzymanego z preparatu OMV za pomocą testu z kwasem bicinchoninowym zgodnie z instrukcją producenta.
UWAGA: Stężenie w 100 mL kultury L. pneumophila wynosi zazwyczaj 1 µg/µL. Przygotowane i skwantyfikowane OMV przechowywać w temperaturze -20 °C.
4. Obróbka wstępna makrofagów
- Przygotuj komórki THP-1.
UWAGA: THP-1 jest monocytyczną linią komórkową pochodzącą od pacjenta z białaczką.- Dodaj 2x10⁵ wysiać komórki THP-1 do płytek 24-dołkowych i zróżnicować je do fenotypu makrofagopodobnego poprzez dodanie 20 nM forbolu 12-mirystynianu 13-octanu (PMA). Inkubować przez 24 h w 37 °C.
- Wymień pożywkę na 500 µL do świeżej pożywki i inkubować przez kolejne 24 h; optymalna pożywka dla komórek THP-1 składa się z RPMI 1640 z wysoką zawartością glukozy, uzupełnionej o 10% płodowej surowicy cielęcej.
- Wyizolować makrofagi pochodzące z szpiku kostnego myszy (mBMDM) zgodnie z opisem w publikacji 20.
- Inkubuj makrofagi pochodzące z linii THP-1 lub mBMDM z OMV.
- Rozmrozić OMV przygotowane w kroku 3 i dodać je zgodnie z zawartością białka (0,1, 1 oraz 10 µg/mL) do makrofagów ludzkich lub mysich. Inkubować makrofagi z OMV w temperaturze 37 °C przez co najmniej 20 h. Nadpływ należy wykorzystać do testu ELISA lub przejść do kroku 5.
5. Zakażenie makrofagów i ocena replikacji bakteryjnej za pomocą testu jednostek tworzących kolonie (CFU)
- Użyć L. pneumophila z kroku 2.1, poddanych wstępnej obróbce komórek THP-1 lub mBMDM z kroku 4.3, a także makrofagów bez wstępnej obróbki jako kontroli (2x10⁵/24 studzienek). Nie wymieniać pożywki.
- Zainfekować komórki THP-1 szczepem L. pneumophila Corby WT, a mBMDM mutantem L. pneumophila Corby pozbawionym flagelliny (w obu przypadkach z mnożnością infekcji (MOI) wynoszącą 0,5; 1x10⁵ L. pneumophila/24 studzienki) i inkubować odpowiednio przez 24 i 48 h. Przygotować oba warianty L. pneumophila Corby (WT lub mutant pozbawiony flagelliny) zgodnie z opisem w kroku 2.1.
- Zlizować komórki w pożywce poprzez dodanie saponiny (stężenie końcowe: 0,1%) i inkubować w temperaturze 37 °C przez 5 min.
- Resuspendować bakterie poprzez pipetowanie i przenieść zawiesinę do naczynia reakcyjnego. Przygotować rozcieńczenia seryjne pożywek zawierających L. pneumophila w sterylnym PBS.
- Wysiać 50 µL odpowiednich rozcieńczeń na płytki z agarem BCYE i inkubować przez 3 dni w temperaturze 37 °C.
- Policzyć wizualnie powstałe kolonie. Obliczyć CFU
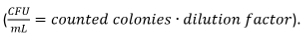 Znormalizować wynik liczenia CFU względem zainfekowanych makrofagów bez wstępnej obróbki, które przyjmuje się za 100%.
Wyniki
Układ eksperymentalny służący do przygotowania OMV L. pneumophila oraz analizy ich wpływu na odpowiedź prozapalną makrofagów po infekcji przedstawiono na Rysunku 1. Potencjał prozapalny przygotowanych OMV można analizować na komórkach THP-1 zróżnicowanych za pomocą PMA, co przedstawiono na Rysunku 2. Komórki THP-1 odpowiadają zależnym od czasu i dawki wzrostem sekrecji IL-8 oraz IL-6. Dodatkowo, wpływ różnych TLR na rozpoznawanie OMV L. pneumophila można analizować przy użyciu mBMDM o różnych podłożach genetycznych, co zaprezentowano w teście ELISA dla CXCL1 na Rysunku 3. mBMDM od myszy WT wydzielały CXCL1 po stymulacji OMV, podczas gdy mBMDM TLR2/4-/- wydzielały go znacznie mniej. Aby zbadać wpływ OMV L. pneumophila na replikację bakteryjną w makrofagach THP-1, komórki inkubowano wstępnie z OMV, a następnie dodatkowo zainfekowano L. pneumophila (Rysunek 4 A). Wstępna stymulacja makrofagów pochodzących z linii THP-1 początkowo redukuje replikację bakteryjną po 24 h infekcji, ale prowadzi do podwojenia liczby CFU w późniejszym punkcie czasowym (48 h p.i.). Wpływ sygnalizacji receptorów Toll-podobnych (TLR) na rozpoznawanie OMV po infekcji makrofagów można ocenić za pomocą mBMDM, jak przedstawiono na Rysunku 4 B. Replikacja bakteryjna wzrasta dziesięciokrotnie w mBMDM od zwierząt WT po wstępnej inkubacji z OMV, podczas gdy komórki TLR2-/- oraz TRIF/MyD88-/- nie wykazują takiego wzrostu replikacji L. pneumophila.
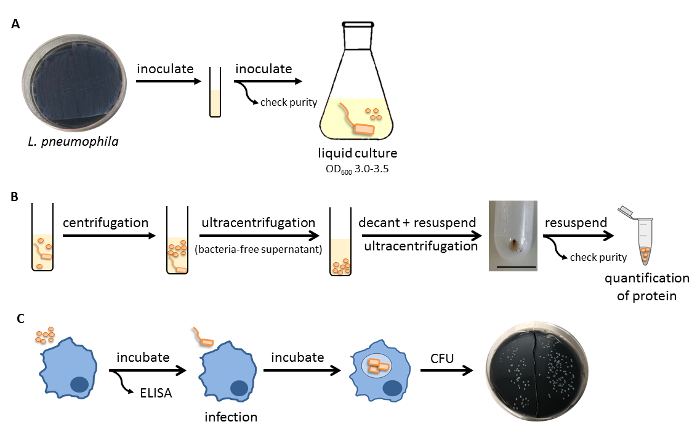
Rysunek 1: Procedura eksperymentalna. (A) L. pneumophila Corby WT z 10-cm szalek z agarem BCYE są wykorzystywane do zaszczepienia małej kultury w cieczy (10 mL), którą po 6 h przenosi się do 90 mL świeżego medium YEB. Małą objętość wysiewa się również na szalkę z agarem krwi w celu sprawdzenia czystości. Bakterie inkubuje się w 37 °C do wczesnej fazy stacjonarnej (OD600 = 3.0-3.5). (B) Kulturę w cieczy wiruje się i filtruje sterylnie w celu usunięcia bakterii. Następnie supernatant wolny od Legionella poddaje się ultrawirowaniu w celu uzyskania osadu OMV, który resuspenduje się w PBS i ponownie ultrawiruje. Wyizolowane pęcherzyki są resuspendowane, sprawdzane pod kątem czystości oraz poddawane ilościowemu oznaczaniu zawartości białka. Pasek skali reprezentuje 2.5 cm. (C) Ludzkie lub mysie makrofagi są stymulowane oznaczonymi ilościowo OMV. Nadpływ z hodowli komórkowej może być wykorzystany do testu ELISA lub makrofagi mogą zostać zainfekowane L. pneumophila w celu określenia replikacji bakterii za pomocą testu CFU na 10-cm szalkach z agarem BCYE. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
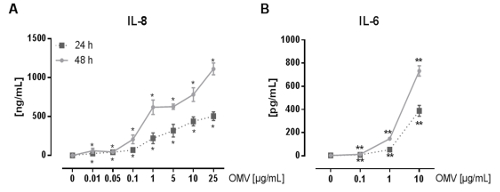
Rysunek 2: Prozapalna aktywacja komórek THP-1 przez OMV L. pneumophila. (A) W tym modelu linia komórek monocytarnych THP-1 służy jako model makrofagów pęcherzykowych. Komórki THP-1 zróżnicowane za pomocą PMA traktowano zwiększającymi się dawkami OMV L. pneumophila (0,01-25 µg/mL) odpowiednio przez 24 i 48 h. Pozbawiony komórek supernat rozmnożono w celu przeprowadzenia testu ELISA dla IL-8. Przedstawiono wartości średnie z trzech niezależnych eksperymentów ± SEM. Komórki THP-1 zareagowały na dawkę OMV L. pneumophila tak niską jak 0,01 µg/mL znaczną sekrecją IL-8, która była zależna od czasu i dawki. (B) Do stymulacji zróżnicowanych PMA komórek THP-1 wykorzystano OMV L. pneumophila (0,1-10 µg/mL). Supernatant zebrano po 24 i 48 h inkubacji, a ilość uwolnionej IL-6 w supernatancie zmierzono za pomocą testu ELISA. Przedstawiono wartości średnie z trzech niezależnych eksperymentów ± SEM. Komórki THP-1 wydzielały znaczące ilości IL-6, nawet przy najniższej dawce OMV (0,1 µg/mL). Sekrecja IL-6 wzrastała wraz ze zwiększaniem dawek OMV oraz wydłużeniem czasu inkubacji. Statystyka: test Mann-Whitney; *p < 0,05 oraz **p < 0,01 w porównaniu do odpowiadającej grupy 0 µg/mL OMV. Przedrukowano za zgodą z Referencji 20. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
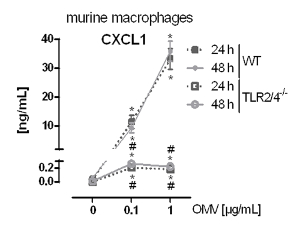
Rysunek 3: Prozapalna aktywacja makrofagów zależy od TLR2/4. mBMDM z myszy WT i TLR2/4-/- inkubowano z OMV L. pneumophila (0,1 lub 1 µg/mL). Sekrecję CXCL1 analizowano metodą ELISA odpowiednio po 24 i 48 h. Przedstawiono wartości średnie ± SEM z trzech niezależnych eksperymentów. mBMDM z myszy WT odpowiedziały dawkozależną sekrecją CXCL1 po inkubacji z OMV L. pneumophila. mBMDM TLR2/4-/- wydzielały znacznie mniej CXCL1 w porównaniu do mBMDM WT, a sekrecja ta nie zwiększała się w sposób dawkozależny. Statystyka: test Mann-Whitney; *p < 0,05 w porównaniu do odpowiadającej grupy 0 µg/mL OMV; #p < 0,05 w porównaniu do analogicznie traktowanej próbki WT. Przedrukowano za zgodą z Odniesienia 20. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
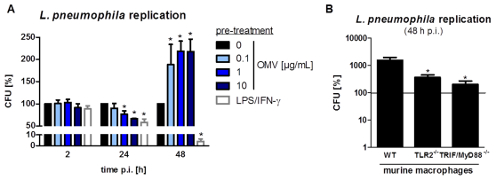
Rysunek 4: Preinkubacja z OMV L. pneumophila zwiększa replikację bakterii w makrofagach. (A) Zróżnicowane komórki THP-1 preinkubowano z OMV (0,1, 1 lub 10 µg/mL) lub LPS/IFN-γ (po 200 ng/mL każdego) lub pozostawiono nieleczone jako kontrolę. Po preinkubacji (20 h) komórki THP-1 zainfekowano szczepem L. pneumophila Corby WT (MOI 0,5) odpowiednio na 2, 24 i 48 h. Komórki THP-1 poddano lizie poprzez dodanie saponiny, a bakterie wysiano na płytki z agarem BCYE. Liczbę CFU obliczono w stosunku do 0 µg/mL OMV po każdym punkcie czasowym. Słupki reprezentują wartości średnie ± SEM z trzech niezależnych eksperymentów, z których każdy wykonano w dubletach technicznych. Nie stwierdzono różnic w pobieraniu bakterii (2 h po infekcji (p.i.)) w porównaniu do komórek niepoddanych wstępnemu traktowaniu. Zmiany w replikacji bakterii określono odpowiednio po 24 i 48 h. Komórki THP-1 wstępnie traktowane LPS/IFN-γ wykazały zmniejszenie ładunku bakteryjnego 24 h p.i. Zaobserwowano to również w sposób zależny od dawki dla komórek wstępnie traktowanych OMV L. pneumophila. W późniejszym punkcie czasowym (48 h p.i.) komórki THP-1 wstępnie traktowane OMV wykazały dwukrotny wzrost replikacji L. pneumophila, podczas gdy makrofagi wstępnie traktowane LPS/IFN-γ wykazały dalszą redukcję ładunku bakteryjnego. Statystyka: test Manna-Whitneya; *p < 0,05 i **p < 0,01 w porównaniu do odpowiadającej wartości 0 µg/mL OMV. (B) mBMDM od myszy o różnych podłożach genetycznych (WT, TLR2-/- oraz TRIF/MyD88-/-) preinkubowano z 0,1 µg/mL OMV L. pneumophila przez 20 h, a następnie zainfekowano mutantem L. pneumophila Corby pozbawionym flagelliny (MOI 0,5) na 48 h. mBMDM poddano lizie poprzez dodanie saponiny, a Legionella zostały wysiane na płytki z agarem BCYE. Liczbę CFU obliczono w stosunku do 0 µg/mL OMV, co zaznaczono linią ciągłą. Słupki reprezentują wartości średnie ± SEM z trzech niezależnych eksperymentów, z których każdy wykonano w dubletach. mBMDM od myszy WT wykazały wzrost replikacji L. pneumophila po wstępnym traktowaniu OMV. Makrofagi TLR2-/- wykazały istotnie zmniejszoną replikację Legionella, co było porównywalne z mBMDM TRIF/MyD88-/-. Statystyka: test Manna-Whitneya; p < 0,05 w porównaniu do próbki WT. Przedrukowano za zgodą z Referencji 20. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Dyskusja
OMV patogenów bakteryjnych i wpływ tych pęcherzyków błonowych na ich komórki docelowe są obecnie intensywnie badane. Na przykład OMV pochodzące z Clostridium perfringens indukują wydzielanie cytokin w makrofagach, limfocyty B mogą być aktywowane przez OMV z Borrelia burgdorferi, a pęcherzyki błonowe uwalniane przez Helicobacter pylori mogą działać na komórki nabłonka żołądka 21,22,23. L. pneumophila, patogen wewnątrzkomórkowy, który może wywołać ciężką postać atypowego zapalenia płuc, uwalnia również OMV, które są w stanie aktywować komórki nabłonka płuc i makrofagi16,19. W tym miejscu przedstawiamy szczegółowy protokół izolacji OMV L. pneumophila na małą skalę z płynnej hodowli w celu zbadania potencjalnej roli OMV w zapaleniu płuc. Bardzo ważne jest, aby pracować w sterylnych warunkach i wykluczyć zanieczyszczenie innymi bakteriami, aby uzyskać czysty preparat OMV pochodzący z L. pneumophila. Izolacja OMV obejmuje etap filtracji przez pory 0,22 μm w celu zapobieżenia zanieczyszczeniu otrzymanej osadki OMV L. pneumophila, nawet jeśli zmniejsza to wydajność OMV, ponieważ największe OMV są tracone na tym etapie filtracji.
Ponadto przetestowaliśmy reakcję makrofagów ludzkich i mysich na te izolowane pęcherzyki i komórki zakażone L. pneumophila , aby bardziej zbliżyć się do sytuacji w zapaleniu płuc Legionella , gdzie OMV są uwalniane do wnętrza LCV przez bakterie zewnątrzkomórkowe15. Zastosowane dawki OMV oszacowano na podstawie ilości wolnego OMV w zakażeniu in vitro ludzkimi makrofagami po 24 godzinach inkubacji (opisanej w piśmiennictwie 20). Do stymulacji innych komórek biorcy lub eksperymentów in vivo mogą być konieczne i muszą być ustalone inne dawki OMV. Analiza wpływu OMV L. pneumophila stanowi postęp w stosunku do protokołu opisanego przez Jagera i Steinerta24.
W tym przypadku zróżnicowane PMA komórki THP-1 służą jako model dla makrofagów pęcherzykowych ze względu na ograniczoną dostępność pierwotnego materiału ludzkiego. Dodatek PMA różnicuje monocytowe komórki THP-1 w komórki podobne do makrofagów25. Co więcej, są one dobrze znaną modelową linią komórkową do badań nad L. pneumophila 26. Oprócz tej ludzkiej linii komórek monocytowych stosuje się komórki mBMDM. mBMDM są powszechnie akceptowane w badaniach nad skutkami L. pneumophila 27,28,29. Możliwość wykorzystania nokautów genetycznych dla różnych TLR lub innych białek sprawia, że są one cennym narzędziem do badania efektów OMV. W celu zmniejszenia liczby myszy w eksperymencie, mBMDM są używane zamiast makrofagów pęcherzykowych ze względu na ograniczenia makrofagów. Kluczowe eksperymenty mogą wymagać makrofagów pęcherzykowych do walidacji.
Oprócz opisanego w niniejszym dokumencie protokołu ultrawirowania w celu oczyszczenia OMV, możliwe jest przeprowadzenie wirowania w gradiencie gęstości, które jest zawarte w protokole przez Chutkan i wsp.30. Może to poprawić czystość otrzymanego preparatu OMV i zmniejszyć ilość współoczyszczonych agregatów białkowych, flageliny i LPS. Czystość otrzymanego preparatu OMV może być analizowana za pomocą transmisyjnej mikroskopii elektronowej lub analizy śledzenia nanocząstek jako dodatkowy etap kontroli jakości. Może to zapewnić dodatkowy sposób oceny ilościowej, wykraczający poza przedstawioną tutaj procedurę pomiaru białka. Opcjonalnie stężenie LPS można analizować za pomocą testu lizatu amebocytów limulusa. Jeśli uzysk OMV jest niski, można przeprowadzić dodatkowy etap zatężania za pomocą filtrów odśrodkowych, czego w tym przypadku nie zrobiono. Jeśli wydajność była niższa niż oczekiwano, OMV były odrzucane.
W ramach trwających wysiłków mających na celu wyjaśnienie mechanizmów i funkcji biologicznych stojących za OMV można przetestować wpływ różnych warunków stresowych na produkcję OMV. Niedobór składników odżywczych, zmiany temperatury inkubacji lub narażenie na czynniki szkodliwe mogą mieć wpływ na wydzielanie OMV31. Możliwe warunki naprężeń zostały omówione w protokole przez Klimentovą i Stulika32. Co więcej, można wygenerować hiper- lub hipopęcherzykowe mutanty L. pneumophila . Różne preparaty OMV mogą być następnie analizowane w eksperymentach z infekcją makrofagami, eksplantatami ludzkiej tkanki płucnej (opisanymi w Piśmiennictwie 17), a nawet w modelach in vivo . Oprócz roli OMV we wrodzonej sygnalizacji immunologicznej, ich wpływ na komunikację bakteryjną można zbadać eksperymentalnie. Co więcej, wpływ różnych wrodzonych kaskad sygnalizacji immunologicznej może być analizowany za pomocą mysich komórek nokautujących lub generowania nokautów CRISPR/Cas9 w ludzkich liniach komórkowych. Te podstawowe badania nad OMV pomogą w opracowaniu nowych strategii szczepień, które już istnieją w przypadku zapalenia opon mózgowo-rdzeniowych typu B przenoszonego przez Neisseria meningitides33.
Wychodząc od protokołu izolacji i charakterystyki OMV, można go zastosować do innych bakterii Gram-ujemnych i innych komórek gospodarza; Wystarczy go dostosować do wzrostu bakterii w płynnej kulturze. Protokół opublikowany przez Chutkan i wsp. zawiera szczegółowe informacje na temat wytwarzania OMV z Escherichia coli i Pseudomonas aeruginosa30. Hodowla nie powinna osiągać późnej fazy stacjonarnej, aby uniknąć wzrostu liczby bakterii poddanych lizie oraz zanieczyszczania białek i błon. Dodatkowo, dawka OMV stosowana do stymulacji komórek gospodarza musi być określona w zależności od ilości OMV obecnych podczas infekcji in vivo , przy jednoczesnym zapewnieniu niskiego wskaźnika cytotoksyczności. W ten sposób można było zbadać patologiczną rolę OMV, ich wpływ na komunikację międzygatunkową oraz interakcje gospodarz-patogen.
Aby dalej badać rolę OMV L. pneumophila w zapaleniu płuc, potrzebne są standaryzowane preparaty OMV o wystarczającej wydajności i porównywalnych eksperymentach z infekcjami. Protokół ten pomoże ustandaryzować procedury izolacji i rozszerzyć badania OMV na inne bakterie Gram-ujemne i inne komórki gospodarza. Ponadto w badaniach wykorzystana zostanie szczegółowa wiedza z zakresu badań in vitro , która może zostać wykorzystana do rozszerzenia eksperymentów na warunki in vivo . W przyszłości protokół ten może zostać rozszerzony o izolację OMV z pierwotnego materiału biologicznego, takiego jak surowica lub płyn z płukania oskrzelowo-pęcherzykowego, aby uzyskać wgląd w skład OMV uwalnianych w warunkach fizjologicznych. Pomoże to w określeniu kluczowych parametrów składu OMV i zrozumieniu właściwości OMV generowanych in vitro.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy Prof. Dr. Markusowi Schnare'owi za dostarczenie nam myszy TLR2-/- i TLR2/4-/- oraz Prof. Dr. Carsten Kirschning za myszy TRIF/MyD88-/-. Część tych prac została sfinansowana przez Bundesministerium für Bildung und Forschung (e:bio miRSys - FKZ 0316175B, e:Med CAPSYS - FKZ 01X1304E; http://www.bmbf.de/), Deutsche Forschungsgemeinschaft (SFB/TR-84; http://www.sfb-tr84.de/) oraz Hessisches Ministerium für Wissenschaft und Kunst (LOEWE Medical RNomics - FKZ 519/03/00.001-(0003); http://www.proloewe.de/medicalrnomics), wszystkie dla BS.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 10 cm szalka | Petriego Sarstedt AG & Co KG (Nuembrecht, Niemcy) | 82.1473 | |
| 70 Ti rotor | Beckman Coulter Incorporation (Kalifornia, USA) | 337922 | |
| ACES | Carl Roth GmbH & Co KG (Karlsruhe, Niemcy) | 9138.2 | |
| węgiel aktywny | Carl Roth GmbH & Co KG (Karlsruhe, Niemcy) | X865.2 | |
| agar-agar, Kobe I | Carl Roth GmbH & Co KG (Karlsruhe, Niemcy) | 5210.2 | |
| Agar Columbia z 5% krwią owczą | Becton Dickinson GmbH (Heidelberg, Niemcy) | 254005 | |
| kuwety | Sarstedt AG & Co KG (Nuembrecht, Niemcy) | 67.742 | |
| ELISA (człowiek) | BD OptEIA&handel;; Becton Dickinson GmbH (Heidelberg, Niemcy) | IL-8: 555244 IL-6: 550799 | |
| ELISA (mysi) | DuoSet, R& D (Minneapolis, USA) | CXCL1: DY453-05 | |
| Fe(NO3)3x9H2O | Carl Roth GmbH & Co KG (Karlsruhe, Niemcy) | 5632.1 | |
| Surowica cielęca płodu (FCS) | Life Technologies GmbH (Darmstadt, Niemcy) | 10270-106 | |
| Inkubator CO2 Heracell 240i | Thermo Fisher Scientific Germany BV & Co KG (Brunszwik, Niemcy) | 40830469 | |
| Heraeus Multifuge X3R | Thermo Fisher Scientific Germany BV & Co KG (Brunszwik, Niemcy) | 75004515 | |
| Pętla inokulacyjna | Sarstedt AG & Co KG (Nuembrecht, Niemcy) | 86.1567.010 | |
| KOH | Carl Roth GmbH & Co KG (Karlsruhe, Niemcy) | 6751.1 | |
| L. pneumophila Corby | --- | --- | uprzejmie dostarczone przez prof. dr Antje Flieger (RKI, Berlin, Niemcy) |
| L. pneumophila Corby Δ flaA | --- | --- | uprzejmie dostarczone przez Prof. Dr Klausa Heunera (RKI, Berlin, Niemcy) |
| L-cystein | Carl Roth GmbH & Co KG (Karlsruhe, Niemcy) | ||
| PBS | Biochrom GmbH (Berlin, Niemcy) | L 1825 | |
| 12-mirystynian 13-octan forbolu | Sigma-Aldrich Chemie GmbH (Taufkirchen, Niemcy) | P8139-1MG | |
| Wytrząsarka obrotowa (MaxQ 6000) | Thermo Fisher Scientific Germany BV & Co KG (Brunszwik, Niemcy) | SHKE6000 | |
| RPMI 1640 high glucose | Life Technologies GmbH (Darmstadt, Niemcy) | 11875-093 | |
| saponin | Carl Roth GmbH & Co KG (Karlsruhe, Niemcy) | 9622.1 | |
| Ultrospec 10 | Biochrom Ltd (Cambridge, Anglia) | 80-2116-30 | |
| sterylny filtr (wielkość porów: 0,22 i mikro; m) | Corning Incorporated (Nowy Jork, USA) | 431096 | |
| THP-1 | Sigma-Aldrich Chemie GmbH (Taufkirchen, Niemcy) | 88081201-1VL | |
| Sorvall Discovery 100 SE | Thermo Fisher Scientific Germany BV & Co KG (Brunszwik, Niemcy) | ||
| ekstrakt drożdżowy | Carl Roth GmbH & Co KG (Karlsruhe, Niemcy) | 2363.2 | |
| Zestaw do oznaczania białek Pierce BCA | Thermo Fisher Scientific Germany BV & Co KG (Brunszwik, Niemcy) | 23225 |
Bibliografia
- Cambronne, E. D., Roy, C. R. Recognition and delivery of effector proteins into eukaryotic cells by bacterial secretion systems. Traffic. 7 (8), 929-939 (2006).
- Ellis, T. N., Kuehn, M. J. Virulence and immunomodulatory roles of bacterial outer membrane vesicles. Microbiol Mol Biol Rev. 74 (1), 81-94 (2010).
- Beveridge, T. J. Structures of gram-negative cell walls and their derived membrane vesicles. J Bacteriol. 181 (16), 4725-4733 (1999).
- Kuehn, M. J., Kesty, N. C. Bacterial outer membrane vesicles and the host-pathogen interaction. Genes Dev. 19 (22), 2645-2655 (2005).
- Chi, B., Qi, M., Kuramitsu, H. K. Role of dentilisin in Treponema denticola epithelial cell layer penetration. Res Microbiol. 154 (9), 637-643 (2003).
- Kolling, G. L., Matthews, K. R. Export of virulence genes and Shiga toxin by membrane vesicles of Escherichia coli O157:H7. Appl Environ Microbiol. 65 (5), 1843-1848 (1999).
- Horstman, A. L., Kuehn, M. J. Enterotoxigenic Escherichia coli secretes active heat-labile enterotoxin via outer membrane vesicles. J Biol Chem. 275 (17), 12489-12496 (2000).
- Dorward, D. W., Schwan, T. G., Garon, C. F. Immune capture and detection of Borrelia burgdorferi antigens in urine, blood, or tissues from infected ticks, mice, dogs, and humans. J Clin Microbiol. 29 (6), 1162-1170 (1991).
- Mashburn, L. M., Whiteley, M. Membrane vesicles traffic signals and facilitate group activities in a prokaryote. Nature. 437 (7057), 422-425 (2005).
- Kesty, N. C., Mason, K. M., Reedy, M., Miller, S. E., Kuehn, M. J. Enterotoxigenic Escherichia coli vesicles target toxin delivery into mammalian cells. EMBO J. 23 (23), 4538-4549 (2004).
- Abu Kwaik, Y., Gao, L. Y., Stone, B. J., Venkataraman, C., Harb, O. S. Invasion of protozoa by Legionella pneumophila and its role in bacterial ecology and pathogenesis. Appl Environ Microbiol. 64, 3127-3133 (1998).
- Winn, W. C., Myerowitz, R. L. The pathology of the Legionella pneumonias. A review of 74 cases and the literature. Hum Pathol. 12 (5), 401-422 (1981).
- Ge, J., Shao, F. Manipulation of host vesicular trafficking and innate immune defence by Legionella Dot/Icm effectors. Cell Microbiol. 13 (12), 1870-1880 (2011).
- Hubber, A., Roy, C. R. Modulation of host cell function by Legionella pneumophila type IV effectors. Annu Rev Cell Dev Biol. 26, 261-283 (2010).
- Fernandez-Moreira, E., Helbig, J. H., Swanson, M. S. Membrane vesicles shed by Legionella pneumophila inhibit fusion of phagosomes with lysosomes. Infect Immun. 74 (6), 3285-3295 (2006).
- Galka, F., et al. Proteomic characterization of the whole secretome of Legionella pneumophila and functional analysis of outer membrane vesicles. Infect Immun. 76 (5), 1825-1836 (2008).
- Jager, J., et al. Human lung tissue explants reveal novel interactions during Legionella pneumophila infections. Infect Immun. 82 (1), 275-285 (2014).
- Ellis, T. N., Leiman, S. A., Kuehn, M. J. Naturally produced outer membrane vesicles from Pseudomonas aeruginosa elicit a potent innate immune response via combined sensing of both lipopolysaccharide and protein components. Infect Immun. 78 (9), 3822-3831 (2010).
- Jager, J., Keese, S., Roessle, M., Steinert, M., Schromm, A. B. Fusion of Legionella pneumophila outer membrane vesicles with eukaryotic membrane systems is a mechanism to deliver pathogen factors to host cell membranes. Cell Microbiol. , (2014).
- Jung, A. L., et al. Legionella pneumophila-Derived Outer Membrane Vesicles Promote Bacterial Replication in Macrophages. PLoS Pathog. 12 (4), (2016).
- Jiang, Y., Kong, Q., Roland, K. L., Curtiss, R. Membrane vesicles of Clostridium perfringens type A strains induce innate and adaptive immunity. Int J Med Microbiol. 304 (3-4), 431-443 (2014).
- Whitmire, W. M., Garon, C. F. Specific and nonspecific responses of murine B cells to membrane blebs of Borrelia burgdorferi. Infect Immun. 61 (4), 1460-1467 (1993).
- Ismail, S., Hampton, M. B., Keenan, J. I. Helicobacter pylori outer membrane vesicles modulate proliferation and interleukin-8 production by gastric epithelial cells. Infect Immun. 71 (10), 5670-5675 (2003).
- Jager, J., Steinert, M. Enrichment of outer membrane vesicles shed by Legionella pneumophila. Methods Mol Biol. 954, 225-230 (2013).
- Park, E. K., et al. Optimized THP-1 differentiation is required for the detection of responses to weak stimuli. Inflamm Res. 56 (1), 45-50 (2007).
- Casson, C. N., et al. Human caspase-4 mediates noncanonical inflammasome activation against gram-negative bacterial pathogens. Proc Natl Acad Sci U S A. 112 (21), 6688-6693 (2015).
- Molofsky, A. B., Shetron-Rama, L. M., Swanson, M. S. Components of the Legionella pneumophila flagellar regulon contribute to multiple virulence traits, including lysosome avoidance and macrophage death. Infect Immun. 73 (9), 5720-5734 (2005).
- Isaac, D. T., Laguna, R. K., Valtz, N., Isberg, R. R. MavN is a Legionella pneumophila vacuole-associated protein required for efficient iron acquisition during intracellular growth. Proc Natl Acad Sci U S A. 112 (37), 5208-5217 (2015).
- Zhu, W., et al. Sensing cytosolic RpsL by macrophages induces lysosomal cell death and termination of bacterial infection. PLoS Pathog. 11 (3), 1004704(2015).
- Chutkan, H., Macdonald, I., Manning, A., Kuehn, M. J. Quantitative and qualitative preparations of bacterial outer membrane vesicles. Methods Mol Biol. 966, 259-272 (2013).
- Macdonald, I. A., Kuehn, M. J. Stress-induced outer membrane vesicle production by Pseudomonas aeruginosa. J Bacteriol. 195 (13), 2971-2981 (2013).
- Klimentova, J., Stulik, J. Methods of isolation and purification of outer membrane vesicles from gram-negative bacteria. Microbiol Res. 170, 1-9 (2015).
- Novartis.com. , Available from: https://www.novartis.com/news/media-releases/novartis-bexsero%C2%AE-vaccine-approved-fda-prevention-meningitis-b-leading-cause (2016).
Przedruki i uprawnienia
