Fizyczne modele biomolekuł mogą ułatwić badaczowi zrozumienie ich struktury-funkcji, pomóc w komunikacji między badaczami i służyć jako narzędzie edukacyjne w przedsięwzięciach pedagogicznych. Tutaj przedstawiamy szczegółowe wskazówki dotyczące drukowania 3D dokładnych modeli biomolekuł przy użyciu stacjonarnych drukarek 3D do produkcji topionych włókien
.Artykuł metodologiczny
Druk 3D modeli biomolekularnych do badań i pedagogiki
W tym artykule
Podsumowanie
Streszczenie
Budowa fizycznych trójwymiarowych (3D) modeli biomolekuł może w unikalny sposób przyczynić się do badania struktury i funkcji, relationship. 3D struktury są najczęściej postrzegane za pomocą dwuwymiarowego i wyłącznie wizualnego medium ekranu komputera. Przekształcanie cyfrowych danych molekularnych 3D w rzeczywiste obiekty umożliwia postrzeganie informacji za pomocą rozszerzonego zakresu ludzkich zmysłów, w tym bezpośredniego widzenia stereoskopowego, dotyku i interakcji. Takie namacalne modele ułatwiają nowe spostrzeżenia, umożliwiają testowanie hipotez i służą jako psychologiczne lub sensoryczne kotwice dla koncepcyjnych informacji o funkcjach biomolekuł. Ostatnie postępy w technologii konsumenckiego druku 3D umożliwiają po raz pierwszy opłacalne wytwarzanie wysokiej jakości i naukowo dokładnych modeli biomolekuł w różnych reprezentacjach molekularnych. Jednak optymalizacja wirtualnego modelu i jego parametrów drukowania jest trudna i czasochłonna bez szczegółowych wskazówek. W tym miejscu przedstawiamy przewodnik po cyfrowym projektowaniu i fizycznym wytwarzaniu modeli biomolekuł do badań i pedagogiki przy użyciu oprogramowania typu open source lub taniego oprogramowania i tanich drukarek 3D wykorzystujących technologię wytwarzania topionych włókien.
Wprowadzenie
Dokładne zrozumienie funkcji i aktywności biomolekuły wymaga określenia jej trójwymiarowej (3D) struktury. Rutynowo osiąga się to za pomocą krystalografii rentgenowskiej, NMR lub mikroskopii elektronowej. Struktury 3D można zrozumieć poprzez percepcję modeli lub dokładnych obiektów przypominających struktury, które reprezentują1. Historycznie rzecz biorąc, budowa fizycznych modeli 3D była niezbędna, aby badacze mogli zweryfikować, zbadać i przekazać wynikające z tego hipotezy dotyczące funkcji biomolekuł. Modele te, takie jak podwójna helisa DNA Watsona-Cricka i alfa helisa Paulinga, dostarczyły unikalnego wglądu w relacje struktura-funkcja i miały kluczowe znaczenie dla naszego wczesnego zrozumienia funkcji struktury kwasu nukleinowego i białka2,3,4. Chociaż można tworzyć złożone modele białek i kwasów nukleinowych, czas i koszt budowy modelu fizycznego został ostatecznie przeważony przez względną łatwość komputerowej wizualizacji molekularnej.
Rozwój druku 3D, znanego również jako produkcja addytywna, ponownie umożliwił budowę fizycznych modeli biomolekuł5. 3D drukowanie to proces wytwarzania fizycznego, 3D obiektu z pliku cyfrowego poprzez sekwencyjne dodawanie warstw materiału. W procesie tym wykorzystywane są różne mechanizmy. Do niedawna maszyny używane do produkcji fizycznych modeli biomolekuł były zbyt drogie, aby mogły być powszechnie stosowane. Jednak w ciągu ostatniej dekady technologia druku 3D, w szczególności produkcja topionych włókien (FFF), znacznie się rozwinęła, dzięki czemu jest dostępna do użytku konsumenckiego6. Drukarki FFF są obecnie powszechnie dostępne w szkołach średnich, bibliotekach, uniwersytetach i laboratoriach. Większa przystępność cenowa i dostępność technologii druku 3D umożliwiła konwersję cyfrowych modeli biomolekularnych 3D w dokładne, fizyczne modele biomolekularne 3D7,8,9. Takie modele obejmują nie tylko proste reprezentacje pojedynczych biomolekuł, ale także złożone zespoły makromolekularne, takie jak struktury rybosomu i kapsydu wirusa. Jednak proces drukowania pojedynczych biomolekuł i zespołów makromolekularnych stwarza kilka wyzwań, szczególnie w przypadku stosowania metod wytłaczania termoplastycznego. W szczególności reprezentacje biomolekuł często mają złożoną geometrię, która jest trudna do wytworzenia przez drukarki, a tworzenie i przetwarzanie modeli cyfrowych, które zostaną pomyślnie wydrukowane, wymaga umiejętności w zakresie modelowania molekularnego, modelowania 3D i oprogramowania do drukarek 3D.
Proces drukowania biomolekuły w 3D przebiega zasadniczo w czterech etapach: (1) przygotowanie modelu biomolekularnego z pliku współrzędnych do druku 3D; (2) zaimportowanie modelu biomolekularnego do oprogramowania do "krojenia" w celu segmentacji modelu dla drukarki i wygenerowania struktury nośnej, która fizycznie podeprze model biomolekularny; (3) wybór odpowiedniego filamentu i wydrukowanie modelu 3D; oraz (4) etapy obróbki poprodukcyjnej, w tym usunięcie materiału podporowego z modelu (rysunki 1 i 2). Pierwszy krok w tym procesie, czyli obliczeniowe manipulowanie plikiem współrzędnych biocząsteczki, ma kluczowe znaczenie. Na tym etapie użytkownik może budować zbrojenia modelu w postaci rozpór, a także usuwać konstrukcje, które są obce w stosunku do tego, co użytkownik zdecyduje się wyświetlić. Ponadto na tym etapie dokonywany jest wybór reprezentacji: czy wyświetlić całość lub część biomolekuły jako reprezentację powierzchniową, wstęgi i/lub pojedyncze atomy. Po dokonaniu niezbędnych uzupełnień i/lub odejmowania treści i wybraniu reprezentacji konstrukcja jest zapisywana jako plik modelu 3D. Następnie plik jest otwierany w drugim oprogramowaniu w celu przekształcenia modelu w plik do druku 3D, który można wydrukować, warstwa po warstwie, w plastikową replikę biomolekuły.
Celem naszego protokołu jest udostępnienie produkcji modeli molekularnych dużej liczbie użytkowników, którzy mają dostęp do drukarek FFF, ale nie do droższych technologii druku 3D. Tutaj przedstawiamy przewodnik po drukowaniu 3D biomolekuł z danych molekularnych 3D, z metodami zoptymalizowanymi pod kątem drukowania FFF. Szczegółowo opisujemy, jak zmaksymalizować drukowalność złożonych struktur biomolekularnych i zapewnić prostą obróbkę końcową modeli fizycznych. Porównano właściwości kilku popularnych materiałów drukarskich lub filamentów oraz przedstawiono zalecenia dotyczące ich wykorzystania do tworzenia elastycznych wydruków. Na koniec prezentujemy serię przykładów modeli biomolekularnych drukowanych w 3D, które demonstrują użycie różnych reprezentacji molekularnych.
Protokół
1. Przygotowanie plików modeli 3D do druku
UWAGA: Pliki modeli 3D biomolekuł mogą być generowane na dwa sposoby: (1) online za pomocą zautomatyzowanych narzędzi NIH 3D Print Exchange10, lub (2) lokalnie za pomocą oprogramowania do modelowania molekularnego. Modele generowane automatycznie będą używać procesów opisanych w tym protokole do tworzenia reprezentacji do druku, ale użytkownik nie może wybrać szczegółów reprezentacji. Z kolei generowanie modeli niestandardowych pozwala użytkownikowi na kontrolę nad wizualnymi właściwościami biomolekuły. Można wyświetlić poszczególne atomy, reszty i wiązania, a także określić skalę wstęg, wiązań i rozpórek. Zautomatyzowane narzędzia NIH 3D Print Exchange i poniższy protokół wykorzystują UCSF Chimera, bezpłatny pakiet oprogramowania do modelowania molekularnego o otwartym kodzie źródłowym11, który dobrze nadaje się do eksportowania plików 3D biomolekuł. Wszystkie pliki 3D eksportowane przez Chimera używają angstremów jako jednostki odległości. Gdy pliki te zostaną zaimportowane do oprogramowania do krojenia z prędkością 1 mm na odległość, modele zostaną przeskalowane w powiększeniu 10 milionów razy.
- Automatycznie generuj model do druku 3D za pomocą NIH 3D Print Exchange
UWAGA: NIH 3D Print Exchange uruchamia skrypty Chimera, które są podobne do kroków opisanych w krokach 1.2-1.3.- Zlokalizuj plik danych molekularnych struktury biomolekularnej, aby wydrukować go z bazy danych - PDB, EMDB lub PubChem (suplement 1.1). Zapisz numer dostępu dla biomolekuły będącej przedmiotem zainteresowania.
- Przejdź do NIH 3D Print Exchange (3dprint.nih.gov) i utwórz nowe konto użytkownika, jeśli jesteś pierwszym użytkownikiem.
- Przejdź do funkcji "Szybkie przesyłanie", wprowadź kod dostępu do biomolekuły i kliknij Prześlij.
- Po wygenerowaniu modelu biomolekuły przejdź do strony modelu i pobierz plik STL biomolekuły w reprezentacji "wstążki" lub "powierzchni". Przejdź do sekcji 2 protokołu.
- Wygeneruj niestandardowy model molekularny za pomocą UCSF Chimera
UWAGA: Więcej szczegółów na temat używania Chimery do tworzenia modeli 3D, w tym odpowiedniki wiersza poleceń dla wielu kroków, można znaleźć w suplemencie 1.2.- Pobierz i zainstaluj UCSF Chimera (https://www.cgl.ucsf.edu/chimera/download.html).
- Korzystając z Chimery, pobierz plik danych molekularnych, wykonując jedną z następujących czynności:
- Korzystając z polecenia File > Fetch by ID, na pasku narzędzi wprowadź kod dostępu Pubchem, PDB lub EMDB, aby pobrać plik bezpośrednio z bazy danych.
- Korzystając z polecenia paska narzędzi Plik > Otwórz, pobierz lokalny plik danych molekularnych; domyślnie cząsteczka będzie wyświetlać wstęgi dla białka i kwasu nukleinowego, atomy i wiązania dla ligandów oraz reszty w odległości 5 A od liganda.
- Korzystając z wiersza poleceń Chimera, do którego można uzyskać dostęp, przechodząc do Ulubionych > wiersza poleceń, użyj polecenia Otwórz i wprowadź kod dostępu.
- Przygotowanie reprezentacji biomolekuły do druku 3D
UWAGA: Istnieje kilka sposobów wyświetlania lub przedstawiania struktury biomolekularnej. Wybór konkretnej reprezentacji do druku powinien być dokonany w oparciu o to, jak najlepiej zapewnić jak największy wgląd w strukturę i funkcję biomolekuły. Powszechnie używane reprezentacje to "wstęgi", "powierzchnia" i "atomy/wiązania". Jednak najlepiej jest zbadać przy użyciu kombinacji tych reprezentacji w celu wyświetlenia wybranych łańcuchów bocznych lub ligandów. Ponadto konstrukcja wydrukowana w 3D powinna być wystarczająco wytrzymała, aby można ją było wydrukować i nie pękać podczas obsługi. Dlatego ważne jest, aby wziąć to pod uwagę przy wyborze reprezentacji lub wyświetlaniu łańcucha bocznego. Rozważ również wprowadzenie konstrukcji wsporczych lub "rozpórek". Wreszcie, podczas drukowania modelu, ważne będzie jego przeskalowanie, aby wszystkie funkcje zostały wydrukowane poprawnie. W związku z tym w przypadku większych biomolekuł drukowanie w całości na taśmach lub reprezentacjach atomów może nie być możliwe ze względu na skalę, w jakiej musiałyby one zostać wydrukowane.- Generowanie reprezentacji do druku 3D w "wstążkach"
Uwaga: Więcej szczegółów można znaleźć w suplemencie 1.2.1.- Wybierz widoczny "rozpuszczalnik", który zawiera jony, używając opcji Wybierz > strukturę > rozpuszczalnika.
- Ukryj wybrany "rozpuszczalnik" za pomocą Czynności > Atomy/Wiązania > Ukryj.
- Pogrub średnicę taśmy, aby można ją było z powodzeniem zadrukować. Użyj menu Edytor stylów wstążki w obszarze Narzędzia > Depiction.
UWAGA: Sugerowane parametry dla pierwszej próby: >na karcie Skalowanie zmień Wysokość każdego elementu na co najmniej 0,7, a szerokość każdego ustawienia na co najmniej następczą: Cewka 0,7; Helisa 1.4; Arkusz:1.4; Strzałka (podstawa): 2,1; Strzałka (końcówka) 0,7; Nukleinowy 1.0. - Jeśli kwas nukleinowy jest obecny, zmień reprezentację zasady za pomocą ustawień > Działania > atomy/wiązania > obiektach nukleotydowych. Zmień wyświetlanie cukru/bazy na drabinę, a promień szczebla na 0,6.
- Opcjonalnie: Przejdź do kroku 1.3.3, aby wprowadzić konstrukcje podporowe.
- Wygeneruj drukowaną w 3D "powierzchniową" reprezentację cząsteczki
UWAGA: Więcej szczegółów można znaleźć w suplemencie 1.2.2.- Ukryj wszystkie poprzednie reprezentacje. Użyj Akcji > Atomy/Wiązania, > ukryj, a Akcje > Wstążki > ukryj.
- Podczas renderowania atomów jako sfer dostosuj promień, wybierając żądane atomy i przechodząc do menu Akcje > Sprawdź.
UWAGA: Zmiana domyślnego promienia atomowego może ułatwić rozróżnianie różnych typów atomów w drukowanym modelu. - Ukryj wszystkie wyświetlane wstążki, atomy, wiązania i pseudowiązania za pomocą opcji Akcje > Atomy/Wiązania > Ukryj i Akcje > Wstążki > Ukryj.
- Jeśli pożądane są szczegóły powierzchni, dodaj atomy wodoru, aby obliczenia powierzchni były dokładniejsze. Użyj narzędzi > edycji struktury > AddH.
- Wygeneruj powierzchnię, wpisując surf #0 grid 0.5 w wierszu poleceń.
- Wygeneruj reprezentację do druku 3D w "atomach/wiązaniach"
UWAGA: Więcej szczegółów można znaleźć w suplemencie 1.2.3.- Ukryj rozpuszczalnik. Użyj opcji Wybierz > Struktura > rozpuszczalnika, a następnie Działania > Atomy/Wiązania > ukryj.
- Wyświetlaj określone reszty i/lub ligandy w reprezentacji jako atomy i wiązania, wybierając i pokazując je za pomocą > pokazania Działania > Atomy/Wiązania. Sposób, w jaki atomy są reprezentowane, można zmienić w menu rozwijanym Akcje > atomy/wiązania, wybierając kij, piłkę i kij lub kulę.
- Po dokonaniu wyboru zwiększ promień kija lub piłki i reprezentacji drążka za pomocą menu Akcje > Inspekcji.
- Opcjonalnie: Przejdź do kroku 1.3.4, aby wprowadzić konstrukcje podporowe.
- Generowanie reprezentacji do druku 3D w "wstążkach"
- Dodawanie podpory konstrukcyjnej do reprezentacji do druku 3D
UWAGA: Więcej szczegółów można znaleźć w suplementach 1.2.4 i 1.2.5. Na tym etapie do modelu 3D można dodać rozpórki. Zaleca się, aby struktury drugorzędowe alfa-helis i arkuszy beta zawierały wiązania wodorowe w celu zapewnienia stabilności, chociaż małe białka (tj. mniej niż 50 reszt) są często reprezentowane jako wstęga o typowej grubości i mogą dobrze drukować bez takiego wsparcia. Jednak w przypadku większych białek, nawet po dodaniu wiązań wodorowych, wiele modeli wstęg jest nadal zbyt delikatnych, aby można je było z powodzeniem wydrukować. Rozpórki to fizyczne połączenia w modelu, które nie odzwierciedlają żadnych właściwości molekularnych, ale zwiększają wytrzymałość mechaniczną, ułatwiając w ten sposób drukowanie i obsługę. Chimera oferuje szybki sposób automatycznego dodawania rozpórek do modelu za pomocą polecenia rozpórki za pomocą wiersza poleceń, a poszczególne rozpórki mogą być również wyświetlane ręcznie za pomocą narzędzia Odległości.- Wyświetlaj wiązania wodorowe, aby przygotować mocniejszy wydruk. Skorzystaj z menu Narzędzia > Analiza konstrukcji > FindHBond.
- Użyj narzędzi > Ogólne elementy sterujące > panelu PseudoBond, aby zmodyfikować wiązania wodorowe. Wybierz pseudowiązania "wiązań wodorowych", kliknij przycisk atrybutów i zaznacz pole "Atrybuty pseudowiązania komponentu". W dolnym panelu zmień styl wiązania z drutu na klej i wartość promienia z 0,2 na 0,6.
- Opcjonalnie: Dodaj konstrukcje podporowe lub "rozpórki" za pomocą polecenia rozpórki. Aby utworzyć niebieskie rozpórki o promieniu 1,0 A w alfa węgla na każde 70 pozostałości nie dalej niż 8 A od siebie, użyj polecenia: rozpórki @ca długość 8 pętla 70 kolor niebieski rad 1,0 fattenRibbon false.
- Opcjonalnie: Aby utworzyć pojedyncze rozpórki za pomocą narzędzia Odległości, wybierz dwa atomy, klikając każdy z nich z wciśniętym Shift, Ctrl, użyj opcji Narzędzia > Analiza konstrukcji > Odległości i kliknij przycisk Utwórz, aby dodać pseudowiązanie. Przejdź do panelu PseudoBond, wybierz pseudowiązania "monitor odległości", kliknij przycisk atrybutów i zaznacz pole "Atrybuty pseudowiązania komponentu". W dolnym panelu zmień styl wiązania z drutu na klej i wartość promienia z 0,2 na 0,01.
- Eksportowanie renderingu Chimery jako pliku modelu 3D STL
- Po uzyskaniu żądanej reprezentacji użyj polecenia Plik > Eksportuj scenę, aby wyeksportować plik 3D. Wybierz STL jako typ i nazwę pliku, a następnie zapisz model. Uwaga: Ten plik STL można naprawić, zorientować i wydrukować zgodnie z opisem w sekcji 2 protokołu.
2. Przetwarzanie plików STL do druku
- Napraw pliki STL za pomocą Autodesk Netfabb
UWAGA: Model może wymagać naprawy, jeśli zawiera wiele nakładających się na siebie elementów o przecinających się geometriach, co zwykle ma miejsce w przypadku modeli wstęgowych i modeli atomowych. Nakładająca się geometria może powodować błędy, gdy plik jest odczytywany przez niektóre programy do krojenia, ponieważ przecinające się obszary mogą być interpretowane jako zewnętrzna strona modelu. Więcej szczegółów można znaleźć w suplemencie 2.1.- Pobierz i zainstaluj wersję standardową oprogramowania.
- Otwórz program i zaimportuj plik STL do naprawy. Jeśli wystąpią problemy z siatką, zostanie wyświetlony znak ostrzegawczy.
- Użyj dodatków > Automatycznej naprawy części, wybierz opcję Naprawa rozszerzona i poczekaj, aż plik zostanie przetworzony; w przypadku małych modeli zajmie to kilka sekund, ale w przypadku dużych modeli może to potrwać kilka minut.
- Kliknij model prawym przyciskiem myszy i wybierz Eksportuj część > jako STL lub użyj opcji Project > Eksportuj projekt jako STL, aby zapisać naprawiony model; program doda "naprawiony" do nazwy pliku, aby odróżnić go od oryginalnego pliku.
- Orientowanie modeli do drukowania za pomocą Autodesk Meshmixer
UWAGA: Optymalna orientacja modelu przed krojeniem zmniejszy liczbę zwisów, a tym samym liczbę podpór wymaganych podczas procesu drukowania. Optymalnie zorientowany model będzie drukował szybciej, zużywa mniej materiału i jest mniej podatny na awarie podczas drukowania. Więcej szczegółów można znaleźć w suplemencie 2.2.- Pobieranie i instalowanie oprogramowania
- Zaimportuj naprawiony plik STL do programu.
- Wybierz opcję Analiza > orientacji.
- Dostosuj wartość Siła ciężaru na 100, wartość Ciężar objętości podpory na 0, Ciężar obszaru podpory na 0, a następnie zaktualizuj model. Spowoduje to obrócenie modelu w celu zminimalizowania liczby zwisów. Zaakceptuj wynikową orientację.
- Użyj opcji Plik > Eksportuj i wybierz binarny plik STL z menu rozwijanego. Zapisz plik.
3. Krojenie i drukowanie
- Wybierz materiał filamentu
UWAGA: Wyboru materiału do drukowania należy dokonać przed użyciem oprogramowania do krojenia, ponieważ ustawienia drukowania będą się różnić w zależności od wybranego materiału. Trzy materiały, które są szeroko stosowane, to kwas polimlekowy (PLA), elastomery termoplastyczne (TPE) i akrylonitryl-butadien-styren (ABS). PLA jest na ogół najbardziej efektywnym materiałem do drukowania szczegółowych modeli molekularnych, ponieważ szybko się ochładza, dobrze przylega do platformy roboczej i rzadko się wypacza. TPE jest materiałem podobnym do PLA i może być używany do produkcji elastycznych modeli. Jest zalecany do komplementarnych modeli powierzchni białek lub modeli wstęg białkowych. ABS jest mocniejszy i bardziej elastyczny niż PLA, ale wytwarza potencjalnie niebezpieczne cząstki podczas drukowania12. Generalnie nie jest zalecany do drukowania modeli molekularnych, ponieważ wyższa temperatura materiału powoduje mniej precyzyjne wytwarzanie małych elementów. Więcej szczegółów można znaleźć w suplemencie 3.1.- Druk z użyciem kwasu polimlekowego (PLA).
- Ustaw temperaturę dyszy na 210 °C. Aby zapewnić przyczepność części do stołu, ustaw temperaturę stołu na 70 °C. Jeśli używasz nieogrzewanego łóżka, przykryj je taśmą malarską. Korzystaj z aktywnego chłodzenia.
- Druk elastomerami termoplastycznymi (TPE)
- Powtórz krok 3.1.1.1. Ustaw prędkość drukowania na 1 200 mm/min lub mniej.
- Druk z akrylonitryl-butadien-styrenem (ABS)
- Nie używaj chłodzenia. Ustaw temperaturę dyszy na 240 °C. Aby zapewnić przyczepność części do stołu, ustaw temperaturę stołu na 110 °C.
- Druk z użyciem kwasu polimlekowego (PLA).
- Wygeneruj G-code
UWAGA: Model zostanie domyślnie zaimportowany w powiększeniu 10 milionów razy. Modele wstążek powinny być skalowane do 20 milionów razy (200%) lub więcej. Modele powierzchniowe są drukowane dobrze przy 100% lub wyższej. Więcej szczegółów można znaleźć w suplemencie 3.2.- Pobierz i zainstaluj oprogramowanie do krojenia drukowania.
- Użyj opcji Plik > importuj model i wybierz naprawiony i zorientowany plik STL.
- Przeskaluj model klikając dwukrotnie na model i wprowadzając współczynnik skalowania w oknie po prawej stronie ekranu.
- Wygeneruj konstrukcje podporowe dla modelu. Wybierz ikonę podpory i użyj normalnych podpór o rozdzielczości słupka 1 i maksymalnym kącie wysięgu 50°.
- Kliknij przycisk Generuj wszystkie podpory. Dodawanie lub usuwanie elementów struktury podpory w celu dostosowania rozmieszczenia podpory.
- Wybierz proces i kliknij edytuj ustawienia procesu.
- Skonfiguruj profil dla drukarki i materiału, który jest używany.
UWAGA: W zestawie powinna znajdować się tratwa i rondo, a modele wstążek powinny być drukowane z wypełnieniem 100%. Szczegółowe ustawienia profilu znajdują się w suplemencie 3.2. - Przekonwertuj model na plik G-code, który może być odczytany przez drukarkę. Kliknij przycisk "przygotuj do druku" i wybierz proces zawierający profil drukarki/materiału. Obserwuj drogę dyszy drukarki i sprawdź, czy nie ma błędów, które mogłyby spowodować niepowodzenie drukowania.
UWAGA: Błędy, które mogą spowodować niepowodzenie drukowania, obejmują brak podpór pod zwisami, niepożądane wgłębienia, brakujące warstwy lub obszary, które są zbyt cienkie, aby można było wydrukować. - Zapisz plik G-code na pulpicie lub bezpośrednio na karcie SD.
- Obsługa drukarki
UWAGA: Każda marka lub model drukarki jest unikalny, a jej przygotowanie i kalibracja do drukowania będą się odpowiednio różnić. Zapoznaj się z instrukcją obsługi drukarki.- Upewnij się, że stacja robocza jest podłączona do drukarki lub że w drukarce znajduje się karta SD z GCODE.
- Przygotuj drukarkę, ładując filament i upewniając się, że stół jest wypoziomowany; instrukcje dotyczące tych procedur można znaleźć w instrukcji obsługi drukarki.
- Rozpocznij drukowanie z komputera lub lokalnie z karty SD za pomocą menu drukarki.
- Obserwuj wydruk, aż pierwsza warstwa zostanie pomyślnie wykonana. Jeśli wystąpią jakiekolwiek błędy w pierwszej warstwie, przerwij drukowanie i uruchom je ponownie.
4. Przetwarzanie postprodukcyjne
UWAGA: Oczywiście należy zachować ostrożność na tym, końcowym etapie. Konstrukcje wsporcze na modelu należy usunąć. Zazwyczaj odbywa się to ręcznie, chociaż można zastosować alternatywne podejścia, takie jak użycie rozpuszczalnego nośnika; Patrz suplement 4.
- Odłącz wydruk od platformy roboczej, delikatnie pociągając go na boki. Jeśli tratwa mocno przylega do platformy roboczej, oddziel ją, wkładając między nie ostrą krawędź.
- Usuń konstrukcje podporowe z modelu. Wiele podpór można usunąć ręcznie, odrywając je od części i tratwy. Elastyczne modele można odczepić, odciągając je od części. W przypadku podpór, które są trudno dostępne lub są połączone z delikatnymi konstrukcjami, użyj szczypiec tnących, aby przyciąć punkt, w którym podpora łączy się z częścią.
Wyniki
Stabilne i informacyjne modele biomolekuł do druku 3D można przygotować poprzez: (i) pogrubienie wiązań w celu zapewnienia stabilności, (ii) staranny wybór typu lub stylu reprezentacji struktury drugorzędowej, który zapewni największy wgląd i stabilność, (iii) wydrukowanie biomolekuły w więcej niż jednej reprezentacji molekularnej, (iv) zastosowanie filamentu, który uczyni całą lub część biomolekuły elastyczną, lub (v) stworzenie złożonego zestawu o charakterze modułowym (t.j. składającego się z łącznych elementów).
Aby zilustrować sposób drukowania tak informatycznych i stabilnych modeli, skupiliśmy się na komponentach chromatyny i stworzeniu hipotetycznego modelu chromatyny. Chromatyna jest wysoce złożonym kompleksem białkowo-DNA. Podstawową podjednostką białkową chromatyny jest białko histonowe. Istnieją cztery białka histonowe, z których każde składa się z motywu helisa-pętla-helisa (tzw. „fałd histonowy”), po którym następuje rozciągnięta helisa alfa i drugi „fałd histonowy”. Strukturę białka histonowego można łatwo odwzorować, stosując reprezentację „wstążkową” (Rysunek 3A). Alternatywnie strukturę białka histonowego można wyświetlić, ukazując jedynie jego powierzchnię (Rysunek 3B). Występują dwie kopie każdego z czterech białek histonowych, które łączą się, tworząc globularny oktamer histonowy. Oktamer histonowy jest zbyt duży, aby wydrukować go w całości jako reprezentację wstążkową lub prętową, ze względu na większą skalę, w jakiej te elementy musiałyby zostać wydrukowane. Dlatego tak duży kompleks białkowy najlepiej przedstawić za pomocą reprezentacji powierzchniowej (Rysunek 3C). DNA przebiega wokół oktameru histonowego, tworząc cząsteczkę rdzenia nukleosomu o średnicy 10 nm. Ścieżkę DNA najlepiej przedstawić, drukując dwa oddzielne modele i wykorzystując elastyczny filament dla DNA (Rysunek 3D). Cząsteczki rdzenia nukleosomu układają się jedna na drugiej, tworząc strukturę wyższego rzędu – „włókno” o średnicy 30 nm, będące lewoskrętną strukturą suprahelikalną. Aby najlepiej zilustrować, w jaki sposób cząsteczki rdzenia nukleosomu o rozmiarze 10 nm mogą się układać, tworząc strukturę chromatyny o średnicy 30 nm, należy wydrukować pojedyncze cząsteczki „di-nukleosomów” (Rysunek 3E), a następnie ułożyć je po wydrukowaniu (Rysunek 3F).
Po opanowaniu opisanego powyżej procesu tworzenia pojedynczych powierzchni ekstruzyjnych i wstęg, warto spróbować stworzenia szeregu modeli atomowych, molekularnych i kompozytowych, przedstawionych na Ryc. 4. Na przykład, można połączyć reprezentacje powierzchniowe i wstęgowe, aby wyróżnić różne części kompleksu (patrz polimeraza DNA, Ryc. 4B). Bardziej pouczające i atrakcyjne modele można uzyskać, korzystając z drukarki z podwójną ekstruzją, która potrafi jednocześnie przetapiać dwa filamenty w jeden obiekt 3D (patrz Ryc. 4C). Alternatywnie można pomalować poszczególne części modeli (patrz guanina i alfa helisa, Ryc. 4A). Można wydrukować i złożyć podjednostki kompleksu białkowego, takiego jak kanał sodowy, lub pójść o krok dalej, drukując odrębne części kompleksu i składając je później w większy, wielokolorowy model (patrz kompleksy przeciwciała HIV i rybosomalne, Ryc. 4C). Takie modele kompozytowe lepiej oddają cechy funkcjonalne w porównaniu do wydruków z jednego filamentu. Różne kolory mogą wyróżniać, na przykład, glikozylację w stosunku do białka (model HIV) lub RNA w stosunku do białka (patrz model rybosomu, Ryc. 4C). Pozwalają one również na tworzenie edukacyjnych puzzli 3D, takich jak przeciwciało wiążące się z powierzchnią HIV (patrz gp120 związane z przeciwciałem, Ryc. 4C), gdzie tylko jedna konfiguracja 3D zapewnia dokładne dopasowanie obu części. Instrukcje dotyczące drukowania tych modeli znajdują się w suplemencie 5. Dodatkowo udostępniliśmy uzupełniający film obrazujący konstrukcję modelu 3D protonowej syntazy ATP Fo/F1, która została wydrukowana w częściach i złożona w taki sposób, aby mogła odtwarzać mechanizm rotacyjny występujący podczas działania katalitycznego tego enzymu.

Rysunek 1. Schemat przygotowania i drukowania modelu 3D. Przedstawiono etapy wytwarzania fizycznego biomolekularnego wydruku 3D: (i) przygotowanie modelu, w tym wybór reprezentacji; (ii) otwarcie zapisanego pliku .stl modelu i przetworzenie go za pomocą oprogramowania do slicingu; (iii) wydrukowanie modelu oraz wybór materiału lub filamentu; i na koniec, (iv) wykonanie kroków postprodukcyjnych. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 2. Wygląd różnych reprezentacji modeli na poszczególnych etapach przygotowania. Górny rząd: Typowe reprezentacje dwóch modeli (ubikwityny (PDB 1UBQ) i argininy) zwizualizowane za pomocą programu Chimera. Środkowy rząd: Ścieżka narzędzia drukującego wygenerowana z modeli STL z programu Chimera, z kolorami przypisanymi do typów cech ubikwityny i argininy (pomarańczowy: wzór wypełnienia; ciemnoniebieski: powłoka zewnętrzna; jasnoniebieski: powłoka wewnętrzna). Dolny rząd: Gotowe wydruki ubikwityny i argininy. Model powierzchniowy oraz dwa modele wstążkowe ubikwityny wydrukowane przy 300% domyślnego wyjścia STL programu Chimera (domyślnie w programie Chimera 1 nm w modelu odpowiada 1 cm w wydruku), natomiast model argininy wydrukowano przy 1 000%. Domyślne modele wstążkowe lub prętowe programu Chimera są zbyt cienkie, aby można je było poprawnie wydrukować, ale wersje pogrubione drukują się niezawodnie. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
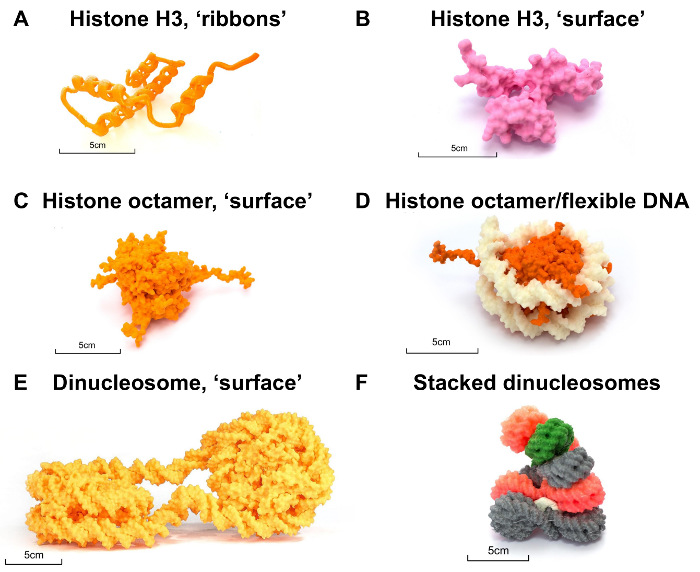
Rysunek 3. Studium przypadku nukleosomu. (A) Białko pojedynczej histony H3 przedstawione poprzez pogrubienie „wstążek”, wydrukowane w skali 300%. (B) Reprezentacja „powierzchni” białka histony H3, wydrukowana w skali 200%. (C) Oktamer białka histonowego wydrukowany w skali 100%. (D) Oktamer białka histonowego (pomarańczowy) w kompleksie z elastycznym DNA (biały), wydrukowany w skali 100%. (E) Model powierzchniowy dinukleosomu wydrukowany z domyślnym promieniem sondy w skali 100%. (F) Model chromatynowego „włókna 30-nm” stworzony poprzez ręczne układanie pojedynczo wydrukowanych modeli „10-nm” dinukleosomu, w których powierzchnia została wyrenderowana z promieniem sondy 3 Å, wydrukowany w rozmiarach 50% i 25% i połączony masą Play-Doh. Wydruki 3D zostały wygenerowane z modelu dinukleosomu (PDB 1ZBB). Wszystkie modele są dostępne bezpłatnie do pobrania w NIH 3D Print Exchange11. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.

Rycina 4. Przykłady modeli drukowanych w technologii 3D za pomocą drukarek filamentowych. (A) Po lewej model kulowo-pręcikowy cząsteczek wody w heksagonalnych kryształach lodu (wydruk dwuniciowy). W środku model nukleotydu (guaniny). Po prawej model samego szkieletu alfa-helisy białkowej z zaznaczonymi wiązaniami wodorowymi (kolor czarny). Guanina i alfa-helisa zostały pokolorowane ręcznie markerami. (B) Po lewej kanał sodowy, składający się z 4 podjednostek, które mogą być ze sobą połączone (PDB 3E89). Środek, Plasmodium falciparum L-mleczan dehydrogenaza (PDB 1T2D) przedstawiona w formie wstążek. Po prawej model centrum aktywnego polimerazy DNA (PDB 1KLN), w którym DNA przedstawiono jako powierzchnię, a białko jako wstążki. (C) Po lewej: lipidowa otoczka HIV z glikoproteiną (PDB 5FUU) związaną z przeciwciałami (PDB 1IGT), wydruk w skali 15%. Środek: szczegół powierzchni antygenu glikoproteiny w skali 150%, z regionem zmiennym przeciwciała przedstawionym jako wstążki (PDB 5FYJ). Po prawej: modele bakteryjnego rybosomu 70S (PDB 4V5D) w skali 40% i 20%. Procenty odnoszą się do standardowego wyjścia programu Chimera, gdzie 100% oznacza, że 1 nm w cząsteczce odpowiada 1 mm w wydruku. Wszystkie modele są dostępne do bezpłatnego pobrania w serwisie NIH 3D Print Exchange11. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Fizyczne modele 3D biomolekuł stanowią potężne uzupełnienie bardziej powszechnych metod wizualizacji opartych na komputerach. Dodatkowe właściwości fizycznej reprezentacji 3D przyczyniają się do intuicyjnego zrozumienia struktury biomolekularnej. Budowa fizycznych modeli 3D biomolekuł może ułatwić ich badanie poprzez zastosowanie medium wykorzystującego dobrze rozwinięte tryby czucia człowieka. Modele 3D służą nie tylko jako pomoc dla badacza, ale mogą być wykorzystywane do ułatwiania działań pedagogicznych i mogą zwiększać osiąganie efektów uczenia się 13,14,15. Magnesy można dodawać do modeli plastikowych, aby umożliwić montaż i demontaż, jak pokazano na przykładzie modelu polipeptydów16. Obiekty drukowane w 3D mogą być również wykorzystywane w badaniach, zarówno w produkcji sprzętulaboratoryjnego17, jak i do tworzenia urządzeń mikroprzepływowych dlakomórek18 i modeli kryształów19 lub neuronów20. Manipulowanie modelami fizycznymi może służyć promowaniu wspólnych dyskusji, które mogą zainspirować nowe spostrzeżenia.
Najnowsze osiągnięcia w technologiach druku 3D i obniżenie kosztów drukarek umożliwiają tworzenie złożonych, fizycznych modeli 3D biomolekuł przez indywidualnego użytkownika. Chociaż technologia druku FFF jest bardziej powszechna i tańsza niż inne metody, stwarza szereg ograniczeń. Proces drukowania 3D jest czasochłonny i zdarzają się awarie mechaniczne. Drukarki FFF mogą zwykle drukować tylko jeden materiał na część, co ogranicza wyświetlanie informacji o kolorze. Rozdzielczość modeli wykonanych na drukarkach FFF jest niska, około 100 μm na warstwę. Radzimy czytelnikowi, aby pracował z tymi ograniczeniami i opracował podejście dla swojej drukarki i biomolekuł, które go interesuje. Przedstawiliśmy procesy wymagane przez użytkownika do opracowania niestandardowej reprezentacji 3D interesującej go biomolekuły, która jest dokładna, pouczająca i możliwa do wydrukowania. Jak w przypadku każdej nowej technologii, często pojawiają się "bóle wzrostowe", które należy pokonać podczas jej użytkowania. Podajemy kilka przykładów, w których mogą wystąpić problemy w procesie drukowania biomolekuł 3D (patrz suplement 6).
Wreszcie, poprzez ten artykuł, naszym celem jest przyczynienie się do rozwoju społeczności użytkowników zajmujących się drukowaniem 3D biomolekuł. Co ważne, NIH stworzył bazę danych dla ogółu społeczeństwa, aby udostępniać modele 3D i metody używane do ich drukowania10. Gorąco zachęcamy do udziału w tym wyjątkowym zasobie (patrz suplement 7, aby uzyskać instrukcje dotyczące przesyłania wydruku modelu 3D i informacji podstawowych do NIH 3D Print Exchange).
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy są wdzięczni za wsparcie Deis3D, Brandeis 3D Printing Club, oraz członków Brandeis Library/LTS/Makerlab. Praca ta została częściowo sfinansowana z grantu przyznanego Pomeranzowi Krummelowi przez NSF, Nagroda nr 1157892; grant ESIT BMBF, przyznany Uniwersytetowi w Tybindze; oraz fundusze federalne USA z National Institutes of Health, Departamentu Zdrowia i Opieki Społecznej, na podstawie umowy nr GS35F0373X. Grafikę i analizy molekularne przeprowadzono przy użyciu pakietu UCSF Chimera. Chimera została opracowana przez Resource for Biocomputing, Visualization, and Informatics na Uniwersytecie Kalifornijskim w San Francisco (wspierana przez NIGMS P41-GM103311).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Filament< / mocny> | |||
| Filament do druku 3D PLA (rolka 1,0 kg) | Kwantowy druk 3D | http://quantum3dprinting.com/ | Bardzo dobrej jakości filament PLA, zdecydowanie zalecany |
| Elastyczny filament do druku 3D | NinjaFlex Ninjatek | https://ninjatek.com/ | Wysokiej jakości elastyczny filament |
| PLA PrimaValue & PrimaSelect | 3DPrima | http://3dprima.com/ | Wysokiej jakości europejski dostawca filamentu |
| drukarek | |||
| Prusa I3 MK2 3D Drukarka | Prusa Research | http://www.prusa3d.com/ | Popularna drukarka 3D |
| MakerGear M2 Revision E (M2e) | MakerGear | http://www.makergear.com/ | Drukarka o zamkniętym kodzie źródłowym, bardzo wysokiej jakości |
| Ultimaker 2 | Ultimaker | https://ultimaker.com/ | Bardzo niezawodna, łatwa w obsłudze drukarka, najwyższa ocena na 3Dhubs.com |
| Flashforge Creator Pro | Flashforge | http://www.flashforge-usa.com | Niezawodna drukarka z podwójną ekstruzją, najwyższa ocena na 3Dhubs.com |
| Software | |||
| Simplify3D Slicer | https://www.simplify3d.com/ | Doskonałe oprogramowanie do krojenia | |
| Netfabb | Autodesk | http://www.autodesk.com/education/free-software/netfabb | Oprogramowanie do naprawy Mesh, dostępne bezpłatnie w celach edukacyjnych |
| Chimera | Uniwersytet Kalifornijski, San Francisco | https://www.cgl.ucsf.edu/chimera/ | Chimera Molecular Vizualizer |
| Meshmixer | Autodesk | http://www.meshmixer.com/ | Służy do orientacji modeli, ale ma inne cechy |
Bibliografia
- Del Re, G. Models and analogies in science. HYLE - International Journal for Philosophy of Chemistry. 6 (1), 5-15 (2000).
- Pauling, L., Corey, R. B., Branson, H. R. The structure of proteins: two hydrogen-bonded helical configurations of the polypeptide chain. Proceedings of the National Academy of Science U.S.A. 37 (4), 205-211 (1951).
- Corey, R. B., Pauling, L. Molecular models of amino acids, peptides, and proteins. The Review of Scientific Instruments. 24 (8), 621-627 (1953).
- Watson, J. D., Crick, F. H. C. A structure for deoxyribose nucleic acid. Nature. 171, 737-738 (1953).
- Stone-Sundberg, J., Kaminsky, W., Snyder, T., Moeck, P. 3D printed models of small and large molecules, structures and morphologies of crystals, as well as their anisotropic physical properties. Crystal Research and Technology. 50 (6), 432-441 (2015).
- Berman, B. 3-D printing: The new industrial revolution. Business Horizons. 55 (2), 155-162 (2011).
- Meyer, S. 3D printing of protein models in an undergraduate laboratory: leucine zippers. Journal of Chemical Education. 92 (12), 2120-2125 (2015).
- Gillet, A., Sanner, M., Stoffler, D., Olson, A. Tangible Interfaces for Structural Molecular Biology. Structure. 13 (3), 483-491 (2005).
- Rossi, S., Benaglia, M., Brenna, D., Porta, R., Orlandi, M. Three dimensional (3D) printing: a straightforward, user-friendly protocol to convert virtual chemical models to real-life objects. Journal of Chemical Education. 92 (8), 1398-1401 (2015).
- Coakley, M., Hurt, D., Weber, N., et al. The NIH 3D print exchange: a public resource for bioscientific and biomedical 3D prints. 3D Printing and Additive Manufacturing. 1 (3), 137-140 (2014).
- Pettersen, E. F., Goddard, T. D., Huang, C. C., Couch, G. S., Greenblatt, D. M., Meng, E. C., Ferrin, T. E. UCSF Chimera--a visualization system for exploratory research and analysis. Journal of Computational Chemistry. 25 (13), 1605-1612 (2004).
- Azimi, P., Zhao, D., Pouzet, C., Crain, N. E., Stephens, B. Emissions of ultrafine particles and volatile organic compounds from commercially available desktop three-dimensional printers with multiple filaments. Environmental Science & Technology. 50 (3), 1260-1268 (2016).
- Roberts, J., Hagedorn, E., Dillenburg, P., Patrick, M., Herman, T. Physical models enhance molecular 3D literacy in an introductory biochemistry course, Biochem. Biochemistry and Molecular Biology Education. 33 (2), 105-110 (2005).
- Jittivadhna, K., Ruenwongsa, P., Panijpan, B. Beyond textbook illustrations: Hand-held models of ordered DNA and protein structures as 3D supplements to enhance student learning of helical biopolymers. Biochemistry and Molecular Biology Education. 38 (6), 359-364 (2010).
- Herman, T., Morris, J., Colton, S., Batiza, A., Patrick, M., Franzen, M., Goodsell, D. S. Tactile teaching - Exploring protein structure/function using physical models. Biochem. Biochemistry and Molecular Biology Education. 34 (4), 247-254 (2006).
- Chakraborty, P., Zuckermann, R. Coarse-grained, foldable, physical model of the polypeptide chain. Proceedings of the National Academy of Science U.S.A. 110 (33), 13368-13373 (2013).
- Baden, T., Chagas, A. M., Gage, G. J., Marzullo, T. C., Prieto-Godino, L. L., Euler, T. Open Labware: 3-D printing your own lab equipment. PLoS Biology. 13 (3), e1002086(2015).
- Morgan, A. J., et al. Simple and versatile 3D printed microfluidics using fused filament fabrication. PLoS ONE. 11 (4), e0152023(2016).
- Chen, T., Lee, S., Flood, A., Miljanić, O. How to print a crystal structure model in 3D. Cryst. Eng. Comm. 16 (25), 5488-5493 (2014).
- McDougal, R. A., Shepherd, G. M. 3D-printer visualization of neuron models. Frontiers in Neuroinformatics. 9, 1-9 (2015).
Przedruki i uprawnienia
