Immunohistochemiczne barwienie izoform łańcucha ciężkiego miozyny stało się najnowocześniejszym dyskryminatorem włókien mięśni szkieletowych typu (tj. typu I, typu IIA, typu IIX, typu IIB). W tym miejscu przedstawiamy protokół barwienia wraz z nowatorskim półautomatycznym algorytmem, który ułatwia szybką ocenę rodzaju włókien i morfologii włókien.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Półautomatyczna analiza morfologii mięśni szkieletowych myszy i składu włókien
W tym artykule
Podsumowanie
Streszczenie
Przez lata różnice między typami włókien mięśni szkieletowych były najlepiej widoczne za pomocą barwienia miozyną-ATPazą. Ostatnio barwienie immunohistochemiczne izoform łańcucha ciężkiego miozyny (MyHC) okazało się dokładniejszym dyskryminatorem typu włókna. Włókna typu I, typu IIA, typu IIX i typu IIB mogą być teraz identyfikowane z precyzją na podstawie ich profilu MyHC; Jednak ręczna analiza tych danych może być powolna i wręcz żmudna. W związku z tym szybka, dokładna ocena składu i morfologii rodzaju włókien jest bardzo pożądanym narzędziem. W tym miejscu przedstawiamy protokół najnowocześniejszego barwienia immunohistochemicznego MyHCs w zamrożonych skrawkach uzyskanych z mięśni kończyn tylnych myszy w połączeniu z nowatorskim półautomatycznym algorytmem, który przyspiesza analizę rodzaju włókien i morfologii włókien. Zgodnie z oczekiwaniami, mięsień płaszczkowaty wykazywał zabarwienie dla włókien typu I i typu IIA, ale nie dla włókien typu IIX lub typu IIB. Z drugiej strony, mięsień piszczelowy przedni składał się głównie z włókien typu IIX i typu IIB, niewielkiej frakcji włókien typu IIA i niewielkiej ilości włókien typu I lub nie ma ich wcale. Wykorzystano kilka transformacji obrazu do wygenerowania map prawdopodobieństwa w celu pomiaru różnych aspektów morfologii włókien (tj. pola przekroju poprzecznego (CSA), maksymalnej i minimalnej średnicy Fereta). Wartości uzyskane dla tych parametrów zostały następnie porównane z wartościami uzyskanymi ręcznie. Nie zaobserwowano istotnych różnic pomiędzy którymkolwiek z trybów analizy w odniesieniu do CSA, maksymalnej lub minimalnej średnicy Fereta (wszystkie p > 0,05), co wskazuje na dokładność naszej metody. W związku z tym nasz protokół analizy barwienia immunologicznego może być zastosowany do badania wpływu na skład mięśni w wielu modelach starzenia się i miopatii.
Wprowadzenie
Od pewnego czasu wiadomo, że mięśnie szkieletowe składają się z pojedynczych włókien wielu typów1. Początkowo scharakteryzowano dwie grupy włókien na podstawie ich właściwości kurczliwych i nazwano je odpowiednio wolnokurczliwymi (typ I) i szybkokurczliwymi (typ II). Kategorie te zostały dodatkowo wyróżnione na podstawie metabolizmu błonnika. Ponieważ włókna typu I są bogate w mitochondria i zależne od metabolizmu oksydacyjnego, zostały one wyjaśnione przez silnie dodatnie barwienie dinukleotydu dinukleotydu nikotynamidoadeninowego i reduktazy tetrazolowej (NADH-TR) 2 lub dehydrogenazy bursztynianowej (SDH)3 barwienie. W przeciwieństwie do tego, włókna typu II wykazywały mniejsze i zmienne stopnie diaforazy NADH-TR lub barwienia SDH i zostały podzielone na dwie podgrupy szybkokurczliwe (typ IIA i typ IIB) nieco prymitywnie oparte na ich względnych zdolnościach oksydacyjnych. Te różnice między włóknami zostały skuteczniej uwidocznione przez barwienie miozyną-ATPazą, gdzie włókna typu I barwią się na ciemno po wstępnej inkubacji przy pH 4,0, a włókna typu IIB absorbują osad po wstępnej inkubacji przy pH 10,0 z włóknami typu IIA barwiącymi się pośrednio4.
Ostatnio immunohistochemiczne barwienie izoform ciężkiego łańcucha miozyny (MyHC) okazało się lepszym dyskryminatorem typu włókna5. Włókna typu I, typu IIA i typu IIB można precyzyjnie zidentyfikować na podstawie ich profilu MyHC. Ponadto zidentyfikowano inny szybkokurczliwy typ włókien metabolicznie pośrednich, typ IIX6. Potwierdzono również włókna hybrydowe wyrażające więcej niż jeden MyHC5,7,8. Wiadomo, że niektóre gatunki, takie jak kot i pawian, nie wyrażają MyHCs6. Chociaż barwienie immunologiczne MyHC jest obecnie najnowocześniejszą oceną składu mięśni, analiza danych uzyskanych za pomocą tej techniki jest kłopotliwa i czasochłonna bez automatycznej pomocy. W tym celu opracowano kilka półautomatycznych metod analizy tych danych5,9,10. W tym miejscu przedstawiamy stosunkowo standardowy protokół immunohistochemicznej identyfikacji typu włókien mięśniowych5,7,8,10, wraz z nowatorskim półautomatycznym algorytmem, który przyspiesza analizę typu włókna i morfologii włókien z dokładnością.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie procedury z udziałem myszy zostały zatwierdzone przez Komitet ds. Opieki i Wykorzystania Zwierząt (Institutional Animal Care and Use Committee) Uniwersytetu Kolorado-Anschutz Medical Campus (91813(05)1D).
1. Dzień 1: Barwienie immunocytochemiczne przeciwciałami pierwotnymi (1°) z blokowaniem albuminą surowiczą bydlęcą (BSA)
- Osuszyć na powietrzu mrożone przekroje mięśni kończyn tylnych myszy (np. mięśnia piszczelowego przedniego, mięśnia płaszczowego) zamontowane na szkiełkach do mikroskopu naładowanych elektrostatycznie przez około 30 min11. Obrysować przekroje za pomocą hydrofobowego pisaka PAP tworzącego barierę.
- Nanieść około 250 µL 5% albuminy wołowej w soli fizjologicznej z buforem fosforanowym (BSA/PBS) na każde szkiełko, aby zablokować nieswoiste wiązanie przeciwciał. Inkubować szkiełka w temperaturze pokojowej przez 1 h.
- Podczas blokowania przygotować rozcieńczenia 1:50 supernatantu przeciwciała pierwszorzędowego w 5% BSA/PBS (wszystkie są to mysie przeciwciała monoklonalne; patrz Tabela 16,12); przygotować 250 µL roztworu na jedno szkiełko. Przechowywać zapasy i rozcieńczenia przeciwciał pierwszorzędowych w lodzie.
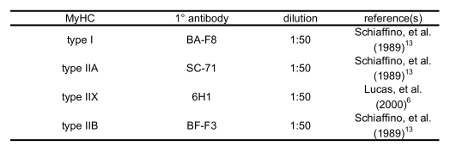
Tabela 1: Przeciwciała pierwszorzędowe użyte do rozróżniania izoform MyHC.
- Po odessaniu 5% roztworu blokującego BSA/PBS, należy dodać 250 µL z 1° roztwór przeciwciał w odpowiednim rozcieńczeniu na odpowiednie preparaty. Dodać 250 µL 5% BSA/PBS do przeciwciał wtórnych (2°) preparaty kontrolne negatywne z samym przeciwciałem.
- Inkubować w temperaturze 4 °C przez 24–48 h w wilgotnym środowisku.
UWAGA: Pszalka Petri przykryta folią aluminiową z wilgotnym papierem filtracyjnym może służyć jako odpowiednia komora inkubacyjna.
2. Dzień 2: wtórne barwienie immunofluorescencyjne przeciwciałami fluorescencyjnymi
- Odssać roztwór przeciwciała pierwszorzędowego lub kontrolny roztwór 5% BSA/PBS. Przemyć wszystkie preparaty trzy razy przez 10 min w 5% BSA.
- Podczas płukania przygotować rozcieńczenia 1:200 oczyszczonych przeciwciał drugorzędowych sprzężonych z fluorophorem w 5% BSA/PBS (patrz Tabela 2, wszystkie są to przeciwciała kozie anty-mysie). Przygotować 250 µL roztworu na jeden preparat. Przechowywać przeciwciała drugorzędowe sprzężone z fluorophorem w ciemności na lodzie.

Tabela 2: Przeciwciała wtórne sprzężone z fluoroforami użyte do wizualizacji rozpoznawania MyHC przez przeciwciała pierwotne.
- Po odessaniu trzeciej aplikacji 5% roztworu blokującego BSA/PBS, nanieś 250 µL rozcieńczonego przeciwciała wtórnego na wszystkie preparaty. Inkubuj przez 90 min w temperaturze pokojowej w ciemnym, wilgotnym środowisku.
- Odessaj roztwór przeciwciał wtórnych. Przemyj wszystkie preparaty trzykrotnie przez 10 min przy użyciu 5% BSA/PBS.
- Opłucz PBS. Susz przez 10 min.
- Przykryj preparat szkiełkiem przykrywkowym, stosując niepermanentne, niskolepkie wodne medium montażowe.
- Po wyschnięciu zabezpiecz krawędzie szkiełka lakierem do paznokci. Wysusz i przechowuj w ciemnej kasetce do preparatów.
3. Obrazowanie preparatów przy użyciu mikroskopii epifluorescencyjnej
- Oczyścić preparaty za pomocą małej chusteczki laboratoryjnej nasączonej 70% etanolem.
- Wykonać cyfrowe zdjęcia immunobarwionych przekrojów mięśni przy użyciu mikroskopu epifluorescencyjnego wyposażonego w aparat fotograficzny (patrz Tabela materiałów).
- Wybrać obszar o powierzchni około 1 mm2 (obiektyw 10X, 1.4 NA).
- Obserwować fluorescencję przeciwciał wtórnych sprzężonych z Alexa 488 za pomocą filtra długoprzepuszczającego 505 nm. Obserwować fluorescencję generowaną przez wzbudzenie przeciwciał wtórnych sprzężonych z Alexa 594 za pomocą filtra długoprzepuszczającego 595 nm. Zdigitalizować obrazy za pomocą komputera PC z kompatybilnym oprogramowaniem do obrazowania. Do późniejszej analizy dołączyć pasek skali z oprogramowania do obrazowania.
4. Analiza obrazów za pomocą programu Fiji
Uwaga: Przed przystąpieniem do analizy należy zainstalować program Fiji (dostępny bezpłatnie z National Institutes of Health, Bethesda, MD) poprzez stronę https://imagej.net/Fiji/Downloads. Ponadto makro wykorzystywane w tym procesie znajduje się w Plikach uzupełniających (Supplemental File). Należy umieścić plik makra w łatwo dostępnym katalogu.
- Wczytaj obraz w jasnym polu wybranego przekroju w programie Fiji. Przejdź do menu Plugins. → Segmentacja → Segmentacja obrazu za pomocą modułu Trainable Weka Segmentation.
- Aby wyznaczyć obszary komórkowe w preparacie, narysuj linię na włóknie, a następnie kliknij "Dodaj do klasy 1"Następnie należy narysować linię w przestrzeni między włóknami i kliknąć. "Dodaj do klasy 2" w celu oznaczenia domen zewnątrzkomórkowych. Powtórzyć czynność, aż w każdej klasie znajdzie się od 5 do 10 etykiet.
- Kliknij Train Classifier. Na wyświetlonej czerwono-zielonej nakładce, w razie potrzeby, ręcznie dodaj kolejne etykiety (patrz krok 4.2) do błędnie segmentowanych fragmentów obrazu. Powtarzaj czynność do momentu, aż włókna (kolor czerwony) zostaną odpowiednio oddzielone od przestrzeni między włóknami (kolor zielony).
- Kliknij "Wyznacz prawdopodobieństwo" i zapisz obraz w nowym, odpowiednio nazwanym folderze.
- Powtórz powyższą procedurę (kroki 4.2 – 4.3), wykorzystując obraz fluorescencyjny wykonany z tego samego pola widzenia. Oznacz włókna poddane immunostynowaniu jako "klasa 1" oraz wszystkie regiony niefluorescencyjne jako "klasa 2"Zapisz otrzymaną mapę prawdopodobieństwa w tym samym folderze, w którym znajduje się przetworzony obraz w jasnym polu.
- Otwórz jedną z wcześniej zapisanych map prawdopodobieństwa w programie Fiji. Narysuj linię prostą na pasku skali dostarczonym przez oprogramowanie do obrazowania. Przejdź do Analyze → Ustawienie skali. Zmień parametry (tj., znaną odległość, jednostkę długości) do odpowiednich wartości podanych na pasku skali, a następnie sprawdź "Globalny" ramka w celu standaryzacji skali dla każdego obrazu.
- Przejdź do sekcji Wtyczki → Makra → Uruchom → Tyagi i wsp. fiber_quantification_macro.ijm (patrz na Plik uzupełniający). Natychmiast pojawi się okno nawigacji. Otwórz folder nadrzędny obrazu; pojawi się okno dialogowe. W każdym oknie dialogowym zmień "Wstęp" wartość listy rozwijanej na "Światło."
UWAGA: Folder zostanie teraz uzupełniony obrazami obrysów włókien oraz plikami arkusza kalkulacyjnego z wynikami (najistotniejszymi dla kwantyfikacji morfologii włókien są CSA oraz średnica Fereta; mierzalne parametry można dostosować w Analyze Set Measurements). Dane dotyczące morfologii włókien wygenerowane przez funkcję analizy porów programu Fiji zostaną automatycznie przeniesione do plików arkusza kalkulacyjnego dla obrazów fluorescencyjnych i w polu jasnym. - Oblicz frakcję włókien wykazujących ekspresję danej izoformy MyHC w polu widzenia, dzieląc liczbę włókien fluorescencyjnych w tym polu przez całkowitą liczbę włókien widocznych na odpowiadającym im obrazie w jasnym polu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Mięśnie kończyn tylnych (tzn. mięsień piszczelowy przedni, mięsień płoneczny) wypreparowane z samca myszy C57BL/6 o nieznanym wieku zamrożono błyskawicznie poprzez zanurzenie plastikowej formy zawierającej mięsień w związku OCT w izopentanie chłodzonym ciekłym azotem. Następnie, przy użyciu kriotomu, wykonano seryjne cięcia o grubości 8-10 µm w temperaturze -20 °C i przeniesiono je na różne naładowane pozytywnie szkiełka przedmiotowe12.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W tym miejscu przedstawiliśmy przydatne wskazówki dotyczące identyfikacji typów włókien mięśni szkieletowych. W ten sposób opisujemy nowatorski algorytm analizy danych.
Ponieważ nasze wyniki w dużej mierze pokrywają się z poprzednimi raportami 5,8,10 i odzwierciedlają nasze własne ręczne pomiary, algorytm wydaje się być dokładny. Mimo to napotkaliśmy kilka rzadkich pułapek eksperymentalnych, w tym nie...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają sprzecznych interesów do ujawnienia.
Podziękowania
Jesteśmy wdzięczni Fundacji Boettchera i Stowarzyszeniu Stwardnienia Zanikowego Bocznego (#17-II-344) za wsparcie tych badań.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Surowica bydlęca Albumina | Sigma Aldrich | A9418-100G | 5% w PBS |
| Hydrofobowa bariera Pap Pen | Scientific Device Laboratory | 9804-02 | |
| Szkiełka mikroskopowe | Globe Scientific | 1358W | |
| Szkło nakrywkowe | Fisher Scientific | 12-544-E | |
| Immumount | Thermo Scientific | 9990402 | |
| Lakier do paznokci | L'Oreal | ||
| Nikon Eclipse TE-200 Odwrócona fluorescencja i mikroskop | wycofany z produkcji | ||
| Rozwiązania do obrazowania SPOT RT/KE RT | 940 | ||
| Dell Optiplex | |||
| BA-F8 Badania rozwojowe przeciwciał pierwotnych | Bank Hybridoma na Uniwersytecie Iowa | mysz monoklonalna IgG2b; 1:50 | |
| SC-71 Badania rozwojowe przeciwciał pierwotnych | Bank Hybridoma na Uniwersytecie Iowa | mysz monklonalna IgG1; 1:50 | |
| BF-F3 Badania rozwoju przeciwciał pierwotnych | Bank Hybridoma na Uniwersytecie Iowa | mysz monoklonalna IgGM; 1:50 | |
| 6H1 Badania rozwoju przeciwciał pierwotnych | Bank Hybridoma na Uniwersytecie Iowa | mysz monoklonalna IgGM; 1:50 | |
| Alexa Fluor 594 anty-IgG2b | Invitrogen | A21145 | kozi anty-mysz; 1:200 |
| Alexa Fluor 488 anty-IgG1 | Invitrogen | A21121 | kozia anty-mysz; 1:200 |
| Alexa Fluor 594 anty-IgGM | Invitrogen | A21044 | kozia anty-mysz; 1:200 |
| PAŹ | Sakura Finetek | 4583 | |
| izopentan | Fisher Scientific | O3551-4 | chłodny z azotem ligowym |
| PBS | Fisher Bioodczynniki | BP665-1 | 10x, rozcieńczony do 1x |
| chusteczki Kim | Kimberly-Clark | 06-666A |
Bibliografia
- Engel, W. K. The essentiality of histo- and cytochemical studies of skeletal muscle in the investigation of neuromuscular disease. Neurol. 12, 778-784 (1962).
- Dobrowolny, G., et al. Skeletal muscle is a primary target of SOD1G93A-mediated toxicity. Cell Metab. 8, 425-436 (2008).
- Sultana, N., et al. Restricting calcium currents is required for correct fiber type specification in skeletal muscle. Development. 143 (9), 1547-1559 (2016).
- Guth, L., Samaha, F. J. Procedure for the histochemical demonstration of actomyosin ATPase. Exp Neurol. 28 (2), 365-367 (1970).
- Bloemberg, D., Quadrilatero, J. Rapid determination of myosin heavy chain expression in rat, mouse, and human skeletal muscle using multicolor immunofluorescence analysis. PLoS One. 7 (4), (2012).
- Lucas, C. A., Kang, L. H., Hoh, J. F. Monospecific antibodies against the three mammalian fast limb myosin heavy chains. Biochem Biophys Res Commun. 272 (1), 303-308 (2000).
- Lee, C. S., et al. Ca2+ permeation and/or binding to Cav1.1 fine-tunes skeletal muscle Ca2+ signaling to sustain muscle function. Skelet Muscle. 5 (4), (2015).
- Sawano, S., et al. A one-step immunostaining method to visualize rodent muscle fiber type within a single specimen. PLoS One. 11 (11), (2016).
- Meunier, B., Picard, B., Astruc, T., Labas, R. Development of image analysis tool for the classification of muscle fibre type using immunohistochemical staining. Histochem Cell Biol. 134 (3), 307-317 (2010).
- Kammoun, M., Casser-Malek, I., Meunier, B., Picard, B. A simplified immunohistochemical classification of skeletal muscle fibres in mouse. Eur J Histochem. 58 (2), 2254(2014).
- Kumar, A., Accorsi, A., Rhee, Y., Girgenrath, M. Do's and don'ts in the preparation of muscle cryosections for histological analysis. J Vis Exp. (99), (2015).
- Schiaffino, S., et al. Three myosin heavy chain isoforms in type 2 skeletal muscle fibres. J Muscle Res Cell Motil. 10 (197), (1989).
- Augusto, V., Padovani, C. R., Campos, G. E. R. Skeletal muscle fiber types in C57Bl6j mice. Braz J Morphol Sci. 21 (2), 89-94 (2004).
- Schiaffino, S., Reggiani, C. Fiber types in mammalian skeletal muscles. Physiol Rev. 91 (4), 1447-1531 (2011).
- Allen, D. L., Harrison, B. C., Maass, A., Bell, M. L., Byrnes, W. C., Leinwand, L. A. Cardiac and skeletal muscle adaptations to voluntary wheel running in the mouse. J Appl Physiol. 90 (5), 1900-1908 (2001).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
