To jest protokół do naśladowania choroby Alzheimera u szczurów poprzez ocenę upośledzenia pamięci przestrzennej, zmian patologicznych neuronów, obciążenia neuronalnym białkiem beta amyloidu (Aβ) i agregacji splątków neurofibrylarnych, indukowanej przez wstrzyknięcie Aβ25-35 w połączeniu z trichlorkiem glinu i rekombinowanym ludzkim transformującym czynnikiem wzrostu-β1.
Artykuł metodologiczny
Stworzenie cennego naśladownictwa choroby Alzheimera w szczurzym modelu zwierzęcym poprzez wstrzyknięcie do komory mózgowej złożonego białka beta amyloidu
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Choroba Alzheimera (AD) jest nieodwracalną, postępującą chorobą mózgu, która powoli niszczy pamięć i towarzyszy jej utrata neuronów oraz zmiana struktury. Wraz ze wzrostem liczby pacjentów z chorobą Alzheimera na całym świecie, patologia i leczenie choroby stały się przedmiotem zainteresowania międzynarodowego przemysłu farmaceutycznego. W związku z tym stworzenie modelu zwierzęcego naśladującego chorobę Alzheimera w laboratorium ma ogromne znaczenie.
Tutaj opisujemy szczegółowy protokół tworzenia mimiki AD w modelu zwierzęcym szczura poprzez domózgowo-komorowe wstrzyknięcie białka beta amyloidu 25-35 (Aβ25-35) w połączeniu z trichlorkiem glinu (AlCl3) i wstrzyknięcie do jądra przednio-grzbietowego rekombinowanego ludzkiego transformującego czynnika wzrostu-β1 (RHTGF-β1) szczurom. Zmierzono powiązane markery AD, w tym: pamięć przestrzenną, strukturę i podstrukturę neuronalną, neuronalne Aβ i produkcję splątków neurofibrylarnych (NFT). Ten model szczurzy wykazuje upośledzenie pamięci przestrzennej, zmiany patologiczne struktury neuronalnej i podstruktury, wewnątrzkomórkowe obciążenie Aβ neuronów i agregację NFT, a także zapewnia ścisłe naśladowanie struktury i funkcji neuronów w porównaniu z klinicznymi zaburzeniami AD. W związku z tym zaprezentowany model szczura AD stanowi cenne narzędzie in vivo do badania funkcji neuronów, patologii neuronalnej i badań przesiewowych leków w kierunku AD.
Wprowadzenie
Powszechnie wiadomo, że choroba Alzheimera (AD) jest przewlekłą i postępującą chorobą neurodegeneracyjną, w której głównym zespołem klinicznym jest stopniowa utrata pamięci. W ogólnej patologii obserwuje się zanik tkanki nerwowej, utratę neuronów i synaps, a także zaburzenia struktur podkomórkowych i funkcji neuronów, co przyczynia się do rozwoju i manifestacji klinicznej AD1,2. Doniesiono, że w przypadku dokoncelebrowentrycularnego wstrzyknięcia Aβ u zwierząt w mózgu dochodzi do szeregu zdarzeń neurotoksycznych, obejmujących utratę neuronów, zaburzenie homeostazy wapniowej, apoptozę neuronów oraz nadprodukcję reaktywnych form tlenu3. Ponieważ jednak w patogenezę AD zaangażowanych jest wiele czynników, niezbędne jest opracowanie lepszego modelu tej choroby.
Opisano tutaj szczegółowy protokół tworzenia modelu in vivo naśladującego chorobę Alzheimera (AD) poprzez dokanałowe wstrzyknięcie Aβ25-35 oraz AlCl3, połączone z wstrzyknięciem RHTGF-β1 do przednio-grzbietowego jądra wzgórza u szczurów. Model szczurzy ten ściśle naśladuje ludzkie funkcje neuronalne oraz histopatogenezę AD, w tym zaburzenia pamięci, utratę neuronów i uszkodzenia strukturalne, apoptozę, wewnątrzkomórkowe obciążenie Aβ oraz agregację NFT4,5,6,7,8,9. AlCl3 zapobiega tworzeniu rozpuszczalnego Aβ z osadzonego Aβ, natomiast RHTGF-β1 może promować produkcję osadzonego Aβ i ułatwiać wystąpienie AD10. Taki wieloczynnikowy atak na neurony jest zgodny z wielotorową patogenezą AD.
Cały eksperyment trwał 86 dni: Rysunek 1 przedstawia harmonogram projektu eksperymentalnego, z zaznaczeniem punktów czasowych operacji zwierząt, przesiewowego badania modelu zwierzęcego, testu pamięci przestrzennej zwierząt oraz przygotowania próbek. W pierwszym dniu operacji do przedniej grzbietowej części jądra wzgórza wstrzyknięto mikrodozą RHTGF-β1. W drugim dniu operacji do komory bocznej wstrzykiwano mikrodozy Aβ25-35 codziennie rano przez 14 kolejnych dni oraz AlCl3 codziennie po południu przez 5 kolejnych dni. Wszystkie szczury miały 45 dni na rekonwalescencję po operacji. Do wyłonienia szczurów z sukcesywnie stworzonym modelem upośledzenia pamięci oraz do oceny pamięci przestrzennej zwierząt wykorzystano wodny labirynt Morrisa. Szczury przeszły 4-dniowy trening w wodnym labiryncie (2 próby dziennie), a w 4. dniu treningu oceniano ich wydajność w wodnym labiryncie Morrisa pod kątem upośledzenia pamięci. Wszystkie szczury były karmione przez kolejne 37 dni po badaniu przesiewowym modelu zwierzęcego. Pamięć przestrzenną szczurów testowano w wodnym labiryncie Morrisa przez 7 kolejnych dni, od 79. do 85. dnia po operacji. Wszystkie szczury uśmiercono przez gilotynowanie w 86. dniu w celu przygotowania próbek mózgu.
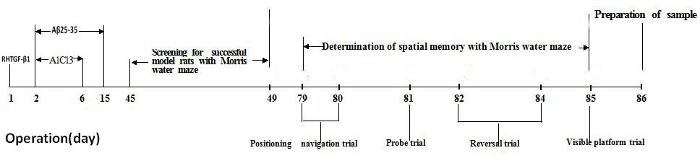
Rycina 1Harmonogram projektu eksperymentalnego. Prosimy kliknąć tutaj, aby wyświetlić większą wersję tej ryciny.

Protokół
Procedura ta była zgodna z Regulacjami w zakresie obsługi zwierząt doświadczalnych wydanymi przez Państwową Komisję Nauki i Technologii Chin 31 października 1988 r.1. Naukowcy powinni przestrzegać wytycznych ustanowionych i zatwierdzonych przez swoje instytucjonalne i krajowe organy regulacyjne ds. zwierząt.
UWAGA: Zwierzęta i odczynniki: Do eksperymentu dostarczono czteromiesięczne samce szczurów Sprague-Dawley (30-350 g). Wszystkie szczury przebywały w grupach (po cztery lub pięć w klatce) w temperaturze 23 ± 1 °C przy 12-godzinnym cyklu światła i ciemności. Pożywienie i woda były dostępne ad libitum. Przed przeprowadzeniem procedury szczury poddano aklimatyzacji do warunków bytowych przez 7 dni. Aβ25-35 rozpuszczono w 1% DMSO w soli fizjologicznej do stężenia 1 mg/mL, a następnie poddano sonikacji przez 5 min w oscylatorze ultradźwiękowym aż do całkowitego rozpuszczenia. AlCl3 oraz RHTGF-β1 rozpuszczono w soli fizjologicznej w stężeniach odpowiednio 1% i 0,1 mg/mL. Czerwień Kongo, azotan srebra oraz pozostałe odczynniki chemiczne były stopnia analitycznego i zostały zakupione z powszechnych źródeł komercyjnych.
1. Procedura chirurgiczna
Uwaga: 20 samców szczurów Sprague-Dawley otrzymało mikroiniekcje z kompozytowego Aβ do komory bocznej oraz przednio-grzbietowego jądra wzgórza i zostało przypisanych do grupy traktowanej kompozytowym Aβ. Kolejne 20 szczurów poddano tej samej procedurze, jednak otrzymały one mikroiniekcję z 0,1% DMSO w soli fizjologicznej i zostały przypisane do grupy pozorowanej.
- Zanestezuj szczury 10% izofluranem drogą wziewną, a następnie unieruchom je w aparacie stereotaktycznym do mózgu szczura.
- Wygoń futro na szczycie głowy za pomocą nożyczek chirurgicznych i zdezynfekuj jodoborem. Następnie przykryj głowę jednorazowym ręcznikiem chirurgicznym.
- Wykonaj nacięcie skóry głowy wzdłuż pośrodkowej linii podłużnej sklepienia czaszki za pomocą skalpeli chirurgicznych i nożyczek.
- Oddziel tkankę podskórną i powięź, przemyj sklepienie czaszki sterylną suchą watą w celu zatamowania krwawienia i zaznacz bregma za pomocą pisaka.
- Skorzystaj z mapy stereotaktycznej mózgu szczura12; przyjmując bregma jako punkt zero, wyznacz trzy punkty: jądro przedgrzbietowe wzgórza (ad) (tylny (P): 2,0 mm od bregma; boczny (L): 1,4 mm od linii środkowej) do wstrzyknięcia RHTGF-β1 i zamocowania jednej śruby, obszar komory bocznej (LV) (tylny (P): 0,8 mm od bregma; boczny (L): 2,0 mm od linii środkowej) do wstrzyknięcia Aβ25-35 i AlCl3 oraz miejsce mocowania drugiej śruby (przedni (F): 2,0 mm od bregma; boczny (L): 1,5 mm od linii środkowej).
- Delikatnie wywierć trzy otwory o średnicy 1 mm za pomocą elastycznego wiertła do kości, wyznaczone w powyższych trzech punktach czaszki (krok 1.5). Nie wkręcaj śrub głębiej niż to konieczne, aby uniknąć uszkodzenia tkanki mózgowej.
- Zatamuj krwawienie i wielokrotnie oczyść powierzchnię czaszki sterylną suchą watą.
- Wprowadź igłę połączoną z pompką do mikroiniekcji do mózgu na głębokość 4,6 mm i delikatnie wstrzyknij 1 μL RHTGF-β1 (10 ng) do obszaru ad. Pozostaw igłę przez 2 min po wstrzyknięciu, a następnie powoli ją wyjmij (Supplemental File 1).
- Wkręć dwie śruby w czaszkę w punktach wyznaczonych dla ad oraz w miejscu mocowania drugiej śruby (wyznaczonych w kroku 1.5) za pomocą małego śrubokręta. Nie wkręcaj śrub głębiej niż to konieczne, aby uniknąć uszkodzenia tkanki mózgowej.
- Zmontuj system implantacji kaniuli (Supplemental File 2). Włóż kaniulę atrapy do kaniuli prowadzącej po dezynfekcji pod wysokim ciśnieniem.
- Wprowadź prowadzącą kaniulę z rurki ze stali nierdzewnej do mózgu na głębokość 4,6 mm do obszaru LV przez otwór w czaszce (Supplemental File 3), korzystając z uchwytu kaniuli w aparacie stereotaktycznym dla szczurów.
- Wymieszaj materiał do podstawy protezy z wodą do podstawy protezy w stosunku 1,5 g na 1 mL. Nałóż pastę, aby pokryć plastikowy cokół kaniuli prowadzącej oraz dwie śruby unieruchamiające kaniulę, a także całe nacięcie skóry, aby zapobiec infekcji skóry.
- W 2. dniu po operacji zanieść szczury izofluranem drogą wziewną, używając urządzenia do znieczulania małych zwierząt. Wyjmij kaniulę atrapy, wprowadź kaniulę wewnętrzną do kaniuli prowadzącej i dokręć śrubę mocującą, aby unieruchomić kaniulę wewnętrzną.
- Podłącz rurkę polietylenową łączącą pompkę do mikroiniekcji z kaniulą wewnętrzną i ustaw prędkość wtrysku na 1 μL/min. Wykonaj mikroiniekcję Aβ25-35 lub AlCl3 do LV.
- Wykonuj mikroiniekcje 4 μg (1 μL) Aβ25-35 codziennie rano przez 14 dni oraz 3 μL AlCl3 (1%) codziennie po południu przez 5 dni w znieczuleniu izofluranem.
- Odczekaj 5 min po zakończeniu wstrzykiwania, delikatnie wyjmij kaniulę wewnętrzną i ponownie włóż kaniulę atrapy do kaniuli prowadzącej.
- W 15. dniu po operacji (co odpowiada ostatniemu dniu iniekcji Aβ25-35) zdemontuj system implantacji kaniuli. Delikatnie usuń utwardzony materiał do podstawy protezy za pomocą nożyczek chirurgicznych i pęsety, wykręć dwie śruby, wyjmij kaniulę prowadzącą i zdezynfekuj ranę betadyną. Wypełnij otwór w czaszce cementem kostnym i zszyj skórę prostym szwem przerywanym.
- Przeprowadź analogiczną operację w grupie pozorowanej (sham) i wykonaj mikroiniekcję 0,1% roztworu DMSO w soli fizjologicznej.
- Opieka pooperacyjna
- Po operacji umieść 2 szczury w jednej klatce i zapewnij dostęp do pożywienia przez 30 dni.
Uwaga: W grupie pozorowanej przeżyło 18 szczurów (skuteczność operacji 90%), a w grupie Aβ leczonej złożenie przeżyło 19 szczurów (skuteczność operacji 95%).
- Po operacji umieść 2 szczury w jednej klatce i zapewnij dostęp do pożywienia przez 30 dni.
2. Przesiewanie szczurów w celu wyłonienia udanych modeli oraz ocena pamięci przestrzennej w wodnym labiryncie Morrisa
- Labirynt wodny Morrisa
Uwaga: Do oceny pamięci przestrzennej szczurów wykorzystano wodny labirynt Morrisa13Labirynt wodny Morrisa to okrągły zbiornik ze stali nierdzewnej o średnicy 120 cm i głębokości 50 cm. Test w labiryncie wodnym przeprowadzono w oparciu o paradygmat „złotego standardu” opisany w publikacji Behavioral Neuroscience autorstwa J. Nuneza.14.- Zabarw wodę w basenie na czarno, dodając kilka kropel barwnika spożywczego.
- Utrzymuj głębokość wody na poziomie 31,5 cm, a temperaturę na poziomie 23 ± 1 °C.
- Umieść okrągłą, przezroczystą platformę z pleksiglasu o średnicy 1,5 cm poniżej powierzchni wody.
- Należy zadbać o to, aby wszystkie sygnały przestrzenne wokół labiryntu wodnego pozostawały niezmienne podczas testów w labiryncie wodnym.
- Podziel basen na 4 równe kwadranty za pomocą liniiy wyimaginowanych w celu przeprowadzenia opisowego gromadzenia danych.
- Umieść ukrytą platformę w pierwszej ćwiartce (Q1) labiryntu wodnego.
- Rejestruj zachowania pływackie szczurów (mierzone za pomocą czasu latencji, trajektorii lub liczby przejść) za pomocą kamery wideo umieszczonej nad labiryntem wodnym, połączonej z komputerowym oprogramowaniem do analizy graficznej.
- Przesiewanie w celu wyłonienia odpowiednich szczurów modelowych do grupy złożonej poddanej działaniu Aβ
- W 45. dniu po operacji należy przeprowadzić trening w wodnym labiryncie Morrisa przez 4 kolejne dni, aby wyłonić szczury z pomyślnie wywołanym zaburzeniem pamięci i zebrać dane dotyczące współczynnika selekcji (SR).
Uwaga: SR definiuje się jako średnią latencję każdego zsumowanego szczura leczonego Aβ oraz grupy szczurów poddanych operacji pozorowanej w odnalezieniu ukrytej platformy pod powierzchnią wody w 4. dniu treningu w labiryncie wodnym. W poniższym równaniu „A” oznacza średnią latencję każdego zsumowanego szczura leczonego Aβ w odnalezieniu ukrytej platformy, a „B” średnią latencję grupy szczurów poddanych operacji pozorowanej w odnalezieniu ukrytej platformy w 4. dniu treningu w labiryncie wodnym:

W przypadku, gdy wartość SR dla szczura poddanego działaniu złożonego Aβ była większa niż 0,2, uznawano go za pomyślnie stworzony model szczura z upośledzoną pamięcią po podaniu złożonego Aβ.15Wydajność pamięci w obrębie jednego dnia obliczono na podstawie danych z dwóch prób, wyciągając średnią wartość czasu potrzebnego szczurom na odnalezienie ukrytej platformy. Procedura testu wodrowego labiryntu Morrisa została zaprojektowana w taki sposób, aby szczury mogły pływać w zbiorniku z labiryntem i szukać ukrytej platformy w czasie do 60 s. Jeśli szczur nie odnalazł ukrytej platformy w ciągu 60 s, był na nią umieszczany ręką eksperymentatora. Po dotarciu szczura na ukrytą platformę (samodzielnie lub przy pomocy), pozwalano mu pozostać na niej przez 20 s. Następnie szczura usuwano ze zbiornika i zapewniano mu 10 s regeneracji fizycznej pomiędzy dwiema próbami.
- W 45. dniu po operacji należy przeprowadzić trening w wodnym labiryncie Morrisa przez 4 kolejne dni, aby wyłonić szczury z pomyślnie wywołanym zaburzeniem pamięci i zebrać dane dotyczące współczynnika selekcji (SR).
3. Badanie neuronów
- W 86. dniu po operacji, w znieczuleniu izofluranem, uśmierć szczury poprzez dekapitację (Rycina 1).
- Umieść mózg w lodzie i delikatnie rozdziel obie półkule w obrębie szwu. Pobierz lewą półkulę z poziomu skrzyżowania wzrokowego i utrwal w 4% formaldehydzie do obserwacji mikroskopowej w świetle po barwieniu neuronów hematoksyliną i eozyną (HE), czerwienią Kongo lub azotanem srebra (patrz sekcje 4-6). Prawą półkulę w obszarze CA1 hipokampa utrwal w 2,5% glutaraldehydzie do obserwacji w mikroskopie elektronowym (sekcja 7).
- Przygotuj próbki mózgu do mikroskopii świetlnej/elektronowej zgodnie z wcześniej opisaną procedurą16,17.
4. Barwienie neuronów metodą HE
- Każdy preparat poddać deparafinizacji (po 20 min na każdy etap) w serii alkoholi o malejącym stężeniu (10%, 95%, 90%, 80% i 70%) aż do wody destylowanej, wykonując czynność w dygestorium.
- Barwić przez 3 min hematoksyliną (0,5% w/v), a następnie płukać wodą z kranu, aby usunąć niezwiązany barwnik z preparatów.
- Płukać przez 1 s 0,1% kwasem solnym w alkoholu w celu usunięcia koloru z nieobarwionych jąder.
- Zanurzyć w 0,5% roztworze amoniaku na 2 min, aż tło stanie się jasnoniebieskie.
- Barwić przez 1 min 1% eozyną.
- Odwodnić przez 5 min w serii alkoholi o rosnącym stężeniu (70%, 80%, 90%, 95% i 10%).
- Przeczyścić w ksylenie i zamknąć w medium montażowym na bazie żywicy.
- Za pomocą mikroskopu optycznego przy powiększeniu 40x, osoba nieznająca schematu eksperymentalnego powinna zaobserwować i policzyć żyjące neurony w barwieniu HE na obszarze 0,125 mm w środkowej części pola CA1 hipokampa oraz na obszarze 0,0352 mm2 w korze mózgowej.
5. Barwienie czerwienią Kongowy do oceny obciążenia neuronów Aβ
- Przeprowadzić deparafinizację każdego preparatu (20 min), używając serii alkoholi o malejącym stężeniu (10%, 95%, 90%, 80% i 70% alkoholu) oraz wody destylowanej, pracując pod wyciągiem laboratoryjnym.
- Barwić przez 20 min roztworem roboczym czerwieni Konga (0,5 g czerwieni Konga, 80 mL alkoholu metylowego, 20 mL gliceryny).
- Płukać w wodzie destylowanej przez 5 min.
- Przeprowadzić szybkie różnicowanie w zasadowym 80% roztworze alkoholu (0,2 g alkoholu/10 mL wodorotlenku potasu) przez 3 s.
- Płukać dwukrotnie, za każdym razem przez 5 min, wodą destylowaną.
- Barwić kontrastowo hematoksyliną Gilla przez 3 min.
- Płukać w wodzie z kranu przez 2 min.
- Zanurzyć w wodzie amoniakalnej (do wody z kranu dodać kilka kropli wodorotlenku amonu i dobrze wymieszać) na 30 s lub do momentu, aż przekroje zabarwią się na niebiesko.
- Płukać w wodzie z kranu przez 5 min.
- Odwodnić, używając serii alkoholi o rosnącym stężeniu (70%, 80%, 90%, 95% i 10% alkoholu).
- Przejąśnić w ksylenie i zamontować za pomocą żywicznego medium montażowego.
- Obserwować i policzyć komórki zabarwione czerwienią Konga przy powiększeniu 40x za pomocą mikroskopu optycznego; analizę powinien przeprowadzić badacz nieznający schematu eksperymentalnego.
6. Barwienie azotanem srebra w celu oceny tworzenia się NFT w neuronach
- Każdy preparat poddać deparafinizacji (20 min) w serii alkoholi o malejącym stężeniu (10%, 95%, 90%, 80% i 70%) oraz w wodzie destylowanej w komorze dyfuzyjnej.
- Zanurzyć w 20% roztworze azotanu srebra z dodatkiem czynnika blokującego na 20 min w ciemności.
- Przepłukać dwukrotnie w wodzie destylowanej przez 5 min za każdym razem.
- Zanurzyć w roztworze amoniaku z srebrem. Do 20% roztworu azotanu srebra dodawać kroplami roztwór amoniaku, aż roztwór przestanie być mętny i stanie się klarowny. Jednocześnie mieszać roztwór szklaną bagietką przez 15 min, a następnie umieścić w 1% roztworze wodorotlenku amonu na 2 min.
- Umieścić preparat w roboczym roztworze wywoływującym na 3-7 min, aż do momentu zaobserwowania czarnych bloków w aksonach.
- Zanurzyć w 0,1% roztworze amoniaku na 1 min, a następnie płukać wodą przez 1 min.
- Poddać utrwalaniu w 5% roztworze tiosiarczanu sodu przez 2 min, a następnie płukać wodą przez 5 min.
- Odwodnić w serii alkoholi o rosnącym stężeniu (70%, 80%, 90%, 95% i 10%).
- Przejrzystość uzyskać w ksylenie, a następnie zamontować preparat przy użyciu żywicznego medium montażowego.
- Zaobserwować i zarejestrować komórki wybarwione azotanem srebra przy powiększeniu 40x pod mikroskopem optycznym przez osobę nieznającą schematu eksperymentalnego.
7. Pomiar ultrastruktury neuronów hipokampa
- Przeciąć obszar CA1 hipokampa szczura na kilka sześcianów (1 x 1 x 1 mm3) i umieścić w 2,5% glutaraldehydzie na 2 h w temperaturze 4 °C.
- Przepłukać sześciany w PBS trzy razy (pH 7,2, po 10 min każdego z płukań).
- Utrwalić sześciany w 1% kwasie osmiowym przez 2 h w temperaturze 4 °C.
- Przepłukać sześciany w podwójnie destylowanej wodzie 3x (po 10 min każdego z płukań).
- Odwodnić przy użyciu gradientu alkoholu 50%, 70% i 90% (po 10 min dla każdego stężenia) oraz 10% dwa razy (po 15 min każdego z płukań).
- Przenieść do tlenku propylenu dwa razy (po 15 min każdego z płukań), następnie do mieszaniny tlenku propylenu i żywicy w stosunku 1:1 (po 60 min każdego z etapów w temperaturze pokojowej) oraz tlenku propylenu i żywicy w stosunku 1:4 (po 60 min każdego z etapów w temperaturze pokojowej). Namoczyć w żywicy (120 min, w temperaturze pokojowej).
- Zatopić w EPON 812 i spolimeryzować (5 h/35 °C, 5 h/60 °C, 5 h/80 °C).
- Wyciąć cienkie skrawki (1 µm), zabarwić błękitem metylenowym i zlokalizować pod mikroskopem.
- Zabarwić ultracienkie skrawki (50 nm) octanem uranylu i cytrynianem ołowia.
- Obejrzeć pod mikroskopem elektronowym JEM-1400 i zebrać obrazy.
Wyniki
Wszystkie dane przedstawiono jako średnia ± SEM. Do obliczeń analizy statystycznej wykorzystano pakiet SAS/STAT. Różnice między grupami w czasie utajenia odnalezienia ukrytej platformy w teście nabywania pamięci i ponownego uczenia się analizowano za pomocą dwuczynnikowej analizy wariancji (ANOVA) z powtarzanymi pomiarami. Różnice między grupami w próbie sondującej oraz w liczbie neuronów analizowano za pomocą jednoczynnikowej analizy ANOVA, a następnie testu wielokrotnych zakresów Duncan’a. Za istotne statystycznie uznano p < 0,0518.
Przesiewowy wybór szczurów modelowych z upośledzeniem pamięci dla grupy traktowanej złożonym Aβ:
Wyniki przedstawione na Rysunku 2AA1 i 2AA2 pokazują, że szczury z grupy operowanej pozornie (sham) zawsze pływały swobodnie, natomiast szczury z grupy traktowanej kompozytem Aβ (Rysunek 2AB1, AB2) zawsze pływały wzdłuż obwodu basenu (pływanie adaptacyjne) w wodnym labiryncie Morrisa. W ciągu 4 dni selekcji szczurów do modelu zaburzeń pamięci u wszystkich osobników odnotowano sukcesywny spadek czasu potrzebnego na odnalezienie ukrytej platformy (latencja) (Rysunek 2B). W 4. dniu treningu w wodnym labiryncie Morrisa, jeśli wskaźnik SR był wyższy niż 0,2 (obliczony na podstawie latencji każdego szczura traktowanego kompozytem Aβ oraz grupy operowanej pozornie w odnajdywaniu ukrytej platformy), szczura traktowanego kompozytem Aβ uznawano za pomyślny model szczura z zaburzeniami pamięci. 18 z 19 szczurów (94,70%), które przeżyły operację, przeszło pomyślnie selekcję modelu. Do kolejnych eksperymentów wybrano po 6 szczurów z każdej grupy.

Rysunek 2. Przesiew w celu wyłonienia szczurów będących sukcesywnymi modelami z upośledzeniem pamięci w grupie złożonej traktowanej Aβ z wykorzystaniem treningu w labiryncie wodnym Morrisa. (A) Adaptacyjna trajektoria pływania szczurów w wodnym labiryncie Morrisa. (AA1-AA2) grupa pozorowana; (AB1-AB2) Grupa traktowana kompozytem Aβ. (B) Średnia latencja odnalezienia ukrytej platformy przez 4 kolejne dni próby przesiewowej w treningu w wodnym labiryncie Morrisa dla grupy poddanej operacji pozorowanej oraz złożonej grupy traktowanej Aβ. Rysunek został zmodyfikowany na podstawie referencji 4. Proszę kliknąć tutaj, aby wyświetlić większą wersję tej ryciny.

Złożony Aβ spowodował upośledzenie nabywania pamięci oraz ponownego uczenia się u szczurów:
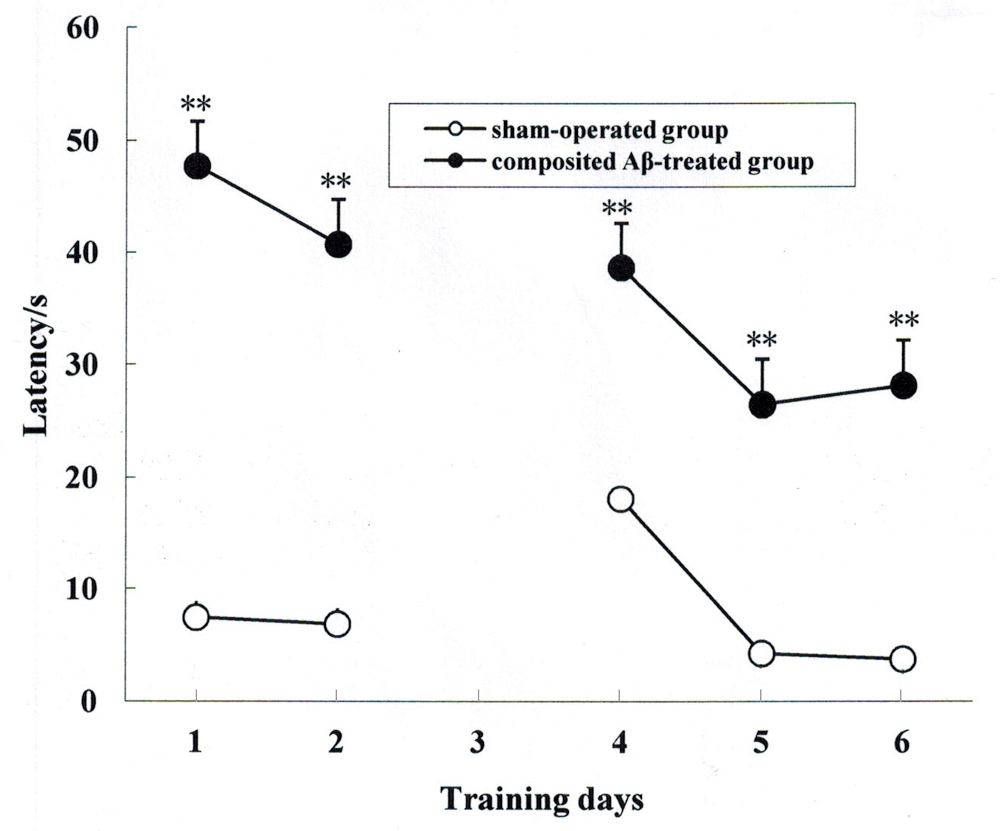
Nabywanie pamięci u szczurów określono za pomocą prób nawigacyjnych pozycjonowaniem w dniach 1. i 2. testu w labiryncie wodnym Morrisa, co odpowiadało 79. i 80. dniowi po operacji. Podczas tych 2 dni prób nabywania pamięci u wszystkich szczurów odnotowano stopniowy spadek czasu dotarcia do ukrytej platformy. Jak pokazano na Ryc. 3, czasy dotarcia do ukrytej platformy w złożonej grupie traktowanej Aβ były odpowiednio o 360,67% i 58,28% (F (1, 5) = 238,67, p < 0,01) dłuższe niż w grupie operowanej pozornie (sham) w dniu 1. i 2. testu w labiryncie wodnym Morrisa. Wskazuje to, że złożone Aβ może indukować zaburzenia nabywania pamięci u szczurów.
Ponowne uczenie się szczurów oceniano za pomocą prób odwrócenia w dniach 4, 5 i 6 testu wodnego labiryntu Morrisa, co odpowiadało dniom 82, 83 i 84 po operacji. Jak pokazano na Rysunku 3, czas dotarcia do ukrytej platformy w grupie traktowanej złożonym Aβ był odpowiednio o 306,20%, 650,16% i 936,92% dłuższy niż w grupie poddanej operacji pozorowanej (F (1, 5) = 138,76, p < 0,01). Wykazuje to, że złożony Aβ może nasilać upośledzenie ponownego uczenia się u szczurów (Rysunek 3).
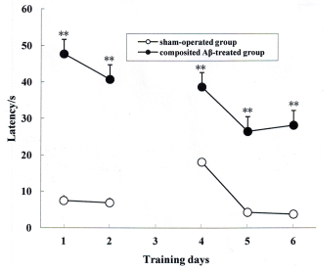
Rycina 3Złożone Aβ spowodowało upośledzenie nabywania pamięci oraz ponownego uczenia się u szczurów. Do oceny procesu nabywania pamięci wykorzystano próbę nawigacji pozycyjnej, analizując wyniki pływania w ciągu dwóch kolejnych dni (dzień 1. i 2.) w teście labiryntu wodnego Morrisa. Próby te przeprowadzono w 79. i 80. dobie po operacji. Do oceny ponownego uczenia się wykorzystano próbę odwrócenia (reversal trial), analizując wyniki pływania w ciągu trzech kolejnych dni (dzień 4., 5. i 6.) w teście labiryntu wodnego Morrisa, co odpowiadało 82., 83. i 84. dobie po operacji. Wykresy liniowe przedstawiają średni czas dotarcia do ukrytej platformy dla każdej grupy w 1., 2., 4., 5. i 6. dniu testu labiryntu wodnego Morrisa. Dane analizowano za pomocą dwuczynnikowej analizy wariancji (ANOVA) z pomiarami powtarzanymi (dzień x grupa). Średnia ± SEM. n = 6. **p < 0,01 w stosunku do grupy pozorowanej. Rysunek zmodyfikowano na podstawie źródła 4. Prosimy o kliknięcie tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Złożony Aβ spowodował upośledzenie retencji pamięci u szczurów:
Retencję pamięci u szczurów zmierzono za pomocą próby sondującej w 3. dniu testu w labiryncie wodnym Morrisa, co odpowiadało 81. dniu po operacji. W jednodniowej próbie retencji pamięci grupa traktowana złożonym Aβ wykazała krótszy czas pływania, mniejszą dystans pływania oraz mniejszą liczbę przekroczeń ćwiartki Q1 w ciągu 60 s, co odpowiednio stanowiło 32,14%, 30,1% i 78,95% (p < 0,01) w porównaniu do grupy poddanej operacji pozorowanej (Rysunek 4A, 4B). Wyniki te pokazują, że złożony Aβ może wywoływać upośledzenie retencji pamięci u szczurów.
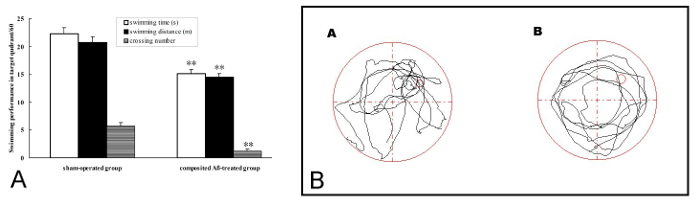
Rysunek 4Złożony Aβ spowodował upośledzenie retencji pamięci u szczurów. Próbę sondującą wykorzystano do oceny retencji pamięci poprzez analizę osiągnięć w pływaniu w ciągu jednego dnia w 3. dniu testu w labiryncie wodnym Morrisa, który przeprowadzono w 81. dniu po operacji.A) Czas pływania, dystans pływania oraz liczba przekroczeń kwadrantu Q1 w ciągu 60 s w próbie badawczej (bez platformy). Dane analizowano za pomocą jednoczynnikowej analizy wariancji (ANOVA) z testem wielokrotnych porównań. Średnia ± SEM. n = 6. **p < 0,01 w porównaniu z grupą pozorowaną. (B) Trajektoria pływania szczurów w próbie pamięciowej. (A) Grupa pozorowana, wykazująca dłuższy czas i większy dystans pływania w kwadrancie docelowym (Q1). (B) Grupa traktowana Aβ, wykazująca krótszy czas i mniejszą odległość pływania w kwadrancie docelowym (Q1). Rycina została zmodyfikowana na podstawie źródła 4. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Wpływ zsyntetyzowanego Aβ na prędkość pływania szczura:
Prędkość pływania szczurów obliczono na podstawie próby z widoczną platformą w 7. dniu testu w wodnym labiryncie Morrisa, co odpowiadało 85. dniu po operacji. Prędkość pływania szczurów w każdej z grup w basenie, obliczona na podstawie dystansu pływania oraz czasu wejścia na platformę, nie wykazywała istotnych różnic. W związku z tym można było wykluczyć indywidualne różnice w prędkości pływania szczurów, co wskazuje, że motywacja i sprawność motoryczna były w zasadzie zachowane u wszystkich zwierząt (Rycina 5).
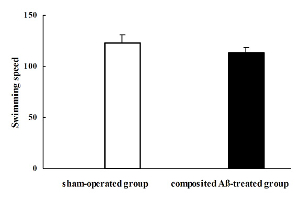
Rysunek 5. Złożony Aβ wpłynął na prędkość pływania szczurów. Prędkość pływania szczurów obliczono na podstawie próby z widoczną platformą w 7. dniu testu labiryntu wodnego Morrisa, który przeprowadzono w 85. dniu po operacji. Prędkość pływania szczurów w każdej z grup nie różniła się znacząco. Dane analizowano za pomocą jednoczynnikowej analizy wariancji (ANOVA) z testem wielokrotnych porównań. Średnia ± SEM. n = 6. Rysunek zmodyfikowano na podstawie źródła 4. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Złożone Aβ wywołało zmiany morfologiczne neuronów szczura:
Wszystkie szczury uśmiercono poprzez dekapitację w 86. dniu po operacji. Podczas oceny wizualnej u kilku szczurów z grupy poddanej działaniu złożonego Aβ zaobserwowano żółtawą powierzchnię lub cienką bądź zapadniętą korę mózgową. W porównaniu z grupą poddaną operacji pozorowanej (Rysunek 6AA2), badanie mikroskopowe grupy poddanej działaniu złożonego Aβ z wykorzystaniem barwienia HE wykazało patologiczne zmiany neuronów hipokampa, takie jak degeneracja neurofilamentarna, neuronofagia, piknoza jąder komórkowych oraz margination jądrowa (Rysunek 6AB2). Ponadto w części kory mózgowej w grupie poddanej działaniu złożonego Aβ stwierdzono typową martwicę rozpływną, charakteryzującą się przerwaniem błon komórkowych, fragmentacją jąder oraz rozległą infiltracją komórek zapalnych w obszarze martwiczym (Rysunek 6AB3). Wskazuje to, że złożony Aβ może prowadzić do strukturalnych uszkodzeń patologicznych neuronów u szczurów.
Oprócz patologicznych zmian w strukturze neuronów, w porównaniu z grupą poddaną operacji pozorowanej, liczba neuronów była również znacząco mniejsza w hipokampie i korze mózgowej (z wyjątkiem próbki z martwicą kolkwatywną) w grupie traktowanej złożonym Aβ. Liczba neuronów była o 63,86% (p < 0,01) niższa niż w grupie z operacją pozorowaną w przekrojach pola CA1 hipokampa o grubości 0,125 mm oraz o 5,46% (p < 0,01) niższa w przekrojach kory mózgowej o powierzchni 0,0352 mm2 (Rysunek 6B), co sugeruje, że złożony Aβ może prowadzić do zmniejszenia liczby neuronów.
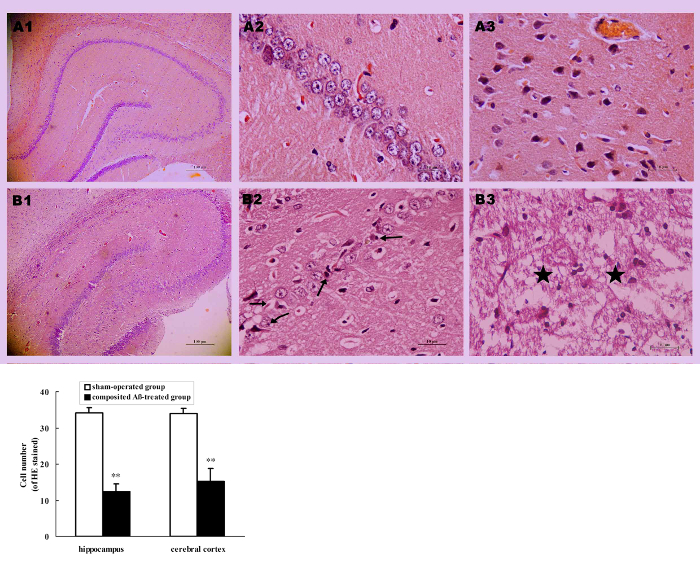
Rysunek 6Złożone Aβ spowodowało zmiany morfologiczne w neuronach szczura. (A) Reprezentatywne obrazy neuronów hipokampa i kory mózgowej barwionych HE. (A1-B1) Hipokamp 40x; (A2-B2) Hipokamp CA1 40x; (A3-B3) Kora mózgowa 40x. (A1-A3) grupa pozorowana; (B1-B3) Grupa traktowana złożonym Aβ; wykazuje wyraźną utratę neuronów, degenerację neurofibrylarną (→), neuronofagię (←), pyknotyzację jąder komórkowych (↗), marginesję jąder (↙) w hipokampie, typową martwicę kolkwiacyjną (★), przerwane błony komórkowe oraz liczne nacieki komórek zapalnych w korze mózgu w części grupy traktowanej złożonym Aβ. Pasek skali wynoszący A1, B1 = 10 µmPasek skali w A2, B2, A3, B3 = 100 µm. (B) Liczba neuronów z barwieniem HE w hipokampie i korze mózgowej, policzona pod mikroskopem świetlnym (40x). Każdy słupek przedstawia średnią ± SEM z 9 pól widzenia 3 niezależnych próbek (n = 3). **p < 0,01 w porównaniu z grupą poddaną zabiegowi pozorowanemu. Rycina została zmodyfikowana na podstawie źródła 4. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
W badaniu mikroskopowym elektronowym zaobserwowano ultrastrukturę podkomórkową neuronów hipokampa. Podstruktura neuronów hipokampa w grupie traktowanej złożonym Aβ (Rycina 7B1–B4) była znacznie zniszczona, wykazując obrzęk mitochondriów i pękanie grzebieni, zwiększoną gęstość elektronową mitochondriów, rozszerzenie szorstkiego retikulum endoplazmatycznego, depolimeryzację polirybosomów i polimikrotubul, obecność gęstości postsynaptycznej (PSD), liczne lizosomy wtórne oraz osady lipofuscyny w cytoplazmie w porównaniu z grupą operowaną pozornie (Rycina 7A1–A4). Błona jądrowa była nierównomierna i zapadnięta, euchromatyna skondensowana i zdenaturowana, warstwy osłonki mielinowej rozluźnione lub zdegenerowane, a wewnętrzne aksony i włókna były cieńsze. Wyniki te wykazują, że złożony Aβ może powodować uszkodzenia podstruktury neuronów u szczurów.
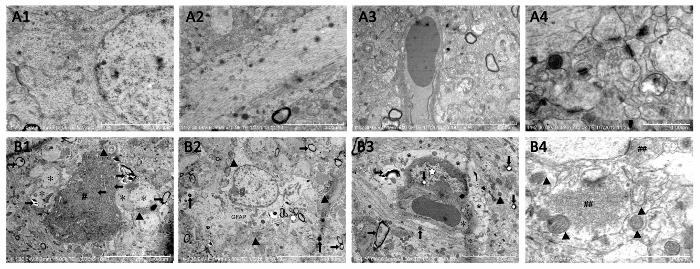
Rysunek 7Struktura subkomórkowa neuronu hipokampa oceniana za pomocą obserwacji mikroskopii elektronowej. A1-A4Grupa z operacją pozorowaną. Pasek skali o długości A1 = 4 µm, 12 0x; Pasek skali wynoszący A2 = 3 µm, 15 0x; Pasek skali o A3 = 5 µm, 10 0x; Pasek skali o wartości A4 = 1 µm, 35 0x. (B1-B4) Grupa traktowana kompozytem Aβ. (B1) Piknoza neuronów i jąder komórkowych (←), kondensacja lub degeneracja euchromatyny (#), obrzęk stopek astrocytów (*), mitochondria o wysokiej gęstości elektronowej (▲), rozluźnienie lub zanik warstw osłonki mielinowej (→); (B2) Większa ekspresja GFAP, mitochondria o wysokiej gęstości elektronów (▲), poluzowanie lub zanik warstw osłonki mielinowej (), więcej lizosomów wtórnych (↑), pyknoza pericytów, kondensacja euchromatyny lub degeneracja pericytów (☆), obrzęk stóp astrocytów (*), mitochondria o wysokiej gęstości elektronów (▲), więcej lipofuscyny (↓), poluzowanie lub zanik warstw osłonki mielinowej (→). B4: więcej neurotransmiterów pobudzających (##), mitochondria o wysokiej gęstości elektronów lub z uszkodzoną błoną (▲), mniej synaps. Pasek skali o B1, B2 = 10 µm, 5 0x; Pasek skali o wartości B3 = 5 µm, 8 0x; Pasek skali wynoszący B4 = 1 µm, 40 0x. Rycina została zmodyfikowana na podstawie referencji 4. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Złożony Aβ wywołał obciążenie Aβ w neuronach szczura:
Do wykrywania obciążenia neuronów Aβ zastosowano barwienie czerwienią Kongo. Wyniki pokazują, że złożone Aβ może znacząco indukować wewnątrzkomórkowe obciążenie Aβ w hipokampie i korze mózgu szczura (Rysunek 8A). Liczba komórek wykazujących pozytywne barwienie Aβ na czerwono za pomocą czerwieni Kongo w hipokampie i korze mózgu w grupie traktowanej złożonym Aβ była odpowiednio 8,05- i 4,09-krotnie (p < 0,01) większa niż w grupie z operacją pozorowaną (Rysunek 8B). Dowodzi to, że złożone Aβ może zwiększać obciążenie neuronów Aβ u szczurów.
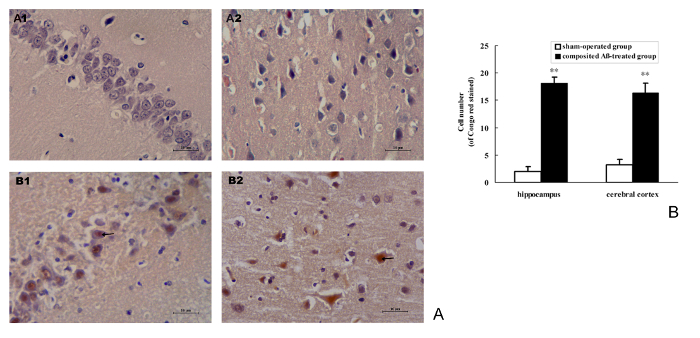
Rycina 8Złożony Aβ spowodował obciążenie Aβ w neuronach szczura. (A) Reprezentatywne obrazy pozytywnych neuronów Aβ barwionych czerwienią Kongowa w hipokampie i korze mózgowia.(A1-B1) Hipokamp CA1 40x; (A2-B2Kora mózgowa 40x.A1-A2) grupa pozorowana; (B1-B2) Grupa traktowana Aβ (obraz złożony), wykazuje więcej komórek Aβ-dodatnich wybarwionych czerwienią Kongo. Pasek skali = 10 µm, 400x. (B) Liczba neuronów Aβ wybarwionych czerwienią Konga w hipokampie i korze mózgu, policzonych pod mikroskopem świetlnym (40x). Każdy słupek przedstawia średnią ± SEM z 9 pól widzenia z 3 niezależnych próbek (n = 3). **p < 0,01 vs. grupa poddana operacji pozorowanej. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Złożone Aβ wywołało depozycję NFT w neuronach szczura:
Do wykrywania odkładów NFT w neuronach zastosowano barwienie azotanem srebra. Wyniki wskazują, że złożone Aβ może wyraźnie powodować wewnątrzkomórkowe odkładanie się NFT w hipokampie i korze mózgowej szczura (Rycina 9A). Liczba komórek z NFT wybarwionych na brązowo azotanem srebra w hipokampie i korze mózgowej w grupie traktowanej złożonym Aβ była odpowiednio 9,75- i 4,82-krotnie (p < 0,01) wyższa niż w grupie poddanej operacji pozorowanej (Rycina 9B). Dowodzi to, że złożone Aβ może zwiększać agregację NFT w neuronach szczurów.
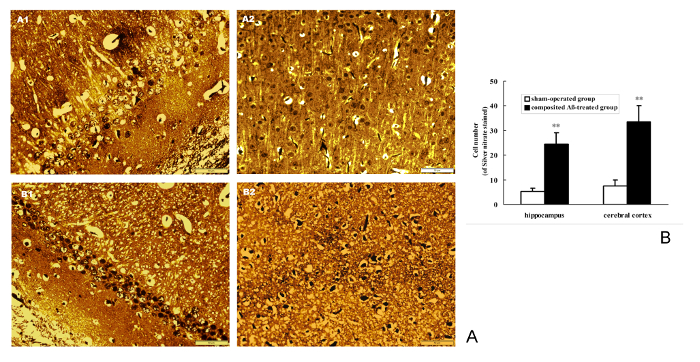
Rycina 9Złożone Aβ wywołało agregację NFT w neuronach szczura. (A) Reprezentatywne obrazy neuronów z dodatnim wynikiem w kierunku NFT, wybarwionych azotem srebrowym w hipokampie i korze mózgu. (A1-B1) Hipokamp CA1 40x; (A2-B2) Kora mózgowa 40x. (A1-A2) grupa pozorowana; (B1-B2) Grupa traktowana Aβ w kompozycie. Przedstawiono większą liczbę komórek dodatnich pod kątem NFT, wybarwionych azotanem srebra w grupie traktowanej kompozytem. Pasek skali = 10 µm, 40x. (B) Liczba neuronów z dodatnim wynikiem badania NFT, barwionych azotynem srebra w hipokampie i korze mózgowej, które policzono pod mikroskopem świetlnym (powiększenie 40x). Każdy słupek przedstawia średnią ± SEM z 9 pól widzenia z 3 niezależnych próbek (n = 3). **p < 0,01 w porównaniu z grupą pozorowaną. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Powszechnie wiadomo, że utrata zdolności uczenia się i pamięci jest głównym objawem klinicznym u pacjentów z AD2. Opisana tutaj procedura jest metodą badania AD in vivo ; Dostosowaliśmy wcześniej opublikowany protokół, w którym testowaliśmy lek łagodzący deficyty pamięci i uszkodzenia neuronów w modelu szczura4. Nasz protokół dostarcza ważnych szczegółów w celu uzyskania cennych danych, a także wysokiego wskaźnika przeżywalności zwierząt, które z powodzeniem modelują operację, deficyty pamięci, uszkodzenia neuronów, obciążenie Aβ i depozycję NFT, aby naśladować AD (w obecnym eksperymencie wskaźnik przeżycia i wskaźnik udanego modelu działania wynoszą ponad 90%). Te udane szczury modelowe zostały wykorzystane do zmierzenia ich pamięci przestrzennej za pomocą testu labiryntu wodnego Morrisa. Próba nawigacji pozycyjnej wykazała, że złożony Aβ może powodować upośledzenie przyswajania pamięci u szczurów; badanie sondy wykazało, że złożony Aβ może zmniejszać retencję pamięci szczurów; a próba odwrócenia wykazała, że złożony Aβ może powodować upośledzenie ponownego uczenia się szczurów. Te dane z testu labiryntu wodnego Morrisa pokazują, że złożony Aβ może indukować pamięć przestrzenną szczurów. Ogólnie rzecz biorąc, wstrzyknięcie szczurom domózgowo-komorowego Aβ25-35 w połączeniu z AlCl3 i TGF-β1 stworzyło wykonalny i wiarygodny model zwierzęcy in vivo podobny do AD dla laboratorium.
Wcześniejsze badania wykazały, że objętość mózgu u pacjentów z chorobą Alzheimera jest o 10% mniejsza niż u osób zdrowych. Różne zaniki można znaleźć w półkuli mózgowej poprzez obserwację wzrokową. Stopień zaniku kory mózgowej jest dodatnio związany z upośledzeniem pamięci19. W badaniu histologicznym duża liczba ubytków neuronów i ciężka patologia morfologiczna bezpośrednio zaburzają funkcję pamięci u pacjentów z AD20. W niniejszym badaniu obserwacja mikroskopowa światła / elektronów wykazała, że szczury, którym wstrzyknięto mikropreparat Aβ, wykazywały dramatyczne zmiany neuropatologiczne, w tym utratę neuronów oraz zaburzenie struktury neuronalnej i subkomórkowej. Wynik ten potwierdza zaburzenie pamięci przestrzennej szczurów wywołane przez złożony Aβ i jest podobny do stanu pacjentów z AD.
Powszechnie wiadomo, że obciążenie mózgu Aβ i agregacja NFT są uważane za najważniejsze cechy histopatogenne w chorobie Alzheimera. Mogą niszczyć strukturę neuronalną, zakłócać sygnalizację neuronalną, zakłócać funkcje neuronów i powodować zaawansowaną demencję17. Obecny model zwierzęcy wykazał obciążenie Aβ i agregację NFT w mózgu, co zgadza się ze stanem pacjenta z AD. W związku z tym obecne uszkodzenia neuronów u szczurów wywołane przez złożony Aβ mogą być wykorzystane jako model do badania patologii neuronalnej i strategii leczenia AD.
Poniżej znajdują się przykłady przesiewowych efektów leków w modelach szczurów AD: Zhao i wsp. stwierdzili, że zarówno flawonoidy z łodyg i liści Scutellaria (SSF), jak i Scutellaria barbata (SBF) mogą osłabiać upośledzenie pamięci i apoptozę szczurów wywołane przez złożony Aβ 8,9. Guo i wsp. poinformowali również, że SBF może hamować agregację NFT i nadmierną fosforylację białka tau po stronie Ser199, Ser214, Ser202, Ser404 i Thr231 oraz zmniejszać ekspresję białka GSK-3β, CDK5 i PKA oraz mRNA u szczurów traktowanych Aβ21. Jednocześnie Shang i in. poinformowali również, że SBF może hamować proliferację astrocytów i mikrogleju oraz obniżać ekspresję mRNA Aβ1-40, Aβ1-42 i β-site APP cszczepiącego enzym 1 (BACE1) w mózgu złożonych szczurów Aβ22. Opierając się na powyższych wynikach, nasz model zwierzęcy jest korzystny w porównaniu z innymi modelami podobnymi do AD, które obejmują więcej funkcji neuronalnych i zaburzeń struktury.
Jeśli chodzi o inny model podobny do AD, pojedyncze wstrzyknięcie Aβ do śródmózgowiowo-komorowej szczurom może powodować deficyty pamięci szczurów, utratę neuronów i proliferację neuroglejocytów, ale może, ale nie musi, mieć odkładanie się Aβ i NFT23. Szczury narażone na działanie wysokiej dawki Al wydają się mieć wysoki wskaźnik sukcesu, naśladują AD i opłacalny model zwierzęcy, z upośledzeniem pamięci, utratą neuronów, proliferacją neuroglejcytów i blaszką starczą (SP) oraz agregacją NFT w mózgu. Jednak wysoka dawka Al może powodować uszkodzenia wątroby szczurów i anoreksję, którym towarzyszy zmniejszenie masy ciała24. Stary szczur to kolejny model podobny do AD. Sędziwe szczury wykazują deficyty pamięci, patologiczne zmiany w strukturze neuronalnej/podstrukturze, odkładanie się lipofuscyny, ale bez obciążenia Aβ i agregacji NFT. Szczury w wieku powyżej 24 miesięcy są uważane za starsze dla tego modelu, dlatego wymaga on dłuższego okresu karmienia, a zatem koszt jest wyższy17,25. Myszy transgeniczne SAMP8 i APP są najbliższymi mimikami AD i są najbardziej idealnymi modelami do badania AD. Ale oba modele zwierzęce są droższe i są ograniczone do użytku w laboratorium 26,27. W porównaniu z powyższymi modelami zwierzęcymi, nasz model złożony z modelu zwierzęcego poddanego działaniu Aβ ma niższy koszt i wysoką wydajność, co czyni go idealnym narzędziem do badania AD.
Podsumowując, wstrzyknięcie Aβ25-35 do komór mózgowych w połączeniu z AlCl3 i TGF-β1 szczurom stanowi cenny model zwierzęcy in vivo , aby lepiej zrozumieć upośledzenie pamięci przestrzennej, uszkodzenia neuronów, obciążenie Aβ i odkładanie się NFT leżące u podstaw AD. Model ten zapewnia szybki i stosunkowo prosty protokół eksperymentalny z wysokim wskaźnikiem przeżywalności zwierząt i wysokim wskaźnikiem udanych operacji modelu, a także wysokim wskaźnikiem duplikacji, co okazało się bardziej ekonomiczne. Obecny model zwierzęcy jest skutecznym modelem do naśladowania choroby Alzheimera i może się dalej weryfikować, wykorzystując go do naśladowania różnych innych chorób.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Projekt był wspierany przez Fundację Nauk Przyrodniczych Prowincji Hebei (nr C2009001007, H2014406048), Administrację Tradycyjnej Medycyny Chińskiej prowincji Hebei (nr 05027) oraz Projekt Budowy Kluczowego Przedmiotu Kolegium Prowincjonalnego Hebei, Chiny.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Szczur Sprague-Dawley | Beijing Vital River Laboratory Animal Technology Co., Ltd, Chiny | SCXK (Jing) 2012-0001 | 300– 350 g |
| labirynt wodny Morrisa | Chińska Akademia Nauk Medycznych i Instytut Badań Medycznych Unii Pekińskiej, Chiny | Brak | |
| ruchomego znieczulenia dla małych zwierząt | RWD Life Science Co., Ltd. Chiny | R580 | |
| Aparat stereotaktyczny mózgu | RWD Life Science Co., Ltd. Chiny | 68001 | |
| Elastyczna wiertarka do kości | Shanghai Soft Long Technology Development Co., Ltd. Chiny | BW-sD908 | |
| Transmisyjny mikroskop elektronowy | Japan Co., Ltd. Japonia | JEM-1400 | |
| Dwukanałowa pompa mikroiniekcyjna | RWD Life Science Co., Ltd. Chiny | RWD202 | |
| EM mikrotom | Hitachi Co., Ltd. Chiny | H-7650 | |
| Atrapa kaniuli | RWD Life Science Co., Ltd. Chiny | 62001 | 0.D.0.64&razy; I.D.0.0.45mm/M3.5 http://www.rwdls.com/English/Product/3985102014.html |
| Kaniula prowadząca | RWD Life Science Co., Ltd. Chiny | 62101 | 0.D.0.40mm/M3.5 |
| Kaniula wewnętrzna | RWD Life Science Co., Ltd. Chiny | 62201 | 0.D.0.41&razy; I.D.0.25mm/ M3.5 |
| Dokręć nakrętkę | RWD Life Science Co., Ltd. Chiny | 62501 | 0.D.5.5mm/L7.5mm/M3.5 |
| Śruba mocująca | RWD Life Science Co., Ltd. Chiny | 62514 | M1.2&razy; L2,0 mm (100BAO) |
| Śrubokręt | RWD Life Science Co., Ltd. Chiny | 62999 | 45 * 1 mm |
| Rurki PE | RWD Life Science Co., Ltd. Chiny | 62302 | |
| Amyloid beta 25-35 | Sigma Aldrich Co. USA | SCP0002-5MG | |
| Rekombinowany ludzki transformujący czynnik wzrostu-β 1 | PeproTech Inc. USA | 100-21 | |
| Trichlorek glinu | Tianjin Kemiou Chemical Reagent Co., Ltd. Chiny | 3011080 | |
| Kongo czerwony | Tianjin Kemiou Chemical Reagent Co., Ltd. Chiny | 3010016 | |
| Azotan srebra | Sinopharm Chcmical Reagent Co., Ltd. Chiny | 20150720 | |
| Materiał bazowy protezy | Shanghai New Century Dental Materials Co., Ltd. Chiny | 20170609 |
Bibliografia
- Robinson, M., Lee, B. Y., Hane, F. T. Recent Progress in Alzheimer's Disease Research, Part 2: Genetics and Epidemiology. J. Alzheimers. Dis. , (2017).
- Hane, F. T., Lee, B. Y., Leonenko, Z. Recent Progress in Alzheimer's Disease Research, Part 1: Pathology. J. Alzheimers Dis. , (2017).
- Perl, D. P. Neuropathology of Alzheimer's disease. Mt. Sinai. J. Med. 77, 32-42 (2010).
- Wu, X. G., Wang, S. S., Miao, H., Cheng, J. J., Zhang, S. F., Shang, Y. Z. Scutellaria barbata flavonoids alleviate memory deficits and neuronal injuries induced by composited Aβ in rats. Behav. Brain Funct. 12, 33-43 (2016).
- Guo, K., Wu, X. G., Miao, H., Cheng, J. J., Cui, Y. D., Shang, Y. Z. Regulation and mechanism of Scutellaria bartata flavonoids on apopotosis of cortical neurons and cytochondriome induced by composited Aβ. Chin Hosp Pharm J. 35, 1994-1999 (2015).
- Guo, K., Miao, H., Wang, S. S., Cheng, J. J., Shang, Y. Z. Scutellaria barbata flavonoids inhibits NFT aggregation and regulatory mechanism in rats induced by composited Aβ. Chin. J. Pathophysio. 32, 2147-2156 (2016).
- Hou, X. C., et al. Scutellaria Barbata flavonoids inhibit the brain's Aβ and NFT abnormal generation and affect the related enzymes expression in rats induced by composited Aβ. Chin J New Drugs. , Accepted (2017).
- Zhao, H. X., Guo, K., Cui, Y. D., Wu, X. G., Shang, Y. Z. Effect of Scutellaria barbata flavonoids on abnormal changes of Bcl-2, Bax, Bcl-xL and Bak protein expression in mitochondrial membrane induced by composite Aβ25-35. Chin J Pathophysiol. 30, 2262-2266 (2014).
- Cheng, J. J., et al. Flavonoid extract from Scutellaria stem and leaf attenuates composited Aβ- induced memory impairment and apoptosis in rats. Chin.J. New Drugs. 25, 2627-2636 (2016).
- Fang, F., Yan, Y., Feng, Z. H., Liu, X. Q., Wen, M., Huang, H. Study of Alzheimer's disease model induced multiple factors. Chongqing Med. 36, 146-151 (2007).
- Regulations for the Administration of Affairs Concerning Experimental Animals. The Ministry of Science and Technology of the People's Republic of China. , 10-31 (1988).
- Bao, X. M., Shu, S. Y. The stereotaxic atlas of the rat brain. , People's medical publishing house. (1991).
- Morris, R. Developments of a water-maze procedure for studying spatial learning in the rats. J. Neurosic. Methods. 11, 47-60 (1984).
- Nunez, J. Morris Water Maze Experiment. J. Vis. Exp. (19), e897(2008).
- Yu, J. C., Liu, C. Z., Zhang, X. Z., Han, J. X. Acupuncture improved cognitive impairment caused by multi-infarct dementia in rats. Physiol. & Behav. 86, 434-441 (2005).
- Shang, Y. Z., Miao, H., Cheng, J. J., Qi, J. M. Effects of amelioration of total flavonoids from stems and leaves of Scutellaria baicalensis Georgi on cognitive deficits, neuronal damage and free radicals disorder induced by cerebral ischemia in rats. Biol. Pharm. Bull. 29, 805-810 (2006).
- Song, H. R., Cheng, J. J., Miao, H. J., Shang, Y. Z. Scutellaria flavonoid supplementation reverses ageing-related cognitive impairment and neuronal changes in aged rats. Brain Inj. 23, 146-153 (2009).
- Wang, M., et al. Novel RAS inhibitors Poricoic Acid ZG and Poricoic Acid ZH attenuate renal fibrosis via a Wnt/β-Catenin patheway and targeted phosphorylation of smad3 signaling. J Agric Food Chem. 66, 1828-1842 (2018).
- Pini, L., et al. Brain atrophy in Alzheimer's Disease and aging. Ageing Res. Rev. 30, 25-48 (2016).
- Ubhi, K., Masliah, E. Alzheimer's disease: recent advances and future perspectives. J. Alzheimers Dis. 33, 85-94 (2013).
- Guo, K. Scutellaria barbata flavonoids inhibite NFTs aggregation, tau protein phosphorylation and the regulated mechanism of related enzymes in rats induced by composited Aβ. , Master's thesis (2016).
- Shang, Y. Z. Effects and Mechanism of Scutellaria Barbata Flavonoids on Rat's Memory Impairment Induced by Compound Aβ25-35. , Doctoral Thesis (2013).
- Zussy, C., et al. Alzheimer's disease related markers, cellular toxicity and behavioral deficits induced six weeks after oligomeric amyloid-β peptide injection in rats. PLoS One. 8, 1-20 (2013).
- Walton, J. R. Aluminum involvement in the progression of Alzheimer's disease. J. Alzheimers Dis. 35, 7-43 (2013).
- Neils-Strunjas, J., Groves-Wright, K., Mashima, P., Harnish, S. Dysgraphia in Alzheimer's disease: a review for clinical and research purposes. J. Speech Lang Hear Res. 49, 1313-1330 (2006).
- Morley, J. E., Farr, S. A., Kumar, V. B., Armbrecht, H. J. The SAMP8 mouse: a model to develop therapeutic interventions for Alzheimer's disease. Curr Pharm Des. 18, 1123-1130 (2012).
- Puzzo, D., Gulisano, W., Palmeri, A., Arancio, O. Rodent models for Alzheimer's disease drug discovery. Expert Opin Drug Discov. 10, 703-711 (2015).
Przedruki i uprawnienia
