Urządzenie do mikroskopii fotooptycznej in situ zostało opracowane do monitorowania wielkości pojedynczych komórek bezpośrednio w zawiesinie komórki. Pomiar w czasie rzeczywistym odbywa się poprzez sprzężenie sondy fotooptycznej z możliwością sterylizacji z automatyczną analizą obrazu. Zmiany morfologiczne pojawiają się w zależności od stanu wzrostu i warunków uprawy.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
In Situ Mikroskopia do określania w czasie rzeczywistym morfologii pojedynczych komórek w bioprocesach
W tym artykule
Podsumowanie
Streszczenie
Monitorowanie in situ w bioprocesach mikrobiologicznych ogranicza się głównie do właściwości chemicznych i fizycznych podłoża (np. wartości pH i stężenia tlenu rozpuszczonego). Niemniej jednak morfologia komórek może być odpowiednim wskaźnikiem optymalnych warunków, ponieważ zmienia się w zależności od stanu wzrostu, akumulacji produktu i stresu komórkowego. Co więcej, rozkład wielkości pojedynczych komórek dostarcza nie tylko informacji o warunkach uprawy, ale także o niejednorodności populacji. Aby uzyskać takie informacje, opracowano urządzenie do mikroskopii fotooptycznej in situ1, aby umożliwić monitorowanie rozkładu wielkości pojedynczej komórki bezpośrednio w zawiesinie komórek w bioreaktorach. Zautomatyzowana analiza obrazu jest sprzężona z mikroskopią opartą na modelu sieci neuronowej, który jest trenowany na obrazach z adnotacjami użytkownika. Kilka parametrów, które uzyskuje się na podstawie ujęć mikroskopu, jest skorelowanych z istotnymi cechami komórek w procesie, takimi jak ich aktywność metaboliczna. Do tej pory prezentowana seria sond mikroskopowych in situ była stosowana do pomiaru wielkości osadów w zawiesinach grzybów strzępkowych. Wykorzystano go do rozróżnienia wielkości pojedynczej komórki w hodowli mikroalg i powiązania jej z akumulacją lipidów. Kształt cząstek komórkowych był związany z pączkowaniem w kulturach drożdży. Analizę mikroskopową można ogólnie podzielić na trzy etapy: (i) akwizycja obrazu, (ii) identyfikacja cząstek oraz (iii) analiza danych. Wszystkie kroki muszą być dostosowane do organizmu, dlatego w celu uzyskania wiarygodnych wyników wymagane są określone informacje z adnotacjami. Możliwość monitorowania zmian w morfologii komórek bezpośrednio na linii lub w trybie on-line (w obejściu) umożliwia monitorowanie i kontrolowanie wartości w czasie rzeczywistym, zarówno w rozwoju procesu, jak i w skali produkcji. Jeśli dane off-line korelują z danymi w czasie rzeczywistym, obecne żmudne pomiary off-line z nieznanymi wpływami na rozmiar komórki stają się zbędne.
Wprowadzenie
Cechy morfologiczne komórek są często związane ze stanem fizjologicznym, związek między formą a funkcją istnieje dla wielu zastosowań. Na morfologię pojedynczej komórki ma wpływ stan wzrostu, wiek komórki, osmotyczne i inne potencjalne stresy komórkowe lub akumulacja produktu. Zmiany morfologiczne komórek są często miarą żywotności wzrostu kultury. Wewnątrzkomórkowa synteza produktów, akumulacja lipidów w algach i tworzenie ciał inkluzyjnych u bakterii są również związane z wielkością komórki. Kolejnym czynnikiem, który warto zbadać, może być aglomeracja komórek, jak podsumowano niedawno2.
Niejednorodność populacji może być określana ilościowo na podstawie cech morfologicznych poszczególnych komórek. Badania wykazały, że heterogeniczność w obrębie kultury może być znacząca, np. w warunkach produkcji na dużą skalę3 na ogólną wydajność subpopulacji może mieć wpływ niska wydajność subpopulacji4.
Zazwyczaj, ocena cech morfologicznych komórek jest wykonywana przez ręczne pobieranie próbek lub za pomocą komory przepływowej by-pass sprzężonej z urządzeniem fotooptycznym. Prowadzi to do kilku ograniczeń: ograniczona ilość pozyskanych danych z trudem zapewnia statystycznie wiarygodne pomiary; opóźnienie czasowe między pobraniem próbek a dostępnością wyników może być zbyt duże w porównaniu z dynamiką procesu; A co najważniejsze, procedura pobierania próbek (lokalizacja portu pobierania próbek, wstępna obróbka próbki przed pomiarem, niekorzystne warunki w probówce do pobierania próbek lub obejściu) może wywołać błąd tendencyjny, ponieważ sama procedura pobierania próbek może już wpływać na morfologię komórki. Wreszcie, zawsze istnieje wysokie ryzyko zanieczyszczenia podczas pobierania próbek lub w roztworach obejściowych, jeśli nie można ich sterylizować na miejscu.
Zastosowanie mikroskopii in situ (ISM) może obejść kilka z tych problemów. Jeśli komórki zostaną wykryte automatycznie, można przeprowadzić poprawną identyfikację ich cech morfologicznych5. Do tej pory głównymi ograniczeniami tej metody były (i) czas oceny obrazów, który był zbyt długi dla zastosowań in situ, oraz (ii) słaba rozdzielczość obrazów, zwłaszcza przy dużej gęstości komórek. Chociaż pierwsze rozwiązania ISM obejmowały mechaniczne pobieranie próbek, rozcieńczanie sondy lub były ograniczone do systemu obejściowego6,7, dalsze podejścia pozwalają na bezpośrednie przechwytywanie zawiesiny komórek8.
Ostatnie osiągnięcia w ISM pozwalają na monitorowanie komórek w trybie line lub on-line na podstawie pojedynczej komórki, co zapewnia rozkład parametrów morfologicznych w czasie rzeczywistym bezpośrednio w zawiesinach komórkowych przy znacznie wysokich stężeniach komórek. Dzięki analizom off-line kluczowych parametrów komórek można zidentyfikować korelacje z informacjami dostarczanymi przez sprzężoną automatyczną detekcję komórek i ISM. Następnie uzyskuje się nowe konstrukcje miękkich czujników, w których niemierzalny parametr jest szacowany na podstawie morfologii pojedynczej komórki.
W tym raporcie, ISM jest przeprowadzany poprzez sprzężenie sondy fotooptycznej z automatyczną analizą obrazu. Technologia ISM składa się z jednoprętowej sondy sensorycznej, która umożliwia rejestrowanie obrazów w znanym zakresie ostrości w regulowanej szczelinie pomiarowej za pomocą kamery CCD o wysokiej rozdzielczości [MM-Ho = CCD GT2750 (2750x2200) i MM 2.1 = CMOS G507c (2464x2056)]. Oświetlenie lampą błyskową odbywa się przez transmisję. W związku z tym światło pochodzi z przeciwnej strony kamery9 i jego intensywność można regulować. Komórki przechodzą w sposób ciągły przez tę szczelinę wraz ze strumieniem cieczy. W związku z tym uzyskuje się reprezentatywną populację próby. Sonda może być zamontowana bezpośrednio do bioreaktora tak, aby sięgała do zawiesiny ogniwa, lub może być używana w sterylizowalnym by-passie. Obudowa czujnika jest podłączona do systemu przed sterylizacją, części optyczne są następnie montowane w obudowie.
Do tej pory badano odpowiednie mikroorganizmy przemysłowe, np. grzyby strzępkowe (średnica do ponad 200 μm), heterotroficzne mikroalgi Crypthecodinium cohnii (średnia średnica komórki 20 μm) oraz drożdże Saccharomyces cerevisiae (średnia średnica komórki 5 μm), były badane za pomocą tego lub podobnych urządzeń, które są pokrótce opisane.
Grzyby strzępkowe mają tendencję do tworzenia granulek w określonych warunkach uprawy. Są one o wielkości do kilkuset μm. Strzępki komórek grzyba rozwijają różną długość w zależności od naprężenia hydrodynamicznego w fazie płynnej. Ma to wpływ na aktywność metaboliczną i wzrostową, pobieranie substratu i uwalnianie produktu. Zastosowano ISM w celu określenia rozkładu wielkości granulek i szerokości stref o mniejszej gęstości biomasy na krawędziach granulek (dane własne niepublikowane).
Wielkość C. cohnii zmienia się między 15 a 26 μm, gdy komórki gromadzą wielonienasycony kwas tłuszczowy kwas dokozaheksaenowy (DHA) pod wpływem ograniczenia azotu. Ten biotechnologiczny proces produkcji DHA składa się z dwóch części: fazy wzrostu, w której komórki dzielą się i stają się mniejsze, oraz fazy produkcji, w której komórki gromadzą produkt, a tym samym stają się większe. W związku z tym wielkość komórki wykorzystano do określenia stanu procesu, w którym korzystny był wzrost lub produkcja DHA. Ostatecznie stwierdzono korelację między wielkością komórki a zawartością DHA. W tym przypadku technologia ISM pozwala monitorować wewnątrzkomórkową akumulację DHA w czasie rzeczywistym bez konieczności pobierania próbek, rozbijania komórek i wspólnej analizy metodą chromatografii gazowej10.
Pączkujące drożdże zwykle mają wielkość od 3 do 8 μm. Odsetek komórek, które są w stanie dojrzewania w danym momencie, zgodnie z opisem wskaźnika pączkowania (BI), dostarcza informacji o żywotności wzrostu11,12, a nawet udowodniono związek z wydzielaniem rekombinowanego białka13. Za pomocą ISM wyróżniono pączkujące i niepączkujące komórki drożdży (komórki z pączkiem i bez)14. Warunki stresowe mogą również prowadzić do szerszego zróżnicowania wielkości komórek w populacji drożdży, jak ostatnio wykazano w uprawach na małą skalę, w których naśladowano warunki upraw na dużą skalę z ograniczoną ilością składników odżywczych i były naśladowane3.
Dlatego ISM ma potencjał do monitorowania wzrostu, żywotności i tworzenia produktu na poziomie pojedynczej komórki podczas wszystkich etapów bioprocesu w celu identyfikacji optymalnych warunków uprawy lub w celu kontroli procesu. Opisane tutaj metody koncentrują się na zastosowaniach mikrobiologicznych z pojedynczymi komórkami, ale mają również zastosowanie do większych cząstek, takich jak komórki ludzkie i zwierzęce, aglomeraty komórkowe i granulki organizmów nitkowatych.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
UWAGA: Następujące kroki są niezbędne do dostosowania parametrów do odpowiedniego mikroorganizmu i warunków hodowli. Regulacja ustawień sondy trwa około 20 min w przypadku doświadczonego użytkownika. Szczegółowy opis narzędzi i etapów znajduje się w odpowiednim podręczniku sondy od SOPAT GmbH. Ogólnie w poniższym protokole wymagane są następujące narzędzia: (i) Probe Controller do regulacji sondy i akwizycji obrazów; (ii) Fiji (ImageJ) do nanoszenia adnotacji na uzyskanych obrazach; (iii) SOPAT support do trenowania sztucznej sieci neuronowej (ANN) i tworzenia przepływu pracy; (iv) Batcher do przetwarzania wsadowego danych przy użyciu wcześniej uzyskanych obrazów z określonym przepływem pracy; (v) Result Analyzer do wizualizacji i oceny wyników na obrazach przetworzonych wsadowo; oraz (vi) Monitor do zautomatyzowanego pomiaru w czasie rzeczywistym i wizualizacji wyników.
1. Konfiguracja parametrów sprzętowych
- Przygotować hodowlę o najwyższym stężeniu komórek, jakie może zostać osiągnięte podczas eksperymentu, lub odwirować i resuspendować osad, aby uzyskać takie stężenie. W tym przypadku dla hodowli S. cerevisiae wybrano stężenie suchej biomasy wynoszące 65 g L-1.
- Przygotować różne rozcieńczenia w zakresie od najwyższego do najniższego stężenia, tak aby w pełni pokryć oczekiwany zakres. Zaleca się zastosowanie minimum 4 różnych stężeń.
- Określić zakres wielkości komórek mikroorganizmu za pomocą konwencjonalnej mikroskopii. Zdefiniować oczekiwaną maksymalną średnicę (dmax) odpowiednich komórek. W przypadku S. cerevisiae wartość ta została ustalona na 8 µm.
- Wybrać dwie szczeliny pomiarowe o szerokości 5x i 10x oczekiwanej wartości dmax komórek.
- Wybrać maksymalną intensywność stroboskopu. Dla obu szczelin i przy najwyższym stężeniu komórek dobrać takie intensywności stroboskopu, aby komórki były nadal widoczne na obrazach o najniższej intensywności światła (najciemniejsze obrazy).
- Wybrać minimalną intensywność stroboskopu, a następnie dobrać intensywności stroboskopu dla obu szczelin tak, aby komórki były nadal widoczne na obrazach o najwyższej intensywności światła (najjaśniejsze obrazy). Użyć najniższego stężenia komórek, które prawdopodobnie wystąpi w okresie pomiaru.
- Wybrać jedną pozycję ostrości, która zapewnia najostrzejsze obrazy dla każdej szczeliny pomiarowej, dla obu intensywności stroboskopu oraz dla zakresu stężeń wymaganych do przetestowania (szczegóły dotyczące ustawiania ostrości znajdują się w kroku 2). Odpowiednio ustawić ostrość na komórkach, aby dane obrazowe mogły zostać później opisane (patrz krok 4).
- Zmierzyć wcześniej przygotowaną serię rozcieńczeń stężenia komórek (patrz krok 2), stosując obie szerokości szczelin oraz obie intensywności stroboskopu.
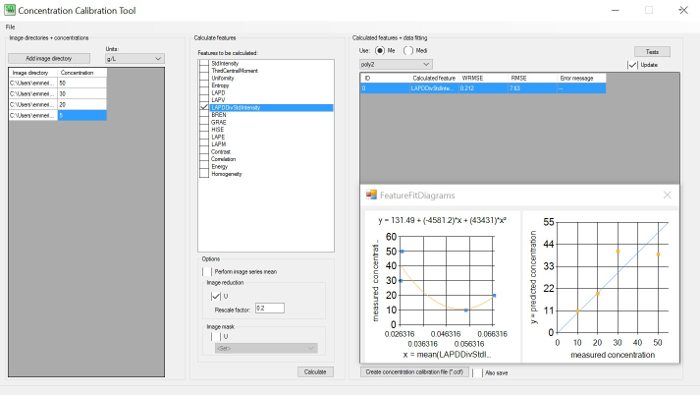
Rysunek 1: Narzędzie do kalibracji stężeń. Lewy interfejs użytkownika (GUI): ustawienie katalogów obrazów (minimum 3) o znanych stężeniach; środkowy interfejs użytkownika: wybór cech obrazu, które mają zostać obliczone dla katalogu obrazów; prawy interfejs użytkownika: wybór ważonego pierwiastka średniokwadratowego błędu (WRMSE) w celu zidentyfikowania minimum. WRMSE oraz najlepsza korelacja między dowolną cechą obrazu a stężeniem komórek. Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.
- Oceń eksperyment z serii rozcieńczeń.
- Użyj Narzędzie do kalibracji stężeń (CoCa) (patrz Rysunek 1) w celu określenia optymalnej korelacji między wyekstrahowanymi cechami obrazu (jasnością lub ostrością) a wcześniej zmierzonymi stężeniami podanymi przez użytkownika, np., suchą biomasę lub liczbę komórek. Dalsze szczegóły znajdują się w instrukcji obsługi oprogramowania.
- Określ optymalną korelację między informacjami wyekstrahowanymi z cech obrazu przy różnych stężeniach a jakimkolwiek offline pomiary. Patrz legendę do Rysunek 1.
- Wybierz najbardziej odpowiedni odstęp pomiarowy oraz intensywność stroboskopu, uwzględniając krzywą korelacji stężeń z cechami, które skutkują najmniejszym ważonym średniokwadratowym błędem (WRMSE).
UWAGA: Przerwa pomiarowa pozostaje stała podczas eksperymentu, natomiast natężenie stroboskopu może być dostosowane do stężenia komórek.
2. Pomiar off line
- Dostosować pożąną przerwę pomiarową zgodnie z krokiem 1, posługując się szczelinomierzem.
- Otwórz graficzny interfejs użytkownika Kontrola sondy w panelu sterowania SOPAT.
- Podłącz wybraną sondę do wzmacniacza w podsekcji oprogramowania Działania i naciśnij Połącz.
- Naciśnij Odtwórz przycisk rozpoczęcia strumieniowania (Podgląd na żywo).
- Oczyścić szczelinę pomiarową, rozpylając w niej etanol, a następnie ostrożnie wytrzeć wszelki kurz lub zanieczyszczenia za pomocą papieru optycznego. Sprawdzić, czy szkło sensora jest wolne od cząsteczek za pomocą Podgląd na żywo w CamControl.
UWAGA: Cząsteczki i kurz zakłócają pomiary oraz automatyczną identyfikację komórek. - Umieść suchy papier optyczny w szczelinie pomiarowej. Otwórz zakładkę Kontrola sondy należy dostosować intensywność stroboskopu, aby umożliwić wizualizację papieru. Obracać śrubę mocującą, aż pojedyncze włókna papieru staną się wyraźnie widoczne.
- Napełnić probówkę pożywką płynną. Zanurzyć mikroskop w pożywce płynnej w taki sposób, aby szczelina została całkowicie przykryta zawiesiną komórkową. Otworzyć zakładkę. Kontrola sondy należy ustawić pożądaną intensywność stroboskopu zgodnie z sekcją 1. Następnie należy ustawić ostrość obrazu komórek, precyzyjnie regulując śrubę blokującą ostrość. W trakcie eksperymentu ostrość nie może być już zmieniana.
UWAGA: Do stożkowej probówki wirówkowej o pojemności 50 ml dodaje się 5–6 ml pożywki hodowlanej, aby odpowiednio wypełnić przerwę pomiarową. - Zdefiniuj liczbę klatek na punkt czasowy [-] w interfejsie użytkownika w menu Wyzwalanie w interfejsie graficznym (GUI) Liczba klatek na wyzwalaczUstaw liczbę klatek na 20 klatek na wyzwalacz.
UWAGA: Liczbę klatek można zredukować do najniższej wartości niezbędnej do uzyskania statystycznie wiarygodnego wyniku. Zależy to od wielkości próby wymaganej do otrzymania reprezentatywnego rozkładu wielkości morfologicznej komórek (patrz również krok 5). - Zdefiniuj częstotliwość odświeżania klatek [Hz] w menu Wyzwalanie w GUI Częstotliwość klatekWybierz taką częstotliwość klatek, która zagwarantuje, że ruchome cząsteczki z poprzedniej klatki nie pojawią się w klatce następnej.
UWAGA: Można to potwierdzić, wykonując testowy wyzwalacz z 20 klatkami. Należy sprawdzić obrazy pod kątem obecności cząstek, które są rejestrowane wielokrotnie. Jeśli tak się dzieje, należy zmniejszyć częstotliwość klatek. Dla offline do pomiarów zaleca się częstotliwość 1 Hz. - W menu należy ustawić katalog, w którym będą zapisywane pozyskane obrazy. Ogólne.
- Wykonaj akwizycję obrazu, aktywując Rozpocznij akwizycję wyzwalacza obrazu przycisk. Delikatnie poruszaj probówką z zawiesiną hodowlaną w górę i w dół, aby wywołać przepływ przez szczelinę pomiarową.
- Powtórz krok 2.5 po każdym pomiarze.
- Sprawdź pozyskane obrazy. Komórki muszą być wystarczająco wyraźne do przeprowadzenia adnotacji. Przejrzyj obrazy pod kątem obecności cząstek, które są rejestrowane wielokrotnie. Jeśli tak się dzieje, zmniejsz częstotliwość odświeżania klatek.
- Zapisz ustawienia, wybierając następującą ścieżkę: C:\Program Files\SOPAT GmbH\monitoringPrograms\camcontrol, a następnie naciśnij Zapisz.
3. Identyfikacja cząsteczek
- Adnotuj cząstki w celu wytrenowania sztucznej sieci neuronowej (ANN) (zbiór treningowy).
- Wczytaj pozyskane obrazy do narzędzia do adnotacji „Fiji, ImageJpoprzez przeciągnięcie i upuszczenie pliku do okna głównegoImageJokno (patrz GUI „Fijinarzędzie w Rysunek 2)
- Otwórz menedżera ROI (ROI Manager), wybierając: Analiza | Narzędzia | Menedżer ROI.
- Wybierz narzędzie zaznaczania. Narzędzie magiczna różdżka (obrysowywanie), odręczne, owalne lub eliptyczne zaleca się dokonanie wyboru.
- Obrysuj okręgiem cząstkę, która ma zostać zaadnotowana za pomocą wspomnianych wcześniej narzędzi wyboru, a następnie doprecyzuj zaznaczenie za pomocą narzędzia pędzla.
- Dodaj adnotację do Menedżer ROI poprzez naciśnięcie Dodaj [t].
- Zaznacz wszystkie obiekty zainteresowania (komórki do zidentyfikowania) na około 15 obrazach.
UWAGA: Aby objąć wszystkie niezbędne informacje, t. j. różne kształty, rozmiary, stężenia komórek, jasność, itp.należy wykorzystać pięć obrazów z początku, pięć obrazów z przebiegu oraz pięć obrazów z końca eksperymentu. - Należy zdecydować, czy komórki wymagają zaklasyfikowania do różnych podklas ze względu na ich kształt (np., różne fazy cyklu komórkowego), lub czy wszystkie komórki należą do tej samej klasy.
- Zmień nazwę każdego wybranego obiektu zgodnie z przeznaczeniem. Wyznacz jedną nazwę lub skrót dla każdej klasy oraz licznik dla każdego obiektu w danej klasie (np., komórka_1, komórka_2, itd.). Adnotuj co najmniej 50 cząsteczek na każdą klasę.
- Nie należy nanosić adnotacji na obiekty, których nie należy wykrywać, ponieważ nie są one istotne dla procesu, takie jak pęcherzyki gazu lub inne cząstki, np. nierozpuszczone składniki pożywki.
UWAGA: Zdarzenia te nie zostaną uwzględnione w procedurze uczenia sieci ANN i będą traktowane jako tło. - Nie należy adnotować komórek znajdujących się poza obszarem ostrości.
- Opisz obrazy w sposób jak najspójniejszy. W przypadku wątpliwości etykieta Zignoruj może zostać zastosowana. Zdecydowanie zaleca się, aby nie nadużywać jej stosowania, ponieważ ANN rozpozna jedynie struktury, które zostały oznakowane.
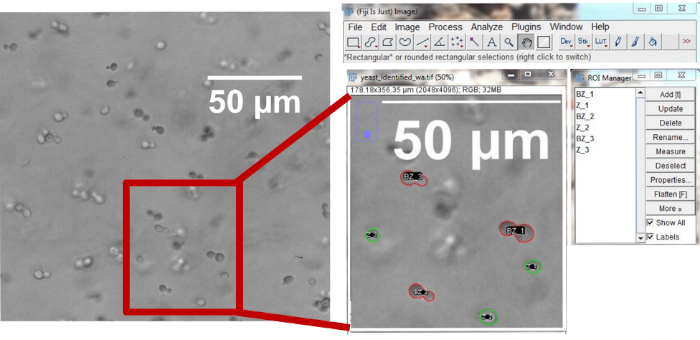
Rysunek 2: Interfejs użytkownika narzędzia Fiji. Z adnotowanych obrazów tworzony jest zbiór treningowy. Przedstawiono adnotację ręczną składającą się z dwóch klas, a lista adnotowanych cząstek jest widoczna w ROI Managerze. Dla różnych klas można ustawić różne nazwy i kolory. Kliknij tutaj, aby wyświetlić większą wersję tej figury.
- Zapisz adnotowane obiekty oraz obraz w formacie ZIP i prześlij plik do sieci treningowej, albo poprzez prześlij na platformę lub wyślij plik ZIP poprzez e-mail
UWAGA: Zazwyczaj wymagana jest liczba iteracyjnych rund szkolenia, aby uzyskać odpowiednie predykcje dla obiektów sklasyfikowanych na obrazach. Każda runda szkolenia prowadzi do wygenerowania przepływu pracy (workflow) zwracanego przez program. - Użyj przepływu pracy (*.wf) z wytrenowanym algorytmem rozpoznawania obiektów, aby przeanalizować obrazy testowe za pomocą programu do przetwarzania partii danych. Próbnik (batcher) którą można uruchomić w panelu sterowania.
- Zweryfikuj detekcję obiektów na obrazach testowych poprzez kwantyfikację zdarzeń fałszywie dodatnich i fałszywie ujemnych.
- Ilościowo określ detekcję zdarzeń fałszywie dodatnich: cząstek błędnie zidentyfikowanych jako komórki, komórek niezaklasyfikowanych prawidłowo oraz komórek, których kontur nie został właściwie zidentyfikowany.
- Ilościowo określ zdarzenia fałszywie ujemne (komórki, które nie zostały rozpoznane jako takie).
- Wizualizuj wyniki w narzędziu Analizator wyników poprzez uruchomienie programu w panelu sterowania.
- Importuj żądane pliki z wynikami za pomocą Plik | Importuj plik lub Plik | Importuj foldery.
- Wizualizuj wyniki poprzez Wykres | Utwórz wykres w interfejsie graficznym (GUI) wykresów.
- Wybierz jedną z poniższych opcji: Wykres rozkładu, Wykres czułości, Charakterystyka w czasie, Charakterystyka w punktach pomiarowych oraz Cecha kontra cecha
UWAGA: Instrukcja dotycząca wykorzystania Analizator wyników jest dostarczany wraz z systemem i jest również dostępny w ramach wsparcia technicznego. - Jeśli wyniki są akceptowalne, uruchom przepływ pracy w Urządzenie do dozowania partii na wszystkich obrazach pozyskanych podczas eksperymentu. Jednocześnie program monitorujący może zostać utworzony poprzez połączenie zapisanych ustawień z Sterownik sondy (*.pcfg) z przepływem pracy (*.wf), patrz również w instrukcji.
UWAGA: Przepływ pracy można również wykorzystać do monitorowania przyszłych eksperymentów z zastosowaniem tej pożywki. - Jeśli wyniki nie są satysfakcjonujące, należy sprawdzić adnotacje w zbiorze treningowym i/lub przeprowadzić kolejną iterację procesu trenowania (patrz krok 4.2).
4. Ilościowe oznaczenie wielkości próbki
- Ustaw odchylenie standardowe (σ), które jest dopuszczalne dla wykrytych cząstek.
UWAGA: Odchylenie standardowe zmienia się równolegle do homogeniczności rozmiaru komórek. Maksymalne odchylenie standardowe wskazuje na próbkę o najwyższym stopniu heterogeniczności rozmiaru. - Ustaw szerokość przedziału ufności lub pożądaną dokładność w odniesieniu do oczekiwanej wariancji pomiarów (e).
- Ustaw dopuszczalny błąd (α) w przedziale od 5% (z1-α/2 = 1,96) oraz 10% (z1-α/2 = 1.64).
- Oblicz liczbę komórek do zidentyfikowania z każdej klasy na podstawie równania 1.
 [Równanie 1]
UWAGA: W zależności od liczby komórek można określić liczbę obrazów, które należy pozyskać dla każdego punktu danych. - Przeprowadź analizę czułości dla wybranych losowo punktów czasowych eksperymentu, aby sprawdzić, czy analiza n cząstek prowadzi do zmienności średnicy Fereta i Dv90 mniejszej niż 5%. Można to obliczyć automatycznie w Analizator wyników.
5. Pomiar on line (obejście) lub in line
- W pierwszej kolejności przeprowadź procedurę pomiaru off line (patrz krok 2), aby ustawić parametry sprzętowe i programowe w zależności od organizmu oraz procesu (stężenia lub pożywki).
- Wgraj zapisane ustawienia z poprzednej sekcji, wybierając przycisk Load, a następnie wskaż następującą ścieżkę: C:\Program Files\SOPAT GmbH\monitoringPrograms\camcontrol.
- Podłącz sondę do celi przepływowej lub do bioreaktora.
UWAGA: Pomiary in situ można przeprowadzać przy użyciu obejmy zaciskowej. - Przeprowadź sterylizację.
UWAGA: Jedynie elementy instrumentu mające kontakt z sondą można sterylizować metodą parową. Długość części sondy mającej kontakt z medium może wynosić od 6 do 2 mm (Rysunek 3).
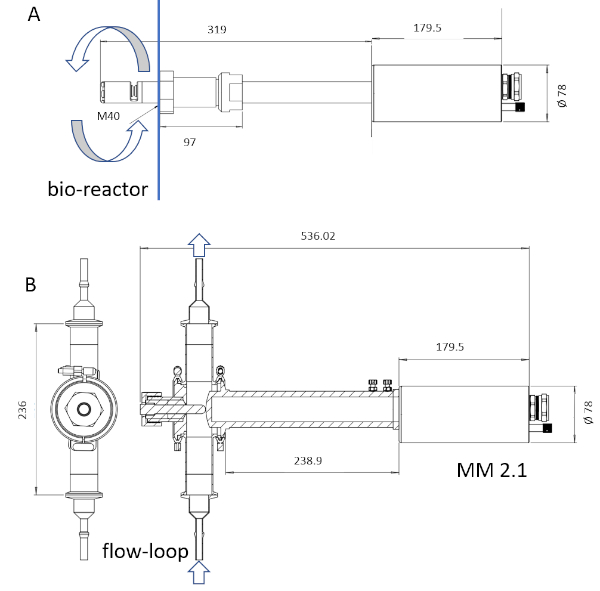
Rysunek 3: Schemat urządzeń ISM. Sonda MM-Ho (A) można zainstalować bezpośrednio w bioreaktorze, natomiast sondę MM 2.1 (B) może służyć jako obejście. Cyrkulacja pożywki hodowlanej jest zaznaczona strzałkami na każdym zdjęciu. Współczynniki konwersji wynoszą 0.166 µm pix-1 dla MM-Ho i 0.087 µm pix-1 dla MM 2.1. Kliknij tutaj, aby wyświetlić większą wersję tej figury.
- Zdefiniuj częstotliwość akwizycji obrazów w interfejsie graficznym (GUI) Wyzwalanie w terenie Interwał wyzwalania [s].
UWAGA: W zależności od dynamiki procesu można dostosować częstotliwość akwizycji obrazów. Na przykład, jeśli przewidywana jest 3-godzinna faza adaptacyjna (lag-phase), częstotliwość akwizycji może być niższa niż w przypadku monitorowania zmiany metabolizmu lub akumulacji produktu. Zazwyczaj wymaga to znacznie krótszego czasu akwizycji, liczonego w minutach. Na przykład sekwencja akwizycji obrazów co 5 do 10 min podczas hodowli okresowej drożdży dostarcza wystarczających informacji do uchwycenia dynamiki procesu. - Zdefiniuj częstotliwość odświeżania klatek zgodnie z wyjaśnieniem w kroku 2.10.
UWAGA: W online i w linii w pomiarach częstotliwość klatek można zwiększyć, ponieważ mieszanie mechaniczne może zwiększyć szybkość przepływu przez szczelinę. - Rozpocznij akwizycję obrazu, naciskając przycisk Rozpocznij przesyłanie danych z wybranej sondy.
- Zatrzymaj akwizycję po zakończeniu eksperymentu, używając odpowiedniego przycisku. Zatrzymaj strumieniowanie wybranej sondy.
UWAGA: W przypadku 1Proszę podać tekst źródłowy do tłumaczenia. uruchom program, rozpocznij akwizycję tuż przed zaszczepieniem hodowli, a następnie przejdź do kroku 4. W przypadku kolejnych pomiarów otwórz program Monitorowanie w panelu sterowania i wybierz utworzony przepływ pracy (patrz krok 4). Rozpocznij monitorowanie tuż przed inokulacją hodowli, naciskając przycisk Odtwórz przycisk
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Pomyślnie przeprowadzono detekcję wielkości komórek w kulturach drożdży z wykorzystaniem ISM oraz zautomatyzowaną analizę obrazu w celu rozróżnienia komórek pączkujących od niepączkujących. Zarówno natężenie stroboskopu, jak i wybór szczeliny pomiarowej posiadają zakres tolerancji, w którym identyfikacja cząstek nie zostaje zaburzona. Na przykład komórki S. cerevisiae mierzono przy różnych natężeniach stroboskopu w zakresie zmienności 1% przy stężeniu suchej biomasy 4 g L-1<...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Do pomiaru dynamiki morfologicznej grzybów, mikroalg i komórek drożdży wykorzystano ISM w postaci przedstawionej tutaj z tymi samymi lub bardzo podobnymi urządzeniami, co umożliwiło określenie aktywności wzrostu, a w przypadku glonów akumulacji produktu wewnątrzkomórkowego. Czujnik nie ma ruchomych części i może być bezpośrednio stosowany w każdym standardowym bioreaktorze zbiornikowym z mieszadłem, zarówno przez standardowy port, jak i w sterylizowalnym obejściu. Ponieważ drożdże są znacznie mniejsze niż glony, zmniejsz...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do zadeklarowania.
Podziękowania
Autorzy są wdzięczni za wsparcie niemieckiego Federalnego Ministerstwa Gospodarki i Energii w ramach ZIM-Koop, projekt "Inspekcja Smart Process", nr grantu. ZF 4184201CR5.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Czujnik MM 2.1 - MFC | SOPAT GmbH, Niemcy | n.a.Monokularowa | sonda mikroskopowa Inline Wersja 2.1 z komórką przepływową Mirco |
| Wersja oprogramowania v1R.003.0092 | SOPAT GmbH, Niemcy | n.a.Grubościomierz | |
| b.n.Może | to być dowolny dostawca, DIN 2275:2014-03 | ||
| Etanol 70% | n.n.Może | to być dowolny dostawca | |
| Wersja instrukcji SOPAT 2.0.5 | SOPAT GmbH, Niemcy | ||
| Papier do soczewek optycznych | VWR | 470150-460 | |
| Fidżi, ImageJ | open source | ||
| 50 ml stożkowe probówki | Może to być dowolny dostawca |
Bibliografia
- Maaß, S., Rojahn, J., Hänsch, R., Kraume, M. Automated drop detection using image analysis for online particle size monitoring in multiphase systems. Computers & Chemical Engineering. 45, 27-37 (2012).
- Lemoine, A., Delvigne, F., Bockisch, A., Neubauer, P., Junne, S. Tools for the determination of population heterogeneity caused by inhomogeneous cultivation conditions. Journal of biotechnology. 251, 84-93 (2017).
- Marbà-Ardébol, A. M., Bockisch, A., Neubauer, P., Junne, S. Sterol synthesis and cell size distribution under oscillatory growth conditions in Saccharomyces cerevisiae scale-down cultivations. Yeast. 35 (2), 213-223 (2017).
- Xiao, Y., Bowen, C. H., Liu, D., Zhang, F. Exploiting nongenetic cell-to-cell variation for enhanced biosynthesis. Nature chemical biology. 12 (5), 339-344 (2016).
- Beutel, S., Henkel, S. In situ sensor techniques in modern bioprocess monitoring. Applied microbiology and biotechnology. 91 (6), 1493(2011).
- Belini, V. L., Wiedemann, P., Suhr, H. In situ microscopy: A perspective for industrial bioethanol production monitoring. Journal of microbiological methods. 93 (3), 224-232 (2013).
- Havlik, I., et al. Monitoring of microalgal cultivations with on-line, flow-through microscopy. Algal Research. 2 (3), 253-257 (2013).
- Suhr, H., Herkommer, A. M. In situ microscopy using adjustment-free optics. Journal of biomedical optics. 20 (11), 116007(2015).
- Panckow, R. P., Reinecke, L., Cuellar, M. C., Maaß, S. Photo-Optical In-Situ Measurement of Drop Size Distributions: Applications in Research and Industry. Oil Gas Sci. Technol. - Rev. IFP Energies. 72 (3), 14(2017).
- Marbà-Ardébol, A. -M., Emmerich, J., Neubauer, P., Junne, S. Single-cell-based monitoring of fatty acid accumulation in Crypthecodinium cohnii with three-dimensional holographic and in situ microscopy. Process Biochemistry. 52, 223-232 (2017).
- Porro, D., Vai, M., Vanoni, M., Alberghina, L., Hatzis, C. Analysis and modeling of growing budding yeast populations at the single cell level. Cytometry. Part A : the journal of the International Society for Analytical Cytology. 75 (2), 114-120 (2009).
- Brauer, M. J., et al. Coordination of growth rate, cell cycle, stress response, and metabolic activity in yeast. Molecular biology of the cell. 19 (1), 352-367 (2008).
- Puxbaum, V., Gasser, B., Mattanovich, D. The bud tip is the cellular hot spot of protein secretion in yeasts. Applied microbiology and biotechnology. 100 (18), 8159-8168 (2016).
- Marbà-Ardébol, A. M., Emmerich, J., Neubauer, P., Junne, S. Vol. P2. Prozessmesstechnik. 13. Dresdner Sensor-Symposium 201, Hotel Elbflorenz, Dresden, , 222-225 (2017).
- Marbà-Ardébol, A. -M., Emmerich, J., Muthig, M., Neubauer, P., Junne, S. Real-time monitoring of the budding index in Saccharomyces cerevisiae batch cultivations with in situ microscopy. Microbial cell factories. 17 (1), 73(2018).
- Marquard, D., Schneider-Barthold, C., Düsterloh, S., Scheper, T., Lindner, P. Online monitoring of cell concentration in high cell density Escherichia coli cultivations using in situ Microscopy. Journal of biotechnology. 259, 83-85 (2017).
- Marquard, D., et al. In situ microscopy for online monitoring of cell concentration in Pichia pastoris cultivations. Journal of biotechnology. 234, 90-98 (2016).
- Camisard, V., Brienne, J., Baussart, H., Hammann, J., Suhr, H. Inline characterization of cell concentration and cell volume in agitated bioreactors using in situ microscopy: application to volume variation induced by osmotic stress. Biotechnology and bioengineering. 78 (1), 73-80 (2002).
- Böhm, A., Ücker, A., Jäger, T., Ronneberger, O., Falk, T. ISOODL: Instance segmentation of overlapping biological objects using deep learning. 2018 IEEE 15th International Symposium on Biomedical Imaging, , 1225-1229 (2018).
- Davey, H. M. Life, Death, and In-Between: Meanings and Methods in Microbiology. Applied and environmental microbiology. 77 (16), 5571-5576 (2011).
- Lodolo, E. J., Kock, J. L., Axcell, B. C., Brooks, M. The yeast Saccharomyces cerevisiae-the main character in beer brewing. FEMS yeast research. 8 (7), 1018-1036 (2008).
- Albertin, W., et al. Population size drives industrial Saccharomyces cerevisiae. alcoholic fermentation and is under genetic control. Applied and environmental microbiology. 77 (8), 2772-2784 (2011).
- Gomes, J., Chopda, V. R., Rathore, A. S. Integrating systems analysis and control for implementing process analytical technology in bioprocess development. Journal of Chemical Technology and Biotechnology. 90 (4), 583-589 (2015).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
