Tutaj opisujemy zoptymalizowaną, opartą na Langendorffie procedurę izolacji jednokomórkowych kardiomiocytów przedsionkowych z szczurzego modelu niewydolności serca związanej z zespołem metabolicznym z zachowaną frakcją wyrzutową. Ręczna regulacja ciśnienia śródświetlnego w jamach serca jest wdrażana w celu uzyskania funkcjonalnie nienaruszonych miocytów odpowiednich do badań pobudzenia, skurczu i sprzężenia.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Izolacja kardiomiocytów przedsionkowych od szczurzego modelu niewydolności serca związanej z zespołem metabolicznym z zachowaną frakcją wyrzutową
W tym artykule
Podsumowanie
Streszczenie
W tym artykule opisujemy zoptymalizowaną, opartą na Langendorffie procedurę izolacji jednokomórkowych kardiomiocytów przedsionkowych (ACM) z szczurzego modelu niewydolności serca związanej z zespołem metabolicznym (MetS) z zachowaną frakcją wyrzutową (HFpEF). Częstość występowania HFpEF związanej z MetS rośnie, a kardiomiopatie przedsionkowe związane z przebudową przedsionków i migotaniem przedsionków są klinicznie bardzo istotne, ponieważ przebudowa przedsionków jest niezależnym predyktorem śmiertelności. Badania z izolowanymi kardiomiocytami jednokomórkowymi są często wykorzystywane do potwierdzania i uzupełniania wyników in vivo. Rarefikacja naczyń krwionośnych i zwłóknienie tkanki śródmiąższowej stanowią potencjalnie czynnik ograniczający pomyślną izolację pojedynczych komórek ACM ze zwierzęcych modeli tej choroby.
Rozwiązaliśmy ten problem, wykorzystując urządzenie zdolne do ręcznej regulacji ciśnienia śródświetlnego w jamach serca podczas procedury izolacji, znacznie zwiększając wydajność morfologicznie i funkcjonalnie nienaruszonych ACM. Pozyskane komórki można wykorzystać w wielu różnych eksperymentach, takich jak hodowla komórkowa i funkcjonalne obrazowanie wapnia (tj. wzbudzenie-skurcz-sprzężenie).
Dostarczamy badaczowi protokół krok po kroku, listę zoptymalizowanych rozwiązań, dokładne instrukcje dotyczące przygotowania niezbędnego sprzętu oraz obszerny przewodnik rozwiązywania problemów. Podczas gdy początkowa implementacja procedury może być dość trudna, udana adaptacja pozwoli czytelnikowi na wykonanie najnowocześniejszych izolacji ACM w szczurzym modelu HFpEF związanego z MetS dla szerokiego spektrum eksperymentów.
Wprowadzenie
MetS opisuje grupę czynników ryzyka cukrzycy typu 2 i chorób sercowo-naczyniowych, w tym podwyższone ciśnienie tętnicze krwi, dyslipidemię (podwyższony poziom trójglicerydów i obniżony poziom cholesterolu lipoprotein o dużej gęstości), podwyższony poziom glukozy na czczo i otyłość centralną1. Szacuje się, że rozpowszechnienie MetS na całym świecie wynosi 25–30% i stale rośnie2. HFpEF jest niejednorodnym zespołem klinicznym często związanym z MetS. Remodelacji serca podczas HFpEF i jej poprzedzających faz (tj. choroby nadciśnieniowej serca) towarzyszy również przebudowa przedsionków 3. Zmniejszona funkcja skurczowa i zmiany strukturalne lewego przedsionka są związane ze zwiększoną śmiertelnością, migotaniem przedsionków i nowo wystąpioną niewydolnością serca4. Przebudowa przedsionków charakteryzuje się zmianami w funkcji kanałów jonowych, homeostazieCa2+, strukturze przedsionków, aktywacji fibroblastów i zwłóknieniu tkanek5. Przebudowa lewego przedsionka w HFpEF związana z MetS i leżące u jej podstaw mechanizmy patologiczne są nadal słabo poznane i wymagają dalszych dogłębnych badań. Modele zwierzęce okazały się cennym narzędziem i doprowadziły do wielu postępów w dziedzinie kardiomiopatii przedsionkowych6,7,8,9.
Badania z izolowanymi kardiomiocytami jednokomórkowymi są często wykorzystywane do potwierdzania i uzupełniania wyników in vivo. Izolacja i potencjalna późniejsza hodowla komórkowa pozwalają na badanie szlaków sygnałowych, prądów kanałów jonowych i sprzężenia wzbudzenie-skurcz. W warunkach fizjologicznych kardiomiocyty nie namnażają się. Fuzja między transkrypcyjnymi sekwencjami regulatorowymi przedsionkowego czynnika natriuretycznego i antygenu T dużego antygenu T wirusa małpiego 40 u myszy transgenicznych doprowadziła do stworzenia pierwszych unieśmiertelnionych ACM, nazwanych AT-110. Dalszy rozwój komórek AT-1 doprowadził do powstania komórek HL-1, które nie tylko są szeregowo pasażowane, ale także kurczą się spontanicznie11. Wykazują jednak różnice strukturalne i funkcjonalne w porównaniu ze świeżo wyizolowanymi komórkami, takie jak mniej zorganizowana ultrastruktura, częste występowanie rozwijających się miofibryli 11 oraz prąd wewnętrzny aktywowany hiperpolaryzacją12. Izolacja kardiomiocytów komorowych (VCM) u szczurów i myszy z różnych modeli jest dobrze znana13,14,15,16,17,18,19. Ogólnie rzecz biorąc, wycięte serce jest montowane w aparacie Langendorffa i wstecznie perfundowane za pomocą buforu wolnego od Ca2 + zawierającego enzymy trawienne, takie jak kolagenazy i proteazy. Wapń jest następnie stopniowo wprowadzany do warunków fizjologicznych. Jednakże, mimo że dostępne są protokoły dedykowane izolacji ACM20,21, ze względu na zwiększone zwłóknienie i różnice związane z ciśnieniem, ich przydatność w modelach chorób z przebudową przedsionków jest ograniczona.
W tym artykule zaimplementowaliśmy protokół izolacji jednokomórkowych kardiomiocytów przedsionkowych od zwierząt, które wykazują przebudowę przedsionków (tj. w szczególności dla szczurzego modelu ZFS1 dla HFpEF związanego z MetS)22. Istniejące protokoły izolacji zostały zoptymalizowane i uzupełnione o proste, dostosowane do potrzeb urządzenie do kontroli i modyfikacji ciśnienia śródświetlnego w jamach serca, co doprowadziło do uzyskania wyższych plonów morfologicznie i funkcjonalnie nienaruszonych kardiomiocytów. Poniższy protokół zawiera przewodnik krok po kroku, szczegółowy opis sprzętu wykonanego na zamówienie, listę rozwiązań, a także obszerny przewodnik rozwiązywania problemów.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie eksperymenty zostały zatwierdzone przez lokalną Komisję Etyczną (TVA T0060/15 oraz T0003-15) i przeprowadzone zgodnie z Wytycznymi dotyczącymi opieki i wykorzystania zwierząt laboratoryjnych (National Institute of Health, USA).
UWAGA: Uproszczony schemat procedury przedstawiono na Rysunku 1.
1. Przygotowania wstępne
- Przygotować bufory zgodnie z Tabelą 1.
| Roztwór | PB | CB | DB | SB | S1 | S2 | S3 | NT | |
| Odczynnik (mM) | |||||||||
| NaCl | 135 | 135 | 135 | 135 | 135 | 135 | 135 | 135 | |
| KCl | 4.7 | 4.7 | 4.7 | 4.7 | 4.7 | 4.7 | 4.7 | 4 | |
| KH2PO4 | 0.6 | 0.6 | 0.6 | 0.6 | 0.6 | 0.6 | 0.6 | ||
| Na2optymalizacja hiperparametrów4 | 0.6 | 0.6 | 0.6 | 0.6 | 0.6 | 0.6 | 0.6 | ||
| MgSO₄4 | 1.2 | 1.2 | 1.2 | 1.2 | 1.2 | 1.2 | 1.2 | ||
| MgCl₂ | 1 | ||||||||
| HEPES | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | |
| Tauryna | 30 | 30 | 30 | 30 | 30 | 30 | 30 | ||
| Glukoza | 10 | 10 | 10 | 10 | 10 | 10 | 10 | ||
| BDM | 10 | 10 | 10 | 10 | 10 | 10 | 10 | ||
| CaCl22 | 1 | 0.01 | 0.125 | 0.25 | 0.5 | 1 | |||
| BSA | 150 | 70 | 70 | 70 | |||||
| Oczyszczona mieszanina enzymów (średnia Thermolysin) | 0,195 jednostek Wünscha/ml | ||||||||
| pH skorygowane do | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | |
| pH skorygowano do | 37 °C | 4 °C | 37 °C | 37 °C | 37 °C | 37 °C | 37 °C | 37 °C | |
| pH skorygowane za pomocą | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH |
Tabela 1: Lista buforów. PB: bufor perfuzyjny, który można przechowywać przez 3 dni w temperaturze 4 °C (300 mL na zwierzę). CB: bufor do kaniulacji, który można przechowywać przez 3 dni w temperaturze 4 °C (200 mL na zwierzę). DB: bufor do trawienia, który należy wykorzystać w ciągu dnia (40 mL na zwierzę). SB: bufor zatrzymujący, który należy wykorzystać w ciągu dnia (2 mL na zwierzę). S1: bufor do kroku 1, który należy wykorzystać w ciągu dnia (2 mL na zwierzę). S2: bufor do kroku 2, który należy wykorzystać w ciągu dnia (2 mL na zwierzę). S3: bufor do kroku 3, który należy wykorzystać w ciągu dnia (2 mL na zwierzę). NT: zwykły roztwór Tyrode'a, który należy wykorzystać w ciągu dnia (50 mL na zwierzę).
- Przygotuj aparat Langendorffa (Rysunek 2A).
- Przepłucz układ 100 mL 70% etanolu, a następnie dwukrotnie 100 mL wody destylowanej. Napełnij układ 200 mL buforu perfuzyjnego (PB).
- Ustaw prędkość przepływu pompy perystaltycznej na 3 mL/min.
- Skalibruj temperaturę PB opuszczającego aparat Langendorffa do 39 °C.
- Umieść wykonaną na zamówienie kaniulę [16 G, długość 25 mm, z usuniętą ostrą końcówką (Rysunek 3A)] na górze aparatu Langendorffa i rozpocznij przepływ. Włącz moduł grzewczy i dostosuj jego wartość, aby osiągnąć pożądaną temperaturę PB na końcówce kaniuli. Po zakończeniu kalibracji temperatury przenieś kaniulę do strzykawki używanej do kaniulacji (Rysunek 2B).
- Przygotuj urządzenie do kontroli ciśnienia (Rysunek 3C) obok układu Langendorffa. Zamocuj igłę motylkową na zacisku statywu i przygotuj 3 węzły blokujące.
UWAGA: Aktywność enzymu kolagenazy zmienia się wraz z temperaturą. W dalszej części procedury wymagane będzie monitorowanie temperatury lewego przedsionka, a także jej dynamiczna regulacja.
- Przygotuj sprzęt do wycięcia narządu i kaniulacji zgodnie z Rysunkiem 2B. Napełnij zlewkę, strzykawkę i szalkę Petriego lodowatym buforem do kaniulacji (CB) i przygotuj węzły do kaniulacji.
- Przeprowadź heparynizację szczura, podając 500 I.U. heparyny na 100 g masy ciała szczura w następujący sposób:
- Wlej 2 mL 100% izofluranu do komory indukcyjnej do znieczulania gryzoni. Przenieś 21-tygodniowego otyłego szczura ZFS-1 z klatki do komory indukcyjnej. Poczekaj, aż szczur wejdzie w stan głębokiej narkozy, co objawia się spowolnieniem oddechu do połowy częstotliwości początkowej.
- Wyjmij szczura z komory indukcyjnej. Wstrzyknij 500 I.U. heparyny na 100 g masy ciała szczura do otrzewnej za pomocą strzykawki z heparyną.
- Wróć szczura do klatki i poczekaj, aż się obudzi.
UWAGA: W kroku 1.4 nie ma konieczności zachowania sterylności. Odczekaj 20 min przed przejściem do następnego kroku. Niepełna przeciwkrzepliwość może spowodować krzepnięcie krwi, prowadząc do mikrozawałów, co może istotnie wpłynąć na jakość i wydajność izolowanych kardiomiocytów.
2. Przygotowanie serca
- Wprowadź 2 mL 100% isofluranu do komory indukcyjnej do znieczulania gryzoni. Przenieś 21-tygodniowego otyłego szczura ZFS-1 z klatki do komory indukcyjnej. Pozostaw szczura do momentu wystąpienia głębokiej narkozy, którą sygnalizuje spowolnienie oddechu do połowy częstotliwości początkowej.
- Uśmierć zwierzę poprzez dekapitację za pomocą gilotyny przeznaczonej dla gryzoni. Unieruchom kończyny szczura na powierzchni z pianki polistyrenowej. Za pomocą nożyczek chirurgicznych unieś i usuń skórę pokrywającą wyrostek mieczykowaty. Otwórz otrzewną poniżej klatek piersiowych po obu stronach i odsłoń przeponę.
- Otwórz przeponę, wykonując nacięcie wzdłuż łuku przedniego za pomocą cienkich nożyczek. Przetnij żebra po obu stronach wzdłuż linea mediaclavicularis aż do obojczyka, używając nożyczek chirurgicznych, aby odsłonić śródpiersie in situ.
- Usuń płuca na dystalnych końcach wnęk za pomocą cienkich nożyczek. Wycinij grasicę, aby odsłonić łuk aorty.
- Zaciśnij podstawę serca pęsetą i delikatnie pociągnij w dół w kierunku ogona zwierzęcia. Przetnij aortę, utrzymując naciąg serca, pozostawiając segment aorty o długości 5 mm przytwierdzony do serca. Szybko przenieś serce do 50 mL lodowatego CB w zlewce 50 ml (Ryc. 2B).
UWAGA: Podczas kroków 2.5–3.3 serce znajduje się w warunkach niedokrwiennych. Należy unikać przekroczenia łącznego czasu 3 min dla tych etapów, aby nie uszkodzić kardiomiocytów.
3. Kanulacja
- Odczekać około 10 s, aż serce ostygnie i ustaną skurcze. Przenieść serce do szalki Petriego zawierającej 50 mL świeżego, lodowatego CB. Ostrożnie usunąć tkankę tłuszczową otaczającą aortę za pomocą pincety i nożyczek.
- Wprowadzić specjalnie wykonaną kaniulę (tą samą, która była użyta w kroku 1.2.3), podłączoną do strzykawki 10 mL wypełnionej lodowatym CB, na 3 mm do wnętrza aorty. Przymocować aortę do kaniuli, zawiązując jeden z dwóch węzłów kaniulacyjnych (Rysunek 3B) w zagłębieniu proksymalnie względem końcówki kaniuli.
UWAGA: Należy uważać, aby nie uszkodzić zastawki aortalnej podczas wprowadzania kaniuli. - Delikatnie przepłukać aortę 5 mL lodowatego CB za pomocą strzykawki podłączonej do kaniuli, aż krew przestanie być widoczna w tętnicach wieńcowych. Delikatnie masować lewy przedsionek za pomocą pincety i wstrzyknąć pozostałe 5 mL CB, umożliwiając usunięcie nadmiaru krwi z jamy do szalki Petriego.
- Zawiązać drugi węzeł kaniulacyjny (szew: USP 3/0, jedwab) w zagłębieniu dystalnie względem końcówki kaniuli. Odłączyć kaniulę z przymocowanym sercem od strzykawki. Zamocować kaniulę z przymocowanym sercem do aparatu Langendorffa za pomocą odpowiedniego adaptera.
UWAGA: Niniejszy protokół wykorzystuje podwyższone ciśnienie w jamie komór podczas perfuzji w aparacie Langendorffa. Dodatkowy węzeł kaniulacyjny jest niezbędny do utrzymania tego ciśnienia poprzez zapobieganie antegradownemu wyciekowi buforu przez aortę.
4. Manipulacja ciśnieniem i trawienie
- Uruchom pompę perystaltyczną aparatu Langendorffa, aby rozpocząć perfuzję tkanki serca roztworem PB. Zawiąż podwójny węzeł prosty (szew: USP 3/0, jedwab) u podstawy serca, z wyłączeniem aorty. Powtarzaj ten krok do momentu zauważenia nadmuchania prawego i lewego przedsionka oraz zatoki wieńcowej.
- Nakłuj przedsionek igłą motylkową urządzenia do kontroli ciśnienia (Rysunek 3D) i pozwól przedsionkowi zwiotczeć. Reguluj ciśnienie wewnątrzświatowe przedsionka poprzez zmianę wysokości wężyka motylkowego. Przez resztę procedury utrzymuj przedsionek w stanie lekkiego nadmuchania; monitoruj i dostosowuj go w razie potrzeby.
UWAGA: Ten krok należy wykonać szybko, ponieważ przedłużone nadmuchanie lewego przedsionka doprowadzi do śmierci kardiomiocytów. - Zmierz przybliżoną temperaturę lewego przedsionka, umieszczając sondę temperatury między lewym przedsionkiem a lewą komorą. Odpowiednio dostosuj temperaturę modułu grzewczego Langendorffa, dążąc do uzyskania temperatury lewego przedsionka wynoszącej około 37 °C.
- Prowadź perfuzję serca roztworem PB przez łącznie 3 min.
- Zmień perfuzję na bufor trawienny (DB) na około 14–18 min.
UWAGA: Trawienie jest zakończone, gdy struktura lewego przedsionka zapada się, a tkanka nabiera mlecznej tekstury. - Chwyć przedsionek pęsetą i lekko pociągnij. Usuń lewy przedsionek za pomocą drobnych nożyczek i przenieś go do dużej łódki wagowej zawierającej 2 mL buforu zatrzymującego (SB), całkowicie zanurzając tkankę.
- Pozostałą tkankę serca zutylizuj zgodnie z wytycznymi laboratorium, w którym przeprowadzana jest procedura.
5. Przetwarzanie komórek i readaptacja do wapnia
- Posiekaj tkankę przedsionkową na małe kawałki o wymiarach około 2 mm x 2 mm za pomocą precyzyjnych nożyczek.
- Rozprosz tkankę poprzez delikatne zasysanie i wypuszczanie fragmentów tkanki za pomocą pipety transferowej. Kontynuuj tę procedurę przez około 5 min, aż do zaobserwowania makroskopowej dysocjacji tkanki.
UWAGA: Unikaj powstawania pęcherzyków powietrza podczas tego etapu, ponieważ wystawienie komórek na działanie powietrza doprowadzi do śmierci kardiomiocytów. - Przenieś komórki do stożkowej probówki 15 mL. Pozostaw fragmenty tkanki do osadzenia się przez 30 s. Przenieś nadsącz do drugiej stożkowej probówki 15 mL. Pozostaw komórki do osadzenia się przez 15 min.
- Usuń i odrzuć nadsącz. Dodaj 2 mL buforu z etapu 1 (patrz Tabela 1). Pozostaw kardiomiocyty do osadzenia się przez 10 min.
UWAGA: Odrzucony nadsącz zawiera również fibroblasty i komórki śródbłonka. W przypadku chęci wykorzystania tych komórek do eksperymentów należy zapoznać się z innymi protokołami14,23. Osad będzie zawierał głównie kardiomiocyty przedsionkowe, co można potwierdzić za pomocą mikroskopii świetlnej. Charakterystyka mikroskopowa kardiomiocytów przedsionkowych jest omówiona w kroku 6.1. - Usuń i odrzuć nadsącz. Dodaj 2 mL buforu z etapu 2. Pozostaw kardiomiocyty do osadzenia się przez 10 min.
- Usuń i odrzuć nadsącz. Dodaj 2 mL buforu z etapu 3. Pozostaw kardiomiocyty do osadzenia się przez 10 min.
- Usuń i odrzuć nadsącz. Dodaj 250 µL standardowego roztworu Tyrode'a (NT) zawierającego 1 mM Ca2+.
- Przenieś 50 µL standardowego roztworu Tyrode'a zawierającego kardiomiocyty przedsionkowe na szkiełko z dnem szklanym, które zostało pokryte 25% lamininą (i pozostawione do wyschnięcia). Pozostaw kardiomiocyty do osadzenia się przez 10 min.
- Napełnij szkiełko z dnem szklanym 500 µL NT zawierającego 1 mM CaCl2.
6. Ocena funkcjonalna sprzężenia wzbudzenie-skurcz
- Oceń morfologię i żywotność komórek pod mikroskopem świetlnym przy powiększeniu 20X (Rysunek 4A i 4B). Wybierz losowo około 100 komórek i zaklasyfikuj je jako żywe lub nieżywe, aby oszacować żywotność procedury izolacji komórek.
UWAGA: Komórki żywe charakteryzują się symetryczną strukturą sarkomerów, brakiem pęcherzyków błonowych oraz kształtem pręcikowatym. - Obciąż komórki fluorescencyjnym barwnikiem wrażliwym na Ca2+ w ciągu 20 min od zakończenia kroku 5.9.
- Dodaj 10 µM Fluo4-AM do 500 µL NT. Usuń nadsącz z szalki z szklanym dnem (z kroku 5.9). Dodaj NT zawierający Fluo4-AM do szalki z szklanym dnem. Inkubuj mieszaninę przez 20 min w temperaturze pokojowej. Usuń i odrzuć nadsącz. Przemyj próbkę 2x, używając 500 µL NT.
- Wizualizuj pobudzenie Ca2+ za pomocą mikroskopu konfokalnego w następujący sposób.
- Przenieś szalkę z szklanym dnem do mikroskopu konfokalnego i wizualizuj pobudzenie Ca2+ za pomocą mikroskopu konfokalnego (intensywność lasera 5,8%, wzbudzenie 488 nm, emisja 515 nm) przy powiększeniu 40X.
- Perfunduj komórki NT podgrzanym do 37 °C za pomocą odpowiedniego urządzenia do superfuzji. Alternatywnie utrzymuj komórki w cieple, korzystając z zamontowanego na mikroskopie inkubatora grzewczego.
- Stymuluj kardiomiocyty w polu elektrycznym za pomocą dostępnych komercyjnie elektrod stymulujących zamontowanych na mikroskopie z częstotliwością 1 Hz i prądem elektrycznym 24 A. Odczekaj 1 min, aby komórki osiągnęły stan stacjonarny gospodarki Ca2+.
- Ustaw linię skanowania równolegle do osi poprzecznej, w połowie drogi między jądrem a krawędzią losowo wybranej komórki kurczącej się makroskopowo. Pozyskaj obrazy skanowania liniowego poprzez powtarzalne skanowanie.
- Użyj ogólnodostępnego oprogramowania do obrazowania, aby oszacować intensywność sygnału bezpośrednio przed stymulacją elektryczną (F0) w całej komórce. Wykreśl intensywność sygnału w całej komórce w trakcie jednego cyklu stymulacji (F). Podziel (F) przez (F0), aby otrzymać odpowiedni przejściowy wzrost Ca2+.
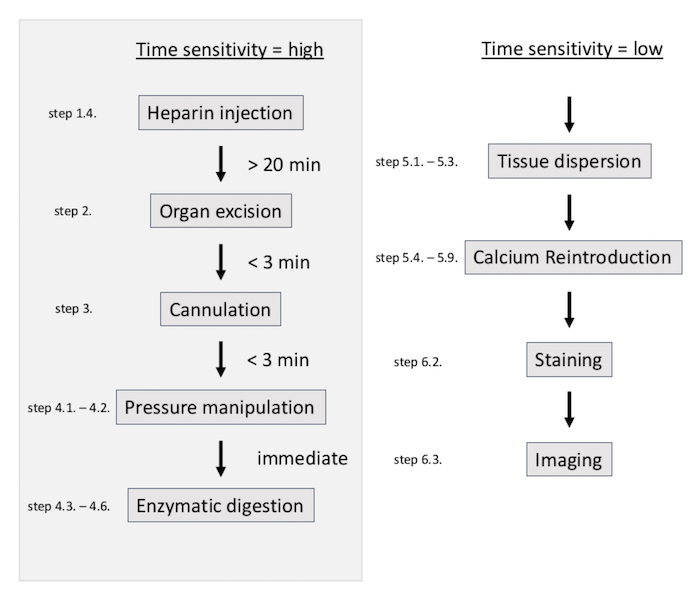
Rycina 1: Uproszczony schemat procedury izolacji. Procedura jest ściśle uzależniona od czasu aż do momentu zakończenia trawienia enzymatycznego miocytów. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
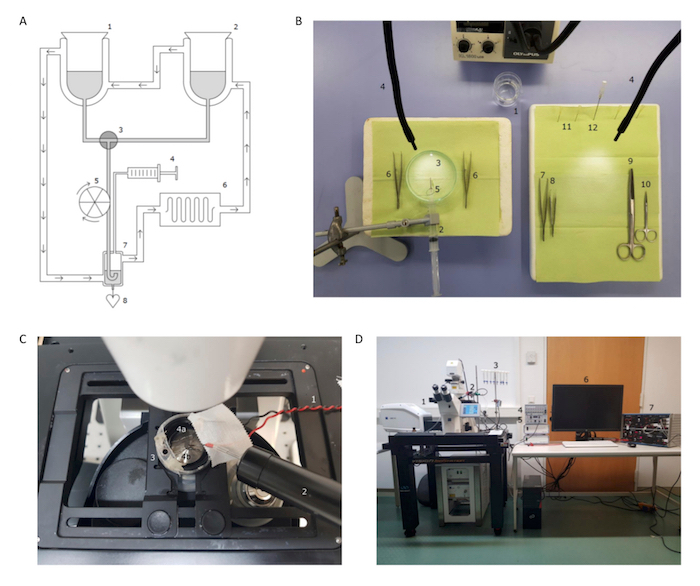
Rycina 2: Przygotowanie sprzętu przed izolacją. (A) Ten panel przedstawia własnoręcznie wykonany aparat Langendorffa: (1) naczynie reakcyjne z płaszczem grzewczym z PB; (2) naczynie reakcyjne z płaszczem grzewczym z CB; (3) kran trójdrożny; (4) strzykawka; (5) pompa perystaltyczna; (6) grzałka zanurzeniowa; (7) pułapka pęcherzykowa z płaszczem grzewczym; oraz (8) kaniula i serce. (B) Ten panel przedstawia układ do kaniulacji i wycięcia organu dla zoptymalizowanego przepływu pracy: (1) zlewka 100 mL z 50 mL lodowatego CB; (2) strzykawka 10 mL z lodowatym CB; (3) szalka Petriego z lodowatym CB; (4) źródło światła; (5) kaniula wykonana na zamówienie z węzłem do kaniulacji (patrz również Rycina 3A i 3B); (6) precyzyjna pęseta zakrzywiona; (7) pęseta anatomiczna; (8) precyzyjna pęseta, wygięta pod kątem 45°; (9) nożyczki chirurgiczne do brzucha; (10) precyzyjne nożyczki chirurgiczne; (11) 4 igły 30 G; oraz (12) igła 15 G. (C) Ten panel przedstawia sprzęt zamontowany na mikroskopie do obrazowania konfokalnego: (1) elektrody stymulatora elektrycznego; (2) pióro do superfuzji; (3) szalka z dna szklanego z ACMs; oraz (4) zanurzone platynowe elektrody stymulatora elektrycznego. (D) Ten panel przedstawia układ mikroskopowy do obrazowania konfokalnego: (1) mikroskop konfokalny; (2) pióro do superfuzji; (3) zbiornik buforu do superfuzji; (4) regulator przepływu superfuzji; (5) moduł grzewczy superfuzji; (6) stacja robocza komputera; oraz (7) stymulator elektryczny. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.

Rysunek 3: Specjalistyczny sprzęt. (A) Ten panel przedstawia zmodyfikowaną kaniulę 15 G z złączem Luer lock. Strzałki wskazują dwa wgłębienia dla węzłów kaniulacyjnych. (B) Są to węzły kaniulacyjne, dwa podwójne węzły nadgarstkowe umieszczone jeden na drugim w celu szybkiego zaciśnięcia. Strzałki wskazują, gdzie i w jakiej kolejności należy zaciśnąć węzeł. (C) Ten panel przedstawia zmontowane urządzenie do kontroli ciśnienia. Igła motylkowa 21 G jest przymocowana do zacisku trójnogu. Wąż jest utrzymywany na tej samej wysokości co igła. Nakrętka jest otwarta. Wysokość węża motylkowego może być zmieniana zgodnie ze strzałkami w celu zmiany ciśnienia w świetle lewego przedsionka. (D) Lewy przedsionek zostaje nakłuty urządzeniem do kontroli ciśnienia. Zdjęcie przedstawia idealnie nadmuchany lewy przedsionek. Elipsa zaznacza miejsce umieszczenia węzła nadgarstkowego. (E) Lewy przedsionek zostaje nakłuty urządzeniem do kontroli ciśnienia. Zdjęcie przedstawia nadmiernie nadmuchany lewy przedsionek, co spowoduje niższą wydajność żywotnych ACM. Elipsa zaznacza miejsce umieszczenia węzła nadgarstkowego. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
W wieku 21 tygodni, po readaptacji do wapnia (krok 5.4–5.7), metodą tą można wyizolować 60–90% żywotnych ACM (oszacowanych zgodnie z opisem w kroku 6.1) od otyłych szczurów ZSF-1 (Rysunek 4A). U szczurów ACM charakteryzują się innym i bardziej heterogennym fenotypem w porównaniu do VCM24,25. Rysunek 4B przedstawia pojedynczy ACM z zachowanymi błonami i strukturą sarkomeró...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Tutaj po raz pierwszy opisaliśmy protokół izolacji jednokomórkowych ACM od szczurzego modelu HFpEF związanego z MetS, który wykazuje wyraźną przebudowę przedsionków22. Zabieg jest wyjątkowo trudny, ponieważ nadmiar tkanki tłuszczowej może sprawić, że przygotowanie chirurgiczne, a także kaniulacja aorty, będą coraz trudniejsze. Przewodnik rozwiązywania problemów zamieszczony w tabeli 2 zawiera najczęstsze problemy związane z procedurą izolacji.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
To badanie było wspierane przez DZHK (Niemieckie Centrum Badań Sercowo-Naczyniowych, D.B.), EKFS (Else-Kröner-Fresenius Stiftung, F.H.) oraz przez BMBF (Niemieckie Ministerstwo Edukacji i Badań), a także program dla naukowców klinicznych BIH-Charité finansowany przez Charité - Universitätsmedizin Berlin i Berliński Instytut Zdrowia (F.H.).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| ZSF-1 Otyły szczur | Charles River Laboratories, Inc. | 21 tygodni | |
| Nożyczki do cienkiej tęczówki | Fine Science Tools GmbH | 14094-11 | |
| Nożyczki chirurgiczne | Fine Science Tools GmbH | 14001-18 | |
| Kleszczyki do mikro opatrunków (zakrzywione, ząbkowane) | Aesculap, Inc. | BD312R | |
| Kleszczyki do tkanek (proste, 1 x 2 zęby) | Aesculap, Inc. | BD537R | |
| Kleszcze do wiązania (kątowe) | Aesculap, Inc. | MA624R | |
| Gilotyna do gryzoni i małych zwierząt | Kent Scientific Corp. | DCAP | |
| 3,0 l | Kent Scientific Corp. | SOMNO-0730 | |
| Zestaw do naparu ze skrzydeł motyla 21 g | Hospira, Inc. | ||
| Abbocath 16 G | Hospira, Inc. | 0G7149702 | |
| Igła podskórna Microlance | Becton Dickinson GmbH | 301300 | zmodyfikuj igłę do wykonania kaniuli |
| Braun Oryginalna strzykawka do perfusora 50 ml | B. Braun Melsungen AG | 8728810F | |
| Strzykawka Braun Inject Solo 10 ml | B. Zlewka do 2057926 | ||
| 50ml | Duran Group (DWK Life Sciences GmbH) | 21 106 17 | |
| Szalka Petriego Duroplan (100 x 20 mm) | Duran Group (DWK Life Sciences GmbH) | 21 755 48 | |
| Seraflex Szew USP 3/0 | SERAG-WIESSNER GmbH & Co. KG | IC208000 | |
| Jednorazowe kwadratowe łodzie wagowe VWR 100ml | VWR, Inc. | 10803-148 | |
| styropianowa | |||
| Chlorek sodu | Sigma-Aldrich, Inc. | 71380 | |
| Chlorek potasu | Sigma-Aldrich, Inc. | P4504 | |
| Fosforan potasu jednozasadowy | Sigma-Aldrich, Inc. | P5379 | |
| Fosforan sodu dwuzasadowy | Sigma-Aldrich, Inc. | S0876 | |
| Siarczan Magensium siedmiowodny | Sigma-Aldrich, Inc. | ||
| Chlorek magensium | Sigma-Aldrich, Inc. | M8266 | |
| HEPES | Sigma-Aldrich, Inc. | H3375 | |
| Tauryna | Sigma-Aldrich, Inc. | T0625 | |
| Glukoza | Sigma-Aldrich, Inc. | G7528 | |
| Monoksym 2,3-butanodionu | Sigma-Aldrich, Inc. | B0753 | |
| Roztwór chlorku wapnia (1 M) | Sigma-Aldrich, Inc. | 21115 | |
| Albumina surowicy bydlęcej | Sigma-Aldrich, Inc. | A9647 | |
| Liberase | Roche (Sigma-Aldrich, Inc.) | LIBTM-RO | |
| Heparin | Rotexmedica GmbH | 3862357 | |
| Forene (Isoflurane) | Abbvie Deutschland GmbH & Co. KG | 10182054 | |
| Laminin z błony podstawnej mięsaka myszy Engelbreth-Holm-Swarm | Sigma-Aldrich, Inc. | L2020 | |
| Naczynie ze szklanym dnem WillCo 500µ l 0,005 mm | WillCo Wells BV | HBST-3522 | |
| Fluo4 AM | Invitrogen (Thermo Fisher Scientific, Inc.) | F14201 | 5 i mikro; M przez 20 minut w RT |
| Di-8-ANNEPS | Invitrogen (Thermo Fisher Scientific, Inc.) | D3167 | 10&mikro; M przez 45 min w 37& C |
| Mitotracker RED FM | Invitrogen (Thermo Fisher Scientific, Inc.) | M22425 | 20nM przez 30 min przy 37& C |
| Naczynie reakcyjne z płaszczem 500 ml | Gebr. Rettberg GmbH | 107024414 | |
| Naczynie reakcyjne z płaszczem 1000 ml | Gebr. Rettberg GmbH | 107025414 | |
| Pułapka bąbelkowa z płaszczem | Gebr. Rettberg GmbH | 134720001 | |
| Cyrkulator zanurzeniowy grzewczy ED | Julabo GmbH | 9116000 | |
| Pompa perystaltyczna Reglo Digital MS-2/6 | Ismatec (Cole-Parmer Gmbh) | Termometr ISM 831 | |
| Voltcraft 302 K/J | Conrad Electronic SE | 030300546 | |
| Rurka | |||
| LSM 700 | mikroskop Carl Zeiss, Inc. | ||
| Oprogramowanie do obrazowania ZEN 2.3 | Carl Zeiss, Inc. | Numer katalogowy: 410135-1011-240 | |
| Jednokanałowy sterownik grzałki TC-324B | Warner Instruments, LLC | 64-2400 | |
| 8-kanałowy system perfuzyjny | Warner Instruments, LLC | 64-0185 | |
| 8-kanałowe wielokanałowe grzejniki liniowe | Warner Instruments, LLC | 64-0105 |
Bibliografia
- Alberti, K. G., et al. Harmonizing the metabolic syndrome: a joint interim statement of the International Diabetes Federation Task Force on Epidemiology and Prevention; National Heart, Lung, and Blood Institute; American Heart Association; World Heart Federation; International Atherosclerosis Society; and International Association for the Study of Obesity. Circulation. 120 (16), 1640-1645 (2009).
- International Diabetes Federation Task Force on Epidemiology and Prevention. IDF Consensus Worldwide Definition of the Metabolic Syndrome. , Available from: https://www.idf.org/e-library/consensus-statements/60-idfconsensus-worldwide-definitionof-the-metabolic-syndrome.html (2006).
- Melenovsky, V., et al. Left atrial remodeling and function in advanced heart failure with preserved or reduced ejection fraction. Circulation: Heart Failure. 8 (2), 295-303 (2015).
- Goette, A., et al. EHRA/HRS/APHRS/SOLAECE expert consensus on atrial cardiomyopathies: definition, characterization, and clinical implication. EP Europace. 18 (10), 1455-1490 (2016).
- Schotten, U., Verheule, S., Kirchhof, P., Goette, A. Pathophysiological mechanisms of atrial fibrillation: a translational appraisal. Physiological Reviews. 91 (1), 265-325 (2011).
- Hohendanner, F., DeSantiago, J., Heinzel, F. R., Blatter, L. A. Dyssynchronous calcium removal in heart failure-induced atrial remodeling. American Journal of Physiology-Heart and Circulatory Physiology. 311 (6), H1352-H1359 (2016).
- Hohendanner, F., et al. Inositol-1,4,5-trisphosphate induced Ca2+ release and excitation-contraction coupling in atrial myocytes from normal and failing hearts. The Journal of Physiology. 593 (6), 1459-1477 (2015).
- Tada, Y., et al. Role of mineralocorticoid receptor on experimental cerebral aneurysms in rats. Hypertension. 54 (3), 552-557 (2009).
- Iwasaki, Y. K., et al. Atrial fibrillation promotion with long-term repetitive obstructive sleep apnea in a rat model. Journal of the American College of Cardiology. 64 (19), 2013-2023 (2014).
- Field, L. J. Atrial natriuretic factor-SV40 T antigen transgenes produce tumors and cardiac arrhythmias in mice. Science. 239 (4843), 1029-1033 (1988).
- Claycomb, W. C., et al. HL-1 cells: a cardiac muscle cell line that contracts and retains phenotypic characteristics of the adult cardiomyocyte. Proceedings of the National Academy of Sciences of the United States of America. 95 (6), 2979-2984 (1998).
- Sartiani, L., Bochet, P., Cerbai, E., Mugelli, A., Fischmeister, R. Functional expression of the hyperpolarization-activated, non-selective cation current I(f) in immortalized HL-1 cardiomyocytes. The Journal of Physiology. 545 (Pt 1), 81-92 (2002).
- Louch, W. E., Sheehan, K. A., Wolska, B. M. Methods in cardiomyocyte isolation, culture, and gene transfer. Journal of Molecular and Cellular Cardiology. 51 (3), 288-298 (2011).
- Gunduz, D., Hamm, C. W., Aslam, M. Simultaneous Isolation of High Quality Cardiomyocytes, Endothelial Cells, and Fibroblasts from an Adult Rat Heart. Journal of Visualized Experiments. (123), e55601(2017).
- Li, D., Wu, J., Bai, Y., Zhao, X., Liu, L. Isolation and culture of adult mouse cardiomyocytes for cell signaling and in vitro cardiac hypertrophy. Journal of Visualized Experiments. (87), e51357(2014).
- Graham, E. L., et al. Isolation, culture, and functional characterization of adult mouse cardiomyoctyes. Journal of Visualized Experiments. (79), e50289(2013).
- Roth, G. M., Bader, D. M., Pfaltzgraff, E. R. Isolation and physiological analysis of mouse cardiomyocytes. Journal of Visualized Experiments. (91), e51109(2014).
- Thum, T., Borlak, J. Isolation and cultivation of Ca2+ tolerant cardiomyocytes from the adult rat: improvements and applications. Xenobiotica. 30 (11), 1063-1077 (2000).
- Egorova, M. V., Afanas'ev, S. A., Popov, S. V. A simple method for isolation of cardiomyocytes from adult rat heart. Bulletin of Experimental Biology and Medicine. 140 (3), 370-373 (2005).
- Kohncke, C., et al. Isolation and Kv channel recordings in murine atrial and ventricular cardiomyocytes. Journal of Visualized Experiments. (73), e50145(2013).
- Wagner, E., Brandenburg, S., Kohl, T., Lehnart, S. E. Analysis of tubular membrane networks in cardiac myocytes from atria and ventricles. Journal of Visualized Experiments. (92), e51823(2014).
- Hohendanner, F., et al. Cellular mechanisms of metabolic syndrome-related atrial decompensation in a rat model of HFpEF. Journal of Molecular and Cellular Cardiology. 115, 10-19 (2017).
- Seluanov, A., Vaidya, A., Gorbunova, V. Establishing primary adult fibroblast cultures from rodents. Journal of Visualized Experiments. (44), e2033(2010).
- Bootman, M. D., Higazi, D. R., Coombes, S., Roderick, H. L. Calcium signalling during excitation-contraction coupling in mammalian atrial myocytes. Journal of Cell Science. 119 (Pt 19), 3915-3925 (2006).
- Smyrnias, I., et al. Comparison of the T-tubule system in adult rat ventricular and atrial myocytes, and its role in excitation-contraction coupling and inotropic stimulation. Cell Calcium. 47 (3), 210-223 (2010).
- Pritchett, A. M., et al. Diastolic dysfunction and left atrial volume: a population-based study. Journal of the American College of Cardiology. 45 (1), 87-92 (2005).
- Linz, D., et al. Cathepsin A mediates susceptibility to atrial tachyarrhythmia and impairment of atrial emptying function in Zucker diabetic fatty rats. Cardiovascular Research. 110 (3), 371-380 (2016).
- Ackers-Johnson, M., et al. A Simplified, Langendorff-Free Method for Concomitant Isolation of Viable Cardiac Myocytes and Nonmyocytes From the Adult Mouse Heart. Circulation Research. 119 (8), 909-920 (2016).
- Ramanathan, T., Skinner, H. Coronary blood flow. Continuing Education in Anaesthesia Critical Care & Pain. 5 (2), 61-64 (2005).
- Bond, M. D., Van Wart, H. E. Characterization of the individual collagenases from Clostridium histolyticum. Biochemistry. 23 (13), 3085-3091 (1984).
- Deel, E. D., et al. In vitro model to study the effects of matrix stiffening on Ca(2+) handling and myofilament function in isolated adult rat cardiomyocytes. The Journal of Physiology. 595 (14), 4597-4610 (2017).
- Wuensch, E., Heidrich, H. G. [On the Quantitative Determination of Collagenase]. Hoppe-Seyler's Zeitschrift für physiologische Chemie. 333, 149-151 (1963).
- Conceicao, G., Heinonen, I., Lourenco, A. P., Duncker, D. J., Falcao-Pires, I. Animal models of heart failure with preserved ejection fraction. Netherlands Heart Journal. 24 (4), 275-286 (2016).
- Horgan, S., Watson, C., Glezeva, N., Baugh, J. Murine models of diastolic dysfunction and heart failure with preserved ejection fraction. Journal of Cardiac Failure. 20 (12), 984-995 (2014).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
