Przedstawiamy protokół do optycznego wykrywania pojedynczych, nieznakowanych białek w czasie rzeczywistym, gdy są wydzielane z żywych komórek. Opiera się to na mikroskopii rozpraszania interferometrycznego (iSCAT), która może być stosowana do wielu różnych systemów i konfiguracji biologicznych.
Artykuł metodologiczny
Bezznacznikowe obrazowanie pojedynczych białek wydzielanych z żywych komórek za pomocą mikroskopii iSCAT
W tym artykule
Podsumowanie
Streszczenie
Prezentujemy mikroskopię rozpraszania interferometrycznego (iSCAT), metodę zdolną do wykrywania pojedynczych, nieoznakowanych białek wydzielanych z pojedynczych żywych komórek w czasie rzeczywistym. W tym protokole omówiono podstawowe kroki do realizacji mikroskopu iSCAT i uzupełnienia go o dodatkowe kanały obrazowania w celu monitorowania żywotności badanej komórki. Następnie używamy metody do wykrywania w czasie rzeczywistym pojedynczych białek wydzielanych przez żywą komórkę, co demonstrujemy na unieśmiertelnionej linii komórek B (Laz388). Omówiono niezbędne kroki dotyczące przygotowania mikroskopu i próbki oraz analizy zarejestrowanych danych. Protokół wideo pokazuje, że mikroskopia iSCAT oferuje prostą metodę badania wydzielania na poziomie pojedynczej cząsteczki.
Wprowadzenie
Białka wydzielnicze odgrywają istotną rolę w różnych procesach fizjologicznych1. Z tego powodu są one rutynowo badane jako zbiorowy zespół (proteomika) lub jako pojedyncze jednostki2,3. Proteomika tradycyjnie bada cały zestaw białek występujących w danym systemie biologicznym za pomocą np. testów immunoenzymatycznych (ELISA), cytometrii przepływowej lub spektrometrii mas4,5,6. Z kolei pojedyncze białka są zazwyczaj wykrywane przy użyciu różnych technik opartych na fluorescencji7,8, plazmonice9,10 lub kriomikroskopii elektronowej1. Wszystkie te techniki wykorzystują złożone instrumenty, znakowanie lub oba te elementy i często nie dostarczają informacji o dynamice, gdyż przekazują jedynie długoterminowe informacje na temat badanego systemu.
W niniejszej pracy wykorzystujemy mikroskopię iSCAT12,13 do detekcji pojedynczych białek wydzielniczych z rozdzielczością czasową poniżej jednej sekundy14. Co istotne, technika ta wykrywa słaby sygnał rozproszony właściwy dla każdego białka12,14. Ilość światła rozpraszanego przez małą bi cząsteczkę jest proporcjonalna do jej polaryzowalności. Przy założeniu, że kształt białka można przybliżyć jako efektywną sferę rozpraszającą14,15,16, a różne białka mają bardzo zbliżone współczynniki załamania światła, zmierzony sygnał można bezpośrednio powiązać z masą cząsteczkową (MW) białka. Empiryczna kalibracja kontrastu iSCAT w stosunku do masy cząsteczkowej za pomocą pomiarów referencyjnych pozwala odróżnić białka o różnych rozmiarach. Eksperymenty iSCAT można łatwo uzupełnić o mikroskopię fluorescencyjną17,18, odczynniki immunosorpcyjne, a także znaczniki fluorescencyjne lub rozpraszające, co umożliwia specyficzne wykrywanie dowolnego białka będącego przedmiotem zainteresowania14,17,19.
W zasadzie iSCAT działa poprzez wzmacnianie słabego światła rozproszonego przez białko za pomocą mieszania interferometrycznego z wtórną falą odniesienia. Wykryta intensywność ( ) w mikroskopie iSCAT jest opisane przez
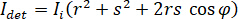
gdzie  jest intensywność padania,
 jest współczynnikiem wkładu fali odniesienia,
 oznacza siłę rozpraszania badanego nanobiektu i
 jest przesunięciem fazowym pomiędzy falami rozproszoną a referencyjną14W zależności od przypadku, jako falę odniesienia wykorzystuje się zazwyczaj światło przechodzące lub światło odbite.
 uwzględnia odpowiednio transmitancję lub refleksyjność komory próbki. Termin
 jest proporcjonalne do przekroju czynnego rozpraszania białka i można go pominąć w porównaniu z wyrazem mieszanym. Zatem, przyjmując
 w przypadku całkowitej interferencji destruktywnej wykrywane światło opisuje wzór
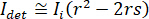 gdzie
 czy natężenie referencyjne i
 jest natężeniem interferencji.
Mikroskopia iSCAT stanowi doskonałą metodę badania procesów biologicznych na poziomie pojedynczych cząsteczek. Jako przykład badamy komórki Laz38 — linię komórkową limfocytów B przekształconych przez wirusa Epsteina-Barra (EBV)20,21 — podczas wydzielania przez nie białek, takich jak przeciwciała IgG16. Metoda ta jest jednak uniwersalna i może być stosowana w wielu innych układach biologicznych. iSCAT jest z natury niespecyficzny i pozwala na detekcję dowolnego białka lub nanocząstki, ale może zostać rozszerzony o powszechne metody funkcjonalizacji powierzchni w celu specyficznej lub multipleksowej detekcji. Prostota i możliwość połączenia z innymi technikami optycznymi, takimi jak mikroskopia fluorescencyjna, czynią iSCAT cennym narzędziem uzupełniającym w biologii komórki.
Protokół
OSTEŻENIE: Przed użyciem jakichkolwiek odczynników należy zapoznać się z odpowiednimi kartami charakterystyki materiałów (MSDS), przestrzegać wszelkich właściwych zasad bezpieczeństwa i w razie potrzeby stosować środki ochrony osobistej (okulary ochronne do laserów, ochronę oczu, rękawiczki, fartuchy laboratoryjne).
1. Budowa mikroskopu iSCAT16,18
UWAGA: Mikroskop iSCAT zazwyczaj składa się ze zmodyfikowanej konfiguracji mikroskopu odwróconego. W skrócie, laser jest ogniskowany na tylnej płaszczyźnie ogniskowej obiektywu o wysokiej aperturze numerycznej (NA), a soczewka obrazująca służy do ogniskowania światła rozproszonego wstecznie przez cząstkę na matrycę kamery. Generalnie, ten mikroskop szerokopolowy może zostać zbudowany od podstaw lub na bazie istniejącego mikroskopu odwróconego. Niniejszy protokół obejmuje kluczowe kroki niezbędne do realizacji tej konfiguracji, przy czym możliwe są zmiany w zastosowanym sprzęcie. Bardziej szczegółowy opis montażu mikroskopu iSCAT można znaleźć w pracy Arroyo et al.18.
OSTRZEŻENIE: Mikroskop iSCAT wykorzystuje źródło światła laserowego klasy IIIB do IV. Podczas montażu i ustawiania optyki mikroskopu niezbędna jest odpowiednia ochrona wzroku. Podczas montażu mikroskopu należy upewnić się, że droga wiązki laserowej pozostaje prosta i nie ulega odchyleniu podczas dodawania nowych komponentów optycznych.
- Skonfiguruj tor oświetlenia mikroskopu.
- Wykorzystując tłumiony stół optyczny i sztywny blok metalowy, zbuduj stoły obiektowe mikroskopu18, który zawiera obiektyw o wysokiej aperturze numerycznej (NA) (10X/1,46 NA) oraz jednostkę translacyjną umożliwiającą boczny przesuw próbki, a także zmianę pozycji ogniskowania obiektywu.
UWAGA: Praca mikroskopu iSCAT na granicy detekcji pojedynczych białek jest wysoce podatna na wibracje zewnętrzne. W celu ograniczenia akustycznych wzbudzeń próbki, które w przeciwnym razie naruszyłyby stabilność ogniskową i boczną, zaleca się zastosowanie centrosymetrycznego stolika piezoelektrycznego podtrzymującego próbkę z każdej strony. Rysunek 1 przedstawia odpowiedni stół obiektowy, w tym jednostkę translacyjną piezoelektryczną i obiektyw. Ponadto zaleca się stosowanie masywnych i stabilnych uchwytów dla wszystkich komponentów optycznych omówionych w następnych krokach. Takie komponenty są łatwo dostępne u komercyjnych dostawców optyki. - Użyj soczewki pojedynczej o ogniskowej 50 cm (soczewka szerokopolowa) oraz lustra sprzęgającego 45° (pionowe), aby skupić światło lasera diodowego o długości fali 45 nm na tylnej płaszczyźnie ogniskowej obiektywu. Tworzy to kolimowaną wiązkę w przedniej ogniskowej obiektywu, która stanie się źródłem oświetlenia iSCAT. W razie potrzeby przefiltruj laser przestrzennie przed soczewką 50 cm za pomocą otworu o średnicy 30 µm lub włókna jednomodowego.
- Nanieś kroplę oleju imersyjnego na obiektyw i umieść szklaną szkiełko nakrywkę w płaszczyźnie próbki stołu mikroskopowego. Spowoduje to powstanie wiązki, która odbije się i wróci w dół przez obiektyw obrazujący.
UWAGA: Odbicie powstaje na granicy powietrze-szkło na górnej powierzchni szkiełka nakrywkowego próbki i będzie służyć jako podstawa wiązki referencyjnej iSCAT. Pozostałe zanieczyszczenia lub kurz na powierzchni szkiełka nakrywkowego stworzą punktowe źródła rozproszenia, co pomoże w prawidłowym ustawieniu ostrości obiektywu obrazującego w kolejnych krokach.
OSTRZEŻENIE: Większość światła laserowego przechodzi przez szkiełko nakrywkowe i porusza się pionowo w górę z obiektywu. Umieść nieprzezroczysty dyfuzor zwierciadlany (np. kartonowy arkusz) nad szkiełkiem nakrywkowym, aby zminimalizować ryzyko obrażeń spowodowanych światłem laserowym.
- Wykorzystując tłumiony stół optyczny i sztywny blok metalowy, zbuduj stoły obiektowe mikroskopu18, który zawiera obiektyw o wysokiej aperturze numerycznej (NA) (10X/1,46 NA) oraz jednostkę translacyjną umożliwiającą boczny przesuw próbki, a także zmianę pozycji ogniskowania obiektywu.

Rysunek 1: Stolik próbek iSCAT. Na zdjęciu widoczny jest masywny blok aluminiowy, na którym zamontowano jednostkę translacyjną piezoelektryczną (czarna), a także wycentrowany obiektyw 10x. Trzyosiowa scena piezoelektryczna umożliwia precyzyjne pozycjonowanie próbki w płaszczyźnie ogniskowej obiektywu. Ostrość wstępna jest ustawiana poprzez obracanie gwintowanej rury, na której zamontowany jest obiektyw (nie przedstawiono). Blok jest umieszczony na stole optycznym na czterech stalowych wspornikach nad 45° lustro sprzęgające. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
- Skonfiguruj tor obrazowania mikroskopu.
- Wprowadź dzielnik wiązki z powłoką antyrefleksyjną (AR) (70% odbicia, 30% transmisji) pod kątem 45° względem wiązki padającej, około 10 cm za soczewką szerokokątną. Skieruj powłokę AR w stronę źródła lasera. Pozwala to na transmisję wiązki padającej oraz odbicie wiązki referencyjnej i rozproszonej pod kątem 90° względem wiązki padającej.
UWAGA: Zaleca się stosowanie dzielników wiązki z powłoką AR i/lub klinowych, ponieważ przy użyciu kostek dzielących lub niepowlekanych płaskich dzielników wiązki mogą wystąpić znaczące efekty powidoków i prążków. Więcej szczegółów znajduje się w sekcji Dyskusja. W razie potrzeby niepożądana wiązka odbita od tylnej strony dzielnika wiązki może zostać zablokowana za pomocą przysłony irysowej. - Gruby dzielnik wiązki spowoduje znaczne przesunięcie wiązki, wykonując to w taki sposób, że laser może nie wchodzić już prosto do obiektywu. Jeśli to konieczne, ponownie ustaw tor wiązki laserowej przed dzielnikiem wiązki, aby zapewnić prawidłową propagację przez obiektyw.
UWAGA: Dzielnik wiązki może zostać dodany przed soczewką szerokokątną i ustawieniem stolika mikroskopu (w kroku 1.1.2.), aby wiązka nie została przesunięta w późniejszym etapie. - W tym momencie ustaw ostrość ramienia obrazującego interferometru i upewnij się, że płaszczyzna próbki i kamera są parafokalne. Umieść soczewkę wklęsłą f = -45 cm w pozycji 5 cm za soczewką szerokokątną na drodze wiązki padającej. Spowoduje to, że do tylnej apertury obiektywu wejdzie wiązka kolimowana.
- Umieściwszy ekran w ramieniu odbitym interferometru, przesuń obiektyw w kierunku pionowym, aby znaleźć przybliżoną pozycję ogniskowania. Obiektyw jest ustawiony ostro, gdy wiązka uderzająca w ekran jest kolimowana.
UWAGA: Rysunek 2 przedstawia schemat tego procesu. - Usuń zarówno soczewkę f = -45 cm, jak i ekran po zakończeniu wstępnego ogniskowania.
UWAGA: Zamiast stosować soczewkę o ujemnej ogniskowej, samą soczewkę szerokokątną można umieścić na ruchomym uchwycie i przesunąć z toru wiązki na ten etap. Jednak w celu uzyskania najstabilniejszej konfiguracji mikroskopu zaleca się trzymanie soczewki szerokokątnej w stałej pozycji. - Dodaj drugą soczewkę pojedynczą f = 50 cm, aby skupić światło rozproszone i skolimować światło odbite na sensorze kamery CMOS. Upewnij się, że soczewka jest umieszczona 50 cm od tylnej płaszczyzny ogniskowej obiektywu, tak aby ponownie skolimować wiązkę referencyjną i skupić światło rozproszone.
- Umieść chip CMOS w odległości 50 cm od soczewki f = 50 cm i skieruj wiązkę bezpośrednio na środek chipu.
UWAGA: Do obrazowania zazwyczaj stosuje się następujące parametry. Moc wyjściowa lasera (długość fali 445 nm) jest ustawiona na 10 mW. Otwór i dzielnik wiązki tłumią światło transmitowane, tak że efektywna moc wchodząca do obiektywu wynosi około 9 mW. Średnica wiązki w pozycji próbki wynosi 6 µm. Przy zastosowanej soczewce obrazującej efektywne powiększenie systemu wynosi około 30x. Rozmiar obrazu na chipie CMOS jest ustawiony na 128 × 128 pikseli w obszarze oświetlonym, co daje pole widzenia około 5 × 5 µm2. Rysunek 3 przedstawia schemat w pełni złożonego mikroskopu iSCAT.
- Wprowadź dzielnik wiązki z powłoką antyrefleksyjną (AR) (70% odbicia, 30% transmisji) pod kątem 45° względem wiązki padającej, około 10 cm za soczewką szerokokątną. Skieruj powłokę AR w stronę źródła lasera. Pozwala to na transmisję wiązki padającej oraz odbicie wiązki referencyjnej i rozproszonej pod kątem 90° względem wiązki padającej.

Rycina 2: Wstępne ostrzenie mikroskopu iSCAT. Schemat przedstawia układ optyki, który ułatwia ustawienie ostrości systemu. Tylna strona dzielnika wiązki (BS 70/30) z powłoką antyrefleksyjną (AR) jest zaznaczona na czerwono. Istotne odległości są podane w kolorze zielonym. Oznaczono długości ogniskowych (f) zastosowanych soczewek. Komponenty w niebieskiej przerywanej ramce zostają dodane w krokach 1.2.6 – 1.2.7. Soczewka wklęsła (używana do rekolimacji zbiegającej wiązki iSCAT) oraz ekran zostaną usunięte w późniejszym etapie. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 3: Mikroskop iSCAT. Schemat przedstawia całkowicie zmontowany mikroskop iSCAT. Tylna strona dzielnika wiązki (BS 70/30) z powłoką antyrefleksyjną zaznaczona jest kolorem czerwonym. Ważne odległości podano w kolorze zielonym. Oznaczono ogniskowe (f) zastosowanych soczewek. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Konfiguracja dodatkowych kanałów obrazowania.
UWAGA: Ten etap polega na dodaniu do mikroskopu kolejnej ścieżki obrazowania, która umożliwia obserwację szerokiego obszaru wokół lasera iSCAT za pomocą mikroskopii w jasnym polu oraz monitorowanie żywotności komórek za pomocą mikroskopii fluorescencyjnej.- Sprzężyć wyjście źródła światła LED (około 50 nm < λ < 580 nm) z obiektywem 20X/0.4 NA o długiej odległości roboczej i zainstalować powyżej komory z próbką komponenty mechaniczne umożliwiające ostrzenie oraz lateralne pozycjonowanie wyjścia LED na próbce.
- Upewnić się, że widmo emisji LED obejmuje zakres wzbudzenia markera śmierci komórkowej (jodku propidyny (PI)) i nie zakłóca jego fluorescencji (λ > 600 nm). W razie potrzeby zastosować filtry optyczne.
- Przesunąć górny obiektyw lateralnie tak, aby górny (szerokopolowy) i dolny (iSCAT) obiektywy znajdowały się w jednej linii. Położenie to określa się, umieszczając ekran pod dolnym obiektywem i maksymalizując intensywność przechodzącego światła LED na ekranie. Umieścić dichroiczne lustro krótkoprzepustowe (SPDM) o λ = 50 nm w celu oddzielenia przechodzącego światła LED od ścieżki lasera iSCAT.
- Rozdzielić tę wiązkę na dwa kanały za pomocą dzielnika wiązki (BS) o odbiciowości 8% i przejrzystości 92%. Ścieżka 92% stanowi kanał fluorescencji, a ścieżka 8% jest wykorzystywana do obrazowania w jasnym polu.
- Przenieść obraz z kanału jasnego pola na kamerę CMOS, używając achromatycznej soczewki dubletowej o f = 5 cm.
- Przenieść obraz z kanału fluorescencji na oddzielną kamerę CMOS, używając achromatycznej soczewki dubletowej o f = 5 cm oraz filtra długoprzepustowego o λ = 60 nm w celu zablokowania światła wzbudzenia. Rysunek 4a przedstawia schemat w pełni złożonego mikroskopu wraz ze wszystkimi kanałami obrazowania.
- Sprzężyć wyjście źródła światła LED (około 50 nm < λ < 580 nm) z obiektywem 20X/0.4 NA o długiej odległości roboczej i zainstalować powyżej komory z próbką komponenty mechaniczne umożliwiające ostrzenie oraz lateralne pozycjonowanie wyjścia LED na próbce.
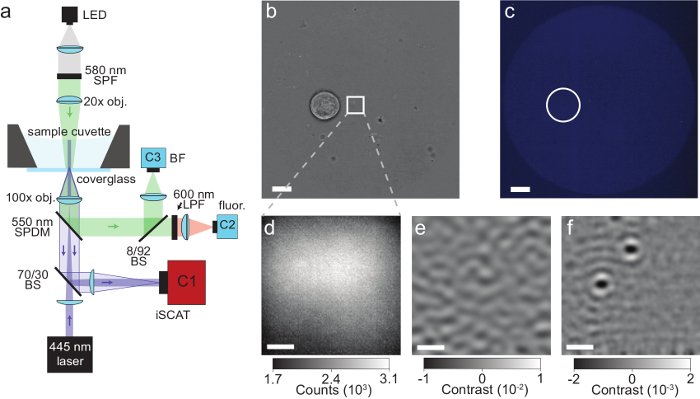
Rysunek 4: Mikroskopia iSCAT białek wydzielanych przez pojedyncze komórki. (a) Schemat mikroskopu opisanego w protokole. Więcej informacji znajduje się w sekcji 1. Skróty: LED, dioda emitująca światło; SPF, filtr krótkoprzepustowy; obj, obiektyw; SPDM, dichroiczne lustro krótkoprzepustowe; BS, dzielnik wiązki; LPF, filtr długoprzepustowy; BF, pole jasne; fluor, fluorescencja; C1-C3, kamera 1-3. (b) Obraz w jasnym polu pojedynczej komórki Laz38 około 4 µm poza polem widzenia iSCAT (oznaczonym białym kwadratem). Obraz wykonany kamerą C3, pasek skali: 10 µm. (c) Obraz fluorescencyjny tego samego obszaru, który przedstawiono na (b), z zaznaczoną białym okręgiem pozycją komórki. Brak fluorescencji wskazuje, że komórka jest żywa. Obraz wykonano kamerą C2, pasek skali: 10 µm. (d) Surowy obraz z kamery iSCAT z 80 µs czas ekspozycji. Obraz wykonany kamerą C1. (e) Obraz iSCAT tego samego obszaru po spatiotemporalnej subtrakcji tła, zgodnie z opisem w sekcji dyskusji. Obraz został zintegrowany z 10 następujących po sobie surowych klatek (d), przy końcowym czasie ekspozycji klatki wynoszącym 40 ms, co ujawnia chropowatość powierzchni szkiełka podstawowego. (f) Odpowiedni różnicowy obraz iSCAT, przedstawiający zdarzenie wiązania 2 białek do szkiełka nakrywkowego. Obraz został utworzony poprzez odjęcie dwóch kolejnych przefiltrowanych obrazów (e). Paski skali na (d), (e) i (f): 1 µmRysunek opracowano na podstawie pracy McDonald, M.P. i wsp.16. Copyright 2018 American Chemical Society. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Konfiguracja komputera i oprogramowania.
- Podłącz wszystkie kamery do komputera. Zainstaluj odpowiednie pakiety sterowników oraz zdobądź lub napisz oprogramowanie do ich sterowania.
UWAGA: Do akwizycji wysokiej prędkości niezbędny jest odpowiedni sprzęt. Zaleca się co najmniej procesor wielordzeniowy, 16 GB pamięci RAM, kartę przechwytującą (frame grabber) oraz dysk SSD do przechowywania danych. - Obserwuj obraz iSCAT na kamerze CMOS i upewnij się, że jest on w ostrości, odnajdując pozostałość cząsteczki kurzu lub zanieczyszczenia na szklanym szkiełku nakrywce. Zweryfikuj, czy obraz cząsteczki jest kołowo symetryczną funkcją rozproszenia punktu (PSF).
UWAGA: Główną przyczyną braku kołowej symetrii PSF jest fakt, że wiązka laserowa nie wchodzi do obiektywu prosto, lecz pod niewielkim kątem w stosunku do osi optycznej. Koryguje się to poprzez regulację kąta i położenia wiązki padającej za pomocą lustra sprzęgającego pod kątem 45°. - Porównaj obrazy z kamery w kanałach pola jasnego oraz fluorescencji. Upewnij się, że oba są w ostrości i wyświetlają ten sam obszar. Zweryfikuj, czy pozycja lasera iSCAT znajduje się mniej więcej w centrum obrazu i zanotuj jej położenie do późniejszego odniesienia. Typowe obrazy z kamer przedstawiono na Rysunku 4b – 4f.
UWAGA: Aby znaleźć punkt ostrości obu kanałów, użyj próbki komórek lub kulek fluorescencyjnych. Tymczasowo usuń filtr długoprzepustowy fluorescencji, aby dostroić system. Ostrość dla konwencjonalnego obrazowania komórek musi być nieco wyższa niż płaszczyzna ogniskowa iSCAT. Aby zrekompensować to bez przesuwania obiektywu, przesuń kamery z ich pozycji w ognisku dwóch odpowiednich soczewek f = 5 cm. - Ustaw niezbędne parametry kamer. Użyj stałej częstotliwości klatek i wyłącz programową wzmacniacz (gain) oraz narzędzia korekcji.
UWAGA: Stosuje się następujące parametry: Kamera iSCAT jest ustawiona na 500 klatek na sekundę (fps) przy czasie ekspozycji 80 µs. Jak wspomniano powyżej, rozmiar obrazu wynosi 128 × 128 pikseli. Obie kamery (pola jasnego i fluorescencji) pracują w pełnym rozmiarze klatki (1280 × 1024 pikseli). Obrazowanie w polu jasnym jest wykonywane z czasem ekspozycji 20 ms. Kamera fluorescencyjna jest ustawiona na czas ekspozycji 750 ms, a 5 kolejnych klatek jest akumulowanych w celu utworzenia jednego końcowego obrazu. Obrazy pola jasnego i fluorescencji są pozyskiwane w stałych odstępach czasu 20 s.
- Podłącz wszystkie kamery do komputera. Zainstaluj odpowiednie pakiety sterowników oraz zdobądź lub napisz oprogramowanie do ich sterowania.
2. Przygotowanie eksperymentu
- Przygotowanie zapasu pożywki do mikroskopii.
- Do 975 mL pożywki RPMI 1640 dodać 25 mL buforu HEPES (1 mol/L), aby otrzymać końcową objętość 1 L roztworu HEPES o stężeniu 25 mmol/L. Alternatywnie można zastosować pożywkę buforową z już zawartym HEPES.
UWAGA: HEPES jest stosowany w celu utrzymania wartości pH pożywki podczas pomiaru w warunkach otoczenia (np. poza inkubatorem i bez stałego dopływu CO2). - Odlać taką ilość roztworu, jaka jest potrzebna do eksperymentu, i doprowadzić ją do temperatury pokojowej. Wystarczające jest 2 mL pożywki. Pozostały roztwór zapasowy przechowywać w temperaturze 4 °C.
- Do 975 mL pożywki RPMI 1640 dodać 25 mL buforu HEPES (1 mol/L), aby otrzymać końcową objętość 1 L roztworu HEPES o stężeniu 25 mmol/L. Alternatywnie można zastosować pożywkę buforową z już zawartym HEPES.
- Przygotowanie kuwety mikroskopowej.
UWAGA: Następujące kroki opisują procedurę dla specjalnie zbudowanego uchwytu na próbki, składającego się z aluminiowej płyty podstawowej i akrylowej podstawki kuwety, która mocuje szkiełko nakrywką i łączy je z piezoelektrycznym pozycjonerem 3D. Można również stosować dostępne w handlu sterylne naczynia hodowlane z szklanym dnem.
UWAGA: Rysunek 5 przedstawia zdjęcia specjalnie zbudowanego uchwytu na próbki.- Wziąć nowe szkiełko nakrywkowe do mikroskopii i opłukać je wodą dejonizowaną (DI-water) oraz etanolem. Wysuszyć szkiełko strumieniem azotu lub sprężonego powietrza.
- Oczyścić szkiełko nakrywkowe w atmosferze plazmy tlenowej (ciśnienie gazu 0,3 mbar) przez 10 min przy mocy RF 50 W. Pozwala to usunąć z powierzchni wszystkie zanieczyszczenia organiczne.
- Oczyścić akrylową podstawkę kuwety, zanurzając ją w 0,2 mol/L roztworze NaOH przez około 10 min. Opłukać wodą DI.
- Złożyć uchwyt na próbki i przykryć go plastikową płytką Petriego do momentu rozpoczęcia eksperymentu.
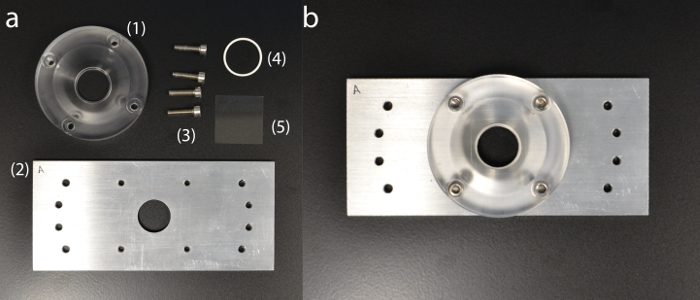
Rysunek 5: Specjalnie wykonany uchwyt na próbki. (a) Elementy uchwytu próbki: (1) akrylowy uchwyt do kuwet; (2) aluminiowa płyta podstawy; (3) śruby mocujące; (4) silikonowy pierścień O-ring; (5) szkiełko nakrywowe. (b) W pełni zmontowany uchwyt na próbki. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
- Przygotuj mikroskop.
- Włącz laser do iluminacji iSCAT, diodę LED do iluminacji w jasnym polu/fluorescencji, kamery oraz komputer i oprogramowanie do akwizycji. Zablokuj wiązkę lasera w pozycji przed obiektywem.
- Upewnij się, że obiektyw 10X/1.46 NA jest czysty. W przeciwnym razie użyj chusteczek do czyszczenia soczewek i etanolu, aby wyczyścić obiektyw zgodnie z wytycznymi producenta.
- Nałóż kroplę olejku immersyjnego na obiektyw mikroskopu.
- Pobierz uchwyt na próbkę (złożony w sekcji 2.2) i ostrożnie zamontuj go na stole piezoelektrycznym mikroskopu iSCAT w taki sposób, aby szkiełko cover slip próbki znajdowało się w centrum obiektywu mikroskopu. Zachowaj szczególną ostrożność, aby nie uszkodzić soczewki obiektywu. Przykręć jednostkę do pozycjonera piezoelektrycznego za pomocą wkrętów motylkowych, upewniając się, że nie przekroczono maksymalnego momentu obrotowego określonego przez producenta.
- Dodaj 1 mL roztworu podstawowego medium do mikroskopii (przygotowanego w sekcji 2.1.) do kuwety.
- Dodaj do medium 2 krople barwnika jodku propidyny jako markera śmierci komórkowej16,2.
- Odblokuj laser i ustaw ostrość systemu. Najpierw zweryfikuj, czy obiektyw znajduje się w odpowiedniej odległości od szkiełka cover slip, powtarzając kroki 1.2.3. – 1.2.5. (Rycina 2). Następnie precyzyjnie dostrój ostrość za pomocą osi z stołu piezoelektrycznego.
- Potwierdź, że wszystkie ustawienia źródeł światła, kamer i oprogramowania są ustawione prawidłowo. Dotyczy to takich parametrów jak moc lasera, intensywność LED, częstotliwość klatek kamer, czasy ekspozycji kamer lub ścieżki zapisu oprogramowania.
UWAGA: Zapisywanie filmów przy wysokiej częstotliwości klatek może generować duże rozmiary plików. Upewnij się, że na komputerze znajduje się wystarczająca ilość wolnego miejsca na dysku. - Ponownie zablokuj wiązkę lasera. Mikroskop jest teraz gotowy do przeprowadzenia eksperymentu.
- Przygotuj komórki.
UWAGA: Komórki Laz3820 są hodowane w medium RPMI 1640 uzupełnionym o 10% płodowej surowicy bydlęcej (FCS), aminokwasy, piwczan i antybiotyki. Komórki są inkubowane w temperaturze 37 °C i przy 5% CO2, a następnie pasażowane i zasilane świeżym medium co 2-3 dni23.- Wyjmij kolbę z hodowlą komórek z inkubatora i aspiruj medium zawierające około 1 x 10⁶ komórek. Aby określić odpowiednią objętość, zmierz stężenie hodowli komórkowej za pomocą hemocytometru.
- Wymieszaj zawiesinę komórkową z 10 mL medium RPMI 1640 w temperaturze pokojowej i odwiruj próbkę przy 300 x g przez 7 min.
- Ostrożnie usuń i odrzuć supernatant, upewniając się, że osad z zagęszczonych komórek nie został naruszony.
- Powtórz kroki 2.4.2. – 2.4.3. z osadem zagęszczonych komórek.
- Resuspenduj komórki w 0,5 mL roztworu podstawowego medium do mikroskopii (przygotowanego w sekcji 2.1.) i niezwłocznie wykorzystaj je w eksperymencie.
3. Mikroskopia iSCAT komórek wydzielniczych
- Upewnij się, że wiązka lasera jest zablokowana, aby zapobiec bezpośredniej ekspozycji komórek na światło lasera iSCAT.
- Wprowadź komórki do kuwety z próbką.
- Wprowadź około 3 µL próbki komórkowej (przygotowanej w sekcji 2.4.) nieco poza środek kuwety z próbką. Delikatnie dotknij końcówki pipety do szkiełka nakrywki i powoli wstrzyknij roztwór komórek. Pozostaw komórki do osadzenia się na szkiełku nakrywce.
UWAGA: Należy używać końcówek do pipet o małej objętości (10 µL) lub długich, giętkich końcówek do nakładania żelu. - Upewnij się, że gęstość komórek jest niższa niż około 1 komórka na 50 µm², aby pomiary pojedynczych komórek nie były zaburzone przez obecność wielu komórek w obszarze wokół lasera iSCAT.
- Jeśli liczba komórek jest zbyt mała, powtórz krok 3.2.1. aż do uzyskania wystarczającej liczby komórek.
- Jeśli zagęszczenie komórek jest zbyt duże, wprowadź około 20 µL dodatkowego medium do mikroskopii, aby rozproszyć komórki na szkle nakrywce.
- Wprowadź około 3 µL próbki komórkowej (przygotowanej w sekcji 2.4.) nieco poza środek kuwety z próbką. Delikatnie dotknij końcówki pipety do szkiełka nakrywki i powoli wstrzyknij roztwór komórek. Pozostaw komórki do osadzenia się na szkiełku nakrywce.
- Używając pozycjonera piezoelektrycznego, przesuń próbkę bocznie, aby ustawić komórkę blisko (około 10 µm) pola widzenia iSCAT. Upewnij się, że komórka nie wchodzi w pole widzenia iSCAT, ponieważ bezpośrednia ekspozycja na światło lasera 45 nm może być szkodliwa dla komórki.
- Użyj obrazowania w jasnym polu oraz obrazowania fluorescencyjnego, aby zlokalizować komórkę i zweryfikować jej żywotność25.
UWAGA: Żywa komórka ma okrągły kształt w obrazie w jasnym polu i nie wykazuje fluorescencji, podczas gdy śmierć komórki jest sygnalizowana przez silne sygnały fluorescencyjne wynikające z obecności jodku propidyny wewnątrz komórki2. - Odblokuj wiązkę lasera iSCAT i upewnij się, że powierzchnia szkiełka nakrywki nadal znajduje się w ogniskowej. Zamknij stół izolacyjny, aby zminimalizować dryft i sprzężenie akustyczne z otoczeniem.
UWAGA: To ostatnie osiąga się za pomocą ciężkich kurtyn optycznych lub paneli akrylowych otaczających stół optyczny. - Rozpocznij pomiar poprzez akwizycję obrazów z kamer iSCAT, jasnego pola oraz fluorescencyjnych. Zautomatyzuj i kontroluj proces za pomocą oprogramowania, aby zmaksymalizować wydajność eksperymentu. Okresowo sprawdzaj żywotność komórki oraz ogniskowanie systemu.
UWAGA: W zależności od natężenia lasera, komponentów optycznych i ustawień czasu ekspozycji kamery, laser iSCAT może zakłócać pracę kamery fluorescencyjnej. Jeśli zaobserwowano takie zjawisko, należy rozważyć tymczasowe zasłanianie lasera iSCAT podczas akwizycji obrazów fluorescencyjnych.
4. Analiza danych
UWAGA: Dane eksperymentalne są z natury zaszumione, i obrazy iSCAT nie są pod tym względem wyjątkiem. W typowym pomiarze iSCAT występuje kilka źródeł szumu, w tym zniekształcenia frontu fali w padającym źródle światła, chropowatość powierzchni szkiełka podstawowego oraz szum kamery. Poniższa sekcja przedstawia kilka sposobów niwelowania tych źródeł szumu poprzez postprocesing. Ponadto lateralne niestabilności mechaniczne układu prowadzą do zaszumienia danych i muszą zostać odpowiednio rozwiązane, co opisano w poniższej sekcji dyskusji. Opisane analizy są wykonywane za pomocą niestandardowych skryptów MATLAB.
- Zminimalizuj szum kamery, filtrując surowe dane za pomocą dwuwymiarowego filtru Fouriera, który wyklucza wysokie częstotliwości przestrzenne. Rozmiar filtra musi zostać dostosowany do konkretnej konfiguracji eksperymentalnej (determinowanej głównie przez aperturę numeryczną układu).
UWAGA: Elementy obrazu o wyższych częstotliwościach przestrzennych niż układ optyczny pochodzą z zewnętrznych źródeł (takich jak szum odczytu kamery) i mogą zostać pominięte. - Przekształć obrazy z surowych odczytów kamery na kontrast iSCAT.
UWAGA: Sygnał wykrywany przez kamerę to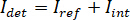 Kontrast iSCAT definiuje się jako
 gdzie
 jest natężenie światła referencyjnego, w tym przypadku części odbitej od szkiełka nakrywki, oraz
 czy występuje interferencja między a natężenie rozproszonego światła (
 ).
- Rozdziel sygnał na i poprzez obliczenie średniej czasowej z wybranych klatek, w których nie występują analizowane cząstki. Uzyskany obraz stanowi sygnał referencyjny .
UWAGA: Alternatywnie można przeprowadzić aktywny etap odejmowania tła, zgodnie z opisem w poniższej dyskusji. - Obliczyć kontrast zgodnie z
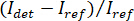 12,14,16.
- Rozdziel sygnał na
- Utwórz obraz różnicowy z przesunięciem (rolling differential image), odejmując każdą kolejną klatkę od następnej.
UWAGA: Sygnały resztkowe wynikające z chropowatości powierzchni szkiełka nakrywkowego oraz zniekształcenia czoła fali są w tym kroku skutecznie usuwane, ponieważ pozostają stałe w kolejnych klatkach. Metoda różnicowania kroczącego eliminuje te sygnały resztkowe, pozostawiając jedynie wiązania białek zachodzące między następującymi po sobie klatkami. Takie dynamiczne odejmowanie tła jest korzystne, ponieważ nie jest ono wrażliwe na długoterminowe dryfty próbki. - Zastosuj algorytm poszukiwania szczytów w celu wykrycia i zaindeksowania pojedynczych cząstek w każdej klatce oraz określenia ich specyficznego kontrastu i położenia.
- Wykorzystaj informacje zebrane w kroku 4.4 do stworzenia histogramów zdarzeń wiązania białek i powiąż wyekstrahowane z nich kontrasty z masą białka za pomocą krzywej kalibracyjnej sporządzonej z próbek znanych białek14,24.
Wyniki
Schemat mikroskopu iSCAT przedstawiono na Rycina 4aPrzedstawiono reprezentatywne obrazy w polu jasnym, fluorescencyjne oraz surowe obrazy iSCAT w Rysunek 4b, 4c, i 4dodpowiednio16. Rysunek 4e i 4f przedstawiono wyniki usuwania tła i różnicowego przetwarzania obrazu; dwa zaadsorbowane białka są widoczne jako plamki ograniczone dyfrakcyjnie w Rycina 4f. Rycina 6 przedstawia histogram wykrytych białek w czasie 125 s. Dane te uzyskano poprzez zastosowanie algorytmu wykrywania szczytów do przechwyconych obrazów w celu zliczenia zdarzeń wiązania i skatalogowania ich kontrastu16Wykryto łącznie 503 białka.
Następnie wydzielone cząsteczki są identyfikowane poprzez porównanie z pomiarami referencyjnymi wykonanymi na roztworach oczyszczonych białek lub poprzez dodatkowe pomiary z zastosowaniem funkcjonalizowanych powierzchni szklanych14,16. Dane iSCAT pozwalają tym samym na bezpośrednią wizualizację dynamiki sekrecji komórkowej w skali subsekundowej16. Przykładowo, wykazaliśmy wcześniej, że przeciwciała IgG stanowią główną frakcję sekretomu Laz388 i są uwalniane z komórki z szybkością ok. 10 cząsteczek na sekundę16. Dodatkowo komórki wydzielają inne cząsteczki o masie w zakresie 10 kDa - 10 kDa16. Opisana metoda może być dalej wykorzystana np. do badania przestrzennego gradientu stężenia wydzielin wokół komórki16 lub do określenia dynamiki czasowej lizy komórkowej16.
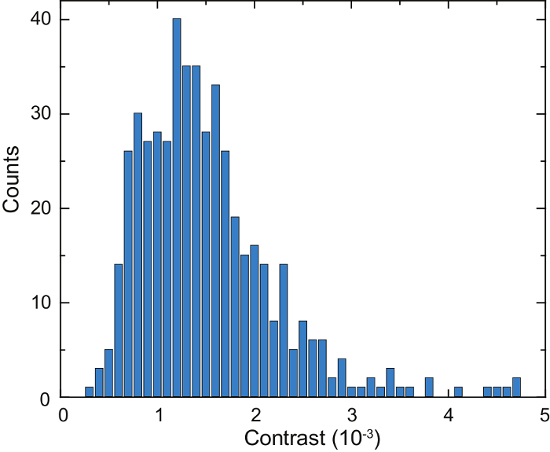
Rysunek 6: Ilościowe oznaczenie białek wydzielanych przez pojedynczą komórkę Laz38. Histogram przedstawia białka wykryte w okresie czasu wynoszącym 125 s. Wartości kontrastu są akumulowane w 1 x 10⁻⁴ przedziały kontrastu (niebieskie słupki). W trakcie tego pomiaru policzono łącznie 503 pojedyncze białka. Eksperyment powtórzono 10 razy, uzyskując podobne wyniki. Rycina została opracowana na podstawie pracy McDonald, M.P. i inni16. Copyright 2018 American Chemical Society. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Jednym z najistotniejszych aspektów pozyskiwania użytecznych danych iSCAT jest możliwość odnalezienia poprawnej płaszczyzny ogniskowania na powierzchni szkiełka podstawowego, a ponadto utrzymanie tej pozycji przez długi czas. Zaniedbanie tego doprowadzi do poszerzenia PSF, słabych sygnałów iSCAT oraz artefaktów związanych z dryftem w analizach dynamiki. Okazuje się, że znalezienie płaszczyzny ogniskowania na czystej, pustej powierzchni szkiełka podstawowego nie jest łatwym zadaniem, ponieważ cechy powierzchni nie są widoczne na tle dużego tła wiązki odniesienia (patrz Rysunek 4d).
Surowe obrazy iSCAT są często przysłonięte sygnałami tła wynikającymi z niejednorodności frontu fali źródła wzbudzenia, co może utrudniać odnalezienie właściwej płaszczyzny obrazowania. Aktywne odejmowanie frontu fali jest przydatnym sposobem na rozwiązanie tego problemu i późniejsze monitorowanie ostrości iSCAT podczas pomiaru16. Jedną z metod realizacji tego procesu jest przestrzenna modulacja próbki. W skrócie, generator funkcji przykłada falę prostokątną o częstotliwości 50 Hz do zewnętrznego portu sterowania stolika piezoelektrycznego, co skutkuje przestrzenną modulacją próbki z zastosowaną częstotliwością (amplituda 290 nm). Synchroniczne akwizycje kamery są wyzwalane z tego samego źródła i, po połączeniu zgodnie z zasadami detekcji synchronicznej, dają w efekcie obraz z kompensacją frontu fali14,16. Uzyskany obraz zazwyczaj pokazuje chropowatość powierzchni szkiełka podstawowego (Rysunek 4e). Niewielkie defekty pozostające na szkle po czyszczeniu mogą być wykorzystane do ustawienia ostrości mikroskopu. Parametry stosowane w tym kroku aktywnego odejmowania tła mogą być zmieniane w zależności od częstotliwości klatek, czasu ekspozycji lub sprzętu.
Jak wspomniano powyżej, w układzie iSCAT (krok 1.2.1.) zaleca się stosowanie wysokiej jakości dzielnika wiązki, ponieważ artefakty obrazowania, takie jak powidoki lub interferencje powstające przy cienkich płaskich dzielnikach wiązki, będą wpływać na obraz i zakłócać pomiar. Rysunek 7 przedstawia porównanie wysokiej i niskiej jakości dzielnika wiązki. Oba surowe obrazy iSCAT pokazują ten sam obszar na szkiełku nakrywce zawierający kilka pozostałych cząsteczek. Do zarejestrowania obu obrazów wykorzystano ten sam układ iSCAT, wymieniono jedynie dzielnik wiązki. Rysunek 7a przedstawia obraz zarejestrowany przez kamerę przy użyciu grubszego (5 mm), powlekanego warstwą antyrefleksyjną (AR) i klinowego dzielnika wiązki. Dzięki klinowej konstrukcji wiązka odbita od tylnej powierzchni dzielnika wiązki jest antyrównoległa do odbicia powstającego z powierzchni przedniej i nie wpada do obiektywu. Nie występują artefakty interferencyjne. Rysunek 7b przedstawia to samo pole widzenia próbki, ale tym razem zastosowano cieńszy (1 mm) płaski dzielnik wiązki. Dwa odbicia od przedniej i tylnej powierzchni dzielnika wiązki są równoległe i propagują do kamery. Wyraźnie widoczne są artefakty interferencyjne.

Rycina 7: Porównanie obrazów iSCAT uzyskanych przy użyciu dzielników wiązki wysokiej i niskiej jakości. (a) Otrzymany surowy obraz iSCAT uzyskany przy użyciu klinowego dzielnika wiązki o grubości 5 mm z powłoką antyrefleksyjną (AR). (b) Otrzymany surowy obraz iSCAT tego samego obszaru z wykorzystaniem płaskiego dzielnika wiązki o grubości 1 mm. Oba dzielniki wiązki mają taki sam stosunek podziału (50% odbicia, 50% transmisji). Na obrazie uzyskanym za pomocą płaskiego dzielnika wiązki o grubości 1 mm wyraźnie widoczne są artefakty interferencyjne wynikające z odbić Fresnela. Paski skali: 2 µm. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
W niniejszym protokole opisujemy schemat oświetlenia szerokopolowego dla iSCAT, ponieważ jest on szybki, łatwy w realizacji i umożliwia równoległe detekciecie na dużym obszarze14. Innym powszechnym podejściem jest zastosowanie akustyczno-optycznych deflektorów (AOD) i skanowanie próbki wiązką konfokalną12,17. Podejście to eliminuje potrzebę stosowania wysokiej jakości frontów falowych, lecz jest bardziej złożone eksperymentalnie niż konwencjonalne obrazowanie szerokopolowe. Ponadto prędkość oświetlenia konfokalnego jest ograniczona przez prędkość AOD. W zależności od wymaganych parametrów eksperymentalnych, do detekcji pojedynczych białek wydzielanych przez żywe komórki można w zasadzie wykorzystać zarówno schematy oświetlenia konfokalnego, jak i szerokopolowego.
Zgodnie z opisem w całym protokole, niezbędne jest zminimalizowanie bocznych fluktuacji mechanicznych w stoliku mikroskopu. Nawet nanometrowe odchylenia w pozycji próbki mogą prowadzić do różnic między kolejnymi klatkami obrazu z kamery i wywołać znaczny szum zewnętrzny w obrazie różnicowym. Zaleca się zatem stosowanie mechanicznie stabilnego stolika mikroskopu oraz tłumionego stołu optycznego (krok 1.1.1.) i osłonięcie całej aparatury kurtynami lub panelami optycznymi podczas eksperymentu (krok 3.5.).
W przypadku pomiarów długoterminowych można rozważyć zastosowanie schematu aktywnej stabilizacji ostrości. W tym podejściu do mikroskopu wbudowany zostaje drugi laser w układzie całkowitego wewnętrznego odbicia (TIR), którego obraz jest następnie rzutowany na fotodiodę kwadratową. Zmiany ostrości układu przekładają się na przemieszczenia boczne plamki lasera TIR na diodzie kwadratowej, co może być następnie wykorzystane w aktywnym pętli sprzężenia zwrotnego do sterowania osią z piezoelektrycznego stolika 26. W ten sposób eliminowane są efekty długoterminowego dryftu w pionie.
W celu dostosowania przedstawionej techniki do konkretnych potrzeb eksperymentalnych można zastosować szereg modyfikacji i rozszerzeń. Na przykład dostępne są komercyjne inkubatory do stołu mikroskopowego, które można łatwo włączyć do systemu mikroskopu iSCAT w celu długoterminowego obrazowania komórek. Można również wdrożyć inne techniki uzupełniające obrazowanie iSCAT, takie jak konfokalna lub TIR fluorescencyjna mikroskopia17. Aby dostosować system do badanego układu, pomiary sekrecji iSCAT można przeprowadzać w innych mediach hodowlanych, takich jak DMEM lub DPBS; należy jednak unikać stosowania wskaźnika pH w postaci czerwieni fenolowej, ponieważ może on zakłócić eksperyment poprzez absorpcję światła laserowego. Dodatkowo suplementy takie jak płodowa surowica bydlęca (FCS) lub ludzki lizat płytek krwi (hPL) zawierają białka, które mogą interferować z detekcją iSCAT. W zależności od wymaganej czułości eksperymentu, suplementy te powinny zostać wykluczone z medium do mikroskopii.
Technika iSCAT opiera się na zdolności analitytu do rozpraszania światła — właściwości immanentnej dla wszystkich białek — i jest zatem z natury nieswoista. Niemniej jednak, pewien stopień swoistości jest możliwy, ponieważ sygnały iSCAT skalują się liniowo z masą białka14,27,28. Pozwala to na kalibrację systemu iSCAT przy użyciu standardowych próbek białek, takich jak albuminy surowicy bydlęcej (BSA) i fibrynogen14,27,28. W rzeczywistości, całkiem niedawno, Young et al.28 rozwinęli prace Piliarika i Sandoghdara14, wykazując, że iSCAT może być wykorzystywany do wyznaczania masy cząsteczkowej białek tak małych jak streptawidyna (53 kDa) z rozdzielczością masy 19 kDa i dokładnością około 5 kDa. Kilka konwencjonalnych podejść może dodatkowo uzupełnić iSCAT, zapewniając dodatkowy poziom swoistości. Przykładem są enzymatyczne testy immunoabsorpcyjne (ELISA) i/lub inne modyfikacje powierzchni, które ograniczają zdarzenia wiązania białek w taki sposób, aby wykrywane było tylko białko docelowe16.
W niniejszym protokole opisaliśmy, w jaki sposób mikroskopia iSCAT może być wykorzystana do badania wydzielin komórkowych na poziomie pojedynczych białek z rozdzielczością czasową poniżej sekundy16. Technika ta jest uniwersalna i może zostać zaimplementowana w każdym komercyjnym lub własnoręcznie zbudowanym mikroskopie. W przeciwieństwie do metod fluorescencyjnych z rozdzielczością pojedynczych cząsteczek, metoda ta nie jest podatna na fotoblaknięcie ani efekty migotania, a mimo to osiąga czułość na poziomie pojedynczego białka. Cechy te sprawiają, że iSCAT jest potężnym narzędziem w dziedzinie biosensorów i mikroskopii. Przyszłe zastosowania będą koncentrować się na wyjaśnianiu złożonych oddziaływań komórkowych, takich jak odpowiedź immunologiczna na bodziec czy komunikacja międzykomórkowa.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez Towarzystwo Maxa Plancka, profesurę Alexandra-von-Humboldta oraz Deutsche Forschungsgemeinschaft (CRC 1181). Dziękujemy Stefanie Schaffer z Universitätsklinikum Erlangen za udostępnienie komórek Laz388 i za przydatne dyskusje. Dziękujemy Simone Ihloff i Maksimowi Schwabowi z MPL za wsparcie techniczne.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Item/Device | |||
| 100x / 1.46 NA obiektyw | Zeiss | 420792-9800-000 | alpha Plan Apochromat oil immersion |
| 20x / 0.4 NA | Leica | 566049 | N Plan |
| Piezo Stage | PI | P-517k020 | 3-osiowy stolik z 100x100x10&mikro; |
| Laser diodowy o zasięgu m (445 nm) | Lasertack | PD-01236 | |
| Optyka/Optomechanika | Thorlabs/Newport-soczewki | , lustra, słupki, mocowania | |
| Źródło światła LED | Thorlabs | P30H | |
| wzbudzenie fluorescencyjne | |||
| Filtr długoprzepustowy (500 nm) | Thorlabs | FEL0500 | do modyfikacji widma diody LED do wzbudzenia fluorescencji |
| Rozdzielacz wiązki 70R/30T | Newport | 20Q20BS.1 | |
| Ekonomiczny rozdzielacz wiązki | Thorlabs | EBS1 | używany do porównania efektów prążkowych |
| Rozdzielacz wiązki z płytką klinową | Thorlabs | BSW26 | używany do porównania efekty prążków |
| Krótkoprzepustowe zwierciadło dichroiczne (550 nm) | Edmund Optics | 66249 | |
| Rozdzielacz wiązki 8R/92T Kamera | Thorlabs | BP108 | |
| Photonfocus | MV1-D1024E-160-CL | do akwizycji iSCAT | |
| Kamery CMOS | Mightex | SCE-B013-U | do akwizycji jasnego pola / fluorescencji |
| Filtr długoprzepustowy (600 nm) | Thorlabs | ||
| Komputer | Fujitsu Siemens | - | Procesor Core i7, 16 GB pamięci RAM, |
| oprogramowanie do akwizycji | LabVIEW-Oprogramowanie | do analizy pakietu LabVIEW 2016 | |
| Matlab-Matlab | 2014 | ||
| Odkurzacz plazmowy | Diener | Diener pico | |
| Inkubator | Binder | Model Wirówka CB | |
| Eppendorf | 5810R | ||
| Odczynnik/Materiał | |||
| RPMI 1640 średni | Gibco | 11835063 | bez czerwieni fenolowej |
| Roztwór buforowy HEPES (1M) | Sigma Aldrich | 59205C | |
| Szkiełka osłonowe | Marienfeld | 107052 | |
| Naczynia hodowlane ze szklanym dnem | ibidi | 81158 | |
| Mikrosfery fluorescencyjne | Invitrogen | F8821 | używany do kalibracji |
| Olejek immersyjny | Zeiss | 444960 | |
| Barwnik z jodku propidyny | Invitrogen | R37108 | |
| Małe końcówki do pipet | Eppendorf | 30075005 | |
| Elastyczne końcówki do pipet | Eppendorf | 5242956003 | |
| Etanol, 99,8% | Fisher Scientific | E/0650DF/15 | |
| Wodorotlenek sodu, granulki | Sigma Aldrich | 221465 | do przygotowania 0,2M roztworu NaOH |
Bibliografia
- Hathout, Y. Approaches to the study of the cell secretome. Expert Review of Proteomics. 4 (2), 239-248 (2007).
- Pandey, A., Mann, M. Proteomics to study genes and genomes. Nature. 405 (6788), 837-846 (2000).
- Makridakis, M., Vlahou, A. Secretome proteomics for discovery of cancer biomarkers. Journal of Proteomics. 73 (12), 2291-2305 (2010).
- Bantscheff, M., Schirle, M., Sweetman, G., Rick, J., Kuster, B. Quantitative mass spectrometry in proteomics: a critical review. Analytical and Bioanalytical Chemistry. 389 (4), 1017-1031 (2007).
- MacBeath, G. Protein microarrays and proteomics. Nature Genetics. 32, 526-532 (2002).
- Seder, R. A., Darrah, P. A., Roederer, M. T-cell quality in memory and protection: implications for vaccine design. Nature Reviews Immunology. 8 (4), 247-258 (2008).
- Moerner, W. E., Fromm, D. P. Methods of single-molecule fluorescence spectroscopy and microscopy. Review of Scientific Instruments. 74 (8), 3597-3619 (2003).
- Borisov, S. M., Wolfbeis, O. S. Optical biosensors. Chemical Reviews. 108 (2), 423-461 (2008).
- Dantham, V. R., Holler, S., Barbre, C., Keng, D., Kolchenko, V., Arnold, S. Label-Free Detection of Single Protein Using a Nanoplasmonic-Photonic Hybrid Microcavity. Nano Letters. 13 (7), 3347-3351 (2013).
- Zijlstra, P., Paulo, P. M. R., Orrit, M. Optical detection of single non-absorbing molecules using the surface plasmon resonance of a gold nanorod. Nature Nanotechnology. 7 (6), 379-382 (2012).
- Rickgauer, J. P., Grigorieff, N., Denk, W. Single-protein detection in crowded molecular environments in cryo-EM images. eLife. 6, e25648(2017).
- Lindfors, K., Kalkbrenner, T., Stoller, P., Sandoghdar, V. Detection and Spectroscopy of Gold Nanoparticles Using Supercontinuum White Light Confocal Microscopy. Physical Review Letters. 93 (3), 037401(2004).
- Jacobsen, V., Stoller, P., Brunner, C., Vogel, V., Sandoghdar, V. Interferometric optical detection and tracking of very small gold nanoparticles at a water-glass interface. Optics Express. 14 (1), 405(2006).
- Piliarik, M., Sandoghdar, V. Direct optical sensing of single unlabelled proteins and super-resolution imaging of their binding sites. Nature Communications. 5, 4495(2014).
- Roux, K. H. Immunoglobulin Structure and Function as Revealed by Electron Microscopy. International Archives of Allergy and Immunology. 120 (2), 85-99 (1999).
- McDonald, M. P., et al. Visualizing Single-Cell Secretion Dynamics with Single-Protein Sensitivity. Nano Letters. 18 (1), 513-519 (2018).
- Kukura, P., Ewers, H., Müller, C., Renn, A., Helenius, A., Sandoghdar, V. High-speed nanoscopic tracking of the position and orientation of a single virus. Nature Methods. 6 (12), 923-927 (2009).
- Ortega Arroyo, J., Cole, D., Kukura, P. Interferometric scattering microscopy and its combination with single-molecule fluorescence imaging. Nature Protocols. 11 (4), 617-633 (2016).
- Spindler, S., et al. Visualization of lipids and proteins at high spatial and temporal resolution via interferometric scattering (iSCAT) microscopy. Journal of Physics D: Applied Physics. 49 (27), 274002(2016).
- Lazarus, H., et al. Characterization of a unique cell line (LAZ 221) from human acute lymphocytic ("null" cell) leukemia. Cancer Research. 38 (5), 1362-1367 (1978).
- Mackensen, A., et al. Evidence for in situ amplification of cytotoxic T-lymphocytes with antitumor activity in a human regressive melanoma. Cancer Research. 53 (15), 3569-3573 (1993).
- Crowley, L. C., Scott, A. P., Marfell, B. J., Boughaba, J. A., Chojnowski, G., Waterhouse, N. J. Measuring cell death by propidium iodide uptake and flow cytometry. Cold Spring Harbor Protocols. 2016 (7), 647-651 (2016).
- Freshney, R. I. Primary Culture. Culture of Animal Cells. , (2005).
- Dahmardeh, M., et al. Unpublished data. , (2018).
- Majno, G., Joris, I. Apoptosis, oncosis, and necrosis. An overview of cell death. American Journal of Pathology. 146 (1), 3-15 (1995).
- Bellve, K., Standley, C., Lifshitz, L., Fogarty, K. Design and Implementation of 3D Focus Stabilization for Fluorescence Microscopy. Biophysical Journal. 106 (2), 606a(2014).
- Liebel, M., Hugall, J. T., Van Hulst, N. F. Ultrasensitive Label-Free Nanosensing and High-Speed Tracking of Single Proteins. Nano Letters. 17 (2), 1277-1281 (2017).
- Young, G., et al. Quantitative mass imaging of single biological macromolecules. Science. 360 (6387), 423-427 (2018).
Przedruki i uprawnienia
