Celem tego artykułu jest dostarczenie wyczerpującego, systematycznego przewodnika po skutecznym oczyszczaniu histonów H3 i H4 oraz kwantyfikacji reszt acetylowanych histonów.
Artykuł metodologiczny
Oczyszczanie białek histonów H3 i H4 oraz oznaczanie ilościowe acetylowanych śladów histonów w komórkach i tkance mózgowej
W tym artykule
Podsumowanie
Streszczenie
We wszystkich organizmach eukariotycznych chromatyna, fizjologiczny szablon całej informacji genetycznej, jest niezbędna dla dziedziczności. Chromatyna podlega szeregowi różnorodnych modyfikacji potranslacyjnych (PTM), które najczęściej występują na końcach aminowych białek histonowych (tj. ogonie histonowym) i regulują dostępność i stan funkcjonalny leżącego u podstaw DNA. Ogony histonowe rozciągają się od rdzenia nukleosomu i podlegają dodawaniu grup acetylowych przez acetylotransferazy histonowe (HAT) oraz usuwaniu grup acetylowych przez deacetylazy histonowe (HDAC) podczas wzrostu i różnicowania komórek. Specyficzne wzorce acetylacji reszt lizyny (K) na ogonach histonowych określają dynamiczną homeostazę między chromatyną aktywną transkrypcyjnie lub tłumioną transkrypcyjnie poprzez (1) wpływanie na zespół histonów rdzenia i (2) rekrutację synergicznych lub antagonistycznych białek związanych z chromatyną do miejsca transkrypcji. Podstawowy mechanizm regulacyjny złożonej natury PTM ogona histonowego wpływa na większość procesów szablonowych chromatyny i powoduje zmiany w dojrzewaniu i różnicowaniu komórek zarówno w normalnym, jak i patologicznym rozwoju. Celem niniejszego raportu jest dostarczenie nowicjuszom skutecznej metody oczyszczania podstawowych białek histonowych z komórek i tkanki mózgowej oraz wiarygodne określenie ilościowe śladów acetylacji na histonach H3 i H4.
Wprowadzenie
Termin epigenetyka odnosi się do dziedzicznych zmian w aktywności genów, które zachodzą niezależnie od zmian w sekwencji DNA1,2. Transkrypcja i represja genów są determinowane przez (1) dostępność chromosomalnego DNA owiniętego wokół oktamera podstawowych białek histonowych (po dwie kopie H2A, H2B, H3 i H4) oraz przez (2) dostępność czynników transkrypcyjnych i białek rusztowania rekrutowanych do określonych miejsc promotorowych3,4. Transkrypcja genów jest regulowana przez enzymatyczne modyfikacje określonych miejsc promotora DNA i PTM ogonów histonów5,6,7. N-końce histonu H3 i H4 należą do najbardziej konserwatywnych sekwencji znanych w organizmach eukariotycznych3, a ich modyfikacje potranslacyjne zostały obszernie udokumentowane, aby odgrywać kluczową rolę w określaniu struktury i funkcji chromatyny8,9. PTM na ogonach histonów (tj. acetylacja, metylacja, fosforylacja i ubikwitynacja) zmieniają potencjał interakcji ogonów, wpływają na stan strukturalny i fałdowanie włókna chromatyny, a tym samym regulują dostępność i przetwarzanie DNA4,10,11,12. Grupy acetylowe są dodawane i usuwane z reszt K na ogonach histonowych przez zestaw specyficznych enzymów epigenetycznych oddziałujących z histonami, a mianowicie odpowiednio HAT i HDAC13. Na przykład, wcześniej wykazano, że acetylacja histonu H4 przy lizynie 12 (H4K12ac) aktywuje transkrypcję genów związanych z nabywaniem i konsolidacją pamięci14. Ponadto kilka linii dowodów sugeruje, że epigenetyczna kontrola transkrypcji genów za pośrednictwem enzymów jest kluczowym aspektem zdrowego wzrostu i różnicowania komórek6,15. Wykazano, że zmiana w epigenetycznej regulacji ekspresji genów, czy to przez epigenetyczne modyfikacje DNA, czy przez mutację samych enzymów epigenetycznych, jest rozregulowana w chorobach ludzkich, w których zmiana aktywności określonego genu jest cechą charakterystyczną patologii (np. rak)6,16,17. W związku z tym ocena zmian w rdzeniowych histonach PTM staje się cennym celem dla potencjalnych interwencji terapeutycznych. Jednak określenie obfitości, oddziałujących na siebie partnerów i konkretnych ról histonów PTM okazało się wyzwaniem18.
W bieżącym raporcie opisana jest zoptymalizowana, średnioprzepustowa strategia oczyszczania histonów rdzeniowych z komórek i tkanek mózgowych w jednej frakcji oraz kompletny protokół do kwantyfikacji histonów H3 i H4 PTM. Warto zauważyć, że chociaż obecnie publikowane techniki oczyszczania na bazie kwasów i strategie wykrywania histonów oparte na przeciwciałach są szeroko stosowane do charakteryzacji histonów, brakuje w nich opisowych szczegółów dotyczących krytycznych etapów procedury, co utrudnia szybką i powtarzalną ekstrakcję histonów i kwantyfikację. Na przykład przetwarzanie ekstraktów komórkowych i biopsji tkanek wymaga różnych narzędzi i technologii do skutecznej ekstrakcji. Co więcej, zoptymalizowany protokół przedstawiony w niniejszym manuskrypcie demonstruje praktyczne podejście o średniej przepustowości. Histony rdzeniowe są ekstrahowane jako pojedyncza, czysta frakcja, co umożliwia niezawodne wykrywanie PTM za pośrednictwem przeciwciał bez żadnych zakłóceń spowodowanych zanieczyszczeniami. Co więcej, w niniejszym manuskrypcie udało się obejść wyzwania związane z wykrywaniem histonów ze względu na ich małą masę cząsteczkową. Zazwyczaj brak zgodności między protokołami oczyszczania, kwantyfikacji i elektroforezy żelowej utrudnia naukowcom uzyskanie powtarzalnych i rozstrzygających wyników. W tym artykule przedstawiono zoptymalizowany przebieg pracy w celu oczyszczenia histonów rdzeniowych z komórek i tkanek oraz przygotowania ich do dalszych analiz PTM za pomocą western blot.
Obecny protokół umożliwia oczyszczanie podstawowych białek histonowych przy jednoczesnym zachowaniu ich natywnych modyfikacji potranslacyjnych (tj. acetylacji, metylacji i fosforylacji). Rysunek 1 przedstawia oś czasu protokołu oczyszczania histonów.
Protokół
Wszystkie myszy były przetrzymywane w akredytowanym przez AAALAC pomieszczeniu dla zwierząt z kontrolowaną wilgotnością i temperaturą na University of Miami Miller School of Medicine. Wszystkie eksperymenty zostały zatwierdzone przez Institutional Animal Care and Use Committee (IACUC) University of Miami Miller School of Medicine i przeprowadzone zgodnie z wytycznymi NIH.
1. Przygotowanie ekstraktu z próbki
- Komórki adherentne
- Wysiać komórki w szalkach 10 cm w odpowiedniej pożywce hodowlanej (od 1 x 10⁶ do 1 x 10⁹ komórek na szalkę dla linii komórkowych, takich jak BV2, HEK-293 i SH-SY5Y, natomiast ~1 x 10¹⁵ komórek na szalkę dla komórek pierwotnych, takich jak pierwotne neurony kory mózgu). Upewnić się, że komórki są równomiernie rozłożone na całej powierzchni szalki i pozostawić komórki do wzrostu przez 48 h do osiągnięcia ~100% konfluencji (37 °C, 5% CO2).
- Po osiągnięciu przez komórki pożądanej konfluencji, delikatnie odessać pożywkę hodowlaną i wypłukać komórki 2x uprzednio ogrzaną pożywką bezzserwatkową w komorze do hodowli tkanek.
- Odessać pożywkę bezserwatkową z szalki i dodać 1 mL lodowatego buforu do ekstrakcji (0.4 M kwasu siarkowego, 1 mM KCl, 1 mM MgCl2, 50 mM Tris-HCl [pH 8.0] i 1x koktajlu inhibitorów proteaz) do każdej szalki.
- Użyć plastikowego skrobaka do komórek, aby zebrać wszystkie komórki w buforze do ekstrakcji (poprzez skrobanie) i przenieść je do opisanej probówki 1,5 mL za pomocą pipety 1 000 µL. Pipetować zawiesinę komórek 3x w górę i w dół, aby ułatwić homogenizację.
- Zamknąć wszystkie probówki i natychmiast umieścić je w lodzie.
- Tkanka mózgowa
- W przypadku użycia mrożonej tkanki, umieścić ją w schłodzonej probówce 1,5 mL i krótko rozmrozić na lodzie. W przypadku użycia świeżej tkanki, przejść bezpośrednio do kroku 1.2.2.
UWAGA: Niniejszy protokół opisuje procedury z wykorzystaniem mrożonych próbek mózgu myszy oraz kory przedczołowej myszy. - Zhomogenizować tkankę za pomocą ręcznego homogenizatora Dounce, stosując odpowiednią ilość buforu do ekstrakcji i zalecaną liczbę pociągnięć (Tabela 1). Aby uniknąć nadmiernego rozdrobnienia chromatyny, nie należy przekraczać zalecanej liczby pociągnięć.
- Za pomocą jednokanałowej pipety 1 000 µL przenieść homogenizat do schłodzonej probówki 1,5 mL. Zamknąć wszystkie probówki i natychmiast umieścić je w lodzie.
- W przypadku użycia mrożonej tkanki, umieścić ją w schłodzonej probówce 1,5 mL i krótko rozmrozić na lodzie. W przypadku użycia świeżej tkanki, przejść bezpośrednio do kroku 1.2.2.
2. Przygotowanie surowego ekstraktu histonów
- Probiówki o pojemności 1,5 mL zawierające komórki lub tkankę zawieszoną w buforze do ekstrakcji należy umieścić na platformie rotacyjnej i obracać z prędkością 15 rpm w temperaturze 4 °C, aby umożliwić ekstrakcję surowych histonów.
UWAGA: Czas ekstrakcji może się różnić w zależności od rodzaju komórek i tkanek i musi zostać zoptymalizowany dla każdej procedury. Niniejszy protokół przedstawia wyniki uzyskane po 15 min, 2 h i 24 h ekstrakcji (Rycina 2, Rycina 3, Rycina 4 oraz Rycina 5). - Mikrowirówkę należy schłodzić do 4 °C. Po upływie żądanego czasu ekstrakcji probówki wirujemy z maksymalną prędkością przez 10 min w temperaturze 4 °C.
- Nadosad zawierający surowe histony należy przenieść do nowej, schłodzonej probówki o pojemności 1,5 mL. Osad należy odrzucić.
- Nadosad należy przechowywać w temperaturze -80 °C (ekstrakcję można przerwać na tym etapie, patrz „Krok zatrzymania” na Rycynie 1) lub natychmiast przejść do następnego kroku.
- Surowe histony należy zneutralizować 1/4 objętości 5x buforu neutralizującego (np. dodać 250 µL 5x buforu neutralizującego do 1 mL surowych histonów). Dobrze wymieszać, pipetując w górę i w dół 6 razy.
- pH mieszaniny należy sprawdzić za pomocą pasków wskaźnikowych pH. W razie potrzeby skorygować pH, dodając więcej buforu neutralizującego, aż do osiągnięcia pH 7.
- Obecność białek histonowych i niehistonowych w surowym ekstrakcie histonowym należy ocenić w następujący sposób (Rycina 2).
- Do 12,5 µL 4x buforu do próbek (Laemmli) dodać 37,5 µL próbki i denaturować przez 10 min w temperaturze 99 °C.
- Próbkę należy nałożyć na żel SDS-PAGE i prowadzić elektroforezę przez 1 h przy napięciu 100 V.
- Żel należy barwić przez noc roztworem barwiącym Coomassie Brilliant Blue R-250, a następnie odbarwić podczas trzech kolejnych przemyć (1 h/mycie) roztworem odbarwiającym Coomassie Brilliant Blue R-250.
UWAGA: Surowe histony (Rycina 2) można porównać z eluowanymi i oczyszczonymi histonami (t.j. materiałem nałożonym na kolumnę [Rycina 5A]).
3. Oczyszczanie histonów rdzeniowych
- Równoważenie kolumny wirowej
- Do każdej używanej kolumny wirowej dodać 500 µL buforu równoważącego. Nie dotykać membrany kolumny.
- Wirować w temperaturze 4 °C przez 3 min przy 800 x g. Odrzucić frakcję przepływową. Powtórzyć 1x.
- Oczyszczanie histonów
- Do kolumny dodać 500 µL analizowanej próbki z kroku 2.6. Wirować w temperaturze 4 °C przez 3 min przy 800 x g. Zebrać frakcję przepływową.
- Powtarzać poprzedni krok tyle razy, ile jest to konieczne, aby nanieść całą próbkę na kolumnę. Nie przepełniać kolumny wirowej.
- Połączyć frakcje przepływowe z każdego etapu wirowania, aby przeanalizować wydajność wiązania do kolumny (Rysunek 3).
- Postępować zgodnie z krokiem 2.7 w celu analizy frakcji przepływowej z kolumny.
- Płukanie kolumny
- Do każdej kolumny dodać 500 µL buforu do płukania. Wirować w temperaturze 4 °C przez 3 min przy 800 x g. Zebrać frakcję przepływową po płukaniu (płukanie nr 1).
- Powtórzyć krok 3.3.1 łącznie trzy razy. Zebrać frakcje przepływowe po płukaniu nr 2 i nr 3. Nie łączyć kolejnych frakcji przepływowych z kolumny.
- Aby dalej ocenić wydajność wiązania histonów przez kolumnę, przeanalizować trzy płukaniny z kolumny zgodnie z krokiem 2.7 (Rysunek 4).
- Elucja histonów
- Przenieść kolumnę do nowej, opisanej probówki 1,5 mL.
- Dodać 50 µL buforu do elucji histonów. Wirować w temperaturze 4 °C przez 3 min przy 800 x g. Zachować frakcję przepływową zawierającą białka histonowe.
- W celu dodatkowej elucji powtórzyć krok 3.4.2. Nie łączyć pierwszej i drugiej frakcji eluatu, ponieważ różnią się one ilością i czystością histonów.
4. Wytrącanie histonów rdzeniowych
- Dodaj kwas nadchlorowy (PCA) do oczyszczonych histonów do uzyskania stężenia końcowego 4% PCA (np. dodaj 3 µL 70% PCA do 50 µL oczyszczonych histonów z kroku 3.4.2.).
- Wiruj przez 3 s, aby zebrać całą pozostałą ciecz ze ścianek probówki. Wymieszaj, pipetując w górę i w dół 6 razy.
- Umieść probówki w statywie i inkubuj przez 24 h w temperaturze 4 °C.
- Następnego dnia schłodź mikrowirówkę do 4 °C i wiruj próbki przez 75 min z maksymalną prędkością w temperaturze 4 °C.
- Po zakończeniu wirowania na dnie probówki widoczny będzie mały biały osad zawierający wytrącone histony. Nie mieszaj próbki w wirówce typu vortex.
- Ostrożnie odessij nadsącz i, nie naruszając osadu, dodaj do próbki 500 µL lodowatego 4% PCA.
- Wiruj w temperaturze 4 °C przez 10 min z maksymalną prędkością. Ostrożnie odessij nadsącz.
- Powtórz krok 4.7 dwa razy.
- Nie naruszając osadu, dodaj 500 µL lodowatego acetonu. Wiruj w temperaturze 4 °C przez 10 min z maksymalną prędkością. Ostrożnie odessij nadsącz.
- Powtórz krok 4.9 dwa razy.
- Ostrożnie odessij nadsącz, pozostaw probówki niezakorkowane i pozwól próbce wyschnąć na lodzie przez 30 min. Sprawdź, czy cały pozostały aceton wyparował.
- Pozostaw probówki niezakorkowane i pozwól próbce wyschnąć w temperaturze pokojowej (RT) przez 5 min.
- Resuspenduj osad w 30 µL sterylnej wody. Nie pipetuj w górę i w dół. Delikatnie stuknij w probówkę palcem.
- Zakorkuj wszystkie probówki i pozwól histonom na rekonstytucję na lodzie przez 30–50 min, w zależności od wielkości osadu. Sprawdź, czy osad został resuspendowany.
- Zakorkuj wszystkie probówki i pozwól osadowi na dalszą resuspensję w temperaturze RT przez 5 min.
UWAGA: Roztwór ten (pierwsza i druga elucja z kroku 3.4.3) składa się z oczyszczonych i odsolonych histonów i może być użyty do dalszej kwantyfikacji oraz analizy acetylacji histonów.
5. Ilościowe oznaczenie elowanych białek histonowych
- Użyć spektrofotometru zgodnie z protokołem producenta w celu ilościowego oznaczenia całkowitej zawartości białek histonowych otrzymanych po końcowej elucji w kroku 4.15. Zmierzyć absorbancję przy 230 nm. Zapisać stosunek A260/A280 wskazujący na zanieczyszczenie próbki kwasami nukleinowymi.
- Do obliczenia stężenia histonów (x) zastosować następujący wzór:
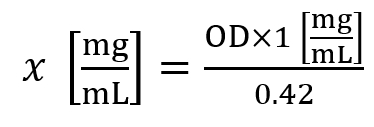
Gdzie OD to gęstość optyczna zmierzona przy A230 nm. - Stężenie histonów na poziomie ~1,5 mg/mL uznaje się za średnią wydajność dla linii komórkowych, natomiast stężenie histonów na poziomie ~5,0 mg/mL uznaje się za średnią wydajność dla 30 mg tkanki.
6. Analiza Western blot
- Dostosować ilość oczyszczonych i eluowanych histonów z kroku 4.15 do poziomu ~10 µg białka histonowego na próbkę.
- Dodać odpowiednią objętość wody oraz 4x buforu do próbek Laemmli, aby dostosować objętości nakładania.
- Denaturować próbki przez 10 min w temperaturze 99 °C. Schłodzić je na lodzie. Wirować przez 3 s, aby zebrać cały pozostały płyn i kondensat ze ścianek probówki.
- Nakładać próbki na żel SDS-PAGE i prowadzić elektroforezę przez 1 h przy napięciu 100 V.
- Aby zwizualizować całkowitą ilość białka histonowego, barwić żel przez noc roztworem barwiącym Coomassie Brilliant Blue R-250, a następnie odbarwić podczas trzech kolejnych przemywań (1 h/przemywanie) roztworem odbarwiającym Coomassie Brilliant Blue R-250.
UWAGA: Pierwsza elucja białek histonowych zawiera histony wysokiej jakości (Rycina 5A), podczas gdy druga elucja zawiera niskie poziomy histonów lub nie zawiera ich wcale (Rycina 5B). - Aby skwantyfikować PTM histonów, użyć systemu transferu (patrz Tabela materiałów), aby przenieść białko histonowe z żelu SDS-PAGE (krok 6.4) na membranę PVDF.
- Aby złożyć kanapkę transferową, otworzyć kasetę systemu transferu i umieścić stos membrany PVDF (oznaczony jako Bottom+) na dnie kasety membraną do góry. Delikatnie przeturlać membranę wałkiem do blotowania, aby usunąć powietrze spośród elementów stosu i membrany.
- Położyć żel na membranie, delikatnie przeturlać żel wałkiem do blotowania, aby usunąć powietrze spośród membrany i żelu, a następnie położyć górny stos na żelu. Ponownie delikatnie przeturlać, nałożyć pokrywę kasety na kanapkę, mocno docisnąć i przekręcić pokrętło zgodnie z ruchem wskazówek zegara, aby zablokować.
- Wsunąć kasetę do gniazda systemu transferu. Na ekranie urządzenia wybrać Turbo Protocol. Zastosować 3-minutowy protokół dla pojedynczego miniżelu lub 7-minutowy protokół dla więcej niż dwóch miniżeli.
- Barwić membranę barwnikiem Ponceau S przez 5 min i zwizualizować całkowitą ilość białek histonowych.
- Przemywać je w 1x buforze solnym z Tris (TBS) z 0,1% Tween 20 przez 2 h, a następnie blokować w 5% mleku przez 1 h. Inkubować z przeciwciałem pierwotnym i wtórnym (odpowiednio przez noc w 4 °C lub przez 1 h w RT) lub zgodnie z wcześniej zoptymalizowanym protokołem.
UWAGA: W niniejszym protokole zastosowano przeciwciała przeciwko acetylowanym histonom H4K12 (Rycina 6 i Rycina 7) oraz H3K27 (Rycina 8).
Wyniki
Aby zilustrować przebieg protokołu oczyszczania histonów oraz skład wszystkich analizowanych frakcji, oceniono różne ekstrakty histonowe z ludzkich komórek mikrogleju BV2. W celu zademonstrowania ilościowego oznaczenia PTM histonów H3 i H4 (i.e., acetylacji), wykorzystano lizaty tkanki mózgowej.
Komórki BV2 wysiano w liczbie 5 x 10⁶ komórek na płytkę w 10 cm płytkach hodowlanych traktowanych do hodowli tkanek i pozostawiono do osiągnięcia pełnej konfluencji przez 48 h. Następnie zebrano komórki, a histony uwolniono z chromatyny poprzez inkubację w buforze ekstrakcyjnym zawierającym 0,4 M kwasu siarkowego, 1 mM KCl, 1 mM MgCl2, 50 mM Tris-HCl (pH 8.0) oraz 1x inhibitor proteaz. Czas ekstrakcji, wynoszący od 15 min do 24 h, nie wpłynął na ogólny skład surowych ekstraktów histonowych, co określono za pomocą barwienia Coomassie Brilliant Blue (Rycina 2). Następnie surowe histony przepuszczono przez równoważone kolumny do histonów i przeanalizowano frakcję niezatrzymaną. Wysoką wydajność wiązania do kolumny stwierdza się na podstawie braku białek histonowych we frakcji niezatrzymanej podczas analizy barwieniem Coomassie Brilliant Blue. Ustaliliśmy, że wydajność wiązania do kolumny wyniosła 100%, ponieważ w analizowanej frakcji niezatrzymanej nie stwierdzono obecności białek histonowych (Rycina 3). Wszystkie membrany z związanymi histonami przemyto następnie trzy razy buforem piorącym, aby usunąć pozostałe zanieczyszczenia, pozostawiając jedynie białka histonowe związane z żelem krzemionkowym. Stwierdziliśmy, że dla wszystkich czasów ekstrakcji histonów (i.e., 15 min, 2 h i 24 h) pierwsze przemycie membrany było najważniejsze dla usunięcia zanieczyszczeń niehistonowych z kolumn, podczas gdy drugie i trzecie przemycie nie wpływały na czystość próbki. Zatem, w zależności od rodzaju próbki, dwa ostatnie przemycia można pominąć. Po pierwszej elucji białek histonowych z kolumny (przy użyciu buforu elucyjnego zawierającego 1mM NaCl i EDTA), histony wytrącono przez noc z użyciem 4% kwasu nadchlorowego, a następnie odwirowano, przemyto i przeanalizowano pod kątem wzbogacenia w oczyszczone histony H3 i H4. Zaobserwowaliśmy, że 24 h czasu ekstrakcji zwiększa ilość histonów H3 i H4 w oczyszczonej frakcji w porównaniu do czasu ekstrakcji wynoszącego 15 min i 2 h (Rycina 5A). Druga elucja z kolumny nie pozwoliła na uzyskanie histonów wysokiej jakości ani w wysokiej ilości (Rycina 5B).
Następnie wykorzystano homogenaty tkanki mózgowej do ilościowego oznaczenia modyfikacji potranslacyjnych (PTM) histonów H3 i H4, a konkretnie acetylacji. Samcom myszom typu dzikiego (C57BL6/J) podawano doustnie szeroko działający inhibitor HDAC (tributryrynę) w dawce 5 g/kg przez 3 dni. W 4. dniu pobrano tkankę całego mózgu i wyekstrahowano surowe histony zgodnie z opisanym protokołem. Za pomocą nieparzystego testu t ustalono, że tributryryna zwiększa acetylację histonów w surowym ekstrakcie (t(6) = 6,184, P = 0,0004); jednak w ekstrakcie wykryto zanieczyszczenia (prążki histonów nie są wyraźnie zdefiniowane). Zatem przeciwciało H4K12ac nie wykazuje wysokiej swoistości (Rysunek 6). Aby dalej ocenić możliwości zastosowania przedstawionego protokołu w przypadku mniejszych sekcji tkanki, pobrano korę przedczołową od potrójnie transgenicznych myszy z chorobą Alzheimera (3 x Tg-AD), którym codziennie przez cztery miesiące podawano 10 mg/kg M344, inhibitora HDAC klasy I i IIb. Oczyszczanie i precypitacja histonów zostały wykonane zgodnie z opisanym tutaj protokołem. Wykorzystując oczyszczoną frakcję histonów H3 i H4, ustalono, że M344 zwiększa acetylację H4K12 2,4-krotnie (t(6) = 13,03, P < 0,0001), przy wysokiej swoistości przeciwciała H4K12ac (Rysunek 7). Podobnie zaobserwowano wzrost acetylacji histonu H3 w komórkach BV2 w odpowiedzi na inny inhibitor HDAC, a mianowicie selektywny inhibitor HDAC3, RGFP-966. Stężenie 10 µM RGFP-966 powoduje około dwukrotny wzrost acetylacji w histonie H3K27 po 24 h traktowania. Do porównania komórek kontrolnych versus traktowanych wykorzystano nieparzysty test t Studenta.
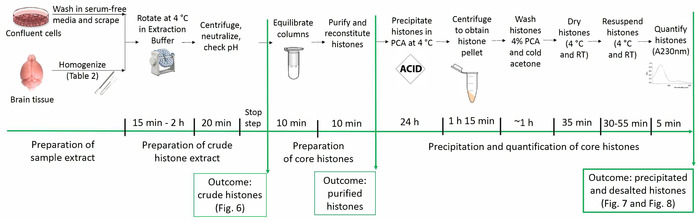
Rycina 1: Harmonogram protokołu oczyszczania histonów. Wszystkie etapy analizy histonów przedstawiono poniżej wraz z szacowanym czasem potrzebnym na każdy krok. W nawiasach odwołano się do rycin przedstawiających wyniki poszczególnych etapów, które znajdują się w tekście artykułu. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 2: Reprezentatywny żel barwiony Coomassie Brilliant Blue obrazujący surowe histony ekstrahowane z komórek BV2. Komórki BV2 hodowano przez 48 h przed rozpoczęciem protokołu ekstrakcji histonów. Surowe histony ekstrahowano przez 15 min, 2 h i 24 h, wykonując trzy powtórzenia dla każdego punktu czasowego (dotyczy to również Ryciny 3, Ryciny 4 oraz Ryciny 5). W surowym ekstrakcie histonowym obecne są zarówno białka niehistonowe, jak i histony. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 3: Reprezentatywny żel barwiony Coomassie Brilliant Blue, prezentujący frakcję przepływową z kolumny po etapach oczyszczania histonów z komórek BV2. Po przepuszczeniu surowego ekstraktu histonowego przez kolumnę wiążącą histony, w frakcji przepływowej obecne są jedynie białka niehistonowe. Białka histonowe nie występują w tej frakcji. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
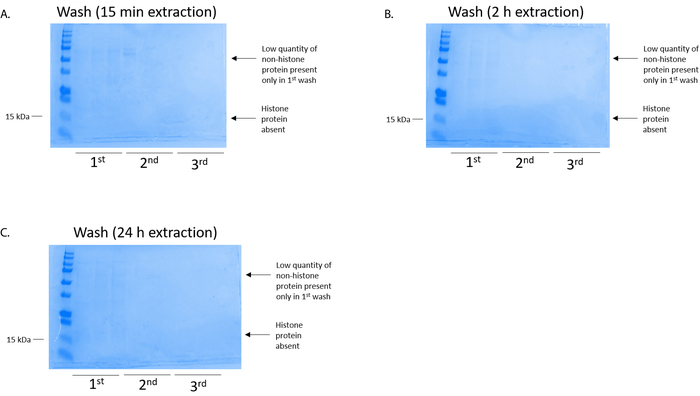
Rycina 4: Reprezentatywny żel barwiony Coomassie Brilliant Blue przedstawiający płukanie kolumny po etapie oczyszczania histonów z komórek BV2. Niezależnie od czasu ekstrakcji histonów, który wynosił (A) 15 min, (B) 2 h lub (C) 24 h, niskie ilości białek niehistonowych występowały jedynie w pierwszym płukaniu kolumny wiążącej histony. Białka histonowe nie wystąpiły w żadnym z płukań. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.

Rysunek 5: Reprezentatywny żel barwiony Coomassie Brilliant Blue przedstawiający elucje po etapie oczyszczania histonów z komórek BV2. (A) Wysokiej jakości oczyszczone i odsolone histony H3 i H4 zostały wykryte po pierwszej elucji z kolumny do oczyszczania histonów. (B) Druga elucja z kolumny do oczyszczania histonów nie dostarczyła wysokiej jakości ani ilości histonów H3 lub H4. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
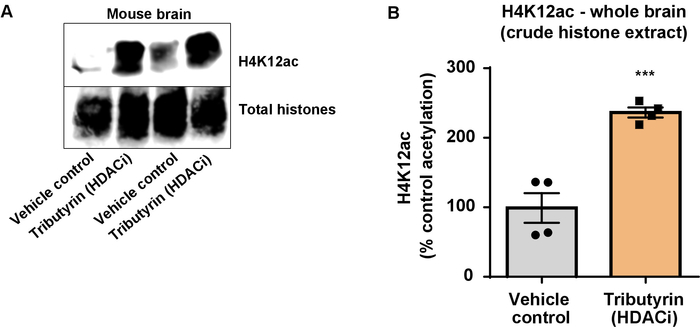
Rycina 6: Szeroko działający inhibitor HDAC, tributryryna, zwiększa acetylację H4K12 w całym mózgu myszy typu dzikiego. (A) Ten panel przedstawia reprezentatywny western blot obrazujący wzrost acetylacji H4K12 w surowym ekstrakcie histonowym pobranym z całego mózgu myszy typu dzikiego w odpowiedzi na szeroko działający inhibitor HDAC, tributryrynę. (B) Ten panel przedstawia kwantyfikację wzrostu acetylacji H4K12 in vivo. Do porównania grup zastosowano nieparzysty test t (t(6) = 6.076, P = 0.0005). Słupki reprezentują średnią ± błąd standardowy średniej (SEM). N = 8. ***P < 0.0001. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
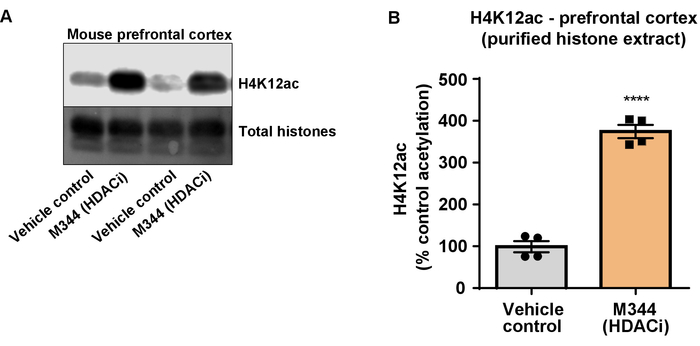
Rysunek 7: Inhibitor HDAC klasy I i IIb, M344, zwiększa acetylację H4K12 w korze przedczołowej potrójnie transgenicznych myszy z chorobą Alzheimera (3 x Tg-AD). (A) Ten panel przedstawia reprezentatywny western blot obrazujący wzrost acetylacji H4K12 w oczyszczonym i odsolonym ekstrakcie histonowym pobranym z kory przedczołowej myszy 3 x Tg-AD w odpowiedzi na inhibicję HDAC przez M344. (B) Ten panel przedstawia kwantyfikację wzrostu acetylacji H4K12 w odpowiedzi na M344 podawany w dziennej dawce 10 mg/kg przez cztery miesiące. Do porównania grup wykorzystano nieparzysty test t (t(6) = 13.30, P < 0.0001). Słupki reprezentują średnią ± SEM. N = 8. ****P < 0.00001. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
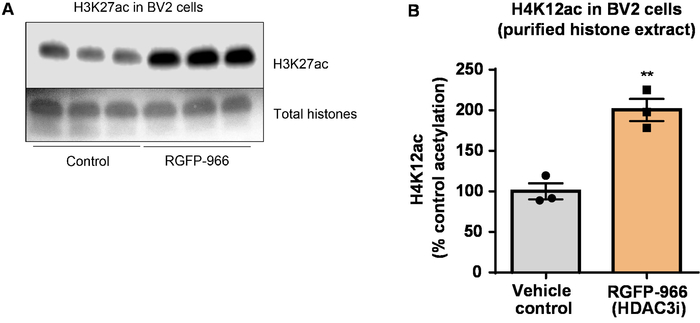
Rycina 8: Selektywny inhibitor HDAC3, RGFP-966, zwiększa acetylację H3K27 w mikroglialnych komórkach BV2. (A) Ten panel przedstawia reprezentatywny Western blot obrazujący wzrost acetylacji H3K27 w oczyszczonym i odsolonym ekstrakcie histonów pobranym z komórek BV2 w odpowiedzi na inhibicję HDAC3 przez RGFP-966. (B) RGFP-966 powoduje około dwukrotny wzrost acetylacji histonu H3 w lizynie (K) 27 po 24 h traktowania. Do porównania komórek kontrolnych versus traktowanych zastosowano nieparzysty test t (t(4) = 5.981, P = 0.002). Słupki reprezentują średnią ± SEM. N = 6. **P < 0.01. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Reprezentatywna tkanka (jedna półkula) * | Średnia masa tkanki (mg) | Bufor do ekstrakcji (ml) | Liczba pociągnięć |
| Móżdżek mysi | 40 | 1 | 40 |
| Kora przedczołowa myszy | 30 | 0.3 | 20 |
| Hipokamp myszy | 27 | 0.3 | 18 |
| Kora entorynalna myszy | 19 | 0.3 | 17 |
| * Wszystkie eksperymenty przeprowadzono na dorosłych samcach myszy. | |||
| Średni wiek: 16 miesięcy. Średnia masa ciała: 30 gramów. | |||
Tabela 1: Zoptymalizowane warunki homogenizacji tkanki mózgowej.
Dyskusja
W obecnej pracy zademonstrowaliśmy zoptymalizowaną metodę oczyszczania podstawowych białek histonowych i ilościowego oznaczania histonów H3 i H4 PTM (np. Acetylacja). Prezentowany protokół jest kompleksowym przepływem pracy, który obejmuje zoptymalizowane procedury dotyczące przygotowania komórek i tkanek mózgowych, surowego oczyszczania histonów oraz szczegółowego wytrącania, elucji i kwantyfikacji histonów, po których następuje elektroforeza histonów i solidna kwantyfikacja histonów PTM. Duża ilość dostarczonych tutaj szczegółów pozwala na powtarzalne generowanie wysokiej jakości danych, pomimo konieczności długotrwałych manipulacji próbkami histonów.
Wiele obecnie publikowanych protokołów wymaga użycia HPLC do wyizolowania czystych frakcji histonów H3 i H419. Chociaż HPLC jest potężną techniką, jej złożoność i niska przepustowość odstraszają większość biologów molekularnych i laików od jej częstego stosowania. Rzeczywiście, HPLC nie jest dostępny dla wielu laboratoriów, a do obsługi urządzenia wymagany jest wysoko wykwalifikowany personel. HPLC jest często czasochłonna, kosztowna i potencjalnie niebezpieczna. Przedstawiono tutaj niedrogą, średnioprzepustową strategię osiągania wyników o podobnej jakości, która omija HPLC. Opisana strategia jest również bardziej praktyczna i nadaje się do stosowania w prawie każdym laboratorium, ponieważ wykorzystuje proste podejście do kolumny wirowej, które nie wymaga specjalistycznych umiejętności obsługi instrumentu. Dodatkowo tetramer histonu H3/H4 jest ekstrahowany jako pojedyncza, czysta i obfita frakcja, co umożliwia wiarygodne określenie ilościowe zachowanych PTM na każdym z białek.
PTM są niezwykle wrażliwe na zmiany stresu oksydacyjnego i zmiany pH20,21. Tak więc, w przeciwieństwie do poprzednio opublikowanych metod18, donosimy o skutecznej strategii płukania komórek w pożywkach wolnych od surowicy, aby zapewnić minimalne zaburzenia metaboliczne komórek i uniknąć interferencji natywnych PTM ze składnikami surowicy. Obecny protokół nie tylko omija tradycyjną izolację jąder, ale także zapewnia optymalne czasy lizy komórek i dokładną procedurę homogenizacji tkanek, która pozwala na zachowanie otoczki jądrowej przy jednoczesnym uniknięciu agregacji jądrowej. Chociaż czasem ekstrakcji można manipulować w zależności od liczby komórek, typu użytej komórki, wielkości tkanki itp., Przedłużona liza nie jest pożądana, ponieważ może prowadzić do lizy jąder i uwolnienia DNA, co utrudnia obróbkę próbki. Co ważne, w protokole istnieje wiele punktów kontrolnych służących do walidacji udanego oczyszczania histonów (np. kroki 2.7 i 3.2.3). Ta strategia ułatwia również rozwiązywanie problemów w trakcie całej długotrwałej procedury.
Kolejną ważną i unikalną cechą prezentowanego protokołu jest jego pełna kompatybilność z dalszymi narzędziami do analizy western blot i innymi, jeśli jest to pożądane. Białka histonowe są wykrywane na poziomie ~15 kDa 13,22,23 i, podobnie jak inne białka o małej masie cząsteczkowej, okazały się trudne do wykrycia za pomocą standardowych technik immunoblottingu. Zastosowanie wysokowydajnego i wysokoprzepustowego systemu transferu w połączeniu z żelami białkowymi o optymalnej rozdzielczości pozwala na utrzymanie potwierdzenia natywnego białka (przy braku SDS) i aktywności przy braku SDS oraz wysoką wydajność transferu białek histonowych o niskiej masie cząsteczkowej, zapewniając w ten sposób wiarygodną kwantyfikację histonów PTM.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy wyrażają swoją wdzięczność Departamentowi Zdrowia Florydy Ed and Ethel Moore's Alzheimer's Research Program (granty 6AZ08 i 7AZ26), NIH-NIAAA (grant 5R01AA023781-03) oraz American Heart Association (grant 17PRE33660831).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 1,5 ml probówki do mikrowirówek | ThermoFiser Scientific | 05-408-129 | lub równoważne z innych źródeł |
| Sterylna woda | Gibco | 15-230-204 | lub równoważna z innych źródeł |
| 70% kwas nadchlorowy | Sigma Aldrich | 311421 | lub równoważny z innych źródeł |
| 100% aceton | Sigma Aldrich | 270725 | lub równoważny z innych źródeł |
| Paski wskaźnika pH, niekrwawiące | Milliipore Sigma | 1095310001 | |
| 4x bufor do próbek SDS | BIO-RAD | 161-0747 | |
| Rotor stołowy | Cole-Parmer | UX-04397-34 | lub odpowiednik z innych źródeł |
| Stojak na probówki 1,5 ml | ThermoFiser Scientific | 05-541 | lub odpowiednik z innych źródeł |
| Mini zestaw | do oczyszczania histonówKolumny wirowe Active Motif | 40026 | zawarte w zestawie |
| Koktajl inhibitorów proteazy | ThermoFiser Scientific | 78430 | lub odpowiednik z innych źródeł |
| Przyrząd do nanokropli | ThermoFiser Scientific | ND-2000 | |
| Szalki do hodowli tkankowych | VWR | 10062-880 | wymagane do ekstrakcji histonów z hodowanych komórek |
| Pożywki tkankowe | są różne w zależności od użytej linii komórkowej | różni się w zależności od użytej linii komórkowej | wymaganej do ekstrakcji histonów z hodowanych komórek |
| Pożywka o niskiej zawartości surowicy | ThermoFiser Scientific | 51985091 | wymagany do ekstrakcji histonów z hodowanych komórek |
| Skrobak do komórek z tworzywa sztucznego Falcon | 353086 | wymagany do ekstrakcji histonów z hodowanych komórek | |
| Żel gradientowy SDS-PAGE | BIO-RAD | 456-9035 | wymagany do ekstrakcji histonów z hodowanych komórek |
| Coomassie Brilliant Blue R-250 Roztwór barwiący | BIO-RAD | 1610436 | wymagany do ekstrakcji histonów z hodowanych komórek |
| Coomassie Brilliant Blue R-250 Roztwór odbarwiający | BIO-RAD | 1610438 | wymagany do ekstrakcji histonów z hodowanych komórek |
| Zestawy transferowe Trans-Blot Turbo Mini PVDF | BIO-RAD | 1704156 | wymagany do ekstrakcji histonów z hodowanych komórek |
| Turbotransferu Trans-Blot | RIO-RAD | 1704150 | wymagany do ekstrakcji histonów z hodowanych komórek |
| Barwienie Pąsem | CellSignalling | 59803S | wymagane do ekstrakcji histonów z hodowanych komórek |
| Homogenizator Dounce (rozmiar/nakrętka sc 7mL) z małym luzem | Kimble Chase | 885302-0007 | wymagany dla histonu ekstrakcja z tkanek |
| 100% wybielacz | Clorox | 68973 | wymagany do ekstrakcji histonów z tkanek Przeciwciało |
| H4K12ac | Aktywny motyw | 39166 | wymagany do oznaczania ilościowego PTM za pomocą WB |
| Przeciwciało H3K27ac | Aktywny motyw | 39134 | wymagany do kwantyfikacji PTM za pomocą WB |
Bibliografia
- Holliday, R. Is there an Epigenetic Component in Long-term Memory? Journal of Theoretical Biology. 200, 339-341 (1999).
- DeWoskin, V. A., Million, R. P. The epigenetics pipeline. Nature Reviews Drug Discovery. 12, 661-662 (2013).
- Eberharter, A., Becker, P. B. Histone acetylation: a switch between repressive and permissive chromatin. EMBO Reports. 3, 224-229 (2002).
- Grunstein, M. Histone acetylation in chromatin structure and transcription. Nature. 389, 349-352 (1997).
- Sartor, G. C., Powell, S. K., Brothers, S. P., Wahlestedt, C. Epigenetic Readers of Lysine Acetylation Regulate Cocaine-Induced Plasticity. The Journal of Neuroscience. 35, 15062-15072 (2015).
- Komatsu, N., et al. SAHA, a HDAC inhibitor, has profound anti-growth activity against non-small cell lung cancer cells. Oncology Reports. 15, 187-191 (2006).
- Bahari-Javan, S., Sananbenesi, F., Fischer, A. Histone-acetylation: a link between Alzheimer's disease and post-traumatic stress disorder. Frontiers in Neuroscience. 8, 160(2014).
- Roh, T. -Y., Cuddapah, S., Zhao, K. Active chromatin domains are defined by acetylation islands revealed by genome-wide mapping. Genes & Development. 19, 542-552 (2005).
- Mutskov, V., Felsenfeld, G. Silencing of transgene transcription precedes methylation of promoter DNA and histone H3 lysine 9. The EMBO Journal. 23, 138-149 (2004).
- Howe, L., Brown, C. E., Lechner, T., Workman, J. L. Histone acetyltransferase complexes and their link to transcription. Critical Reviews in Eukaryotic Gene Expression. 9, 231-243 (1999).
- Jenuwein, T., Allis, C. D. Translating the histone code. Science. 293, 1074-1080 (2001).
- Bowman, G. D., Poirier, M. G. Post-Translational Modifications of Histones That Influence Nucleosome Dynamics. Chemical Reviews. 115, 2274-2295 (2015).
- Volmar, C. -H., Wahlestedt, C. Histone deacetylases (HDACs) and brain function. Neuroepigenetics. 1, 20-27 (2015).
- Plagg, B., Ehrlich, D., Kniewallner, K. M., Marksteiner, J., Humpel, C. Increased Acetylation of Histone H4 at Lysine 12 (H4K12) in Monocytes of Transgenic Alzheimer's Mice and in Human Patients. Current Alzheimer Research. 12, 752-760 (2015).
- Bhaskara, S., et al. Hdac3 is essential for the maintenance of chromatin structure and genome stability. Cancer Cell. 18, 436-447 (2010).
- Mottamal, M., Zheng, S., Huang, T. L., Wang, G. Histone Deacetylase Inhibitors in Clinical Studies as Templates for New Anticancer Agents. Molecules. 20, 3898-3941 (2015).
- Ramakrishnan, S., et al. HDAC 1 and 6 modulate cell invasion and migration in clear cell renal cell carcinoma. BMC Cancer. 16, 617(2016).
- Wapenaar, H., Dekker, F. J. Histone acetyltransferases: challenges in targeting bi-substrate enzymes. Clinical Epigenetics. 8, 59(2016).
- Klinker, H., Haas, C., Harrer, N., Becker, P. B., Mueller-Planitz, F. Rapid Purification of Recombinant Histones. PLoS ONE. 9, e104029(2014).
- Chen, K., et al. Neurodegenerative Disease Proteinopathies Are Connected to Distinct Histone Post-translational Modification Landscapes. ACS Chemical Neuroscience. 9, 838-848 (2018).
- Simithy, J., Sidoli, S., Garcia, B. A. Integrating Proteomics and Targeted Metabolomics to Understand Global Changes in Histone Modifications. Proteomics. , e1700309 (2018).
- Volmar, C. -H., et al. An Epigenetic Approach for the Modulation of Amyloid Precursor Protein (APP) Processing and Improvement of Memory in Alzheimer's Disease. Neuropsychopharmacology: official publication of the American College of Neuropsychopharmacology. 40, S470(2015).
- Volmar, C. -H., et al. M344 promotes nonamyloidogenic amyloid precursor protein processing while normalizing Alzheimer’s disease genes and improving memory. Proceedings of the National Academy of Sciences. 114 (43), E9135-E9144 (2017).
Przedruki i uprawnienia
