Opisany jest protokół rozwoju populacji Indukowanych Miejscowych Zmian Chorobowych (TILLING) w małych uprawach zbóż z użyciem metanosulfonianu etylu (EMS) jako mutagenu. Podano również protokół wykrywania mutacji za pomocą testu Cel-1.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Opracowanie ukierunkowanych populacji indukowanych miejscowymi zmianami chorobowymi w genomach (TILLING) w małych uprawach zbóż metodą mutagenezy metanosulfonianu etylu
W tym artykule
Podsumowanie
Streszczenie
Targeting Induced Local Lesions IN Genomes (TILLING) to potężne narzędzie genetyki odwrotnej, które obejmuje mutagenezę chemiczną i wykrywanie zmienności sekwencji w genach docelowych. TILLING jest bardzo cennym narzędziem genomiki funkcjonalnej do walidacji genów, zwłaszcza w przypadku małych ziaren, w których podejścia oparte na transformacji mają poważne ograniczenia. Opracowanie silnej, zmutagenizowanej populacji ma kluczowe znaczenie dla określenia skuteczności badania walidacji genów opartego na projekcie TILLING. Populacja TILLING o niskiej ogólnej częstości mutacji wskazuje, że niepraktycznie duża populacja musi zostać poddana badaniom przesiewowym w celu znalezienia pożądanych mutacji, podczas gdy wysokie stężenie mutagenu prowadzi do wysokiej śmiertelności w populacji, co prowadzi do niewystarczającej liczby mutagenizowanych osobników. Po opracowaniu efektywnej populacji istnieje wiele sposobów wykrywania mutacji w genie będącym przedmiotem zainteresowania, a wybór platformy zależy od skali eksperymentu i dostępności zasobów. Test Cel-1 i podejście oparte na żelu agarozowym do identyfikacji mutantów jest wygodną, powtarzalną i mniej zasobożerną platformą. Jest to korzystne, ponieważ jest proste, nie wymaga wiedzy obliczeniowej i szczególnie nadaje się do walidacji niewielkiej liczby genów za pomocą podstawowego sprzętu laboratoryjnego. W niniejszym artykule opisano metody rozwoju dobrej populacji TILLING, w tym przygotowanie krzywej dawkowania, mutagenezę i utrzymanie populacji mutantów oraz badania przesiewowe populacji mutantów za pomocą testu Cel-1 opartego na PCR.
Wprowadzenie
Punktowe mutacje w genomach mogą służyć wielu użytecznym celom dla badaczy. W zależności od ich charakteru i lokalizacji, mutacje te mogą być wykorzystywane do przypisywania funkcji genom lub nawet odrębnym domenom białek będących przedmiotem zainteresowania. Z drugiej strony, jako źródło nowej zmienności genetycznej, użyteczne mutacje mogą być wybierane pod kątem pożądanych cech za pomocą badań przesiewowych fenotypowania i dalej wykorzystywane w ulepszaniu upraw. TILLING to potężne narzędzie genetyki odwrotnej, które obejmuje mutagenezę chemiczną i wykrywanie zmienności sekwencji w genie docelowym. Po raz pierwszy opracowane w Arabidopsis1 i Drosophilia melanogaster2, populacje TILLING zostały opracowane i wykorzystane w wielu małych uprawach zbóż, takich jak heksaploidalna pszenica chlebowa (Triticum aestivum)3, jęczmień (Hordeum vulgare)4, tetraploidalna pszenica durum (T. dicoccoides durum)5, pszenica diploidalna (T. monococcum)6 i przodek genomu "D" pszenicy Aegilops tauschii7. Zasoby te zostały wykorzystane do walidacji roli genów w regulacji tolerancji na stres abiotyczny i biotyczny8, regulacji czasu kwitnienia9 oraz rozwoju odmian roślin uprawnych o wysokiej jakości odżywczej5.
TILLING, wraz z użyciem alkilujących środków mutagennych, takich jak metanosulfonian etylu (EMS), azydek sodu, N-metylo-N-nitrozourea (MNU) i metanosulfonian metylu (MMS), ma przewagę nad innymi narzędziami genetyki odwrotnej z kilku powodów. Po pierwsze, mutagenezę można przeprowadzić na praktycznie każdym gatunku lub odmianie roślin10 i jest niezależna od wąskiego gardła transformacji, co jest szczególnie trudne w przypadku małych ziaren11. Po drugie, oprócz generowania mutacji nokautujących, które można uzyskać za pomocą innych podejść do walidacji genów, można indukować szereg mutacji typu missense i splicing , które mogą rozpoznać funkcje poszczególnych domen białek będących przedmiotem zainteresowania12. Co więcej, TILLING generuje nieśmiertelną kolekcję mutacji w całym genomie; W ten sposób pojedyncza populacja może być wykorzystana do funkcjonalnej walidacji wielu genów. W przeciwieństwie do tego, inne narzędzia genetyki odwrotnej generują zasoby specyficzne tylko dla badanego genu13. Użyteczne mutacje zidentyfikowane w ramach projektu TILLING mogą być wykorzystywane do celów hodowlanych i nie podlegają regulacji, w przeciwieństwie do edycji genów, której klasyfikacja nietransgeniczna jest nadal niepewna w wielu krajach. Jest to szczególnie istotne w przypadku małych ziaren, które są przedmiotem handlu międzynarodowego14.
TILLING to prosta i skuteczna strategia walidacji genów, która wymaga opracowania mutagenizowanych populacji do badania interesujących genów. Opracowanie skutecznej mutagenizowanej populacji jest kluczem do określenia skuteczności badania walidacji genów opartego na TILLING. Populacja TILLING o niskiej ogólnej częstości mutacji wskazuje, że niepraktycznie duża populacja musi zostać przebadana pod kątem pożądanych mutacji, podczas gdy wysokie stężenie mutagenu prowadzi do wysokiej śmiertelności w populacji i niewystarczającej liczby mutagenizowanych osobników. Po rozwinięciu dobrej populacji istnieje wiele sposobów wykrywania mutacji w genach będących przedmiotem zainteresowania, a wybór platformy zależy od skali eksperymentu i dostępności zasobów. Sekwencjonowanie całego genomu i sekwencjonowanie egzomu zostało wykorzystane do scharakteryzowania wszystkich mutacji w populacjach TILLING u roślin o małych genomach15,16. Sekwencjonowanie egzomu dwóch populacji TILLING zostało przeprowadzone w chlebie i pszenicy durum i jest dostępne publicznie w celu identyfikacji pożądanych mutacji i uporządkowania zmutowanych linii zainteresowania17. Jest to wielki zasób publiczny pod względem dostępności pożądanych mutacji; Jednak w badaniach walidacji genów linia typu dzikiego powinna posiadać gen kandydujący będący przedmiotem zainteresowania. Niestety, sekwencjonowanie egzomu całej populacji TILLING w celu odwrotnej walidacji genetycznej kilku genów kandydujących na innym tle jest nadal zbyt kosztowne. Sekwencjonowanie amplikonów i testy oparte na Cel-1 zostały wykorzystane do wykrywania mutacji w docelowych populacjach pszenicy, a testy Cel-1 są prostsze, nie wymagają wiedzy obliczeniowej i są szczególnie odpowiednie do walidacji niewielkiej liczby genów za pomocą podstawowego sprzętu laboratoryjnego6,18.
W niniejszym artykule opisane są metody rozwoju dobrej populacji TILLING, w tym przygotowanie krzywej dawkowania, mutageneza i utrzymanie populacji mutantów oraz badania przesiewowe populacji mutantów za pomocą testu Cel-1 opartego na PCR. Protokół ten został już z powodzeniem wdrożony w rozwoju i wykorzystaniu mutagenizowanych populacji Triticum aestivum, Triticum monoccocum6, jęczmienia, Aegilops tauchii7 i kilku innych. Zamieszczono szczegółowe informacje na temat tych metod wraz z przydatnymi wskazówkami, które pomogą naukowcom opracować populacje TILLING, wykorzystując EMS jako mutagen w dowolnej roślinie o małym zbożu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie krzywej dawkowania dla efektywnej mutogenezy
- Namocz 100 nasion o interesującym genotypie w sześciu szklanych kolbach o pojemności 250 ml (po 100 w każdej kolbie) zawierających 50 ml wody destylowanej. Inkubuj w wytrząsarce przy 10 obr./min przez 8 h w temperaturze pokojowej (RT) w celu imbibicji nasion.
- W dygestorium przygotować po 50 ml roztworów etylo-metanosulfonianu (EMS) o stężeniach 0,4%, 0,6%, 0,8%, 1,0% i 1,2% (w/v), rozpuszczając odpowiednio 0,167, 0,249, 0,31, 0,415 i 0,498 ml EMS w wodzie destylowanej.
UWAGA: EMS w temperaturze pokojowej jest cieczą o gęstości 1,206 g/ml.
OSTRZEŻENIE: Podczas pracy z EMS należy stosować odpowiednie środki ochrony indywidualnej (ŚOI). - Zlej wodę z pięciu kolb i dodaj do każdej z nich, zawierającej namoczone nasiona, 50 ml roztworu EMS, tak aby uzyskać sześć różnych wariantów z roztworami EMS o stężeniach 0,0%, 0,4%, 0,6%, 0,8%, 1,0% i 1,2%. Wstrząsaj kolby przez 16 h przy 75 obr./min w temperaturze pokojowej.
- Zlej roztwór EMS i zbierz potraktowane nasiona osobno dla każdej serii za pomocą gazy. Zneutralizuj zużyty roztwór EMS, dodając taką samą objętość roztworu neutralizującego EMS (0,1 M NaOH, 20% m/v Na2S2O3przez 24 h. Należy również poddać działaniu roztworu dezaktywującego EMS zanieczyszczone kolby oraz końcówki do pipet przez 24 h.
- Płukać nasiona traktowane EMS pod bieżącą wodą z kranu przez 2 h. Przesadzić każde nasiono indywidualnie do trenerów korzeniowych zawierających ziemię do doniczek.
- Hodować rośliny w temperaturze 20–25 °C przy 16-godzinnym okresie naświetlania.
- Zapisz dane dotyczące przeżywalności roślin po 15 dniach od przesadzenia. Użyj następującego równania, aby obliczyć wskaźnik przeżywalności dla każdego wariantu badawczego:
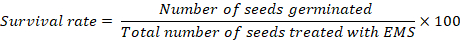
UWAGA: Jeśli w próbkach kontrolnych wskaźnik kiełkowania jest niższy niż 10%, dokładne wskaźniki przeżywalności dla wszystkich wariantów doświadczalnych należy obliczyć po odjęciu liczby nasion, które nie wykiełkowały w kontroli. Dla efektywnej mutogenezy pożądany jest wskaźnik przeżywalności na poziomie 40%–60%. Może być konieczne przeprowadzenie drugiej rundy optymalizacji dawkowania z zastosowaniem zmodyfikowanego stężenia, w zależności od przeżywalności nasion poddanych działaniu czynnika, aż do osiągnięcia pożądanej śmiertelności rzędu 40%–60%.
2. Mutageneza i utrzymanie populacji mutantów
- Namocz ostatnią partię co najmniej 3 00 nasion, dzieląc je po równo (po 60 nasion) do pięciu kolb o pojemności 1 0 mL zawierających 30 mL wody destylowanej. Wstrząsaj przez 8 h przy 10 rpm w RT w celu imbibicji.
UWAGA: Końcowa liczebność pożądanej populacji będzie zależeć od częstotliwości mutacji i poziomu ploidalności genotypu, jednak zaleca się użycie co najmniej 3 0 nasion dla heksaploidów, 4 00 nasion dla tetraploidów i ponad 7 0 nasion dla diploidów. - W dygestorium przygotuj 1 50 mL roztworu EMS o zoptymalizowanym stężeniu w wodzie destylowanej.
- Zlej wodę z kolb i dodaj po 300 ml roztworu EMS o optymalnym stężeniu do każdej kolby zawierającej 60 imbibowanych nasion. Wstrząsaj kolby przez 16 h przy 75 rpm w RT.
- Zlej EMS i zbierz potraktowane nasiona na gazie. Zneutralizuj roztwór EMS oraz naczynia użyte do zabiegu za pomocą roztworu dezaktywującego EMS, zgodnie z procedurą opisaną w kroku 1.4.
- Myj nasiona potraktowane EMS pod bieżącą wodą z kranu przez 2 h. Przesadź każde nasiono M1 potraktowane EMS pojedynczo do trenerów korzeni.
- Hoduj rośliny M1 (pochodzące z nasion M0) w temperaturze 20–25 °C przy 16-godzinnym okresie naświetlania.
UWAGA: Może być wymagana wernalizacja siewek w stadium dwóch liści przez 6 tygodni w temperaturze 4 °C, jeśli badany genotyp posiada pokrój wzrostu typu zimowego. - Pozostaw rośliny M1 do samozapylenia i zbierz osobno nasiona M2 z każdej płodnej rośliny M1.
UWAGA: Aby uniknąć ryzyka potencjalnych krzyżowań obcych, przed anthezą przykryj kłosy roślin M1 workami do zapylania. - Zasadź jedno nasiono M2 z każdej rośliny M1, aby uniknąć redundancji genetycznej.
- Pobierz tkankę z roślin M2 w stadium dwóch liści do mikroprobówek w statywie 96-dołkowym o pojemności 1,1 mL. Pobierz około 80 mm tkanki liściowej z każdej rośliny i zapisz identyfikator każdej próbki w planie pobierania tkanek.
- Liofilizuj tkankę liściową za pomocą liofilizatora i przechowuj w temperaturze -80 °C.
- Utrzymuj rośliny M2 w temperaturze 20–25 °C przy 16-godzinnym okresie naświetlania.
- Regularnie rejestruj dane dotyczące fenotypów mutantów roślin M2. Oczekiwane fenotypy to m.in. albino, chlorina, pędy trawiaste, mozaikowatość, częściowa płodność, sterylność itp.
- Pozostaw rośliny M2 do samozapłodnienia i dojrzewania. Osobno zbierz i zachowaj nasiona M3 z roślin M2 (Rysunek 1).
UWAGA: Nasiona M są wykorzystywane do walidacji fenotypu w badaniach genetyki odwrotnej. Dlatego nasiona M powinny być starannie skatalogowane i przechowywane w chłodnych i suchych warunkach. Alternatywnie, jeśli konieczne jest zwiększenie ilości nasion w polu, dla każdej rośliny M można posadzić rzędy w głowicach, a nasiona M z każdego rzędu zbierać i przechowywać oddzielnie jako zasób populacji TILLING.
3. Analiza Cel-1 w celu charakterystyki genetycznej mutantów
- Wyekstrahuj DNA z tkanki liściowej M2 przy użyciu zestawu do ekstrakcji DNA roślinnego z systemem oczyszczania DNA (patrz Tabela materiałów), zgodnie z zaleceniami producenta.
- Oznacz ilość DNA za pomocą spektrofotometru i znormalizuj stężenia DNA do 25 ng/µL przy użyciu wody wolnej od nukleaz w blokach 96-dołkowych.
UWAGA: Ważne jest sprawdzenie jakości DNA poprzez elektroforezę w żelu, ponieważ DNA niskiej jakości (rozmyte DNA) może prowadzić do wyników fałszywie ujemnych w próbkach pulowanych. - Utwórz 4-krotne puły DNA, łącząc DNA z czterech bloków 96-dołkowych na jednej płytce, zachowując tożsamość rzędów i kolumn każdej próbki. Dodaj 50 µL DNA z każdej poszczególnej próbki do płytki pulującej, tak aby każda studnia płytki pulującej zawierała łącznie 20 µL DNA z czterech różnych bloków 96-dołkowych.
- Skataloguj tożsamość pulowanego DNA w formacie Płytka pulująca-Rząd-Kolumna (np. Pool 1 A1 = Box1A1 + Box2A1 + Box3A1 + Box4A1).
- Zaprojektuj specyficzne dla genomu primery [A1] dla badanego genu, korzystając ze strony Genome Specific Primers (GSP) z ustawieniami domyślnymi dla gatunków poliploidalnych. W przypadku diploidów użyj programu Primer 3 do projektowania primerów z ustawieniami domyślnymi. W razie potrzeby zaprojektuj kilka primerów, aby objąć cały region kodujący badanego genu.
UWAGA: Najnowsza wersja assembly IWGSC może zostać wykorzystana do uzyskania sekwencji badanego genu pszenicy przy użyciu narzędzia URGI BLAST . Optymalna długość amplikonu mieści się w zakresie 800–1 50 bp. Tabela 1 przedstawia przykłady primerów dla genów waxy u pszenicy heksaploidalnej. - Przeprowadź PCR dla primerów specyficznych dla genu na pulowanym DNA w następujący sposób:
- Dodaj 5 µL buforu do PCR, po 2 µL primerów forward i reverse o stężeniu 4 µM, 0,1 µL polimerazy DNA (patrz Tabela materiałów), 5 µL matrycy pulowanego DNA, a następnie uzupełnij objętość do 25 µL wodą wolną od nukleaz.
- Użyj profilu touch down do przeprowadzenia reakcji PCR w termocyklerze w następujący sposób: 95 °C przez 1 min, siedem cykli: 95 °C przez 1 min, od 67 °C do 60 °C przez 1 min ze spadkiem temperatury o 1 °C na cykl i 72 °C przez 2 min, a następnie 30 cykli: 95 °C przez 1 min, 60 °C przez 1 min, 72 °C przez 2 min oraz końcowa elongacja przy 72 °C przez 7 min.
UWAGA: Powyższy profil PCR działa na matrycy DNA pszenicy dla większości primerów zaprojektowanych przy użyciu domyślnych ustawień programu Primer 3. W przypadku niespecyficznej amplifikacji profil PCR powinien zostać zaostrzony przed przejściem do kolejnych etapów.
- Wygeneruj heterodupleksy między niedopasowanymi niciami DNA poprzez inkubację produktów PCR w termocyklerze zgodnie z następującym profilem: 95 °C przez 2 min, pięć cykli: 95 °C przez 1 s, od 95 °C do 85 °C przez 1 min ze spadkiem temperatury o 2 °C na cykl oraz 60 cykli od 85 °C do 25 °C ze spadkami o 1 °C na cykl.
- Dodaj 2,5 µL domowej endonukleazy Cel-1 do produktów PCR z heterodupleksami i inkubuj przez 45 min w temperaturze 45 °C. Przerwij reakcję Cel-1, dodając 2,5 µL 0,5 M EDTA (pH 8,0).
UWAGA: Endonukleazę Cel-1 można wyekstrahować ze świeżych łodyg selera zgodnie z protokołem opracowanym przez Tilla i wsp.19 Bardzo ważne jest przetestowanie aktywności i optymalnej ilości endonukleazy Cel-1, co można zrobić przy użyciu wcześniej scharakteryzowanych mutantów lub komercyjnie dostępnego zestawu do detekcji mutacji. - Rozdziel produkty poddane działaniu Cel-1 w żelu agarozy 3,0% przy 10 V przez 2,5 h. Studnie zawierające mniejsze i unikalne prążki cięte, oprócz pełnowymiarowych prążków nieciętych, będą zawierać próbkę zmutowanego DNA.
- Przeprowadź dekonwolucję pul mutantów.
- Wykonaj kroki 3.6, 3.7, 3.8 i 3.9 dla poszczególnych próbek DNA M2 tworzących puły mutantów zidentyfikowane w kroku 3.9.
- Aby określić zygotyczność mutantów, przeprowadź dwie reakcje PCR (opisane w kroku 3.6) dla poszczególnych próbek DNA M2, w których pierwsza reakcja zawiera 2,5 µL DNA M2 i 2,5 µL DNA typu dzikiego, a druga reakcja zawiera tylko 5 µL DNA M2. Jeśli mutacja jest heterozygotyczna, w obu reakcjach pojawi się dodatkowy prążek cięty. Z kolei dodatkowe prążki cięte zostaną znalezione tylko w pierwszej reakcji, jeśli mutant jest homozygotyczny.
- Aby zidentyfikować naturę mutacji, przeprowadź sekwencjonowanie produktów PCR potwierdzonych mutantów na platformie sekwencjonowania Sangera zgodnie z instrukcjami producenta.
4. Obliczanie częstości mutacji
UWAGA: Częstość mutacji w populacji TILLING odnosi się do średniej odległości fizycznej, w której występuje jedna mutacja u osobników danej populacji. Na przykład częstość mutacji 1/35 kb w populacji TILLING oznacza, że przeciętny osobnik tej populacji posiada 1 mutację na każde 35 kb genomu.
- Aby określić częstotliwość mutacji w populacji TILLING, należy obliczyć całkowitą liczbę przeskanowanych zasad.
- Aby obliczyć całkowitą liczbę przebadanych zasad, należy pomnożyć rozmiar produktu PCR przez całkowitą liczbę przebadanych osobników.
- Podziel całkowitą liczbę przebadanych zasad przez liczbę zaobserwowanych unikalnych mutacji, korzystając z poniższego równania; pozwoli to wyznaczyć fizyczny region zawierający jedną mutację w danej populacji TILLING:
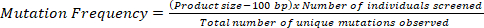
UWAGA: Aby uwzględnić ograniczenie rozdzielczości wynoszące 50 bp na obu końcach w platformie opartej na żelu agarozowym, w obliczeniach należy odjąć 10 bp od wielkości produktu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Rycina 2 przedstawia krzywą dawkowania dla heksaploidalnej odmiany pszenicy zwyczajnej Jagger, pszenicy diploidalnej Triticum monococcum6 oraz donora genomu pszenicy Aegilops tauschii7. Dawki EMS zapewniające pożądaną 50% przeżywalność wynosiły odpowiednio około 0,25%, 0,6% i 0,7% dla T. monococcum, Ae. tauschii oraz T. aestivum. Wyższa tolerancja pszenicy heksaploida...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
TILLING jest bardzo cennym narzędziem genetyki odwrotnej do walidacji genów, zwłaszcza w przypadku małych ziaren, w przypadku których podejścia oparte na transformacji mają poważne wąskie gardła11. Opracowanie mutagenizowanej populacji o wysokiej częstości mutacji jest jednym z kluczowych kroków w prowadzeniu badań genomiki funkcjonalnej. Najważniejszym krokiem w rozwoju silnej populacji TILLING jest określenie optymalnego stężenia EMS. Stwierdzono, że wskaźnik przeżycia 40%-60% w grupie M1 <...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy deklarują brak sprzecznych interesów finansowych.
Podziękowania
Ta praca była wspierana przez USDA National Institute of Food and Agriculture, projekt Hatch 1016879 oraz Maryland Agricultural Experiment Station poprzez MAES Grant No. 2956952.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 96 dołków 1,1 ml mikroprobówek w mikrostojakach | National Scientific | TN0946-08R | Do zbierania tkanek liści |
| Agaroza I klasa biotechnologiczna | VWR | 0710-500G | |
| Biosprint 96 DNA Plant Kit | Qiagen | 941558 | Kit do ekstrakcji DNA |
| Endonukleaza Cel-1 | Ekstrahowana zgodnie z opisem Tilla i wsp. 2006 | Endonukleaza specyficzna dla pojedynczej nici | |
| Wirówka 5430 R | Eppendorf | ||
| Metanosulfonian etylu | Sigma Aldrich | M-0880-25G | EMS - Chemiczny mutagen |
| System zamrażania na sucho/skorupie | Labconco | Do liofilizacji tkanek liści | |
| System oczyszczania Kingfisher Flex | Thermo fisher 5400610 Robot do | ekstrakcji DNA o wysokiej przepustowości | |
| Mój Taq DNA Polimeraza | Bioline | BIO-21107 | |
| Woda wolna od nukleaz | Sigma aldrich | W4502-1L | |
| Syngene | |||
| Orbit Environ-shaker | Lab-line | ||
| SPECTROstar Nano | BMG LABTECH | do oznaczania DNA | |
| T100 Termocykler | BIO-RAD | 1861096 |
Bibliografia
- McCallum, C. M., Comai, L., Greene, E. A., Henikoff, S. Targeted screening for induced mutations. Nature Biotechnology. 18 (4), 455-457 (2000).
- Bentley, A., MacLennan, B., Calvo, J., Dearolf, C. R. Targeted Recovery of Mutations in Drosophila. Genetics. 156 (3), 1169-1173 (2000).
- Tsai, H., et al. Discovery of Rare Mutations in Populations: TILLING by Sequencing. Plant Physiology. 156 (3), 1257-1268 (2011).
- Caldwell, D. G., et al. A structured mutant population for forward and reverse genetics in Barley (Hordeum vulgare L.). The Plant Journal. 40 (1), 143-150 (2004).
- Hazard, B., et al. Induced Mutations in the Starch Branching Enzyme II ( SBEII ) Genes Increase Amylose and Resistant Starch Content in Durum Wheat. Crop Science. 52 (4), 1754-1766 (2012).
- Rawat, N., et al. A diploid wheat TILLING resource for wheat functional genomics. BMC Plant Biology. 12, 205(2012).
- Rawat, N., et al. TILL-D: An Aegilops tauschii TILLING Resource for Wheat Improvement. Frontiers in Plant Science. 9, (2018).
- Rawat, N., et al. Wheat Fhb1 encodes a chimeric lectin with agglutinin domains and a pore-forming toxin-like domain conferring resistance to Fusarium head blight. Nature Genetics. 48 (12), 1576-1580 (2016).
- Kippes, N., Chen, A., Zhang, X., Lukaszewski, A. J., Dubcovsky, J. Development and characterization of a spring hexaploid wheat line with no functional VRN2 genes. Theoretical and Applied Genetics. 129 (7), 1417-1428 (2016).
- Greene, E. A., et al. Spectrum of Chemically Induced Mutations From a Large-Scale Reverse-Genetic Screen in Arabidopsis. Genetics. 164 (2), 731-740 (2003).
- Harwood, W. A. Advances and remaining challenges in the transformation of barley and wheat. Journal of Experimental Botany. 63 (5), 1791-1798 (2012).
- Henikoff, S., Comai, L. Single-Nucleotide Mutations for Plant Functional Genomics. Annual Review of Plant Biology. 54 (1), 375-401 (2003).
- Uauy, C., et al. A modified TILLING approach to detect induced mutations in tetraploid and hexaploid wheat. BMC Plant Biology. 9 (1), 115(2009).
- Uauy, C., Wulff, B. B. H., Dubcovsky, J. Combining Traditional Mutagenesis with New High-Throughput Sequencing and Genome Editing to Reveal Hidden Variation in Polyploid Wheat. Annual Review of Genetics. 51 (1), 435-454 (2017).
- Li, G., et al. The Sequences of 1504 Mutants in the Model Rice Variety Kitaake Facilitate Rapid Functional Genomic Studies. The Plant Cell. 29 (6), 1218-1231 (2017).
- Jiao, Y., et al. A Sorghum Mutant Resource as an Efficient Platform for Gene Discovery in Grasses. The Plant Cell. 28 (7), 1551-1562 (2016).
- Krasileva, K. V., et al. Uncovering hidden variation in polyploid wheat. Proceedings of the National Academy of Sciences. , 201619268(2017).
- Dong, C., Dalton-Morgan, J., Vincent, K., Sharp, P. A Modified TILLING Method for Wheat Breeding. The Plant Genome. 2 (1), 39-47 (2009).
- Till, B. J., Zerr, T., Comai, L., Henikoff, S. A protocol for TILLING and Ecotilling in plants and animals. Nature Protocols. 1 (5), 2465-2477 (2006).
- Wu, J. -L., et al. Chemical- and Irradiation-induced Mutants of Indica Rice IR64 for Forward and Reverse Genetics. Plant Molecular Biology. 59 (1), 85-97 (2005).
- Feldman, M., Levy, A. A. Genome Evolution Due to Allopolyploidization in Wheat. Genetics. 192 (3), 763-774 (2012).
- Comai, L. The advantages and disadvantages of being polyploid. Nature Reviews Genetics. 6 (11), 836-846 (2005).
- Guo, H., et al. Development of a High-Efficient Mutation Resource with Phenotypic Variation in Hexaploid Winter Wheat and Identification of Novel Alleles in the TaAGP.L-B1 Gene. Frontiers in Plant Science. 8, (2017).
- Rakszegi, M., et al. Diversity of agronomic and morphological traits in a mutant population of bread wheat studied in the Healthgrain program. Euphytica. 174 (3), 409-421 (2010).
- Tsai, H., Ngo, K., Lieberman, M., Missirian, V., Comai, L. Tilling by Sequencing. Plant Functional Genomics: Methods and Protocols. , 359-380 (2015).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
