Prezentowany tutaj jest protokół użycia systemu CRISPR-Cas9 do zmniejszenia produkcji białka w mózgu dorosłej pszczoły miodnej w celu zbadania swoistości przeciwciał.
Artykuł metodologiczny
Testowanie przeciwciał przeciwko receptorom anty-RDL i anty-mGlutR1 w skrawkach mózgu pszczoły miodnej przy użyciu CRISPR-Cas9
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Cluster Regularly Interspaced Short Palindromic Repeats (CRISPR)/CRISPR-associated protein 9 (Cas9) to technika edycji genów szeroko stosowana w badaniach nad funkcją genów. Używamy tej metody w tym badaniu, aby sprawdzić swoistość przeciwciał opracowanych przeciwko podjednostce receptora GABAA owadów Oporność na dieldrynę (RDL) i metabotropowemu receptorowi glutaminianu mGlutR1 (mGluRA). Przeciwciała wytworzone były u królików przeciwko sprzężonym peptydom specyficznym dla muszek owocowych (Drosophila melanogaster), a także dla pszczół miodnych (Apis mellifera). Użyliśmy tych przeciwciał w skrawkach mózgu pszczoły miodnej do zbadania rozmieszczenia receptorów w mózgach pszczół miodnych. Przeciwciała oczyszczono pod kątem powinowactwa do peptydu i przetestowano za pomocą immunoblottingu i klasycznej metody preadsorpcji za pomocą koniugatów peptydowych, aby wykazać, że przeciwciała są specyficzne dla odpowiednich koniugatów peptydowych, przeciwko którym zostały wyhodowane. Tutaj opracowaliśmy technikę CRISPR-Cas9 do testowania redukcji docelowych białek w mózgu 48 godzin po wstrzyknięciu CRISPR-Cas9 z przewodnikowymi RNA zaprojektowanymi dla odpowiedniego receptora. Metoda CRISPR-Cas9 może być również stosowana w analizach behawioralnych u dorosłych pszczół, gdy konieczna jest modyfikacja jednego lub wielu genów.
Wprowadzenie
Niedawno odkryty system CRISPR/Cas9 jest potężnym narzędziem, które zostało użyte do zmiany genomowego DNA w różnych systemach modelowych i organizmach. Przyspieszyła ona badania biomedyczne i dokonała ważnych przełomów technologicznych, sprawiając, że modyfikacja genomu jest bardziej wydajna i solidna niż poprzednie metody1. Natywny dla bakterii S. pyogenes system opiera się na endonukleazie Cas9, której aktywność prowadzi do dwuniciowych pęknięć (DSB) w DNA, oraz przewodniku RNA (gRNA), który kieruje białko Cas9 do określonej, zależnej od sekwencji lokalizacji2. Dwuniciowe pęknięcia generowane przez CRISPR/Cas9 mogą być naprawiane poprzez niehomologiczne łączenie końców (NHEJ), proces podatny na błędy, który może prowadzić do przesunięć ramki lub bezpośredniej naprawy homologii, gdy obecny jest szablon dawcy. Sam gRNA składa się z docelowego CRISPR RNA (crRNA) i uniwersalnego transaktywującego crRNA (tracrRNA), które mogą być chemicznie syntetyzowane i dostarczane z oczyszczoną nukleazą Cas9 jako kompleks rybonukleoproteinowy (RNP)2,3. Znakowanie fluorescencyjne nukleazy gRNA lub Cas9 może pozwolić na wykrycie i wewnątrzkomórkową wizualizację składników molekularnych za pomocą mikroskopii fluorescencyjnej4.
W naszej obecnej pracy wykorzystujemy system CRISPR-Cas9 do obniżania poziomu białka w mózgach dorosłych pszczół miodnych. Badaliśmy metabotropowy receptor glutaminianu (mGluR) i przeciwciała receptora anty-mGlutR1 oraz podjednostkęreceptora GABA A RDL i przeciwciała anty-RDL. Opracowaliśmy prostą metodę zmniejszania ilości białka w mózgu dorosłej pszczoły miodnej i wykorzystaliśmy ją do przeprowadzenia dodatkowych testów przeciwciał wytworzonych przeciwko odpowiednim białkom. Monitorowanie fluorescencji CRISPR-Cas9 pozwoliło nam oszacować obszary i komórki zaangażowane w redukcję białka.
Korzystając z tej metody, scharakteryzowaliśmy również przeciwciała anty-mGlutR1, które zostały wytworzone u królików przeciwko sprzężonemu peptydowi. Genom pszczoły miodnej koduje wysoce konserwatywny receptor glutaminianu AmGluRA (nazwany mGlutR1 zgodnie z nomenklaturą NCBI) metabotropowy receptor glutaminianu 5. Gen mGlutR1 pszczoły miodnej ma cztery przewidywane warianty splicingu zgodnie z bazą danych NCBI. Doniesiono, że ulega ekspresji w ośrodkowym układzie nerwowym (OUN) zarówno w stadium poczwarki, jak i dorosłej pszczoły i bierze udział w tworzeniu pamięci długotrwałej5. Przeciwciała opracowane przeciwko mGlutR1 mogą być niezbędnym narzędziem do badania układu glutaminergicznego w procesie uczenia się i zapamiętywania u pszczół miodnych.
W naszych badaniach scharakteryzowaliśmy również przeciwciała anty-RDL wytworzone u królików immunizowanych sprzężonymi peptydami z podjednostki receptora RDL Apis mellifera. Gen Rdl pszczoły miodnej, AmRdl (XM_006565102.3, baza danych NCBI), ma 14 przewidywanych wariantów splicingu. Częściowo sklonowany fragment został zgłoszony w bazie danych NCBI AF094822.1. Funkcja receptora RDL i jego fizjologia jest dobrze zbadana u owadów6,7,8, w tym pszczoły miodne9,10,11. Przeciwciała wytworzone przeciwko anty-RDL mogą być niezbędnym narzędziem do badania układu GABA-ergicznego w procesie uczenia się i zapamiętywania u pszczół miodnych.
Wcześniejsze badanie nad rolą receptorów oktopaminy i tyraminy wykorzystywało RNAi wstrzykiwane do mózgu, a następnie testowano ilość białka za pomocą Western blot12,13. RNAi ma jednak pewne istotne ograniczenia. Po wstrzyknięciu RNAi istnieje tylko krótkie okno czasowe, w którym następuje redukcja białka13. CRISPR-Cas9 został niedawno użyty w zarodkach pszczół miodnych do usuwania lub modyfikowania genów w całym zwierzęciu14,15,16. Informowaliśmy o zastosowaniu CRISPR-Cas9 w celu zmniejszenia ilości białka w dorosłej pszczole miodnej. Opracowaliśmy to podejście dla pszczół miodnych ze względu na możliwość powiązania go z behawioralnymi badaniami uczenia się i pamięci w kontrolowanych warunkach laboratoryjnych17.
W obecnej pracy opracowaliśmy przeciwciała przeciwko dwóm receptorom i przetestowaliśmy je na sekcjach mózgu dorosłej pszczoły miodnej po tym, jak białko zostało zredukowane przez wstrzyknięcie CRISPR-Cas9. Równolegle opracowaliśmy projekt eksperymentalny, który pozwala na wykorzystanie tej metody do eksperymentów behawioralnych.
Protokół
Protokół opisany w niniejszym opracowaniu jest zgodny z wytycznymi dotyczącymi opieki nad zwierzętami Uniwersytetu Stanowego Arizona.
1. Izolacja całkowitego białka z mózgów Apis mellifera
UWAGA: Do tego eksperymentu należy wykorzystać pszczoły zbieraczki Apis mellifera rasy kraińskiej z Nowego Świata o nieznanym wieku.
- Nad wlotem do ula umieść aluminiowy ekran z siatki, aby przechwycić pszczoły zbieraczki17. Każdą pszczołę przechwyć do probówki z niewielkim otworem w zakrętce. Probówki z pszczołami umieść w lodzie, aby obniżyć temperaturę ich ciała i je unieruchomić. Pozostaw pszczoły w lodzie nie dłużej niż przez 3 min.
- Unieruchomione pszczoły zamocuj w wcześniej przygotowanych metalowych uchwytach. Upewnij się, że uchwyty metalowe są tak skonstruowane, aby pszczołę można było przymocować niewielkimi kawałkami taśmy klejącej, pozostawiając jednak odsłoniętą tylną część klatki piersiowej, skrzydła i głowę.
OSTROŻNIE: Przed próbą umieszczenia pszczół w uchwytach upewnij się, że są one całkowicie unieruchomione. - Karm pszczoły 1 M roztworem sacharozy za pomocą strzykawki 5 mL, aż przestaną być głodne. Zamocowane pszczoły umieść w pudełku z mokrym ręcznikiem papierowym, aby zapewnić wilgotne środowisko.
- Szybko przeprowadź dyssekcję mózgu pszczoły, odcinając głowę nożyczkami irydologicznymi Barraquera (patrz Tabela materiałów), a następnie użyj nożyczek do otwarcia głowy od przodu.
- Oddziel mózg od torebki głowy, pobierz go pęsetą nr 5 i umieść w 10 μL zimnego (4-8 °C) buforu lizującego. Bufor lizujący składa się z 120 mM Tris-HCl, 2% dodecylosiarczanu sodu (SDS), 5% glicerolu, 0,2 mM ditiotreitolu, 1% Triton X-10 oraz 1-5 µg/mL inhibitorów proteaz: PMSF (fenylometylosulfonylofluoridu), aprotininy i benzamidyny (pH 6,8) w temperaturze 4 °C. Zhomogenizuj mózg w roztworze lizującym, obracając tłuczkiem przez około 2 min.
- Odwiruj próbkę przy 12 0 x g przez 20 min. Odessij 90 μL supernatantu, a osad odrzuć.
- Pobierz 1 μL supernatantu, aby określić ilość całkowitego białka za pomocą fluorometru. Przybliżone stężenie całkowitego białka wynosiło od 2-3 mg/mL na pszczołę. Pobierz 10 μL supernatantu i dodaj 10 μL buforu lizującego oraz 10 μL 6x buforu Laemmli18. Krótko wiruj i gotuj przez 3 min, a następnie schłodź w lodzie. Wiruj przez 1 min przy 10 0 x g, aby usunąć wszystkie zanieczyszczenia. Jedna dziesiąta mózgu pszczoły zawiera około 25 ng całkowitego białka.
2. Western blotting19
- Przygotować 30 mL 10% żelu rozdzielczego zawierającego 12,15 mL ultraczystej wody destylowanej, 7,5 mL 1,5 M Tris-HCl (pH 8,8), 0,3 mL 10% SDS, 10 mL 30% roztworu akryloamidu-bis-akryloamidu, 0,15 mL 10% nadsiarczanu amonu (APS) oraz 20 μL tetrametyloetylenodiaminy (TEMED).
- Odlać żel pomiędzy dwie szklane płyty rozdzielone dystansami.
- Przygotować 20 mL żelu zagęszczającego zawierającego 12,1 mL ultraczystej wody destylowanej, 5,0 mL 0,5 M Tris-HCl (pH 6,8), 0,2 mL 10% SDS, 2,6 mL akryloamidu-bis-akryloamidu, 0,1 mL 10% APS oraz 20 μL TEMED.
- Po zestaleniu się żelu rozdzielczego wlać żel zagęszczający. Ostrożnie włożyć plastikowy separator w celu utworzenia zagłębień do nakładania próbek, unikając powstawania pęcherzyków powietrza. Odczekać 15-30 min aż żel całkowicie zestaleje.
- Rozpocząć nakładanie próbek na żel, używając 5 μL markerów białek. Na każdą ścieżkę nałożyć 20 μL mieszaniny lizatu z kroku 1.8, co odpowiada ~1/15 mózgu pszczoły lub ~16 ng całkowitego białka na ścieżkę. Prowadzić elektroforezę przez łącznie 3,5-4 h przy natężeniu 16 mA w żelu zagęszczającym i 32 mA w żelu rozdzielczym. Przerwać proces, gdy barwnik opuści żel.
- Przenieść białka na błony nitrocelulozowe w buforze do transferu (25 mM Tris-HCl, 192 mM glicyny, 15% metanolu) przy 0,45 mA przez 1 h 30 min w temperaturze 4 °C.
- Aby ocenić wydajność transferu białek po SDS-PAGE przed immunoblottingiem, dodać roztwór barwiący Ponceau S (dodać 0,1 g Ponceau S i 5 mL kwasu octowego do wody do uzyskania końcowej objętości 10 mL). Inkubować w temperaturze 4 °C przez 1 min, a następnie szybko wypłukać wodą destylowaną.
- Oznaczyć każdą ścieżkę długopisem, wyciąć fragment błony zawierający dwie ścieżki z homogenatem mózgu i jedną ścieżkę z markerem białek, a następnie umieścić każdy fragment w kasecie inkubacyjnej do Western blot. Przemyć 3 razy po 5 min w soli fizjologicznej z buforem fosforanowym (PBS) zawierającej 0,1% Tween 20 (PBS-Tw).
- Zablokować błonę 10% NGS (1 mL normalnego surowicy koziej do 10 mL PBS-Tw) w kasecie inkubacyjnej do Western blot przez 1 h. Przygotować rozcieńczenie przeciwciała anty-mGlutR1 (5 μL przeciwciała w 10 mL 10% NGS). Przygotować rozcieńczenia przeciwciał anty-RDL1 i anty-RDL2 (po 5 μL przeciwciała w 10 mL 10% NGS dla każdego). Zastąpić roztwór blokujący w każdej kasecie rozcieńczonymi przeciwciałami i pozostawić na noc (16-24 h) w temperaturze 4 °C.
- Przemyć błonę 3 razy po 5 min w PBS-Tw. Inkubować błonę z wtórnymi przeciwciałami anty-króliczymi IgG sprzężonymi z HRP w rozcieńczeniu 1:10 0 w 10% NGS PBS-Tw przez 2 h w temperaturze pokojowej (RT). Przemyć błony 3 razy w PBS-Tw, a następnie 1 raz w PBS.
- Wykryć prążki za pomocą chemiluminescencyjnego substratu HRP do Western blot. Zmieszać dwa substraty w stosunku 1:1 (v/v) w temperaturze pokojowej, umieścić wszystkie błony w jednej kasecie i pokryć je mieszaniną substratu na 2 min (w ciemni przy czerwonym świetle) w temperaturze pokojowej. Przystąpić do detekcji białek przy użyciu filmu autoradiograficznego z zastosowaniem różnych czasów ekspozycji. Zazwyczaj jedno przeciwciało jest testowane na jednej błonie zawierającej to samo rozcieńczenie homogenatu mózgu na dwóch lub trzech ścieżkach oraz jedną ścieżkę z markerem masy cząsteczkowej.
3. Procedury immunocytochemiczne
- Aby przeprowadzić sekcję mózgów pszczół miodnych do immunocytochemii, unieruchom pszczoły w lodzie przez 30 s. Po unieruchomieniu pszczół odetnij głowę za pomocą nożyczek i umieść ją w roztworze 4% paraformaldehydu w PBS. Pracuj pod wyciągiem.
OSTROŻNIE: Tułów należy utylizować z należytą ostrożnością, ponieważ odwłok może wciąż żądlić po odcięciu głowy. - Ostrożnie, ale szybko usuń czułki oraz oczy złożone i wytnij cały górny egzoszkielet za pomocą nożyczek irydowych Barraquera. Pozostaw głowy w roztworze utrwalającym na 10 min. Usuń resztę egzoszkieletu głowy i przetnij wszystkie pozostałe tchawki.
- Umieść każdy mózg w probówce do mikrocentryfugi o pojemności 1,5 mL zawierającej co najmniej 1 mL roztworu 4% paraformaldehydu i pozostaw na noc w temperaturze 4-8 °C.
- Przygotuj 7,6% roztwór agarozy, mieszając 3,8 g agarozy i 50 mL wody destylowanej w kolbie Erlenmeyera. Podgrzewaj roztwór w mikrofalówce do czasu upłynnienia agarozy.
UWAGA: W otworze kolby można umieścić niewielki kawałek ręcznika papierowego, aby zapobiec wylaniu się roztworu agarozy podczas podgrzewania. - Umieść utrwalone mózgi pszczół miodnych (3-4 mózgi) w szalce Petriego o średnicy 35 mm i usuń nadmiar utrwalacza ręcznikiem papierowym. Wlej płynny roztwór agarozy na mózgi. Uorientuj mózgi w agarozie tak, aby płaty antenowe były skierowane ku górze. Pozostaw agarozę do ostygnięcia i zastygnięcia.
- Po zastygnięciu agarozy wytnij bloki agarozy, z których każdy zawiera jeden mózg.
- Do sekcjonowania wibrotomie przygotuj płytkę 24-dołkową, w której każdy dołek zawiera koszyczek z hydrofobową siatką na dnie. Wypełnij każdy dołek 60 µL PBS.
- Przetnij każdy blok na sekcje poprzeczne o grubości 70 µm za pomocą wibrotomu i umieść sekcje w koszyczku z PBS.
UWAGA: Upewnij się, że sekcje z tego samego mózgu znajdują się w tym samym koszyczku. - Przemyj sekcje mózgu 6x po 10 min każda przy użyciu PBS-TX, aby upewnić się, że w sekcjach nie pozostał utrwalacz. Umieść płytkę wielodołkową na wytrząsarce orbitalnej i myj mózgi przy 210 rpm. Przed każdym myciem pamiętaj o wymianie roztworu PBS-TX na świeży roztwór PBS-TX. Zablokuj w 1% normalnym surowicą osiołka podczas ostatniego mycia.
- Aby przetestować przeciwciało pierwszorzędowe przeciwko mGlutR1, przygotuj rozcieńczenie 1:12 przeciwciał przeciwko mGlutR1, dodając 9 mL PBS-TX do 80 µL przeciwciał przeciwko mGlutR1 w probówce wirówkowej o pojemności 15 mL. Krótko wymieszaj probówkę wortexie. Robocze rozcieńczenie przeciwciał określono w eksperymentach wstępnych.
- Aby przetestować przeciwciało pierwszorzędowe przeciwko RDL, przygotuj rozcieńczenie 1:10 przeciwciał przeciwko RDL, dodając 30 µL przeciwciał przeciwko peptydowi RDL 1, 30 µL przeciwciał przeciwko peptydowi RDL 2 oraz 6 mL PBS-TX w probówce wirówkowej o pojemności 15 mL. Krótko wymieszaj probówkę wortexie. Robocze rozcieńczenie przeciwciał określono w eksperymentach wstępnych.
- Dodaj 800 µL roztworu przeciwciał do każdego dołka w płytce. Przykryj płytkę wielodołkową i owiń ją folią aluminiową, aby zapobiec degradacji pod wpływem światła. Umieść płytkę owiniętą folią aluminiową na wytrząsarce orbitalnej i wytrząsaj przy 210 rpm przez 2 h. Następnie pozostaw na noc w temperaturze RT bez wytrząsania.
- Po pozostawieniu sekcji mózgu na noc, przemyj je PBS-TX przez 10 min. Powtórz etap mycia 6x.
- Przygotuj przeciwciała wtórne (anty-królicze z osiołka), wykonując rozcieńczenie 1:25 przeciwciał wtórnych poprzez dodanie 40 µL przeciwciał wtórnych do 9 mL PBS-TX.
- Dodaj 80 µL rozcieńczenia przeciwciał wtórnych do każdego dołka. Przykryj płytkę i owiń ją folią aluminiową. Umieść płytkę owiniętą folią aluminiową na wytrząsarce orbitalnej i wytrząsaj przy 210 rpm przez 2 h. Następnie pozostaw ją na noc w temperaturze RT.
- Przemyj sekcje mózgu 3x po 10 min każda przy użyciu PBS-TX oraz 3x zwykłym roztworem PBS.
- Do osadzania sekcji na szkiełkach przygotuj medium montażowe/roztwór do zatapiania w glicerolu zmodyfikowany według Rodriguez et al.20. Dodaj 5 g medium montażowego do 20 mL PBS i mieszaj przez 16 h za pomocą mieszadła magnetycznego. Dodaj 10 mL glicerolu i mieszaj przez kolejne 16 h mieszadłem magnetycznym. Odwiruj przez 15 min przy 4 0 x g, pobierz ciekły homogenny supernatant i rozdziel na aliquoty do probówek 1 mL. Przechowuj w temperaturze -20 °C.
- Osadź sekcje na szkiełkach za pomocą kropli medium montażowego przygotowanego w kroku 3.17, upewniając się, że każde szkiełko zawiera sekcje z jednego mózgu.
- Kontrola preadsorpcyjna immunobarwienia z użyciem koniugowanych peptydów
- Dla przeciwciał przeciwko RDL i koniugowanych peptydów inkubuj robocze rozcieńczenie przeciwciał przeciwko RDL z odpowiadającym koniugatem peptydowym przez noc w temperaturze RT na wytrząsarce: warunek 1) 50 μg peptydy koniugowanego z hemocyjaniną z małży (KLH) za pomocą glutaraldehydu; warunek 2) bez koniugatu.
- Odwiruj każdą mieszaninę przez 10 min przy 10 0 x g i pobierz supernatant z obu warunków (krok 3.19.1).
- Inkubuj sekcje seryjne mózgu pszczoły miodnej z każdym supernatantem i przetwórz za pomocą przeciwciał wtórnych opisanych powyżej. Sekcje seryjne to sekcje następujące po sobie podczas procedury sekcjonowania w wibrotomie, dzięki czemu ta sama część mózgu zostanie poddana kontroli pozytywnej i negatywnej.
- Dla przeciwciał przeciwko mGlutR1 i koniugowanego peptydy inkubuj robocze rozcieńczenie przeciwciał przeciwko mGlutR1 w temperaturze RT z koniugatem peptydowym KLH zawierającym 10-4 M peptydy (warunek 1) oraz bez koniugatu (warunek 2).
- Odwiruj każdą mieszaninę przez 10 min przy 10 0 x g i pobierz supernatant z obu kontroli.
- Inkubuj sekcje seryjne mózgu pszczoły miodnej z supernatatem z obu warunków i przetwórz za pomocą przeciwciał wtórnych (kroki 3.14-3.15).
- Osadź sekcje z obu warunków na szkiełku, używając medium do zatapiania (krok 3.17).
4. Test ekspresji białek RDL i mGlutR1 metodą immunocytochemii (sekcja 3) w mózgu pszczoły miodowej po wstrzyknięciu odpowiedniego systemu CRISPR-Cas9
- Zaprojektuj przewodniki za pomocą internetowego narzędzia do projektowania CRISPR-Cas921, wykorzystując sekwencje genomowego DNA AmRdl (XM_06565102.3) oraz sekwencje mGlutR1 (XM_065624.3) (Tabela 1). Zamów je jako Cas9 crRNA i Cas-9 tracrRNA z barwnikiem fluorescencyjnym ATTO550 na końcu 5'. Zamów nukleazę Cas9 Nuclease V3 (patrz Tabela materiałów).
- Przygotuj komponenty systemu CRISPR-Cas 9, sporządzając zapasowy roztwór każdego z przewodników crRNA i tracrRNA o stężeniu 10 µM w wodzie wolnej od nukleaz. Rozdziel na alikwoty i przechowuj w temperaturze -20 °C. Przygotuj roztwór roboczy Cas-9, dodając 2,5 µL nukleazy Cas 9 V3 (10 mg/mL) do 47,5 µL buforu wolnego od nukleotydów, aby uzyskać stężenie końcowe 0,5 µg/µL. Przygotuj gRNA i RNP do iniekcji.
- Przygotuj tworzenie kompleksów gRNA dla każdego RNA przewodniego osobno (guideRNA:tracrRNAATTO50)
- Oznacz probówkę nazwą gRNA, dodaj 92 µL buforu wolnego od nukleotydów, 4 µL 10 µM CRISPR-Cas9 tracrRNA- 5'ATTO550 oraz 4 µL roztworu crRNA przewodniego. Delikatnie wymieszaj i odwiruj.
UWAGA: Przykład oznaczenia probówek gRNA dla RDL: GRDL1, GRDL2, GRDL3 (odpowiadające RNA przewodnim RDL w Tabeli 1). Przykład oznaczenia probówek gRNA dla mGlutR1: GMGL1, GMGL2, GMGL3 (Tabela 1). - Podgrzej roztwór do 95 °C przez 5 min, aby utworzyć gRNA. Chłodź mieszaninę w temperaturze pokojowej przez 10 min.
- Oznacz probówkę nazwą gRNA, dodaj 92 µL buforu wolnego od nukleotydów, 4 µL 10 µM CRISPR-Cas9 tracrRNA- 5'ATTO550 oraz 4 µL roztworu crRNA przewodniego. Delikatnie wymieszaj i odwiruj.
- Przygotuj tworzenie kompleksów RNP (gRNA: S.p Cas9Nuclease), mieszaniny do dostarczania oraz kontrolę.
- Oznacz probówkę nazwą RNP, dodaj 6 µL roztworu gRNA i 6 µL 0,5 µg/µL S.p Cas9 Nuclease V3. Delikatnie wymieszaj i inkubuj roztwory w 37 °C przez 10 min przed iniekcją.
UWAGA: Przykład etykiet probówek RNP: RRDL1, RRDL2, RRDL3. - Przygotuj RNPRDLmix. Aby przygotować końcową mieszaninę używaną do iniekcji, połącz 4 µL każdego RNP z RDL. RNP/RDL mix = 4 µL RRDL1 + 4 µL RRDL + 4 µL RRDL3.
- Przygotuj RNPmGlutR1mix. Wymieszaj 4 µL każdego RNP z mGlutR1, aby przygotować końcową mieszaninę używaną do iniekcji (RNPmGlutR1mix) = 4 µL RMG1 + 4 µL RMG2 + 4 µL RMG3.
UWAGA: Przykład etykiet probówek RNP: RMG1, RMG2, RMG3. - Przygotuj kontrolny roztwór noguideRNA, mieszając 4 µL tracrRNA, 92 µL buforu i 4 µL wody zamiast guideRNA (patrz sekcja 4.3). Wymieszaj 6 µL tego roztworu noguideRNA i 6 µL 0,5 µg/µL Cas9 Nuclease V3 (krok 4.4.1), aby uzyskać kontrolny roztwór do iniekcji.
- Oznacz probówkę nazwą RNP, dodaj 6 µL roztworu gRNA i 6 µL 0,5 µg/µL S.p Cas9 Nuclease V3. Delikatnie wymieszaj i inkubuj roztwory w 37 °C przez 10 min przed iniekcją.
5. Procedura wstrzykiwania
- Unieruchom każdą pszczołę zgodnie z opisem w kroku 1.3 i karm je zgodnie z krokiem 1.4. Następnie przygotuj dwa zestawy po dwa drewniane pudełka, do których zostaną wypuszczone pszczoły po iniekcji: pudełko białe (warunki eksperymentalne) i pudełko czarne (kontrola). Każde pudełko powinno zawierać niewielki plaster plastra miodu oraz szalkę Petriego do karmienia. Jedna ściana każdego pudełka jest wykonana ze szkła, aby umożliwić obserwację.
- Przygotuj szalki Petriego do karmienia. Weź pokrywkę szalki Petriego o średnicy 35 mm, nałóż wosk na jej powierzchnię, a następnie umieść na wosku dno szalki. Zamocuj płytkę w pudełku.
- Za pomocą strzykawki 5 mL wstrzyknij 1M roztwór sacharozy pomiędzy pokrywkę a dno szalki. Pszczoły mogą szybko wprowadzić aparat gębowy pomiędzy dwie płytki, a jednocześnie pozostaną suche przez 48 h okresu inkubacji. Umieść jedną szalkę w każdym pudełku.
- Aby przygotować system do mikroiniekcji, wypełnij kapilary olejem mineralnym, unikając pęcherzyków powietrza. Umieść kapilary w uchwycie wtryskiwacza systemu do mikroiniekcji. Aby napełnić kapilarę odpowiednim roztworem do iniekcji, umieść folię hydrofobową na płaskiej powierzchni i nanieś na nią roztwór za pomocą pipety. Wtryśnij olej z kapilar i zastąp mieszaninę odpowiednią mieszanką RNP.
- Za pomocą systemu do mikroiniekcji wstrzyknij 345 nL roztworu mieszanki RNP bezpośrednio do oczek środkowych każdej pszczoły.
- W przypadku iniekcji RDL-CRISPR-Cas9, wstrzyknij ośmiu pszczołom RNPRDLmix przygotowany zgodnie z opisem w kroku 4.4.2. Po iniekcji podaj im 1M sacharozy. Wypuść je do białego (eksperymentalnego) pudełka z małym plastrem miodu i szalką Petriego do karmienia na 48 h. Wykorzystaj kolejne osiem pszczół jako kontrolę bez żadnych iniekcji, nakarm je i wypuść do czarnego (kontrolnego) pudełka.
- W przypadku mGlutR1 CRISPR-Cas9, wstrzyknij dziewięciu pszczołom RNPmGlutR1mix przygotowany zgodnie z opisem w kroku 4.4.3. Jako kontrolę wstrzyknij ośmiu pszczołom mieszankę RNA bez przewodnika (RNAmix_noguide) przygotowaną zgodnie z opisem w kroku 4.4.4. Po iniekcji podaj im 1M sacharozy. Wypuść pszczoły z uchwytów do białego pudełka (warunki eksperymentalne) lub czarnego pudełka (kontrola) przygotowanych zgodnie z opisem w sekcji 5.1.
- Umieść pudełka w pojemniku polistyrenowym z mokrym papierem w środku w celu utrzymania wilgotności. Pozostaw pszczoły na 48 h i obserwuj je 2 razy dziennie, aby upewnić się, że mają wystarczającą ilość pokarmu i odpowiednią wilgotność.
- Po 48 h przeprowadź sekcję mózgu każdej pszczoły (krok 3.1) i poddaj go obróbce immunocytochemicznej zgodnie z opisem w sekcji 3. Do immunobarwień anty-mGlutR1 zastosuj krok 3.1, a do immunobarwień anty-RDL krok 3.12.
- Wykonaj obrazowanie konfokalne, aby ocenić poziom fluorescencji w immunobarwionych sekcjach mózgu.
- Aby ocenić redukcję białka w immunoznakowanych mózgach, wykorzystaj obrazowanie konfokalne przy tym samym poziomie wzmocnienia (gain) zarówno dla mózgów kontrolnych, jak i wstrzykniętych.
6. Analiza drop-off oparta na qPCR w celu oceny zmodyfikowanego genomowego DNA RDL 48 h po wstrzyknięciu CRISPR Cas9 RNPRDLmix
- Zaprojektuj primery, sondę kontrolną oraz sondę typu drop-off, aby ocenić ilość DNA zmodyfikowanego poprzez iniekcję CRISPR-Cas9. Każdy primer został zaprojektowany tak, aby flankował co najmniej jedną sekwencję naprowadzającą CRISPR-Cas9, a wielkość amplikonu wynosi 132 bp. Poniżej podano wykorzystane primery i sondy:
RDL1_For: CTCGGAGTGACCACCGT
RDL1_Rev: CAACGAGGCGAACACCAT
RDL1_control_probe: /5HEX/CGA+C+G+TTT+A+C+CT/3IABkFQ/
Sonda_odczepiająca_RDL1: /56-FAM/CCTA+C+G+T+CA+A+GT/3IABkFQ/- Należy upewnić się, że primery odpowiadają unikalnym sekwencjom specyficznym dla danego obszaru. Należy upewnić się, że sonda drop-off została zaprojektowana dla obszaru pokrywającego się z przewodnikiem RDL-CRISPR-Cas9.
- Aby sprawdzić, czy w obszarze prowadzącym nastąpiła modyfikacja gDNA, należy wstrzyknąć w oczka 12 pszczół mieszaninę RNP_RDL opisaną w kroku 5.3.1, a osiem pszczół niewstrzykniętych wykorzystać jako kontrolę.
- Wypreparować mózgi pszczół bez płatów optycznych 48 h po zastrzykach, a następnie wyekstrahować gDNA z mózgu każdej pszczoły z grupy badawczej i kontrolnej (bez płatów optycznych), wykorzystując zestaw zgodnie z protokołem producenta (patrz Tabela materiałów).
- Ocenić ilość, jakość i czystość wyekstrahowanego gDNA za pomocą spektrofotometru.
- Ilościowe oznaczenie względnej ekspresji zmodyfikowanego gDNA AmRDL przy użyciu protokołu drop-off opartego na qPCR i termocyklera do PCR w czasie rzeczywistym.
- Resuspender oligos do 100 µM, rozcieńczyć startery do 10 µM, a sondy do 5 µM.
- Przygotuj reakcję PCR w płytce 96-dołkowej, zgodnie z poniższym schematem, dla jednej próbki gDNA (3 powtórzenia): 10 µL mieszaniny master mix (patrz Tabela materiałów), 1 µL startera prawego, 1 µL starteru odwrotnego, 1 µL sondy kontrolnej, 1 µL sondy zrzucalnej, 2 µL gDNA (50 ng), 4 µL wody wolnej od nukleaz, aby uzyskać końcową objętość reakcji wynoszącą 20 µL.
UWAGA: Kontrole stanowią roztwór zamiast próbek oraz wodę zamiast sond. - Skonfiguruj program cykli w termocyklerze do PCR w czasie rzeczywistym w następujący sposób: 95 °C przez 3 min, a następnie przez 40 cykli 95 °C przez 15 s, 60 °C przez 1 min.
- Ocena względnej modyfikacji genów przy użyciu 2-ΔCt metoda, w której
 i

7. Ilościowe oznaczenie względne RNA RDL 48 h po wstrzyknięciu RNPRDLmix
- Aby sprawdzić, czy nastąpiła redukcja mRNA RDL, wstrzyknij mieszankę RNP_RDL do oczków 20 pszczół, zgodnie z opisem w kroku 5.3.1, a 12 pszczół niepoddanych zastrzykowi wykorzystaj jako kontrolę. Wypreparuj mózgi pszczół (bez płatów optycznych) 48 h po wstrzyknięciach, wyizoluj całkowity mRNA z każdej wstrzykniętej pszczoły i przeprowadź separację zgodnie z protokołem producenta (patrz Tabela materiałów).
- Usuń wszelkie pozostałości DNA z próbki, używając zestawu do usuwania DNA (patrz Tabela materiałów).
- Oceń jakość i czystość wyekstrahowanego RNA za pomocą spektrofotometru.
- Ilościowo określ ekspresję AmRDL przy użyciu dostępnego komercyjnie fluorescencyjnego zielonego zestawu do RT-PCR (Tabela materiałów) na termocyklerze PCR w czasie rzeczywistym, stosując protokół producenta dla płytki 384-dołkowej.
UWAGA: W tym doświadczeniu wykorzystano wcześniej opublikowane primery. Dla AmRDL (AmRDL_F GGTCGATGGGCTACTACCTG; AmRDL_R TCGATCGACTTGACGTAGGA)2 oraz primery do aktyny jako genu referencyjnego [AmActin_F TGCCAACACTGTCCTTTCTG; AmActin_R GAATTGACCCACCAATCCA]23. Względną ekspresję genów obliczono metodą 2-ΔCt (krok 6.6).
8. Analiza drop-off oparta na qPCR w celu oceny zmodyfikowanego DNA genomowego 48 h po wstrzyknięciu RNPmGlutR1mix
- Zaprojektuj startery, kontrolę oraz sondy drop-off w celu oceny ilości DNA zmodyfikowanego poprzez wstrzyknięcie CRISPR-Cas9. Zaprojektuj startery w taki sposób, aby flankowały co najmniej jedną sekwencję naprowadzającą CRISPR-Cas9, a wielkość amplikonu wynosiła 96 bp.
mGlutR1_For: GGTGAAACGAACGACGGA
AmGlurR1_Rev: GGAGGGAGCGAGAA
Sonda_kontrolna_AmGlurR1: /5HEX/CGAGG+G+AAA+CGA+GT/3IABkFQ/
AmGlurR1_Drop-off_probe: /56-FAM/CGA+C+A+C+CG+TC/3IABkFQ/
UWAGA: Należy upewnić się, że primery odpowiadają unikalnym sekwencjom specyficznym dla obszaru, który miał zostać zmodyfikowany. Sonda drop-off została zaprojektowana dla obszaru pokrywającego się z przewodnikiem CRISPR-Cas9. - Aby sprawdzić, czy w obszarze przewodnika nastąpiła modyfikacja gDNA, wstrzyknij mieszankę RNP_GlutR1 do oczków 12 pszczół zgodnie z opisem w kroku 5.3.1 i wykorzystaj osiem niepoddanych iniekcji pszczół jako kontrolę.
- Wypreparować mózgi pszczół (bez płatów optycznych) 48 h po iniekcjach i wyekstrahować gDNA z każdego mózgu pszczoły (bez płatów optycznych) grupy poddanej iniekcji oraz grupy kontrolnej, zgodnie z protokołem producenta (patrz Tabela materiałów).
- Oceń ilość, jakość i czystość wyekstrahowanego gDNA za pomocą spektrofotometru.
- Ilościowo określ względną modyfikację gDNA AmGlutR1, stosując protokół drop-off qPCR i termocykler do PCR w czasie rzeczywistym, zgodnie z opisem w kroku 6.5.
- Oceń względną modyfikację genów przy użyciu 2-ΔCt metoda, gdzie
 i

9. Ilościowe oznaczenie RNA mGlutR1 48 h po wstrzyknięciu RNPmGlutR1mix
- Aby sprawdzić, czy nastąpiła redukcja mRNA mGlutR1, wstrzyknij sześciu pszczołom do oczek pomocniczych mieszaninę RNP_RDL zgodnie z opisem w kroku 5.3.2; sześć niepoddanych zastrzykom pszczół wykorzystaj jako kontrolę. 48 h po wstrzyknięciach wypreparuj mózgi pszczół (bez płatów optycznych), wyekstrahuj całkowite mRNA z każdej wstrzykniętej pszczoły i wydziel je zgodnie z protokołem izolacji RNA producenta (patrz Tabela materiałów).
- Usuń wszelkie pozostałości DNA z próbki, korzystając z zestawu do usuwania DNA (patrz Tabela materiałów).
- Oceń jakość i czystość wyekstrahowanego RNA za pomocą spektrofotometru.
- Ilościowo określ ekspresję mGlutR1 przy użyciu zestawu SYBR Green RT-PCR (patrz Tabela materiałów) w termocyklerze do PCR w czasie rzeczywistym, stosując protokół dostarczony dla zestawu 384-dołkowego. Użyj następujących starterów dla mGlutR1 (mGlut_F CCTCCTCAACGTCTCCTTCATA; mGlut_R TGCCGTTGTGTTCCGATTT) oraz starterów aktyny jako genu referencyjnego [AmActin_F TGCCAACACTGTCCTTTCTG; AmActin_R GAATTGACCCACCAATCCA]. Oblicz względną ekspresję genu, stosując metodę 2-ΔCt (krok 8.6).
Wyniki
Testy przeciwciał anty-RDL
Przeciwciała zostały wytworzone przeciwko koniugatom peptydowym RDL, jak pokazano na Ryc. 1A. Pierwszym krokiem w charakterystyce przeciwciał anty-RDL jest analiza homogenatu białka wyekstrahowanego z mózgu pszczoły za pomocą techniki Western blot z użyciem przeciwciał anty-RDL oraz wtórnego przeciwciała koziego anty-króliczego IgG znakowanego HRP (Ryc. 1A, wstawka). Oba przeciwciała anty-RDL rozpoznały prążek znajdujący się na poziomie ~50-60 kD (strzałka), co odpowiada szacowanej masie białek izoform podjednostki RDL. Aby wykazać, że przeciwciała anty-RDL rozpoznają peptyd w przekrojach mózgu, zastosowano kontrolę z preadsorpcją (Ryc. 1B,C). Po preinkubacji przeciwciał z koniugatami peptydowymi barwienie na preparacie zniknęło. Dowiodło to, że przeciwciała anty-RDL rozpoznają koniugat peptydowy, przeciwko któremu zostały wytworzone. W celu wykazania, że przeciwciała anty-RDL rozpoznają białko w utrwalonej tkance mózgowej, wykorzystano system CRISPR-Cas9 do wyciszenia genu RDL odpowiedzialnego za produkcję białka RDL w komórkach. Ryc. 1D1-3 przedstawia kontrolne przekroje przedniej części mózgu pszczoły znakowane przeciwciałami anty-RDL. Pszczoła ta nie otrzymała wstrzykniętego kompleksu RDL-CRISPR-Cas9 RNP. Na Ryc. 1D1 przeciwciała anty-RDL znakują neuropile w przednim przekroju mózgu pszczoły. Ten sam przekrój przedni na Ryc. 1D2 wykazuje brak fluorescencji ATTO50, ponieważ kompleks RDL-CRISPR-Cas9 nie został wstrzyknięty.
Rysunek 1E1-E3 przedstawia przekrój mózgu pszczoły po wstrzyknięciu RDL-CRISPR-Cas 9 i poddaniu go obróbce z użyciem tej samej ilości przeciwciał, co w przypadku mózgu kontrolnego na Rysunku 1D1-D3. Barwienie anty-RDL było znacznie zredukowane w całym mózgu 48 h po wstrzyknięciu, a rozkład barwienia ATTO50 w mózgu (Rysunek 1E2) wskazuje na skuteczność wstrzyknięć RDL-CRISPR-Cas 9 do oczek median w u pszczoły. W wielu rozproszonych komórkach mózgu występuje ATTO50. Skuteczne wstrzyknięcie RDL-CRISPR-Cas 9 zredukowało ekspresję białka w porównaniu z grupą kontrolną (Rysunek 1E1-3). Z ośmiu immunobarwionych mózgów pszczół tylko jeden wykazywał wysoki stopień rozprzestrzenienia RDL-CRISPR-Cas9 w komórkach ciała grzybowego, protocerebrum i płata antenowego, podczas gdy w pozostałych mózgach barwienie ATTO50 komórek występowało w kielichu ciała grzybowego i kompleksie centralnym, ale nie w płacie antenowym. Należy zaznaczyć, że u tych pszczół redukcja immunobarwienia anty-RDL nie była tak gwałtowna, jak w mózgu pokazanym na Rysunku 1E1.
Następnie, aby oszacować poziom zmodyfikowanego gDNA RDL u pszczół 48 h po wstrzyknięciu RDL-CRISPR-Cas9, przeprowadzono test qPCR drop-off, w którym sonda drop-off została zaprojektowana tak, aby odpowiadała obszarowi jednego z gRNA RDL. W tych eksperymentach, w mózgach pszczół poddanych wstrzyknięciu RDL-CRISPR-Cas9, relatywna redukcja fluorescencji odpowiadała liczbie zmodyfikowanego gDNA w próbkach. W naszych testach obszar odpowiadający tej prowadzącej sekwencji w gDNA u 12 pszczół poddanych wstrzyknięciu RDL-CRISPR-Cas9 wyniósł 64 % ± (średnia ± 30 %SD) w porównaniu z gDNA u pszczół niewstrzykniętych (Rycina 3A).
Następnie, aby oszacować poziom RNA RDL w pszczołach 48 h po iniekcji, przeprowadziliśmy analizę qRT-PCR w osobnej grupie pszczół (Rycina 3B). Porównaliśmy poziom RNA RDL u pszczół poddanych iniekcji RDL-CRISPR-Cas 9 (n = 19) z poziomem RNA u pszczół niepoddanych iniekcji (n = 12). W tych eksperymentach względna redukcja mRNA RDL wyniosła 59% ± (średnia ± 15% SE) w porównaniu z poziomem RNA u pszczół niepoddanych iniekcji. Po zbadaniu poziomu RNA RDL u każdej pszczoły indywidualnie, tylko 13 z 19 pszczół wykazało znaczną redukcję RNA. Dane te wskazują, że iniekcja RDL-CRISPR-Cas9 poprzez ocelli może nie zawsze docierać do dużej liczby komórek mózgu, co potwierdza dane uzyskane z immunobarwienia RDL u pszczół poddanych iniekcji RDL-CRISPR-Cas9. W tych preparatach tylko jedna z 8 pszczół miała RDL CRISP-Cas9 w wielu komórkach mózgu (ciało grzybowate, protocerebrum i płat antenowy) w porównaniu z mózgami innych pszczół, gdzie dystrybucja RDL-CRISPR-Cas9 była skoncentrowana w komórkach protocerebrum (kaliкс ciała grzybowatego i kompleks centralny), ale nie w płacie antenowym (Rycina 4A-D).
Testy przeciwciał anty-mGlutR1
Użyto przeciwciał anty-mGlutR1 otrzymanych od królika przeciwko peptydom sprzężonym specyficznym dla Drosophila melanogaster (Rysunek 2A). Sekwencja tego peptydu wykazuje 94% identyczności z peptydem pszczelim (CLSDKTRFDYFARTVPPD) Rysunek 2A. W pierwszej kolejności sprawdzono reaktywność przeciwciał wobec białek mózgu pszczółly przy użyciu immunoblottingu. Homogenat mózgu pszczół rozdzielono za pomocą 10% SDS-PAGE, przeniesiono elektroforetycznie na błonę nitrocelulozową i inkubowano z przeciwciałami anty-mGlutR1. Wstawka na Rysunku 2A przedstawia dwa prążki o szacowanych masach (103 i 83 kD) odpowiadające dwóm izoformom. Podczas testowania tych przeciwciał na mózgach pszczół miodnych stwierdzono, że znakują one profile neuropilarne i komórki w przekrojach mózgu pszczół, co zilustrowano na Rysunku 2B,D. Po preadsorpcji przeciwciał anty-mGlutR1 sprzężonym peptydem mGlutR1 specyficzne barwienie w przekroju mózgu pszczół zanikło (Rysunek 2C). Potwierdza to, że przeciwciała anty-mGlutR1 rozpoznają ten peptyd (Rysunek 2C). Następnie do oczek środkowych wstrzyknięto mieszaninę mGlutR1-CRISPR-Cas9, stosując jako kontrolę no-guideRNA. U pszczół kontrolnych (n = 7) fluorescencja ATTO50 nie była skoncentrowana w komórkach. W niektórych mózgach zaobserwowano rozproszone znakowanie fluorescencyjne ATTO50. W związku z tym preparat kontrolny na Rysunku 2D1-3 wykazuje barwienie anty-mGlutR1 w mózgu, ale nie wykazuje fluorescencji ATTO50. Po wstrzyknięciu mGlutR1-CRISPR-Cas9 do oczek i jego pobraniu przez wiele komórek, poziom fluorescencji przeciwciał wtórnych był znacznie zredukowany w obszarze, który pobrał funkcjonalne mGlutR1RNP (Rysunek 2E1-3). Pszczoły monitorowano przez 48 h; jedna pszczoła z każdego wariantu eksperymentalnego padła. Zatem w tym eksperymencie sprawdzono siedem pszczół kontrolnych i osiem pszczół CRISPR-Cas9. Wszystkie pszczoły wstrzyknięte CRISPR-Cas9 posiadały komórki, które pobrały mGlutR1-CRISPR-Cas9. Większość tych komórek znajdowała się w kielichu ciała grzybkowatego, kompleksie centralnym i tylnym protocerebrum. Tylko dwie z siedmiu pszczół wykazały znakowanie ATTO550 w wielu komórkach ciała grzybkowatego, kompleksu centralnego i płata antenowego. Przykład jednej z tych pszczół przedstawiono na Rysunku 2E. Redukcja poziomu barwienia mGlutR1 w tych preparatach była istotna. Pozostałe pięć pszczół wykazywało znakowanie ATTO50 odpowiadające pomyślnemu dostarczeniu mGlutR1 CRISPR-Cas9 do ciała grzybkowatego i tylnego protocerebrum, ale nie do płatów antenowych.
Następnie, aby oszacować poziom zmodyfikowanego gDNA mGlutR1 u pszczół 48 h po iniekcji, przeprowadzono test drop-off oparty na qPCR, w którym sonda drop-off została zaprojektowana tak, aby znajdowała się w obszarze w pobliżu przewodnika mGlutR1. W tych eksperymentach, w mózgach pszczół po iniekcji mGlutR1-CRISPR-Cas 9, względna modyfikacja gDNA u 12 pszczół wyniosła 59% ± (średnia ± 3 %SD) w porównaniu z gDNA u pszczół niepoddanych iniekcji (Rycina 3A).
Wyniki te potwierdzono również testami qRT-PCR w innej grupie pszczół, w której oszacowano poziomy RNA mGlutR1 przy użyciu qRT-PCR 48 h po wstrzyknięciu RNPmGlutR1mix (Rycina 3B). Porównano poziom RNA mGlutR1 u pszczół poddanych wstrzyknięciu mGlutR1-CRISPR-Cas9 (n = 6) z poziomami RNA u pszczół niewstrzykniętych (n = 6). W tych eksperymentach względna redukcja mRNA mGlutR1 u pszczół poddanych wstrzyknięciu wyniosła 53% ± (średnia ± 18% SE) w porównaniu do pszczół niewstrzykniętych (Rycina 3B).
Przekroje z czterech różnych pszczół, w których w komórkach Kenyon ciała grzybowatego wyeksponowano RNP RDL-CRISPR-Cas9, przedstawiono na Rysunku 4A-D. Przykład pszczoły z fluorescencją ATTO50 w ciele grzybowatym i płacie czuciowym pokazano na Rysunku 4E,F.
| Przewodniki | Sekwencje | gRNA | RNP |
| [guideRNA:tracrRNA] | [gRNA:Cas9 Nuclease] | ||
| RDL_Guide1 | ACCGTAACGCGACCCCCGCT | GRDL1 | RRDL1 |
| RDL_Guide2 | AACGTCGATCGACTTGACGT | GRDL2 | RRDL2 |
| RDL_Guide3 | CCATGACGAAACACGTGCCC | GRDL3 | RRDL3 |
| mGlu_Guide 1 | CGAAAGTTATCTGACGGT | GMGL1 | RMGL1 |
| mGlu_Guide 2 | TTCAACGAGAGCAAGTTCAT | GMGL2 | RMGL2 |
| mGlu_Guide 3 | GCAAACGTCGGTAGGAGTGA | GMGL3 | RMGL3 |
Tabela 1: Sekwencje nukleotydowe przewodników zaprojektowanych dla RDL oraz mGlutR1.
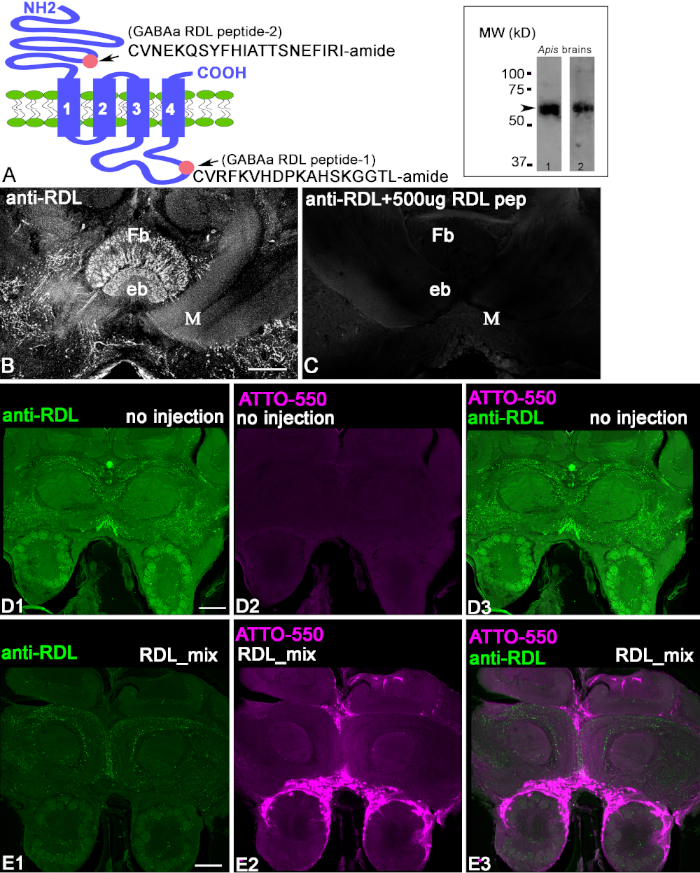
Rycina 1: Charakterystyka przeciwciał anty-RDL. (A) Schemat podjednostki RDL, gdzie różowe kółka wskazują lokalizację peptydu 2 (zewnątrzkomórkowy CVNEKQSYFHIATTSNEFIRI-amid) w N-końcu oraz peptydu 1 (wewnątrzkomórkowy CVRFKVHDPKAHSKGGTL-amid) w C-końcu. Wstawka w A przedstawia prążki w Western blot ekstraktów z mózgu pszczoły miodnej, poddanych obróbce z odpowiadającymi im przeciwciałami anty-RDL (jednym z anty-RDL pep1 i anty-RDL pep2). Każdy immunoblot wykazuje pozorną wielkość białka ~50-60 kD, co odpowiada szacowanym masom różnych izoform podjednostek RDL. (B, C) Preadsorpcja przeciwciał anty-RDL z wykorzystaniem sprzężonego peptydu 1. Obraz w C wykazuje zmniejszenie intensywności barwienia w przekroju, gdy przeciwciała poddano preinkubacji z koniugowanym peptydem 1. Ciało wachlarzowate (Fb) i ciało elipsoidalne (eb) to struktury kompleksu centralnego w mózgu. M = płat przyśrodkowy ciała grzybowatego. (D1-3) Barwienie anty-RDL kontrolnego, niepodanego zastrzyku przekroju mózgu pszczoły po 48 h. Kolor zielony wskazuje profil dodatni pod kątem anty-RDL w mózgu. (D2) Ta pszczoła nie została poddana iniekcji i nie wykazuje fluorescencji ATTO50. (D3) Obrazy z nałożeniem z D1 i D3. (E1-3) Wstrzyknięcie RDL-CRISPR-Cas9 zmniejszyło intensywność barwienia przeciw-RDL po 48 h. (E2Fluorescencja ATTO50 w jądrach komórkowych wskazała na pomyślne dostarczenie RDL-CRISPR-Cas9.E3) Obraz z nałożeniem przeciwciał anty-RDL (zielony) i ATTO50 (czerwony). Pasek skali = 100 μm (B-E). Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
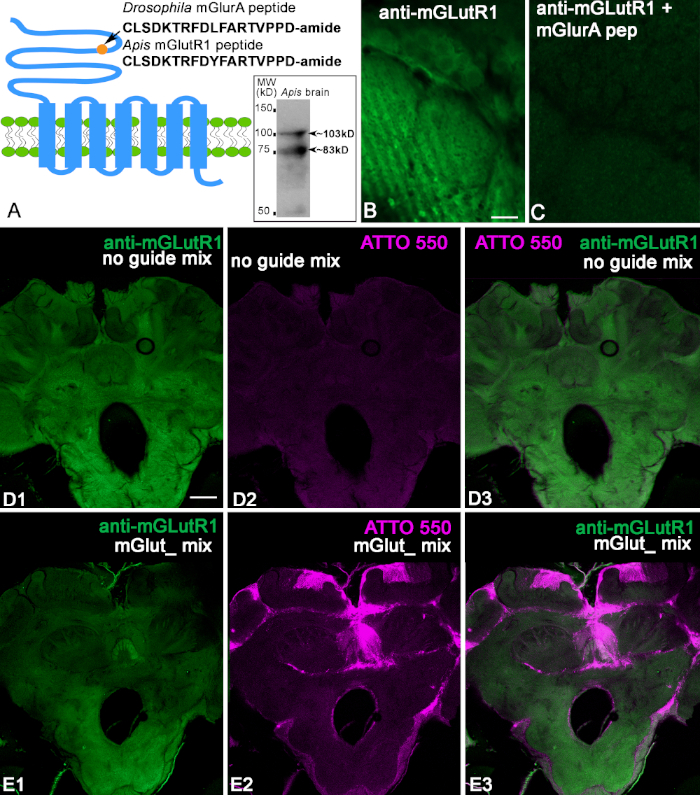
Rysunek 2: Charakterystyka przeciwciał anty-mGlutR1. (A) Schemat GCPR mGluR, który przedstawia Drosophila melanogaster peptyd użyty do immunizacji. Dla porównania, the Apis mellifera peptyd przedstawiono poniżej. Okrąg wskazuje lokalizację peptydydu w obrębie N-końca domeny zewnątrzkomórkowej receptora mGlutR1. Wstawka w A wykazuje, że przeciwciała anty-mGlutR1 rozpoznały w analizie Western blot mózgów pszczół dwa prążki o masach ~103 kD i ~83 kD, które odpowiadają szacunkowym masom znanych izoform.B,C) Kontrola preadsorpcyjna przeciwciała anty-mGlutR1 w dwóch kolejnych przekrojach kłębków płata czuciowego. Obraz anty-mGlutR1 w przekroju kłębków czuciowych w C wykazuje zmniejszenie intensywności barwienia w wyniku preinkubacji peptydu anty-mGlutR1 z przeciwciałem anty-mGlutR1. Procedura ta powoduje wytrącenie przeciwciała z roztworu, co znosi barwienie w porównaniu z B (kontrola, brak peptydy w preinkubacji). (D1) przedstawia barwienie przeciwciałem anty-mGlutR1 w przekroju mózgu pszczoły po iniekcji kontrolnej w ocelli medianum. Iniekcja ta nie zawierała gRNA dla mGlutR1, które umożliwia wyciszenie receptorów mGlutR1 za pomocą CRISPR-Cas9, w związku z czym intensywność barwienia przeciwciałem anty-mGlutR1 nie uległa zmniejszeniu (kolor zielony). (D2Brak fluorescencji ATTO50 wskazuje na brak funkcjonalnego układu CRISPR-Cas9 w mózgu.D3) Nałożone obrazy przeciwciał anty-mGlutR1 i ATTO50. (E1-E3) przedstawia barwienie przeciwciałem anty-mGlutR1 w przekroju mózgu, w którym mGlutR1 został trwale wyciszony 48 h po wstrzyknięciu mGlutR1-CRISPR-Cas 9 do oczka środkowego. W związku z tym barwienie w tym mózgu jest znacznie zredukowane ze względu na skuteczny knockout mGlutR1 w wielu komórkach. (E2Barwienie ATTO50 w wielu jądrach komórkowych w mózgach pszczół wskazuje, że wstrzyknięcie mGlut1-CRISPR-Cas 9 przebiegło pomyślnie.E3) Nałożone obrazy ATTO50 (czerwony) i anty-mGlutR1 (zielony). Pasek skali = 10 μm (B, C); 100 μm (D,E). Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
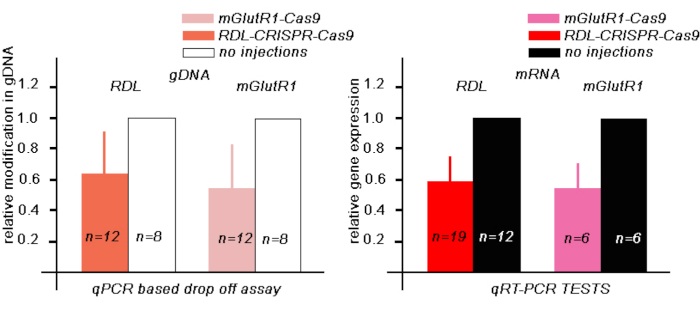
Rycina 3: Ocena zmodyfikowanego gDNA i ekspresji mRNA RDL i mGlutR1 mRNA w mózgach pszczół 48 h po wstrzyknięciu 345 nL odpowiadającego RPN CRISPR-Cas9. (A) Test analizy spadku sygnału (drop-off assay) oparty na qPCR w celu oceny ilości gDNA z obszarem zmodyfikowanym obliczono przy użyciu 2-ΔCt metodą i znormalizowane względem kontrolnych, nieiniekcyjnych mózgów. Dane przedstawiono jako średnia + SD. (B) Do oceny ilości mRNA w pszczołach poddanych iniekcji CRISPR-Cas9 oraz w pszczołach niepoddanych iniekcji wykorzystano test qRT-PCR. Jako gen referencyjny zastosowano AmActin. Względnią ekspresję genu obliczono przy użyciu metody 2-ΔCt metod i znormalizowane względem kontrolnych, niezatrzymanych mózgów. Dane przedstawiono jako średnia + SE. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
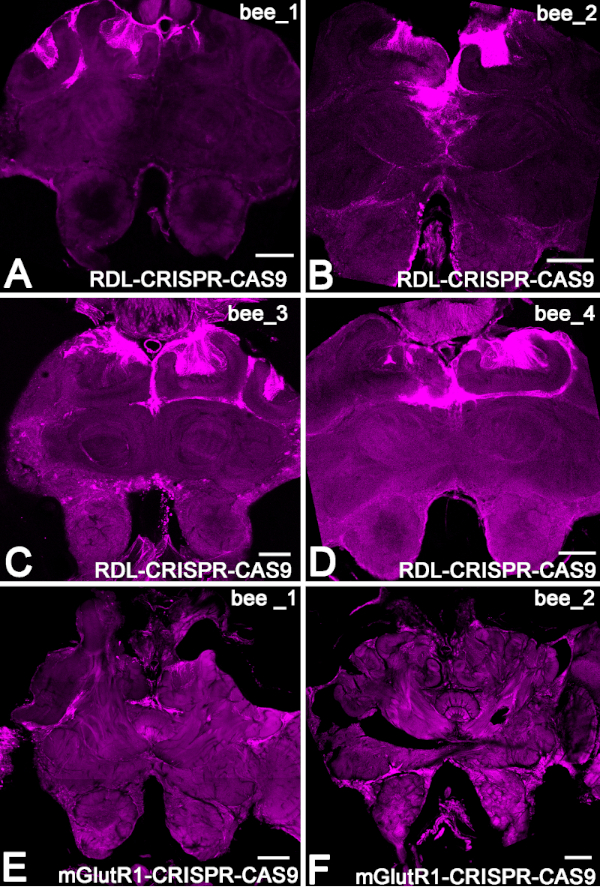
Rycina 4: Przykład rozprzestrzeniania się kompleksów RNP CRISPR-Cas9 w mózgach pszczół z obrazowaniem fluorescencyjnym ATTO50. (A-DPrzekroje mózgu czterech różnych pszczół, w których kompleks RNP RDL-CRISPR-Cas9 wykazano w komórkach Kenyona ciała grzybowatego.E, FPrzykład dwóch mózgów 48 h po iniekcji RNPmGlutR1 CRISPR-Cas9. Pasek skali = 150 μm (A-F). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
Charakterystyka anty-RDL i anty-mGlutR1
Po pierwsze, scharakteryzowaliśmy przeciwciała anty-RDL i anty-mGlutR1 za pomocą immunoblot i wstępnej adsorpcji na wycinkach utrwalonych mózgów pszczół miodnych. Każde przeciwciało zostało stworzone tak, aby rozpoznawać wszystkie znane mu izoformy, a zachodnie analizy pokazują, że rozpoznają one prążki, które odpowiadają ich przewidywanej masie cząsteczkowej. Następnie oba przeciwciała zostały zablokowane przez sprzężony peptyd, przeciwko któremu zostały wytworzone na odcinkach mózgu pszczoły miodnej.
Jednym z pierwszych celów naszego badania było ustalenie, że przeciwciała wytwarzane przeciwko specyficznemu sprzężonemu peptydowi są specyficzne dla jego białka w utrwalonej tkance mózgowej. W tym celu wykorzystaliśmy system CRISPR-Cas9. Zaprojektowaliśmy specjalne prowadnice dla pszczół miodnych RDL i mGlutR1 i użyliśmy każdego z nich do wykonania CRISPR-Cas9 znakowanego za pomocą sondy fluorescencyjnej ATTO550. Dla każdego receptora wstrzyknęliśmy mieszaninę trzech różnych rybonukleoprotein CRISPR-Cas9 do ocelli, aby zmniejszyć ilość docelowego białka w mózgu dorosłej pszczoły miodnej poprzez wyeliminowanie odpowiedniego genu w komórkach, które przyjęły zaprojektowany przez nas system Cas9. W naszym badaniu wykonaliśmy ten krok.
Jednym z pierwszych kluczowych kroków dla powodzenia tych eksperymentów jest zaprojektowanie odpowiednich przewodników RNA. Zalecamy zaprojektowanie do pięciu przewodników RNA, znajdujących się na początku, w środku i na końcu sekwencji genu. W naszych wstępnych pracach przetestowaliśmy je w różnych kombinacjach na trzech do pięciu pszczołach. Próbowaliśmy również różnych stężeń zastrzyków, a także czasów po wstrzyknięciu oraz różnych mieszanek RNP w zastrzykach. Przeanalizowaliśmy mózgi i przetworzyliśmy je za pomocą przeciwciał anty-RDL i anty-mGlutR1. W tych wstępnych testach ustaliliśmy odpowiednią kombinację, czas po wstrzyknięciu, a także stężenie i ilość CRISPR-Cas9 do wstrzyknięcia. Te wstępne testy były podstawą do przeprowadzenia eksperymentów, które szczegółowo opisaliśmy tutaj.
Cel był dwojaki: 1) wykazanie na pszczole, że barwienie przeciwciał uległo zmniejszeniu po leczeniu CRISPR-Cas9 oraz 2) przepracowanie najlepszych warunków eksperymentalnych dla badań behawioralnych. W ten sposób pokazujemy, że jeśli wiele jąder komórkowych zawiera CRISPR-Cas9 48 godzin po wstrzyknięciu, redukcja barwienia anty-RDL i anty-mGlutR1 jest znacząca. Ponadto pokazuje to, że badane przeciwciała specyficznie rozpoznają białko mGlut1 i RDL w preparacie mózgu pszczoły miodnej i że mogą być wykorzystane do badań lokalizacyjnych w mózgu pszczoły miodnej.
Eksperymentalne ustawienie CRISPR-Cas9 do badania behawioralnego
Następnie przeprowadziliśmy eksperymenty tak, aby CRISPR-Cas9 mógł być wykorzystany w badaniach behawioralnych. Zebrano osiem lub dziewięć pszczół miodnych do leczenia kontrolnego i eksperymentalnego. Zostali przebadani behawioralnie przed i po wstrzyknięciu, a następnie ich mózgi zostały przetworzone pod kątem ATTO550 i/lub immunocytochemii w celu określenia regionów mózgu, które wykazywały redukcję docelowego białka. W tym miejscu należy zauważyć, że liczba pszczół pobranych do jednego zestawu doświadczeń była ograniczona do nie więcej niż 8-9 pszczół w warunkach kontrolnych i doświadczalnych. W ten sposób oba warunki mogły zostać przetestowane tego samego dnia. Ponadto, gdy już przygotowaliśmy mieszanki CRISPR-Cas9 do wstrzykiwań, nigdy ich nie zamroziliśmy. Mieszanina CRISPR-Cas9 nie zmieniła swojej mocy, gdy była stosowana 3 dni z rzędu i przechowywana w temperaturze 4-8 °C. Nie testowaliśmy go jednak po 3 dniach.
Jak opisaliśmy w sekcji Wyniki dla obu zestawów eksperymentalnych zastrzyków i dla obu przeciwciał, tylko trzy pszczoły z 16 badanych wykazały dużą ATTO550 rozmieszczenia w ciele grzyba, protocerebru i płatach czułkowych. U wszystkich innych pszczół dystrybucja CRISPR-Cas9 była ograniczona do ciała grzyba, kompleksu centralnego i/lub tylnego protocerebrum. Istotne jest, aby zrozumieć dla wszelkich badań behawioralnych, że przy użyciu tej metody wstrzykiwania redukcja białka docelowego będzie ograniczona tylko do ciała grzyba u większości pszczół. Nie rozciąga się na płat antenowy ani zwój podprzełykowy. Tak więc technika iniekcji, której używamy, jest odpowiednia do badania efektu redukcji receptorów w ciele grzyba i kompleksie centralnym w eksperymentach behawioralnych, podczas gdy inna metoda wprowadzania CRISPR-Cas9 będzie bardziej odpowiednia do badania innych obszarów mózgu.
Podsumowując, nasze badanie wykazało udane zastosowanie CRISPR-Cas9 jako kontroli barwienia przeciwciał w mózgu. W przypadku obu przeciwciał (anty-RDL i anty-mGlutR1), gdy wychwyt mGlutR1-CRISPR-Cas9 lub RDL-CRISPR-Cas9 zakończył się sukcesem, poziom odpowiedniego barwienia przeciwciał również uległ znacznemu zmniejszeniu. Należy również zauważyć, że wstrzyknięcie do oczek doprowadziło do dystrybucji CRISPR-Cas9 w mózgu, która nie była jednorodna. Dystrybucja wahała się od minimalnego obszaru otaczającego oczka i ciało grzyba do wielu komórek w całym mózgu. Zmienność wychwytu mGlutR1-lub RDL-CRISPR-Cas9 przez komórki była prawdopodobnie spowodowana zmiennością w iniekcjach. Nasze dane pokazują, że system CRISPR-Cas9 działa u pszczół miodnych, ale metoda wstrzykiwania musi zostać ulepszona, aby zmniejszyć zmienność wchłaniania CRISPR-Cas9 w mózgach poszczególnych pszczół. W ramach tych ograniczeń możliwe jest teraz zastosowanie tej techniki do manipulowania genami u dorosłych pszczół w eksperymentach behawioralnych.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca została wsparta następującymi nagrodami dla BHS: Human Frontiers Science Program; NIH NIGMS (R01 GM113967); Laboratorium Pomysłów NSF (1556337). Peptyd i przeciwciała przeciwko DmGluRA zostały zaprojektowane w laboratorium dr Serge'a Birmana (Marsylia, Luminy, Francja), gdy IS było wspierane przez Programme d'Urgence FRM/Postdocs UFP20060306548 z Fondation pour la Recherche Medicale. Jesteśmy wdzięczni Danieli Junqueira Marosi i Alexowi Hanterowi z Integrated DNA Technology (IDT) za pomoc w projektowaniu przewodników RDL i testów qPCR.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Kwas octowy | Sigma-Aldrich | A6283_100 mL | western blotting |
| Acrylamide-bis Acrylamide | Bio-Rad | 500 mL 1610156 | western blotting |
| Agaroza | Sigma-Aldrich | A0169-250g | używany z wodą destylowaną do mocowania mózgu pszczoły miodnej w blokach |
| Alexa Fluor 488 AffiniPure F(ab')2 Fragment osła IgG anty-królika (H+L) | Jackson Laboratoria Badawcze | 711-546-152 | przeciwciało drugorzędowe w celu ujawnienia pierwszorzędowych przeciwciał z królika |
| Alt-R CRISPR-cas9 tracrRNA-5'ATTO | IDT | 1075934 | z zaprojektowanym przewodnikiem RNA, tworzy gRNA |
| Alt-R S.p. Nukleaza Cas9 V3 | IDT | 1081058 | enzym używany do wytwarzania rybonukleoproteiny dla systemu CRISPR |
| Nadsiarczan amonu | Bio-RAD | 10 g 1610700 | western blotting |
| Przeciwciała anty-mGlutR1 | Covalab (FRANCJA)/21st Century Biochemical | scharakteryzowane przez autorów w niniejszej pracy | Stosowane do pierwotnej inkubacji mGlut 1 u pszczół miodnych Przeciwciała |
| anty-RDL | 21st Century Biochemical | scharakteryzowane przez autorów w niniejszej pracy | Stosowane do pierwotnej inkubacji RDL u pszczół miodnych |
| Aprotynina | Sigma-Aldrich | Y0001154 | inhibitor proteazy |
| Barraquer Iris Nożyczki 7mm Ostrze Ostra końcówka | World Precision Instruments | 14128-G | używane do preparacji mózgu pszczoły miodnej |
| Benzamidine | Sigma-Aldrich | 12072 | inhibitor proteazy |
| Ostrze (łamliwe) do uchwytu ostrza | Fine Science Tool | 10050-00 | rozwarstwienie do western blotting |
| Uchwyt ostrza i łamacz | Fine Science Tool | 15309 | rozwarstwienie do western blot |
| Kapilary ze szkła borokrzemianowego | World Precision Instruments | 1B100 F | do procedury iniekcyjnej |
| Chemiluminescencyjny substrat do wykrywania western blot | Bio-Rad | 1705062 | western blotting |
| Chloroform | Sigma-Aldrich | 472476-50mL | Izolacja RNA |
| Dithiothreitol | Bio-Rad | 1610611 | western blotting |
| Łatwy zestaw DNA | QIAGEN | 69504 | Ekstrakcja DNA |
| Zestaw bez DNA | INVITROGEN | AM1907 | Służy do usuwania DNA |
| Eppendorf Research plus pipeta, 3-pak | Sigma-Aldrich | Z683884 | |
| Falcon 24 Well Polistyren Multiwell | Falcon | 351147 | Multiwell |
| Kapsułki do zatapiania z płaskim dnem, Polietylenowa | mikroskopia elektronowa Science | 70021 | kosz na sekcje mózgu |
| Kleszcze Dumont #5 (para) | Narzędzie do nauki | 11254-20 | do sekcji mózgu pszczoły miodnej z głowy |
| Kleszcze Dumont #5S (para) | Narzędzie do nauki o czystości | 11252-00 | do oczyszczania mózgu z tchawicy przed rozbiorem |
| Gene Expression Master | Mix Zintegrowane technologie DNA | 1055770 | test |
| zrzutu qPCRAldehyd glutarowy | EMS | 16220 | stosowany do otrzymywania koniugatów peptydowych do kontroli peabsorpcji |
| Glycerol | Sigma-Aldrich | G5516-500 mL | western blott, podłoża do zatapiania |
| Glycine | Bio-Rad | 1610718 | western blotting |
| Hydrofobowa siatka nylonowa z filtrem hydrofobowym | Spectrum Labs | 145910 | na dno kosza na sekcje mózgu |
| Izopropyl alkohol | Sigma-Aldrich | I9030-50mL | izolacja RNA |
| Dziurka od klucza hemocyjanina | likot Sigma-Aldrich | H7017 | służy do przygotowania koniugatów do kontroli |
| Mikroskop kofokalny LSM800 | Zeiss | ||
| mGlu_Guide 1 | IDT | zaprojektowany przewodnik RNA dla CRISPR-Cas 9. Docelowe sekwencje genomu mGlutR1 | |
| mGlu_Guide 2 | IDT zaprojektowane przez IDT | przewodnikowe RNA dla CRISPR-Cas 9. Docelowe sekwencje genomu mGlutR1 | |
| mGlu_Guide 3 | IDT zaprojektowane przez IDT | przewodnikowe RNA dla CRISPR. Docelowe sekwencje genomu mGlutR1 metanol | |
| Sigma-Aldrich | 34860 | western blotting | |
| 96-dołkowa mikropłytka PCR | Stosowany | test zrzutu 4346907 qPCR i mikropłytka qRT-PCR | |
| 384-dołkowa płytka do PCR | Sigma-Aldrich | Z374911 | qRT-PCR |
| Olej mineralny | Sigma-Aldrich | M5904_500mL | do procedury iniekcyjnej |
| Model p87 Płonący brązowy ściągacz do mikropipet | Sutter Instrument Co. | Preparat kapilarny | |
| Mowiol 4-88 | Sigma-Aldrich | 81381 | do zatapiania roztworu |
| Nanolitr 2000 | World Precision Instruments Nanolitrowy | aparat iniekcyjny | |
| Normalna surowica osła Jackson | Research Laboratories | AB_2337258 | środek blokujący do immunocytochemii |
| Nieimmunologiczna surowica kozia | Invitrogen | 50-062Z 100 ml | Środek blokujący do immunoblottingu |
| Bufor wolny od nukleaz | IDT | 1072570 | Bufor wolny od nukleaz, który jest używany do przygotowania iniekcji CRISPR-Cas9 |
| Woda wolna od nukleaz | IDT | AM9337 | wolna od nukleaz, która jest używana do przygotowania systemu CRISPR-Cas 9 |
| OrbitalShaker Mp4 | Genemate | ||
| Paraformaldehyd | Sigma-Aldrich | 158127-500 g | używany z PBS do produkcji utrwalacza dla mózgów pszczół |
| Fluorek fenylometylosulfonylu (PMSF) | Sigma-Aldrich | P7626-250 mg | inhibitor proteazy |
| Bufor fosforanowy Sól fizjologiczna | Sigma-Aldrich | P4417-100TAB | Stosowany z paraformaldehydem jako utrwalaczem; bufor dla przeciwciał |
Bibliografia
- Harms, D. W., et al. Mouse Genome Editing Using the CRISPR/Cas System. Current Protocols in Human Genetics. 83 (15), 7-27 (2014).
- Jinek, M., et al. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Kouranova, E., et al. CRISPRs for Optimal Targeting: Delivery of CRISPR Components as DNA, RNA, and Protein into Cultured Cells and Single-Cell Embryos. Human Gene Therapy. 27 (6), 464-475 (2016).
- Schubert, M., et al. Fluorescently labeled tracrRNA provides efficient genome editing while allowing cellular microscopy and FACS analysis. Genome Editing. , www.idtdna.com 1-3 (2017).
- Kucharski, R., Mitri, C., Grau, Y., Maleszka, R. Characterization of a metabotropic glutamate receptor in the honeybee (Apis mellifera): implications for memory formation. Invertebrate Neuroscience. 7 (2), 99-108 (2007).
- Aronstein, K., Auld, V., Ffrench-Constant, R. Distribution of two GABA receptor-like subunits in the Drosophila CNS. Invertebrate Neuroscience. 2 (2), 115-120 (1996).
- Thompson, M., Steichen, J. C., ffrench-Constant, R. H. Conservation of cyclodiene insecticide resistance-associated mutations in insects. Insect Molecular Biology. 2 (3), 149-154 (1993).
- Chung, B. Y., Kilman, V. L., Keath, J. R., Pitman, J. L., Allada, R. The GABA(A) receptor RDL acts in peptidergic PDF neurons to promote sleep in Drosophila. Current Biology. 19 (5), 386-390 (2009).
- Taylor-Wells, J., Hawkins, J., Colombo, C., Bermudez, I., Jones, A. K. Cloning and functional expression of intracellular loop variants of the honeybee (Apis mellifera) RDL GABA receptor. Neurotoxicology. 60, 207-213 (2017).
- Jones, A. K., Sattelle, D. B. The cys-loop ligand-gated ion channel superfamily of the honeybee, Apis mellifera. Invertebrate Neuroscience. 6 (3), 123-132 (2006).
- Dupuis, J. P., et al. Homomeric RDL and heteromeric RDL/LCCH3 GABA receptors in the honeybee antennal lobes: two candidates for inhibitory transmission in olfactory processing. Journal of Neurophysiology. 103 (1), 458-468 (2010).
- Farooqui, T., Robinson, K., Vaessin, H., Smith, B. H. Modulation of early olfactory processing by an octopaminergic reinforcement pathway in the honeybee. Journal of Neuroscience. 23 (12), 5370-5380 (2003).
- Guo, X., Wang, Y., Sinakevitch, I., Lei, H., Smith, B. H. Comparison of RNAi knockdown effect of tyramine receptor 1 induced by dsRNA and siRNA in brains of the honeybee, Apis mellifera. Journal of Insect Physiology. 111, 47-52 (2018).
- Roth, A., et al. A genetic switch for worker nutrition-mediated traits in honeybees. PLOS Biology. 17 (3), e3000171(2019).
- Kohno, H., Suenami, S., Takeuchi, H., Sasaki, T., Kubo, T. Production of Knockout Mutants by CRISPR/Cas9 in the European Honeybee, Apis mellifera L. Zoological Science (BIOONE). 33 (5), 505-512 (2016).
- Hu, X. F., Zhang, B., Liao, C. H., Zeng, Z. J. High-Efficiency CRISPR/Cas9-Mediated Gene Editing in Honeybee Apis mellifera Embryos. G3: Genes, Genomes, Genetics. 9 (5), 1759-1766 (2019).
- Smith, B. H., Burden, C. M. A Proboscis Extension Response Protocol for Investigating Behavioral Plasticity in Insects: Application to Basic, Biomedical, and Agricultural Research. Journal of Visualized Experiments. (91), e51057(2014).
- Laemmli, U. K. Cleavage of structural proteins during the assembly of the head of bacteriophage T4. Nature. 227 (5259), 680-685 (1970).
- Protein Blotting Guide. , BIO-RAD. http://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_2895.pdf (2019).
- Rodriguez, J., Deinhardt, F. Preparation of a semipermanent mounting medium for fluorescent antibody studies. Virology. 12, 316-317 (1960).
- Custom Alt-R® CRISPR-Cas9 guide RNA. , Integrated DNA Technologies. https://www.idtdna.com/site/order/designtool/index/CRISPR_CUSTOM (2019).
- Bonnafe, E., et al. Effect of a thymol application on olfactory memory and gene expression levels in the brain of the honeybee Apis mellifera. Environmental Science and Pollutant Research (International). 22 (11), 8022-8030 (2015).
- Wang, Y., et al. Regulation of behaviorally associated gene networks in worker honeybee ovaries. Journal of Experimental Biology. 215 (Pt 1), 124-134 (2012).
Przedruki i uprawnienia
