Ten protokół pozwala na czasowy opis wzrostu bakterii w warunkach stresu na poziomie pojedynczej komórki i populacji komórek.
Artykuł metodologiczny
Wieloskalowa analiza wzrostu bakterii w warunkach leczenia stresem
W tym artykule
Podsumowanie
Streszczenie
Analiza zdolności bakterii do wzrostu i przetrwania w warunkach stresu jest niezbędna dla szerokiego zakresu badań mikrobiologicznych. Istotne jest scharakteryzowanie odpowiedzi komórek bakteryjnych na zabiegi wywołujące stres, takie jak narażenie na antybiotyki lub inne związki przeciwdrobnoustrojowe, napromienianie, niefizjologiczne pH, temperaturę lub stężenie soli. Różne metody leczenia stresu mogą zaburzać różne procesy komórkowe, w tym podział komórek, replikację DNA, syntezę białek, integralność błony lub regulację cyklu komórkowego. Efekty te są zwykle związane z określonymi fenotypami na skali komórkowej. W związku z tym zrozumienie zakresu i przyczynowości niedoborów wzrostu lub żywotności wywołanych stresem wymaga dokładnej analizy kilku parametrów, zarówno na poziomie pojedynczej komórki, jak i populacji. Przedstawiona tutaj strategia eksperymentalna łączy tradycyjne monitorowanie gęstości optycznej i testy posiewu z technikami analizy pojedynczych komórek, takimi jak cytometria przepływowa i obrazowanie mikroskopowe w czasie rzeczywistym w żywych komórkach. Ta wieloskalowa struktura pozwala na rozdzielczy w czasie opis wpływu warunków stresowych na los populacji bakterii.
Wprowadzenie
Ogólnym celem tego protokołu jest analiza zachowania komórek bakteryjnych narażonych na leczenie stresem w populacji i na poziomie pojedynczych komórek. Wzrost i żywotność bakterii są tradycyjnie badane na poziomie populacji za pomocą optycznego monitorowania gęstości (OD600 nm), które jest wskaźnikiem zastępczym syntezy masy komórek bakteryjnych, lub za pomocą testów posiewu w celu określenia stężenia żywych komórek w kulturze (jednostka tworząca kolonię na mililitr, CFU/ml). W normalnych (niestresowych) warunkach wzrostu, pomiary OD600nm i CFU/mL są ściśle skorelowane, ponieważ czas podwojenia bakteryjnego zależy bezpośrednio od wzrostu masy komórkowej1,2. Jednak ta korelacja jest często zaburzona w warunkach, które wpływają na syntezę masy komórkowej3, podział komórki4, lub które wywołują lizę komórki. Prostym przykładem jest leczenie stresem, które hamuje podział komórek, co skutkuje powstawaniem nitkowatych komórek bakteryjnych5,6. Komórki nitkowate wydłużają się normalnie, ponieważ synteza masy komórkowej nie jest zaburzona, ale nie są w stanie podzielić się na żywe komórki. Gęstość optyczna hodowli będzie w konsekwencji rosła z czasem w normalnym tempie, ale nie stężenie żywych komórek określone za pomocą testów posiewu (CFU/ml). W tym przypadku, podobnie jak w wielu innych, pomiary gęstości optycznej i poszycia są pouczające, ale nie zapewniają pełnego zrozumienia obserwowanego efektu wywołanego naprężeniem. Te testy zespołowe muszą być połączone z technikami analizy pojedynczych komórek, aby umożliwić dogłębną charakterystykę niedoborów wzrostu wywołanych stresem.
Tutaj opisana jest procedura, która łączy cztery uzupełniające się podejścia eksperymentalne: (1) tradycyjne testy posiewu i podstawowe monitorowanie gęstości optycznej w celu monitorowania żywotności komórek i syntezy masy komórek, odpowiednio; (2) cytometria przepływowa w celu oceny parametrów wielkości komórki i zawartości DNA w dużej liczbie komórek; (3) obrazowanie migawkowe pod mikroskopem w celu analizy morfologii komórki; oraz (4) obrazowanie poklatkowe pojedynczych komórek w komorach mikroprzepływowych w celu zbadania czasowej dynamiki losu komórki. Ta wieloskalowa struktura pozwala na interpretację globalnego wpływu na wzrost i żywotność komórek w świetle zachowania poszczególnych komórek. Procedura ta może być zastosowana do rozszyfrowania reakcji różnych gatunków bakterii na praktycznie każdy stres będący przedmiotem zainteresowania, w tym wzrost w określonych warunkach (tj. pożywka wzrostowa, pH, temperatura, stężenie soli) lub narażenie na antybiotyki lub inne związki przeciwdrobnoustrojowe.
Protokół
1. Hodowla komórkowa, indukcja stresu i procedura pobierania próbek
UWAGA: Użyj sterylnego szkła hodowlanego, końcówek pipet i pożywki wzrostowej przefiltrowanej na 0,22 μm, aby uniknąć cząstek tła. W tym przypadku kultury komórkowe są hodowane w zdefiniowanym podłożu bogatym w autofluorescencję (patrz Tabela materiałów)7,8.
- Szczep bakterii będący przedmiotem zainteresowania z zamrożonego wywaru glicerolowego należy rozprowadzić na płytce z agarozą Luria-Bulion (LB) (w razie potrzeby z selektywnym antybiotykiem) i inkubować w temperaturze 37 °C przez noc (17 godzin).
UWAGA: W przedstawionym tutaj przykładowym eksperymencie wykorzystano Escherichia coli MG1655 hupA-mCherry. Szczep ten wytwarza znakowaną fluorescencyjnie podjednostkę α białka związanego z nukleoidem HU, umożliwiając w ten sposób wizualizację chromosomu w żywych komórkach za pomocą mikroskopii świetlnej9. - Zaszczepić 5 ml pożywki pojedynczą kolonią i rosnąć w temperaturze 37 °C z wytrząsaniem przy 140 obrotach na minutę (obr./min) przez noc (17 godzin). Należy użyć kolb (≥50 ml) lub probówek o dużej średnicy (≥2 cm), aby zapewnić zadowalające napowietrzenie mieszanej kultury.
- Następnego ranka zmierz gęstość optyczną przy 600 nm (OD600 nm) i rozcieńcz kulturę do probówki zawierającej świeżą pożywkę do OD600 nm 0,01. Całkowita objętość kultury musi być dostosowana w zależności od liczby punktów czasowych, które mają być analizowane podczas eksperymentu.
- Załadować próbkę kultury o objętości 200 μl do mikropłytki (0,2 ml na studzienkę objętości roboczej z przezroczystym dnem) i umieścić ją w automatycznym czytniku płytek (patrz tabela materiałów) w celu monitorowania OD600 nm podczas inkubacji w temperaturze 37 °C.
- Inkubować zaszczepioną probówkę w temperaturze 37 °C z wytrząsaniem (140 obr./min) do OD600nm = 0,2, co odpowiada pełnej fazie wykładniczej w bogatym podłożu.
UWAGA: Bardzo ważne jest, aby hodować komórki przez co najmniej 4-5 pokoleń przed osiągnięciem prawidłowego wzrostu wykładniczego. Początkowe inokulum użyte w kroku 1.3 (OD600nm = 0,01) musi być dostosowane w przypadku wzrostu w uboższym podłożu (tj. gdy faza wykładnicza jest osiągana poniżej OD 0,2) lub jeśli pożądane jest więcej pokoleń (np. do określonych badań fizjologicznych lub do przedłużonego leczenia stresu). - Przy OD600nm = 0,2 należy pobrać następujące próbki hodowli odpowiadające punktowi czasowemu t0 (wykładniczo rosnące komórki przed indukcją stresu): (1) Próbka o objętości 150 μl, którą należy natychmiast umieścić w aparacie mikroprzepływowym w celu obrazowania poklatkowego (patrz sekcja 2); (2) Próbka o objętości 200 μl do rozcieńczania i oznaczania posiewu (patrz sekcja 3); (3) Próbka o objętości 250 μl, którą należy umieścić na lodzie w celu analizy metodą cytometrii przepływowej (sekcja 4); (4) Próbka o objętości 10 μl, którą należy natychmiast umieścić na szkiełku podstawowym z agarozą w celu obrazowania mikroskopowego (patrz sekcja 5).
- Poddać hodowlę komórkową pozostałą w probówce specyficznemu leczeniu stresu, które chcesz zbadać, i inkubować w temperaturze 37 °C z wytrząsaniem (140 obr./min).
UWAGA: Hodowla rosnąca w automatycznym czytniku płytek do monitorowania OD600nm powinna być również poddana obróbce stresowej. - W odpowiednich punktach czasowych po poddaniu działaniu stresu (t1, t2, t3 itd.) należy pobrać następujące próbki komórek z hodowli poddanej stresowi: 1) próbkę o objętości 200 μl do rozcieńczenia i oznaczenia posiewu (patrz sekcja 2); (2) Próbka o objętości 250 μl do nałożenia na lód do analizy metodą cytometrii przepływowej (sekcja 3); (4) Próbka o objętości 10 μl, którą należy natychmiast umieścić na szkiełku podstawowym z agarozą w celu obrazowania obrazowego pod mikroskopem (patrz sekcja 4).
UWAGA: Każdy zabieg wywołujący stres ma skuteczność, która jest zależna od dawki i czasu. W związku z tym może być konieczne przeprowadzenie wstępnych badań w celu określenia dawki i czasu trwania leczenia, które należy zastosować w celu uzyskania optymalnych wyników. Można to osiągnąć, przeprowadzając monitorowanie OD za pomocą automatycznego czytnika płytek (potencjalnie związanego z testami posiewu) hodowli komórkowej poddanej działaniu różnych dawek i czasów ekspozycji. W przedstawionym tutaj eksperymencie hodowlę komórkową potraktowano antybiotykiem hamującym podziały komórkowe cefaleksyną (Ceph.) w końcowym stężeniu 5 μg/ml przez 60 minut. Cefaleksyna została następnie wypłukana przez granulowanie komórek w probówce o pojemności 15 ml za pomocą wirowania (475 g, 5 min), usunięcie supernatantu, ponowne zawieszenie osadu komórkowego w równej objętości świeżej pożywki przez delikatne pipetowanie i przeniesienie do czystej probówki. Umyte komórki inkubowano w temperaturze 37 °C z wytrząsaniem (140 obr./min) w celu umożliwienia odzysku. Próbkę pobrano w temperaturze t60 (60 minut po dodaniu cefaleksyny odpowiadającej próbce "poddanej działaniu cefaleksyny w 60 minutach"), t120 (60 minut po umyciu) i t180 (120 minut po umyciu).
2. Test posiewu
UWAGA: Test posiewu pozwala na pomiar stężenia komórek zdolnych do wytworzenia CFU w próbkach hodowlanych. Procedura ta ujawnia szybkość, z jaką jedna komórka dzieli się na dwie żywotne komórki i pozwala wykryć zatrzymanie podziału komórki (np. wydłużenie czasu wytwarzania bakterii podczas lizy komórek).
- Przygotować 10-krotne seryjne rozcieńczenia do 10-7 z 200 μl próbki hodowli w świeżej pożywce. Płytka 100 μl odpowiedniego rozcieńczenia na nieselektywnych płytkach agarozy LB w celu uzyskania od 3−300 kolonii po całonocnej inkubacji w temperaturze 37 °C.
UWAGA: Seryjne rozcieńczanie w świeżej pożywce musi być wykonywane szybko, aby ograniczyć podziały bakteryjne. Alternatywnie, naukowcy mogą rozważyć użycie roztworu soli fizjologicznej bez źródła węgla, aby zapobiec podziałom komórek podczas procesu rozcieńczania. - Następnego dnia policz liczbę kolonii, aby określić stężenie żywotnych komórek (CFU/ml) w każdej próbce hodowli. Wykreślić jtk/ml w funkcji czasu dla kultur komórkowych niepoddanych działaniu substancji i poddanych działaniu środka.
3. Cytometria przepływowa
UWAGA: Poniższa sekcja opisuje przygotowanie próbek komórek do analizy metodą cytometrii przepływowej. Ta technika analizy ujawnia rozkład wielkości komórek i zawartości DNA dla dużej liczby komórek. Jeśli to możliwe, zaleca się natychmiastowe przetworzenie próbek cytometrii przepływowej. Alternatywnie, próbki mogą być przechowywane na lodzie (do 6 godzin) i analizowane jednocześnie pod koniec dnia, po wykonaniu posiewu i obrazowania mikroskopowego.
- Rozcieńczyć 250 μl próbki hodowli, aby otrzymać 250 μl przy stężeniu ~15 000 komórek/μL (co odpowiada OD600nm ~0,06) w świeżej pożywce w temperaturze 4 °C.
UWAGA: Inkubacja na lodzie ograniczy wzrost i modyfikację morfologiczną komórek. Alternatywnie, użytkownik może rozważyć wykonanie utrwalenia komórek w 75% etanolu, jak zwykle zaleca się w cytometrii przepływowej10. - W przypadku barwienia DNA należy wymieszać próbkę bakteryjną z roztworem barwnika fluorescencyjnego DNA o stężeniu 10 μg/ml (w stosunku 1:1) i inkubować w ciemności przez 15 minut przed analizą próbki.
- Przełóż próbkę do cytometru przepływowego o natężeniu przepływu ~120 000 komórek/min. Pozyskiwanie światła rozproszonego do przodu (FSC) i rozproszonego bocznie (SSC) oraz sygnału fluorescencji barwnika fluorescencyjnego DNA (FL-1) przy odpowiednich ustawieniach.
- Wykreślić histogramy gęstości komórek FSC i FL-1, aby przedstawić rozkład wielkości komórek i zawartość DNA w populacji komórek.
4. Obrazowanie mikroskopowe migawkowe
UWAGA: Poniższa część opisuje przygotowanie preparatów mikroskopowych i akwizycję obrazu do analizy migawkowej populacji. Procedura ta dostarczy informacji dotyczących morfologii komórek (długość, szerokość, kształt komórki) i wewnątrzkomórkowej organizacji nukleoidowego DNA.
- Przed rozpoczęciem obserwacji rozgrzej termostatowaną komorę mikroskopu do temperatury 37 °C, aby ustabilizować temperaturę. Komora ta pozwala na modulację temperatury optyki mikroskopu i stolika na próbkę podczas eksperymentów poklatkowych.
- Przygotuj szkiełka z agarozą zgodnie z opisem w Lesterlin i Dubarry7.
- Usuń plastikową folię z dolnej części niebieskiej ramki (patrz Tabela materiałów), pozostawiając wydrążoną folię z tworzywa sztucznego po drugiej stronie. Przyklej niebieską ramkę do szkiełka mikroskopowego.
- Odpipetować ~150 μL stopionego 1% roztworu pożywki agarozowej i wlać do przegródki z niebieską ramką. Szybko przykryj czystym szkiełkiem nakrywkowym, aby usunąć nadmiar płynu i odczekaj kilka minut, aż podkładka agarozowa zastygnie w temperaturze pokojowej.
- Gdy próbka komórkowa jest gotowa, usuń szkiełko nakrywkowe i folię z tworzywa sztucznego z niebieskiej ramki. Wlać 10 μl próbki komórek na podkładkę agarozową i delikatnie przechylić szkiełko podstawowe, aby rozprowadzić kroplę. Gdy cała ciecz zostanie zaadsorbowana, przyklej czyste szkiełko nakrywkowe na niebieską ramkę, aby uszczelnić próbkę. Szkiełko mikroskopowe jest teraz gotowe do mikroskopii.
- Umieść szkiełko na stoliku mikroskopu i wykonaj akwizycję obrazu w świetle przechodzącym (z obiektywem z kontrastem fazowym) oraz ze wzbudzeniem źródła światła na odpowiednich długościach fal (560 nm dla mCherry).
- Wybierz pola widoku, które zawierają izolowane komórki, aby ułatwić automatyczne wykrywanie komórek podczas analizy obrazu. Upewnij się, że zobrazowano co najmniej 300 komórek, aby umożliwić rzetelną analizę statystyczną populacji komórek.
5. Obrazowanie poklatkowe mikrofluidyki
UWAGA: Poniższa część wyjaśnia przygotowanie płytek mikroprzepływowych (patrz Tabela materiałów), ładowanie komórek, program mikrofluidyczny i akwizycję obrazów poklatkowych. Ta procedura obrazowania ujawnia zachowanie poszczególnych komórek w czasie rzeczywistym.
- Usunąć roztwór konserwujący z płytki mikroprzepływowej i zastąpić go świeżym podłożem podgrzanym do temperatury 37 °C, zgodnie z opisem w instrukcji obsługi oprogramowania mikroprzepływowego.
- Uszczelnij płytkę mikroprzepływową do układu kolektora i kliknij przycisk Zalewanie.
- Umieścić płytkę mikroprzepływową z układem kolektora na stoliku mikroskopowym i podgrzać w temperaturze 37 °C przez ~2 godziny przed rozpoczęciem akwizycji mikroskopowej.
UWAGA: Ten etap podgrzewania ma kluczowe znaczenie, aby uniknąć dylatacji komory mikroprzepływowej, która zmieniłaby ostrość mikroskopu podczas eksperymentu poklatkowego i pogorszyłaby akwizycję obrazu. - Uszczelnij płytkę mikroprzepływową. Zastąp pożywkę z dołka 8 150 μl próbki hodowli i zastąp pożywkę z dołka 1 do 5 żądanym podłożem z odczynnikiem wywołującym stres lub bez niego.
- Uszczelnij płytkę mikroprzepływową i umieść ją na stoliku mikroskopu.
- W oprogramowaniu mikroprzepływowym (patrz Tabela materiałów) uruchom procedurę ładowania ogniwa. Sprawdź, czy obciążenie komórek jest zadowalające, patrząc pod mikroskop w świetle przechodzącym. Uruchom procedurę ładowania komórek po raz drugi, jeśli gęstość komórek w komorze jest niewystarczająca.
- Ostrożnie ustaw ostrość w trybie światła przechodzącego i wybierz kilka pól view, które pokazują izolowane bakterie. Ważne jest, aby wybrać pola, które nie są przepełnione, aby móc monitorować wzrost izolowanych komórek w czasie (zalecane jest ~10−20 komórek na 100μm2). Ułatwi to również wykrywanie komórek podczas analizy obrazu.
- W oprogramowaniu mikroprzepływowym kliknij przycisk Utwórz protokół. Zaprogramuj wstrzyknięcie pożywki wzrostowej na ekwiwalenty czasu 1-2 generacji, aby umożliwić komórkom adaptację (opcjonalnie). Następnie zaprogramuj wstrzyknięcie medium wywołującego stres w ciągu 10 minut przy 2 psi, a następnie wstrzyknięcie przy 1 psi na żądany czas leczenia stresu. Jeśli zamierzasz przeanalizować regenerację komórek po stresie, zaprogramuj wstrzykiwanie świeżej pożywki wzrostowej na żądany czas.
UWAGA: W przedstawionym tutaj eksperymencie cefaleksynę wstrzykiwano na 10 minut przy 2 psi, a następnie 50 minut przy 1 psi. Następnie wstrzyknięto świeżą pożywkę wzrostową przy 2 psi przez 10 minut, a następnie przez 3 godziny przy 1 psi. - W razie potrzeby wykonuj obrazowanie mikroskopowe w trybie poklatkowym z 1 klatką co 10 minut, wykorzystując kontrast fazowy w świetle przechodzącym i źródło światła wzbudzającego 560 nm dla sygnału mCherry.
UWAGA: Ważne jest, aby rozpocząć akwizycję obrazu mikroskopowego w tym samym czasie, co rozpoczęcie protokołu iniekcji mikroprzepływowej.
6. Analiza obrazu
UWAGA: Ta sekcja krótko opisuje kluczowe etapy przetwarzania i analizy obrazów z mikroskopii migawkowej i poklatkowej. Otwieranie i wizualizacja obrazów mikroskopowych odbywa się za pomocą oprogramowania ImageJ/Fiji (https://fiji.sc/)11 o otwartym kodzie źródłowym. Ilościowa analiza obrazu jest wykonywana za pomocą oprogramowania open source ImageJ/Fiji wraz z darmową wtyczką MicrobeJ12 (https://microbej.com). Ten protokół korzysta z wersji MicrobeJ 5.13I.
- Otwórz oprogramowanie Fiji i wtyczkę MicrobeJ.
- W celu analizy migawki upuść wszystkie obrazy odpowiadające jednemu szkiełku mikroskopowemu (jednej próbce) do paska ładowania MicrobeJ, aby połączyć obrazy i zapisać uzyskany plik stosów obrazów. Aby uzyskać dane poklatkowe, po prostu upuść stos obrazów na pasku ładowania MicrobeJ.
- Uruchom automatyczne wykrywanie konturów komórek w oparciu o segmentację obrazu kontrastu fazowego i, w stosownych przypadkach, nukleoidów w oparciu o segmentację barwionego sygnału fluorescencji DNA. Sprawdź wizualnie dokładność wykrywania komórek i w razie potrzeby użyj narzędzia do edycji MicrobeJ do korekty. Zapisz uzyskany plik wynikowy.
UWAGA: Ustawienia używane do wykrywania komórek E. coli są wskazane w Tabeli materiałów (patrz kolumna Uwagi/Opis w MicrobeJ). W przypadku innych gatunków bakterii (zwłaszcza bakterii niemających kształtu pręcików) użytkownik musi dopracować ustawienia przed wykryciem (patrz samouczek MicrobeJ). W przypadku obrazów poklatkowych preferowane może być uruchomienie półautomatycznego wykrywania komórek za pomocą narzędzia do edycji MicrobeJ, aby umożliwić skupienie się na losie poszczególnych komórek (patrz samouczek MicrobeJ). - Kliknij ikonę ResultJ, aby zakończyć analizę i uzyskać okno ResultJ. Z tego punktu można wygenerować wiele różnych typów wykresów wyjściowych. Wykreśl znormalizowane histogramy kształtu/długości komórki i średniej liczby nukleoidów na komórkę.
Wyniki
Opisana procedura została zastosowana do analizy zachowania komórek Escherichia coli K12 podczas przejściowej ekspozycji na cefaleksynę, antybiotyk specyficznie hamujący podział komórek (Rysunek 1A)13. W celu zbadania dynamiki chromosomów podczas tej kuracji wykorzystano szczep hupA-mCherry E. coli, który produkuje znakowane fluorescencyjnie białko HU związane z chromosomalnym DNA8,9. Komórki hupA-mCherry E. coli w fazie wzrostu wykładniczego analizowano przed (t0) oraz 60 min po inkubacji z cefaleksyną (t60). Następnie antybiotyk wypłukano i przeanalizowano regenerację populacji komórek po 1 h (t120) oraz 2 h (t180) (Rysunek 1B).
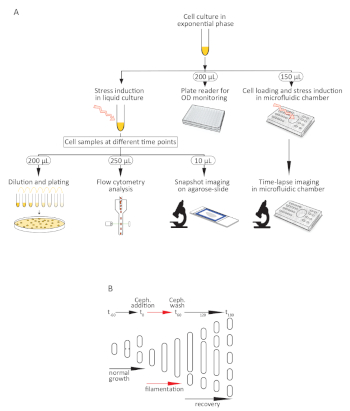
Rysunek 1: Procedura analizy odpowiedzi bakterii na stresy. (A) Schemat metody. (B) Schemat ilustrujący morfologię komórek podczas normalnego wzrostu w pożywce bogatej oraz podczas przejściowej ekspozycji na cefaleksynę (Ceph.), od momentu dodania w (t0) oraz po przemywaniu cefaleksyną z (t60) do (t180). Prosimy o kliknięcie tutaj, aby wyświetlić powiększoną wersję tej figury.
Równoległa ewolucja OD oraz CFU/mL jest pierwszym wskaźnikiem pomagającym zrozumieć efekt zastosowania zabiegów stresowych. Te dwa parametry są ściśle skorelowane podczas niezakłóconego wzrostu, lecz często ulegają rozprzężeniu i ewoluują niezależnie w warunkach stresu. Hodowle komórkowe rosnące w obecności cefaleksyny wykazały podobny wzrost OD600nm jak hodowle niestresowane (Rysunek 2A), co pokazuje, że lek nie wpłynął na syntezę masy komórkowej. Jednakże stężenie żywych komórek nie wzrosło w obecności cefaleksyny ze względu na ścisłe hamowanie podziałów komórkowych (Rysunek 2B). Komórki zaczęły ponownie dzielić się po usunięciu cefaleksyny i ostatecznie osiągnęły stężenie równoważne z hodowlą niestresowaną w czasie (t180). Wyniki te odzwierciedlają efekt bakteriostatyczny cefaleksyny, która indukuje w pełni odwracalne hamowanie podziałów komórkowych. Różne stresory będą prowadzić do różnych rozprzężeń krzywych OD i CFU/mL, w zależności od wywołanego efektu (np. modyfikacja morfologii komórki, taka jak filamentacja lub pęcznienie, śmierć komórek z lizą lub bez niej). Niepełna lista możliwych wyników wskazujących na różne efekty indukowane stresem została przedstawiona na Rysunku 2C.
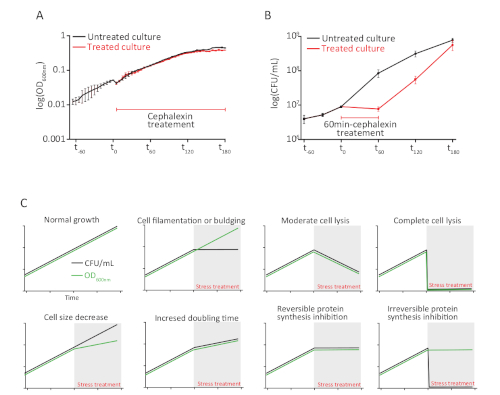
Rysunek 2: Monitorowanie wzrostu bakterii w nieleczonych i leczonych cefaleksyną komórkach na poziomie populacyjnym. (A) Monitorowanie gęstości optycznej (OD60 nm/ml). (B) Stężenie żywych komórek (CFU/mL) w kulturach niepoddanych leczeniu oraz leczonych cefaleksyną przez 60 min. Słupki błędów wskazują odchylenie standardowe dla trzech powtórzeń doświadczenia. (C) Schematy możliwych wyników i związanych z nimi efektów stresu. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Analiza pojedynczych komórek jest niezbędna do dokładnej interpretacji odpowiedzi na stres obserwowanej na poziomie populacji. Cytometria przepływowa umożliwia badanie wielkości komórek oraz zawartości DNA dla kilku tysięcy komórek14,15 (Rycina 3). Ekspozycja na cefaleksynę wywoła równoległy wzrost wielkości komórek i zawartości DNA (t60). Po usunięciu cefaleksyny wielkość komórek i zawartość DNA w populacji stopniowo malały, aż stały się zbliżone do wartości w populacji niepoddanej stresowi w t180. Wyniki te wykazują, że cefaleksyna nie hamowała replikacji DNA i spowodowała powstanie komórek włóknistych, które zawierały kilka równoważników chromosomowych. Włókna te podzieliły się na komórki o prawidłowej wielkości i zawartości DNA po wypłukaniu leku. Wyniki cytometrii przepływowej byłyby bardzo odmienne w przypadku stresów hamujących syntezę DNA, które prowadzą do powstania komórek włóknistych zawierających tylko jeden niereplikujący się chromosom. W takim przypadku wielkość komórek zwiększałaby się w podobny sposób, ale nie byłoby to powiązane ze wzrostem zawartości DNA.
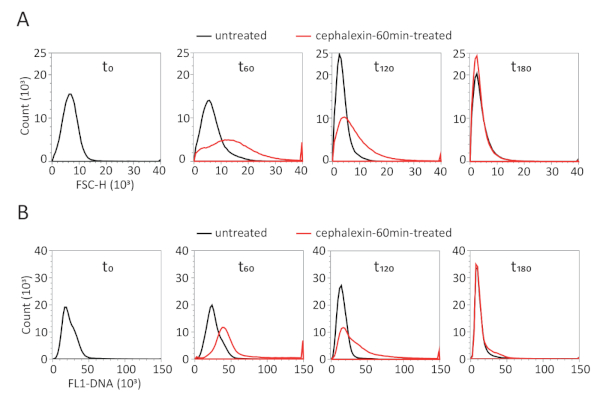
Rysunek 3: Reprezentatywna analiza cytometrii przepływowej komórek nieleczonych oraz komórek traktowanych cefaleksyną przez 60 min. (A) Histogramy rozkładu wielkości komórek (FSC-H). (B) histogramy zawartości DNA (FL1-SYTO9). analizowano n = 120 0 komórek. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Mikroskopia obrazowania typu snapshot została wykorzystana do zbadania morfologii komórek oraz wewnątrzkomórkowej organizacji DNA, wykazanej przez lokalizację HU-mCherry (Rycina 4A). Cefaleksyna wywoła powstanie długich komórek o prawidłowej szerokości, bez przegród podziałowych. Gładkie filamenty te zawierały regularnie rozmieszczone struktury DNA zwane nukleoidami, co potwierdza, że cefaleksyna nie wpłynęła na replikację i segregację chromosomów. Ilościowa analiza obrazów w dużej mierze potwierdziła wzrost rozmiaru komórek i zawartości DNA, zaobserwowany wcześniej w cytometry flow (Rycina 4B,C). Wyniki byłyby zupełnie inne w przypadku stresów indukujących uszkodzenia DNA, które prowadzą do powstawania komórek filamentowych, w których replikacja trwa, ale segregacja jest upośledzona. W takim przypadku rozmiar komórek i zawartość DNA wzrosłyby w podobny sposób, ale komórki zawierałyby pojedynczą, nieustrukturyzowaną masę DNA. Obrazy typu snapshot mogłyby również ujawnić inne rodzaje aberrantnych kształtów komórek lub obecność komórek mini, bezjądrowych lub lizowanych (komórek widmo).
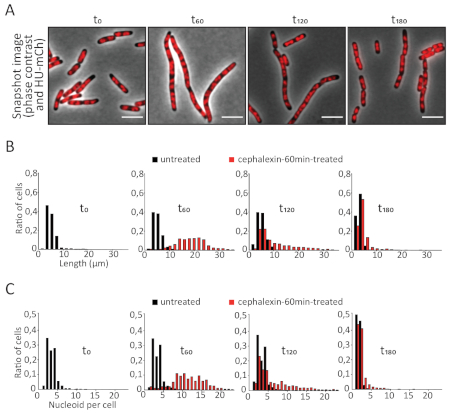
Rysunek 4: Analiza obrazów z mikroskopii komórek niepoddanych działaniu preparatu oraz komórek traktowanych cefaleksyną przez 60 minut. (A) Reprezentatywne obrazy mikroskopowe przedstawiające kontrast fazowy (szary) oraz sygnał HU-mCherry (czerwony). (B) Histogramy rozkładu długości komórek. Pasek skali = 5 µm. (C) Histogramy liczby nukleoidów na komórkę. Dla każdej próbki przeanalizowano od 80 do 20 komórek. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Mikroskopia poklatkowa z wykorzystaniem urządzenia mikroprzepływowego16 pomogły w określeniu wcześniej zaobserwowanych fenotypów i dostarczyły dodatkowych informacji dotyczących rozwoju i przyczyn niedoboru wzrostu. Obrazy time-lapse (Rysunek 5A i Film 1) potwierdzono, że elongacja komórek (synteza masy komórkowej) oraz replikacja i segregacja chromosomów nie zostały zahamowane przez ekspozycję na cefaleksynę. Dodatkowo ujawniono proces regeneracji po usunięciu cefaleksyny. Analiza linii komórek nitkowatych wykazała, że podziały komórkowe wznawiają się ok. 20 min po wypłukaniu leku (Rysunek 5B). Powstałe w wyniku podziału komórki były żywe, ponieważ z kolei uległy one dalszym podziałom, co ostatecznie doprowadziło do powstania 33 komórek o prawidłowym rozmiarze i zawartości DNA. Pozwoliło to na obliczenie całkowitego czasu generacji wynoszącego ok. 31 min w ciągu 180 min trwania eksperymentu, co jest wartością zbliżoną do czasu generacji obliczonego dla populacji niestresowanej na podstawie pomiarów CFU/ml (ok. 3 min).
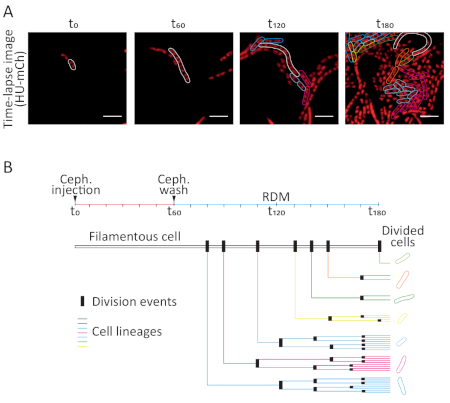
Rycina 5: Analiza time-lapse z wykorzystaniem mikroskopii komórek traktowanych cefaleksyną przez 60 min. (A) Reprezentatywne obrazy mikroskopowe przedstawiające kontrast fazowy (szary) oraz sygnał HU-mCherry (czerwony). Monitorowana komórka nitkowata jest zaznaczona białą obwódką, a komórki podzielone różnymi kolorami. Pasek skali = 5 µm. (B) Schematyczna reprezentacja linii komórkowej filamentowej odpowiadającej panelowi (A) oraz do Film 1. Aby wyświetlić tę figurę w powiększeniu, kliknij tutaj.
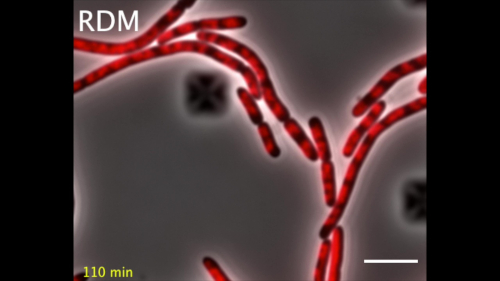
Film 1: Film z mikropłynowego układu przedstawiający E. coli HU-mCherry traktowany cefaleksyną. Kefaleksynę wstrzyknięto po 60 min, a następnie przez 3 h podawano świeżą pożywkę RDM. Czas zaznaczono kolorem żółtym (1 klatka co 10 min). Pasek skali = 5 µm. Kliknij tutaj, aby obejrzeć ten film (Kliknij prawym przyciskiem myszy, aby pobrać).
Dyskusja
Konieczne jest zwrócenie uwagi na stan wzrostu komórek podczas zabiegu. Hoduj komórki przez kilka pokoleń, zanim osiągniesz pełną fazę wykładniczą. Aby ta metoda zakończyła się sukcesem, ważne jest, aby wszystkie próbki komórek były pobierane jednocześnie i najlepiej było analizować tylko jedną kulturę poddaną działaniu substancji i jedną niepoddaną działaniu substancji w tym samym czasie. Próbki komórek do obrazowania mikroskopowego muszą być utrzymywane w temperaturze doświadczalnej przez cały czas trwania procedury. Następnie konieczne jest wstępne podgrzanie komory mikroskopu i komory mikroprzepływowej przed rozpoczęciem eksperymentu. Jeśli próbki komórek do cytometrii przepływowej nie mogą być łatwo przeanalizowane, można je przechowywać w lodzie do 6 godzin. Inkubacja na lodzie ograniczy wzrost i modyfikację morfologiczną komórek. Alternatywnie, użytkownik może rozważyć zastosowanie utrwalenia komórek w etanolu 75%, co jest zwykle zalecane w cytometrii przepływowej10. Jeśli protokół wymaga umycia cewki indukcyjnej naprężeń z pożywki, należy bardzo ostrożnie odwirować i pipetować komórki, aby uniknąć uszkodzenia potencjalnie nieprawidłowych komórek.
Zarówno cytometria przepływowa, jak i analiza migawkowa zapewniają dostęp do parametrów wielkości komórki i zawartości DNA, przy czym migawki zapewniają dodatkową obserwację morfologii komórki. Barwienie DNA za pomocą DAPI10 (4',6-diamidyn-2-fenyloindolu) lub innych stabilnych barwników DNA można przeprowadzić, jeśli nie jest dostępna fuzja fluorescencyjna w celu obserwacji nukleoidów w organizmie będącym przedmiotem zainteresowania. Jeśli nie można przeprowadzić analizy cytometrii przepływowej, ważne jest, aby zobrazować i przeanalizować dużą liczbę komórek za pomocą mikroskopii.
Obrazowanie mikroskopowe można również przeprowadzić przy użyciu szczepów przenoszących fuzje fluorescencyjne z białkami zaangażowanymi w określone szlaki zainteresowania. Pomogłoby to ujawnić wpływ stresu na różne procesy komórkowe, takie jak replikacja, transkrypcja, synteza ściany komórkowej lub podział komórki. Metoda ta może być stosowana do wielu gatunków bakterii, przy czym jedynym wymogiem jest to, że aparat mikroprzepływowy musi być zgodny z morfologią komórek. Standardowe płytki mikroprzepływowe są wygodne dla bakterii w kształcie pałeczek o szerokości komórek od 0,7 μm do 4,5 μm. Jednak ziarniaki, owakoki lub inne szczepy bakteryjne o szczególnych kształtach muszą zostać przetestowane. Alternatywnie, jeśli eksperymenty mikroprzepływowe nie mogą być wykonane z powodu niedostępności sprzętu lub niekompatybilnych szczepów bakterii, obrazowanie poklatkowe można wykonać na szkiełkach z agarozą przez maksymalny czas 2 godzin.
Ogólną zaletą tej wieloskalowej analizy jest zapewnienie globalnej wizji wpływu indukcji stresu na kilka aspektów zdolności wzrostu bakterii (tj. syntezę masy, żywotność komórek, morfologię komórek, integralność błony, zawartość DNA) oraz sposób, w jaki ewoluują one w czasie w populacji bakterii rosnących w warunkach stresu. Pozwala również na analizę przywrócenia normalnego wzrostu na poziomie pojedynczej komórki i populacji. Podejście to ma zastosowanie do szerokiej gamy gatunków bakterii i praktycznie do każdego rodzaju leczenia stresu, takiego jak narażenie na antybiotyki lub inne związki przeciwdrobnoustrojowe, analiza wpływu interakcji z innymi organizmami w populacjach wielogatunkowych lub wpływ mutacji genetycznej.
Oświadczenia
Autorzy zadeklarowali brak sprzecznych interesów.
Podziękowania
Autorzy dziękują F. Cornetowi za dostarczenie szczepu hupA-mCherry, A. Dedieu za pomoc techniczną przy cytometrii i A. Ducret za pomoc przy MicrobeJ. Finansowanie: C. Lesterlin dziękuje instytucjom Inserm i CNRS, a także programowi ATIP-Avenir, Fundacji Schlumbergera na rzecz Edukacji i Badań (FSER 2019), finansowaniu ANR dla programu badawczego PlasMed (ANR-18-CE35-0008), a także FINOVI za finansowanie dla J. Cayron; La Ligue contre le cancer o sfinansowanie sprzętu do cytometru przepływowego. Wkład autorów: C.L. i J.C. zaprojektowali procedurę i napisali artykuł; J.C. przeprowadził eksperymenty i przeanalizował dane.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Agaroza | BioRad | 1613100 | Certyfikowana biologia molekularna agaroza |
| Attune NxT Akustyczny cytometr ogniskujący | ThermoFisher scientific | A24858 | Cytometr |
| CellASIC ONIX System mikroprzepływowy | Merck Millipore | CAX2-S0000 | System mikroprzepływowy |
| CellASIC ONIX2 FG | Merck Millipore | ONIX2 1.0.1 | Oprogramowanie mikroprzepływowe |
| CellASIC ONIX2 Manifold Basic | Merck Millipore | CAX2-MBC20 | System rozdzielaczy |
| CytoOne 96-dołkowa płytka z pokrywką | Starlab | CC7672-7596 | Mikropłytka o objętości roboczej 0,2 ml i przezroczystym płaskim dnie, do automatycznego czytnika płytek |
| E. szczep coli przenoszący insercję chromosomów do fuzji | hupA-mCherryStworzony przez transdukcję P1 hupA-mCherry w oprogramowaniu E. coli MG1655 | ||
| Fiji | ImageJ | https://fiji.sc/ | Image. Cytuj Schindelin et al., jeśli jest używany w publikacji |
| : Gene Frame | , Thermo Scientific | AB-0578 | Niebieska ramka (125 μ L, 1,7 x 2,8 cm) |
| Luria-Bulion agaroza pożywka | MP Biomedicals | 3002232 | Pożywka wzrostowa do testu galwanicznego |
| Wtyczka MicrobeJ | Imagej/Fiji | https://www.microbej.com/ | Wtyczka do analizy obrazu mikroskopowego. Cytuj Ducret et al. W przypadku użycia w publikacji; Ustawienia wykrywania: Dla bakterii : Obszar (μ m2): 0,1-max; Długość (μ m): 0,5-max; Szerokość (μ m): 0,6-max; Zakres (μ m): 0,5-max; Kątowość (rad): 0-0,3; 0-max dla wszystkich pozostałych parametrów. Dla nukleoidu: Tolerancja: 500; Próg: Lokalny; 0-max dla wszystkich pozostałych parametrów |
| Płytki mikroprzepływowe CellASIC ONIX | Merck Millipore | B04A-03-5PK | Płytka do systemu mikroprzepływowego |
| Mikroskop Nikon eclipse Ti | Nikon | Mikroskop fluorescencyjny | |
| MOPS EZ Rich Defined Medium (RDM) | Teknova | M2105 | Pożywka bogata w wzrost, 10x mieszanina MOPS, 0,132 M K2HPO4, 10x AGCU, 5x Suplement EZ, 20% glukozy. Filtrowane w 0,22 μ m |
| SYTO9 Zielona fluorescencyjna plama kwasu nukleinowego | ThermoFisher scientific | S34854 | Barwnik fluorescencyjny DNA |
| TECAN Infinite M1000 | TECAN | 30034301 | Automatyczny czytnik płytek |
Bibliografia
- Donachie, W. D., Begg, K. J., Vicente, M. Cell length, cell growth and cell division. Nature. 264 (5584), 328-333 (1976).
- Donachie, W. D., Blakely, G. W. Coupling the initiation of chromosome replication to cell size in Escherichia coli. Current Opinion in Microbiology. 6 (2), 146-150 (2003).
- Patterson, D., Gillespie, D. Effect of Elevated Temperatures on Protein Synthesis in Escherichia coli. Journal of Bacteriology. 112 (3), 1177(1972).
- Begg, K. J., Donachie, W. D. Cell shape and division in Escherichia coli: experiments with shape and division mutants. Journal of Bacteriology. 163 (2), 615-622 (1985).
- Van De Putte, P., Van Dillewijn, J., Roersch, A. The Selection of Mutants of Escherichia Coli with Impaired Cell Division at Elevated Temperature. Mutation Research. 106, 121-128 (1964).
- Walker, A. R. Initial characterization of temperature-sensitive cell division mutants of Escherichia coli. Biochemical and Biophysical Research Communications. 47 (5), 1074-1079 (1972).
- Lesterlin, C., Duabrry, N. Investigating Bacterial Chromosome Architecture. Chromosome Architecture. 1431, http://link.springer.com/10.1007/978-1-4939-3631-1_6 61-72 (2016).
- Stracy, M., et al. Live-cell superresolution microscopy reveals the organization of RNA polymerase in the bacterial nucleoid. Proceedings of the National Academy of Sciences. 112 (32), E4390-E4399 (2015).
- Fisher, J. K., et al. Four-dimensional imaging of E. coli nucleoid organization and dynamics in living cells. Cell. 153 (4), 882-895 (2013).
- Lesterlin, C., Pages, C., Dubarry, N., Dasgupta, S., Cornet, F. Asymmetry of chromosome Replichores renders the DNA translocase activity of FtsK essential for cell division and cell shape maintenance in Escherichia coli. PLoS genetics. 4 (12), e1000288(2008).
- Schindelin, J., et al. Fiji - an Open Source platform for biological image analysis. Nature Methods. 9 (7), (2019).
- Ducret, A., Quardokus, E. M., Brun, Y. V. MicrobeJ, a tool for high throughput bacterial cell detection and quantitative analysis. Nature Microbiology. 1 (7), 16077(2016).
- Rolinson, G. N. Effect of beta-lactam antibiotics on bacterial cell growth rate. Journal of General Microbiology. 120 (2), 317-323 (1980).
- Boye, E., Løbner-Olesen, A. Flow cytometry: illuminating microbiology. The New Biologist. 2 (2), 119-125 (1990).
- Rieseberg, M., Kasper, C., Reardon, K. F., Scheper, T. Flow cytometry in biotechnology. Applied Microbiology and Biotechnology. 56 (3-4), 350-360 (2001).
- Nolivos, S., et al. Role of AcrAB-TolC multidrug efflux pump in drug-resistance acquisition by plasmid transfer. Science. 364 (6442), 778-782 (2019).
- Chao, Y., Zhang, T. Optimization of fixation methods for observation of bacterial cell morphology and surface ultrastructures by atomic force microscopy. Applied Microbiology and Biotechnology. 92 (2), 381-392 (2011).
Przedruki i uprawnienia
