Wyjaśnienie sposobu działania nowego antybiotyku jest trudnym zadaniem w procesie odkrywania leków. Celem opisanej tutaj metody jest zastosowanie mikrokalorymetrii izotermicznej z wykorzystaniem calScreener w profilowaniu przeciwbakteryjnym, aby zapewnić dodatkowy wgląd w interakcje lek-drobnoustroje.
Artykuł metodologiczny
Profilowanie metaboliczne w celu określenia bakteriobójczego lub bakteriostatycznego działania nowych produktów naturalnych za pomocą mikrokalorymetrii izotermicznej
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Ze względu na globalne zagrożenie rosnącą opornością na środki przeciwdrobnoustrojowe, pilnie potrzebne są nowe antybiotyki. Badamy naturalne produkty z Myxobacteria jako innowacyjne źródło takich nowych związków. Jednym z wąskich gardeł w tym procesie jest zazwyczaj wyjaśnienie ich sposobu działania. Niedawno wprowadziliśmy mikrokalorymetrię izotermiczną jako część rutynowego procesu profilowania. Technologia ta pozwala na badanie wpływu ekspozycji na antybiotyki na całkowitą odpowiedź metaboliczną bakterii, w tym procesy, które są oddzielone od tworzenia biomasy. Co ważne, efekty bakteriostatyczne i bakteriobójcze są łatwo rozpoznawalne bez ingerencji użytkownika podczas pomiarów. Jednak mikrokalorymetria izotermiczna jest dość nowym podejściem, a zastosowanie tej metody do różnych gatunków bakterii zwykle wymaga wstępnej oceny odpowiednich warunków pomiaru. Dostępne są pewne termogramy referencyjne niektórych bakterii, co znacznie ułatwia interpretację wyników. Ponieważ pula danych referencyjnych stale rośnie, spodziewamy się, że metodologia będzie miała coraz większy wpływ w przyszłości i oczekujemy, że pozwoli na dogłębne analizy odcisków palców umożliwiające różnicowanie klas antybiotyków.
Wprowadzenie
Celem tej metody jest zastosowanie mikrokalorymetrii izotermicznej (IMC) jako testu o średniej przepustowości w profilowaniu sposobu działania (MoA) nowych związków przeciwbakteryjnych. Metoda ta ujawnia dane dotyczące aktywności związków na gatunkach bakterii i dostarcza informacji na temat bakteriobójczego lub bakteriostatycznego charakteru samego związku.
Wzrost pojawiającej się oporności na środki przeciwdrobnoustrojowe (AMR) jest problemem globalnym i prowadzi do mniej skutecznego leczenia powszechnych infekcji znanymi antybiotykami1. Trwają jednak poszukiwania nowych związków i leków, które mogą zastąpić znane antybiotyki lub działać w połączeniu ze znanymi antybiotykami, a działania te opierają się na różnych podejściach. Produkty naturalne odgrywają kluczową rolę w obecnych kampaniach odkrywania leków, a w szczególności w odkrywaniu leków przeciwinfekcyjnych2. Jednak identyfikacja nowych struktur wiodących do opracowania antybiotyków jest długotrwałym i wymagającym finansowo procesem3. W związku z tym wczesne etapy odkrycia są niezwykle ważne, aby już na wczesnym etapie można było zidentyfikować najbardziej obiecujące rusztowania. Początkowe kroki w odkrywaniu leków naturalnych obejmują uzyskanie struktury związku, określenie aktywności in vitro wraz z MoA i identyfikacją celu. Większość udanych związków, które kwalifikują się do dalszego rozwoju, powinna wykazywać korzystne spektrum aktywności (tj. szerokie spektrum aktywności w przypadku środków przeciwbakteryjnych) oraz nowy MoA, dzięki któremu można przezwyciężyć istniejący wcześniej oporność na środki przeciwdrobnoustrojowe. Obiecujące rusztowania są następnie zazwyczaj badane w testach wtórnych, które obejmują biodostępność in vivo, toksyczność i metabolizm4. Oprócz problemów finansowych, odkrywanie leków w produktach naturalnych stoi przed kolejnymi wyzwaniami związanymi z kosztami i trudnościami technicznymi związanymi z izolacją i oczyszczaniem związków, co z kolei może utrudnić uzyskanie wielomiligramowych lub nawet gramowych ilości na wczesnych etapach procesu odkrywania5,6. Dlatego niezwykle ważne jest, aby w badaniach nad produktami naturalnymi móc przeprowadzać najnowocześniejsze badania przesiewowe pierwotne przy minimalnych ilościach związków w celu podjęcia świadomej decyzji o dalszych inwestycjach w celu udostępnienia nowatorskiego produktu naturalnego do rozwoju przedklinicznego. Dzięki zastosowaniu IMC do profilowania antybakteryjnego ilość potrzebnego związku jest znacznie zmniejszona w porównaniu ze standardowymi metodami. Technika ta dostarcza również bardziej szczegółowych informacji na temat interakcji nowych leków ze społecznością mikrobiologiczną7.
IMC to sprawdzona metoda pomiaru całkowitej energii w wyniku wszystkich biologicznych, fizycznych i biochemicznych procesów i reakcji w systemie biologicznym. Uwalnianie energii bakteryjnej jest proporcjonalne do całkowitych reakcji metabolicznych8. W systemie zamkniętym, takim jak używany mikrokalorymetr, poziomy ciepła mogą być mierzone w zakresie mikrowatów w celu zbadania kinetyki metabolicznej bakterii9,10,11,12. Ciepło (energia) uwalniana przez bakterie jest związana z funkcjami komórkowymi, które leżą u podstaw ich metabolizmu i które niekoniecznie są proporcjonalne do biomasy komórkowej.
Początkowo możliwość zastosowania kalorymetrii izotermicznej do testów mikrobiologicznych była ograniczona ze względu na jej niską przepustowość i dużą liczbę testów. Zastosowany mikrokalorymetr jest jednak wyjątkowy, ponieważ łączy zalety kalorymetrii izotermicznej ze zwiększoną przepustowością i niższym zapotrzebowaniem na związki, co czyni go cennym narzędziem do zastosowań związanych z odkrywaniem leków10. Co więcej, przyrząd zapewnia dalsze korzyści w porównaniu z alternatywnymi metodami pomiaru kinetyki wzrostu bakterii, takimi jak standardowa metoda zmętnienia, która opiera się na pomiarze gęstości optycznej przy 600 nm (OD<600). Pomiar OD600 opiera się na założeniu, że zwiększona gęstość optyczna jest równa wzrostowi drobnoustrojów, tym samym pomijając obecność komórek niezdolnych do życia. Ta metoda została również skrytykowana, ponieważ wyklucza małe warianty kolonii i komórki trwałe11. W przeciwieństwie do tego, IMC umożliwia obserwację w czasie rzeczywistym dowolnego rodzaju żywotnych komórek. Jeśli komórki są uśpione, nadal wykazują aktywność metaboliczną i dlatego mogą być wykryte przez IMC, podczas gdy takie zjawiska nie są wykrywalne za pomocą standardowej metody zmętnienia11. Inne zalety IMC to krótszy czas badania wrażliwości na środki przeciwdrobnoustrojowe, pomiar interakcji leków w złożonej społeczności oraz standardowe metody analizy bez niszczenia próbki7.
Technologia IMC została zaimplementowana w szerokim zakresie badań, począwszy od mikrobiologii, a skończywszy na termogenezie i biologii nowotworów13,14,15,16,17. Zastosowania mikrobiologiczne obejmują oznaczanie minimalnych stężeń hamujących (MIC) związków przeciwko różnym szczepom bakterii. Przeprowadzono kilka badań i stwierdzono, że dane MIC z kalorymetrii izotermicznej dla większości gatunków bakterii można uzyskać szybciej, a wyniki są podobne w porównaniu z innymi (standardowymi) metodami oznaczania MIC12,18,19. Dalsze zastosowania IMC obejmują obserwację interakcji leków i łączenie terapii lekowych ze złożonymi zbiorowiskami bakteryjnymi, takimi jak biofilmy11. Badanie skupiające się na profilowaniu MoA wykazało, że mikrokalorymetr może wykryć różnicę w cefalosporynach pierwszej i drugiej generacji, podczas gdy różne antybiotyki z tym samym MoA wykazują podobną krzywą przepływu ciepła w porównaniu do siebie18.
Tutaj opisujemy użycie IMC do profilowania MoA nowych naturalnych produktów za pomocą nowego przyrządu do mikrokalorymetrii izotermicznej. Metodę tę stosuje się do wyznaczania efektywnych stężeń antybiotyków oraz do opisywania charakterystyki antybiotyków pod kątem mechanizmów bakteriobójczych lub bakteriostatycznych. Metoda ta może być szeroko stosowana w profilowaniu MoA związków i może zastąpić lub przynajmniej uzupełnić standardowe metody mikrobiologiczne. Przyszłe badania obejmą dogłębne analizy odcisków palców, które umożliwią różnicowanie klas antybiotyków w oparciu o mechanizmy docelowe.
Protokół
UWAGA: Temperatura przyrządu musi być ustawiona zgodnie z użytą bakterią co najmniej dzień wcześniej, aby zapewnić stabilność systemu. W tym przypadku próbki DSM30008 Acinetobacter baumannii są badane w temperaturze 30 °C.
1. Przygotowanie kultury
- Badany szczep (tutaj: A. baumannii) rozprowadzić na płytce agarowej CASO i inkubować przez noc w inkubatorze statycznym w temperaturze 30 °C.
- Przygotować posiew przez noc, zaszczepiając pojedynczą kolonię w MHB (bulion Muellera-Hintona) i inkubować w inkubatorze z wytrząsaniem przy 180 obr./min w temperaturze 30 °C.
2. Przygotowanie próbki
- Użyj probówek o pojemności 1,5 ml, aby przygotować zakres stężeń wybranego leku lub związku (np. dodając 1,5 μl 100-krotnego roztworu podstawowego w DMSO; patrz krok 2.3).
- Rozcieńczyć kulturę przez noc w pożywce MHB.
- Zmierzyć gęstość optyczną nocnej hodowli za pomocą spektrofotometru o długości fali 600 nm.
- Rozcieńczyć kulturę, aby uzyskać 5 x 10⁵ jednostek tworzących kolonie (CFU)/ml w świeżej pożywce MHB. An OD600 jednego równa się w przybliżeniu 5 x 10⁸ CFU/ml (np. Escherichia coli, Staphylococcus aureus, A. baumannii).
UWAGA: Ważne jest, aby skalibrować współczynnik konwersji OD600 do CFU/ml dla każdego pojedynczego szczepu bakteryjnego w zastosowanych warunkach hodowli.
- Dodać 150 μl komórek do probówek przygotowanych w kroku 2.1, zapewniając prawidłowe końcowe stężenie badanego leku lub związku oraz prawidłowe końcowe stężenie komórek.
- Wymieszaj związek z komórkami przez wirowanie.
UWAGA: Płytka próbki (patrz Tabela materiałów) ma sześć rzędów, z których każdy zawiera osiem studzienek, w sumie 48 dołków; Rzędy A i F są odniesieniem termodynamicznym. W związku z tym do tych studzienek nie można załadować żadnych próbek, do tych studzienek ładowane są odpowiednie media. W jednym cyklu można zmierzyć 32 próbki testowe przy użyciu studzienek w rzędach B-E. Pojedyncza próbka badawcza powinna być badana co najmniej w dwóch egzemplarzach (w tym przypadku: wszystkie próbki przeprowadzono w trzech egzemplarzach). Należy uwzględnić kontrolę wzrostu.
3. Przygotowanie do wstawiania
- Przenieść 120 μl z mieszaniny przygotowanej w kroku 2.4 do wkładek z tworzywa sztucznego.
UWAGA: Użyj pipetowania wstecznego w kroku 3.1, aby zapobiec rozpryskiwaniu się cieczy po bokach plastikowych wkładek, co może prowadzić do zakłóceń w prawidłowych odczytach sygnału. - Umieść wszystkie fiolki tytanowe w uchwytach (patrz Tabela materiałów) za pomocą pęsety.
- Delikatnie przenieś wkładki do tytanowych fiolek w płytce uchwytu.
- Luźno umieść tytanowe pokrywki na wszystkich fiolkach tytanowych.
4. Wstaw ładowanie
- Przenieś uchwyt z tytanowymi kubkami na stację pobierania próbek i umieść w wyznaczonym miejscu.
- Użyj klucza dynamometrycznego ustawionego na siłę 40 cNm, aby dokręcić wszystkie pokrywy.
5. Przeprowadzanie próbek
- W oprogramowaniu calView rozpocznij nowy eksperyment (rysunek uzupełniający 1).
- Wycofaj ramię wprowadzające próbkę z urządzenia.
- Umieść uchwyt na kubek na "moście", kolumna 8 skierowana w stronę otworu do wkładania próbki i delikatnie wepchnij uchwyt na kubek do przyrządu w wyznaczonej "pozycji 1". Poczekaj 10 minut, aż system się ustabilizuje. Oznacz studnie eksperymentalne.
- Popchnij sample ramię wkładające, aż uchwyt na kubek znajdzie się w wyznaczonej "pozycji 2". Poczekaj 20 minut, aż system się ustabilizuje.
- Wciśnij ramię do wkładania próbki do "pozycji 3" i cofnij ramię do wkładania próbki do momentu, aż znajdzie się w "pozycji pracy". Podświetl wszystkie dołki w oprogramowaniu i wybierz Start reakcji (rysunek uzupełniający 4).
- Uruchom eksperyment, aż odczyty emisji ciepła stabilnie powrócą do zera.
UWAGA: Upewnij się, że wszystkie studzienki zachowują się podobnie w tych krokach. Rysunek uzupełniający 5 ilustruje, na co należy zwrócić uwagę, jeśli studzienki są prawidłowo załadowane. W przypadku nieprawidłowego obciążenia powtórz kroki 5.2-5.4.
6. Wyjmij uchwyt na kubek
- W oprogramowaniu wybierz opcję Stop (Rysunek uzupełniający 6). Następnie oprogramowanie zapyta, czy "jesteś pewien", wybierz Tak (Rysunek uzupełniający 7) i zapisz eksperyment na dysku lub pulpicie w celu analizy danych (Rysunek uzupełniający 8).
- Włóż ramię do wkładania próbki całkowicie do przyrządu i włącz magnesy, aby wyjąć uchwyt na kubek.
- Poluzować pokrywki, wyjąć wkładki i umieścić fiolki i pokrywki w szklanych uchwytach i umieścić na 4 godziny w temperaturze 180 °C, a następnie umieścić fiolki i pokrywki w eksykatorze, aby upewnić się, że pokrywki i fiolki są suche.
7. Analizowanie danych
- Otwórz oprogramowanie (Rysunek uzupełniający 9), wybierz Otwórz eksperyment w lewym górnym rogu (Rysunek uzupełniający 10). W wyskakującym okienku wybierz interesujący Cię eksperyment i naciśnij Otwórz (Rysunek uzupełniający 11). Aplikacja otworzy eksperyment w domyślnym widoku studni (rysunek uzupełniający 12).
- Naciśnij Zaznacz wszystko lub Ctrl+A (Rysunek uzupełniający 13).
- Naciśnij przycisk Definiuj linię bazową, ten parametr normalizuje dane w każdej pozycji (Rysunek uzupełniający 14). W wyskakującym okienku wybierz okres czasu >30 min znajdujący się w fazie opóźnienia (przepływ ciepła musi być niski, od zera do dziesięciu μW; Rysunek uzupełniający 15). Po wybraniu przedziału czasowego linii bazowej, wybrana linia bazowa pojawi się na termogramie w kolorze zielonym. Zamknij okno Definiuj przekrój linii bazowej.
- Naciśnij przycisk Zapisz lub Ctrl+S i zamknij oprogramowanie (Rysunek uzupełniający 16).
- Otwórz internetową aplikację do analizy kalorymetrii Symcel (https://symcel.shinyapps.io/symcel_calorimetricgrowth/).
- Aby przesłać plik do aplikacji do analizy kalorymetrycznej, naciśnij przycisk Przeglądaj (rysunek uzupełniający 17), wybierz eksperyment i naciśnij przycisk Otwórz (rysunek uzupełniający 18). Parametry metaboliczne zostaną obliczone automatycznie dla 32 próbek w aplikacji internetowej (rysunek uzupełniający 19).
- Aby dopasować dane przepływu ciepła do modeli wzrostu Gompertza i/lub Richarda, kliknij przycisk Funkcja wzrostu. Dopasowane modele wzrostu zostaną wyświetlone w sekcji "Skumulowane", również porównane z surowymi danymi w sekcji "Przepływ" (rysunek uzupełniający 20).
- Aby pobrać wszystkie obliczone parametry, naciśnij przycisk Pobierz miary. Wybierz lokalizację pliku i naciśnij przycisk Zapisz (Rysunek uzupełniający 21). Plik zostanie wyeksportowany do arkusza kalkulacyjnego w celu dalszych obliczeń.
Wyniki
Aby instrument mógł zarejestrować sygnał cieplny, wymagana jest wystarczająca liczba bakterii generujących ciepło. Opóźnienie w czasie do momentu wykrycia przepływu ciepła oznacza, że bakterie nie wytwarzają jeszcze sygnału cieplnego przekraczającego granicę detekcji. Wykrycie ciepła wydzielanego z próbki bakteryjnej jest zatem bezpośrednio związane ze wzrostem aktywności bakterii, w tym z ich wzrostem. Znane jest, że wzrost bakterii oraz inne procesy metaboliczne są silnie modyfikowane przez dodanie leku przeciwbakteryjnego. Aby określić, czy badany nowy produkt naturalny wykazuje działanie bakteriobójcze, bakteriostatyczne, czy kombinację obu tych mechanizmów działania (MoA), wybrano niewielki zestaw leków referencyjnych i zarejestrowano termogramy, z którymi porównano dane z eksperymentów z produktem naturalnym. Na podstawie mocy wybranych antybiotyków wybrano zakres stężeń zbliżony do minimalnego stężenia hamującego (MIC), wyznaczonego metodą mikrorozcieńczeń w bulionie.
Cyprofloksacyna celuje w bakteryjną gyrazę DNA i topoizomerazę IV, w związku z czym wykazuje bakteriobójczy mechanizm działania (MoA). Jednakże bakteriobójcze działanie indukowane przez cyprofloksacynę jest zależne od stężenia, a przy podawaniu niewystarczających dawek może ona wywoływać również efekt bakteriostatyczny21. Tetracyklina i chloramfenikol celują odpowiednio w podjednostkę 30S i 50S rybosomu i działają bakteriostatycznie poprzez hamowanie syntezy białek22,23. Rifampicyna działa poprzez hamowanie zależnej od DNA polimerazy RNA i może wywoływać zarówno efekty bakteriobójcze, jak i bakteriostatyczne, w zależności od zastosowanej dawki24. Badany tutaj produkt naturalny został wyizolowany z Myxobacteria i wykazał silną aktywność przeciwko Gram-ujemnym i Gram-dodatnim patogenom bakteryjnym. Badając jego MoA i cel molekularny, chcieliśmy ustalić, czy nowy produkt naturalny wykazuje działanie bakteriobójcze i/lub bakteriostatyczne oraz czy profile termiczne traktowanych Acinetobacter baumannii są podobne do termogramów bakterii traktowanych wspomnianymi wyżej lekami referencyjnymi.
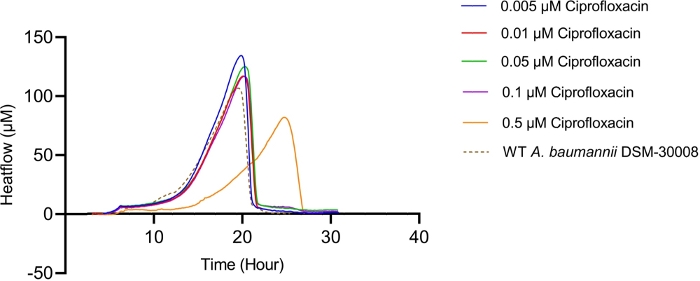
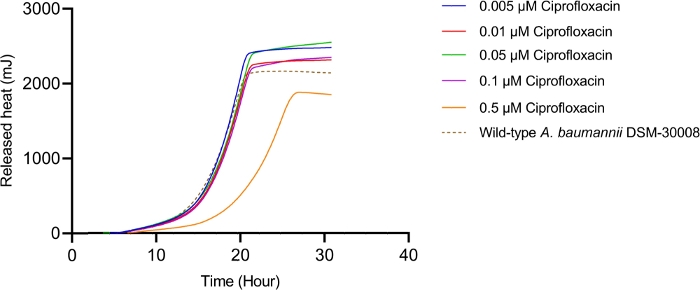
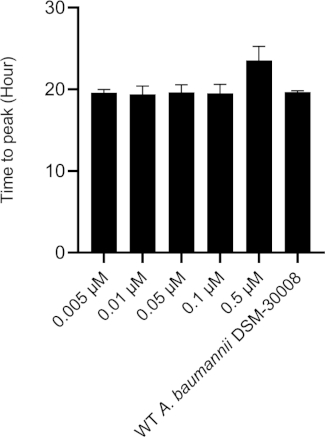
Termogramy uzyskane po wystawieniu A. baumannii DSM-30008 na działanie cyprofloksacyny w seryjnych rozcieńczeniach przedstawiono na Rysunku 1A. Stężenia od 0,005 µM do 0,1 µM mają minimalny wpływ na wzrost i metabolizm A. baumannii. Jednakże traktowanie komórek cyprofloksacyną w stężeniu 0,5 µM prowadzi do znaczącego przesunięcia czasu trwania fazy adaptacyjnej oraz niższego maksymalnego przepływu ciepła. Te dwie zmiany wspólnie wpływają na czas do osiągnięcia szczytu (Rysunek 1C), który wydłuża się o około 6 godzin. Na Rysunku 1B skumulowane wydzielone ciepło przedstawiono w funkcji czasu. Tutaj widoczny jest wpływ stężeń, który objawia się zmianą nachylenia krzywej. Ilościowe określenie nachylenia termogramu pozwala wyznaczyć maksymalną szybkość metaboliczną A. baumannii w obecności cyprofloksacyny, co pokazano na Rysunku 1D, gdzie można zaobserwować towarzyszący spadek szybkości metabolicznej komórek traktowanych cyprofloksacyną w stężeniu 0,5 µM. Zmiany szybkości metabolicznej komórek traktowanych niższymi stężeniami są minimalne. Eksperyment ten można by dodatkowo udoskonalić poprzez dodanie stężeń pośrednich w zakresie 0,1–1 µM, aby zaobserwować wyraźniejszą, stopniową zmianę pomiędzy stężeniami nie wywołującymi efektu a stężeniem skutkującym znacznym opóźnieniem fazy adaptacyjnej i spadkiem szybkości metabolicznej. Niemniej jednak, trendy tych zmian potwierdzają bakteriobójczy mechanizm działania (MoA) cyprofloksacyny.
Rycina 1A: Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rycina 1B: Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rycina 1C: Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
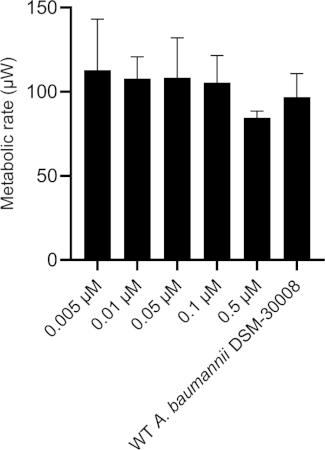
Rycina 1D: Wpływ cyprofloksacyny na wzrost i metabolizm A. baumannii DSM-30008. (A) Termogramy przedstawiające przepływ ciepła (µW) w funkcji czasu (h) dla szczepu dzikiego (WT) A. baumannii DSM-30008, nieleczonego i wystawionego na działanie cyprofloksacyny. (B) Skumulowane ciepło (mJ) w funkcji czasu (h). (C) Czas do osiągnięcia szczytu (h) z paskami błędów (odchylenie standardowe). (D) Tempo metabolizmu (µW) z paskami błędów (odchylenie standardowe). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
W przypadku tetracykliny nie zaobserwowano istotnych zmian w termogramach dla wszystkich badanych stężeń aż do późnej fazy wykładniczej, rozpoczynającej się po 8 godzinach (patrz Rysunek 2A). Niemniej jednak, istotne zmiany widoczne są w emisji ciepła w fazie stacjonarnej, gdzie drugi szczyt przepływu ciepła jest znacznie obniżony dla A. baumannii traktowanych 5 µM i 10 µM tetracykliny. Niższe stężenia również wywołały efekt, który był jednak mniej wyraźny. Efekt ten powoduje także wydłużenie czasu do osiągnięcia szczytu, co przedstawiono na Rysunku 2C. Krzywe skumulowanego wydzielonego ciepła (Rysunek 2B) pokazują, że komórki nietraktowane i traktowane nie wykazują istotnych różnic w ogólnym kształcie krzywej, ale tendencyjnie nachylenie krzywych maleje przy wyższych stężeniach tetracykliny. Przekłada się to również na ilościowo określone tempo metaboliczne przedstawione na Rysunku 2D, gdzie zaobserwowano efekt zależny od stężenia (tj. spadek tempa metabolicznego wraz ze wzrostem stężeń antybiotyku). Wyniki te potwierdzają fakt, że tetracyklina wykazuje działanie bakteriostatyczne.
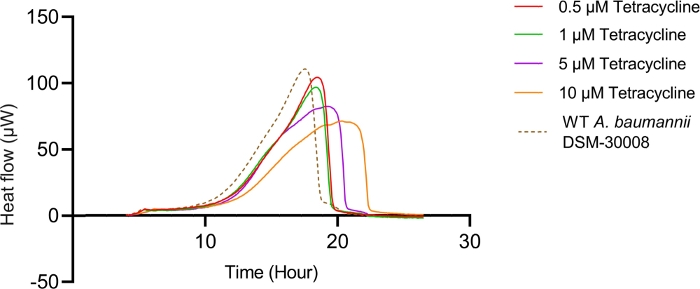
Rycina 2A: Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
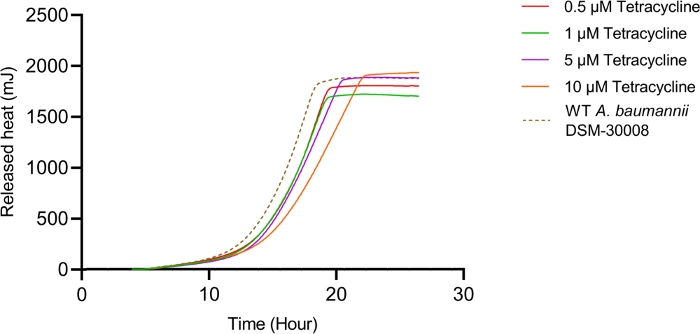
Rycina 2B: Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
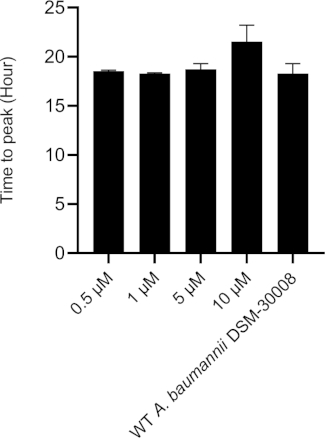
Rycina 2C: Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
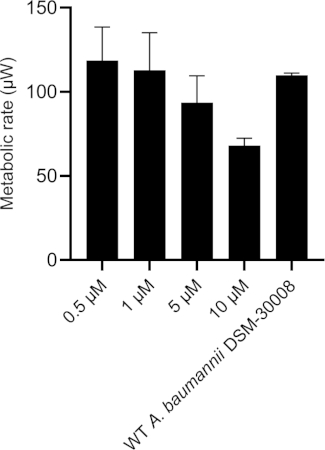
Rycina 2D: Wpływ tetracykliny na wzrost i metabolizm A. baumannii DSM-30008. (A) Termogramy przedstawiające przepływ ciepła (µW) w funkcji czasu (h) dla typu dzikiego (WT) A. baumannii DSM-30008, niepoddanego działaniu tetracykliny oraz eksponowanego na tetracyklinę. (B) Skumulowane ciepło (mJ) w funkcji czasu (h). (C) Czas do osiągnięcia piku (h) wraz z słupkami błędów (odchylenie standardowe). (D) Tempo metabolizmu (µW) wraz z słupkami błędów (odchylenie standardowe). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Jeszcze wyraźniejsze efekty można zaobserwować podczas traktowania A. baumannii chloramfenikolem, inhibitorem syntezy białek celującym w podjednostkę rybosomalną 50S. Narażenie na rosnące stężenia chloramfenikolu prowadzi do wydłużenia fazy lag oraz istotnych zmian w aktywności metabolicznej w fazie stacjonarnej (Rysunek 3A i Rysunek 3B). W przypadku najniższego przetestowanego stężenia nie zaobserwowano zmian w tempie metabolicznym, natomiast najwyższe wybrane stężenie testowe (50 µM) zapobiega większości uwalniania energii w próbce. Analizując pośrednie stężenia testowe (5 µM i 10 µM), czas do osiągnięcia szczytu jest znacząco wydłużony o około 8-9 godzin (Rysunek 3C). Jednocześnie tempo metaboliczne traktowanych komórek jest znacząco obniżone, przy czym stężenie 50 µM jest letalne (Rysunek 3D). Ogólnie zmiany zaobserwowane przy stężeniach chloramfenikolu do 10 µM są zgodne z efektem bakteriostatycznym tej klasy antybiotyków.
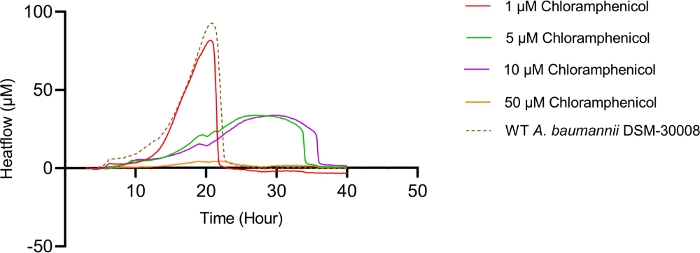
Rysunek 3A: Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
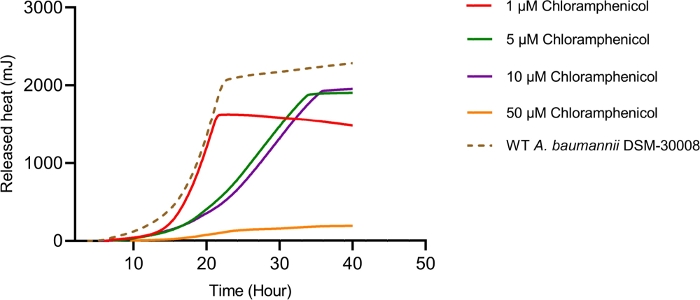
Rycina 3B: Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
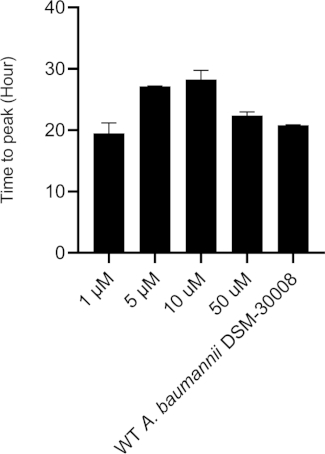
Rycina 3C: Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
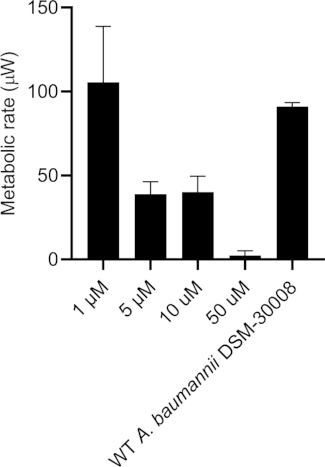
Rycina 3D: Wpływ chloramphenicolu na wzrost i metabolizm A. baumannii DSM-30008. (A) Termogramy przedstawiające przepływ ciepła (µW) w funkcji czasu (h) dla typu dzikiego (WT) A. baumannii DSM-30008, niepoddanego działaniu chloramphenicolu oraz eksponowanego na chloramphenicol. (B) Ciepło skumulowane (mJ) w funkcji czasu (h). (C) Czas do osiągnięcia szczytu (h) wraz z słupkami błędów (odchylenie standardowe). (D) Tempo metabolizmu (µW) wraz z słupkami błędów (odchylenie standardowe). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Leczenie ryfampicyną w wybranym zakresie stężeń wywiera gwałtowny wpływ na termogramy A. baumannii DSM-30008 w odniesieniu do czasu trwania fazy lag oraz wpływa na wzrost aż do późnej fazy stacjonarnej (Rycina 4A). Na Rycynie 4B widoczny jest znaczący spadek emisji ciepła, który towarzyszy obniżeniu aktywności metabolicznej. Rycina 4C oraz Rycina 4D ilustrują wpływ wydłużenia fazy lag oraz zmiany aktywności metabolicznej w fazie stacjonarnej. Rycina 4C pokazuje wyraźny wzrost czasu do osiągnięcia maksimum dla wszystkich zastosowanych stężeń. Rycina 4D obrazuje spadek tempa metabolizmu wywołany zmniejszeniem nachylenia krzywej dla wszystkich stężeń, co zazwyczaj przypisuje się efektowi bakteriobójczemu. Ze względu na indukowaną antybiotykiem śmierć komórek bakteryjnych, oczekuje się niższej aktywności metabolicznej z powodu mniejszej liczby obecnych aktywnych bakterii. Zebrane dane są zgodne z faktem, że ryfampicyna może działać bakteriobójczo i bakteriostatycznie, a dane przedstawione tutaj wspierają głównie efekty bakteriobójcze wybranych stężeń.
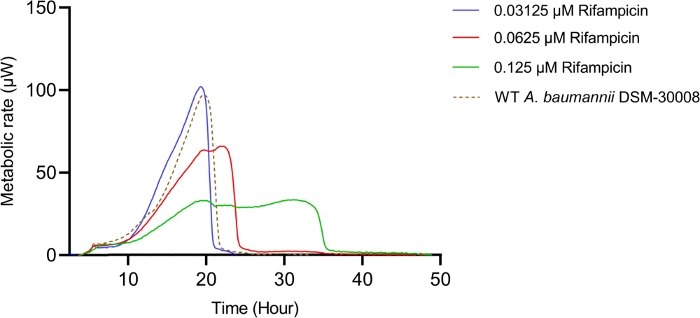
Rycina 4A: Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
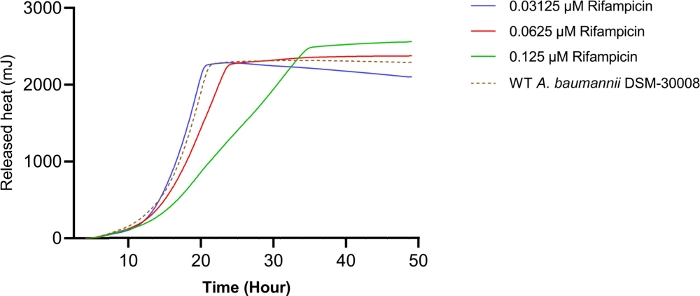
Rysunek 4B: Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
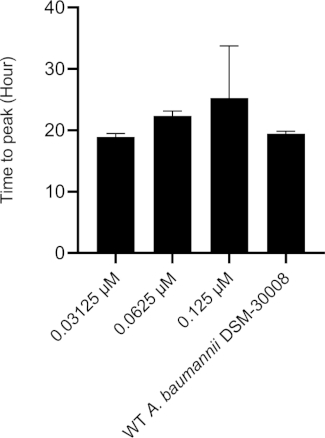
Rycina 4C: Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
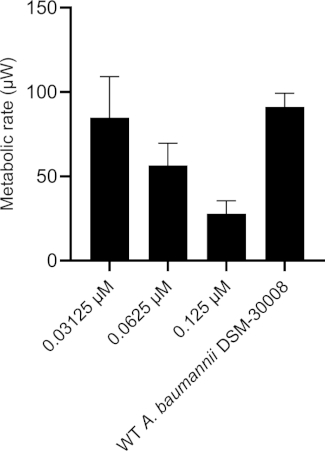
Rycina 4D: Wpływ ryfampicyny na wzrost i metabolizm A. baumannii DSM-30008. (A) Termogramy przedstawiające przepływ ciepła (µW) w funkcji czasu (h) dla typu dzikiego (WT) A. baumannii DSM-30008, niepoddanego działaniu leku oraz eksponowanego na ryfampicynę. (B) Skumulowane ciepło (mJ) w funkcji czasu (h). (C) Czas do osiągnięcia szczytu (h) wraz z słupkami błędów (odchylenie standardowe). (D) Tempo metabolizmu (µW) wraz z słupkami błędów (odchylenie standardowe). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
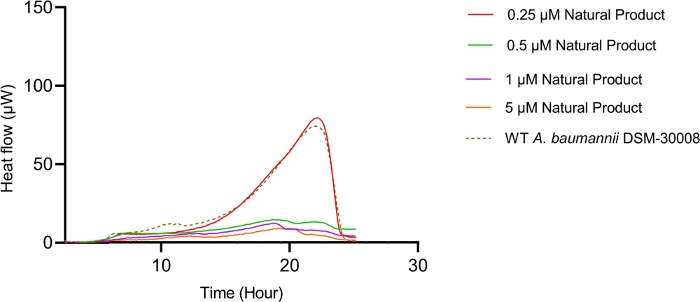
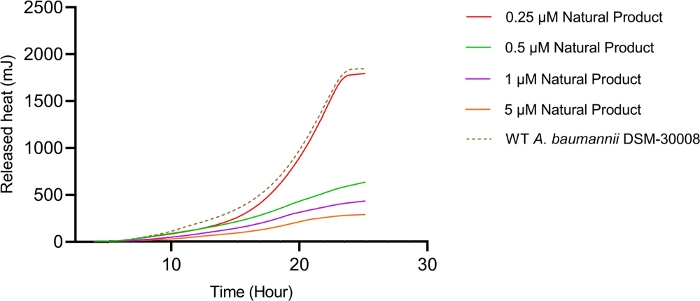
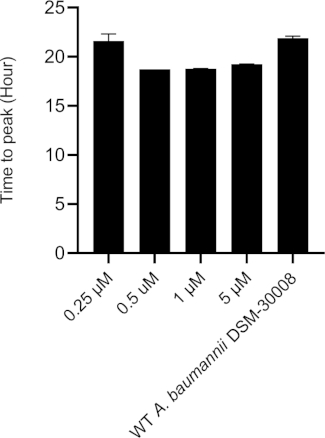
Najniższe wybrane stężenie testowe antybiotyku z produktu naturalnego (0.25 µM) nie wywołuje lub wywołuje jedynie marginalne efekty w termogramie A. baumannii DSM-30008. Jednakże inne testowane stężenia wywierają pewien wpływ na czas trwania fazy lag oraz wpływają na wzrost aż do późnej fazy stacjonarnej (Rysunek 5A). Najbardziej oczywistym efektem jest znacząca redukcja emisji ciepła w fazie stacjonarnej. Dane przedstawione na Rysunku 5B wyraźnie pokazują, że energia uwalniana jest znacząco zmniejszona dla wszystkich skutecznych stężeń, a nachylenie krzywej jest również mniejsze. Efekty te przekładają się na skrócenie czasu do osiągnięcia szczytu (Rysunek 5C) i, co ważniejsze, obserwuje się znaczący i wyraźnie zależny od dawki spadek tempa metabolicznego (Rysunek 5D). Badanie nowego produktu naturalnego z miksobakterii wykazało połączony efekt bakteriostatyczny i bakteriobójczy.
Rycina 5A: Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rycina 5B: Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rycina 5C: Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
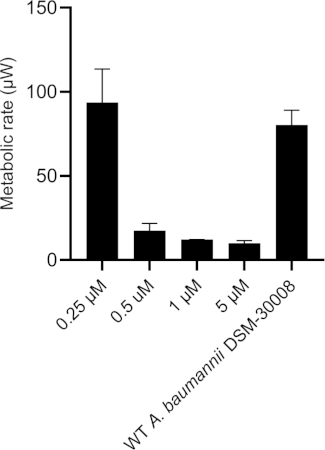
Rycina 5D: Wpływ nowego naturalnego produktu przeciwbakteryjnego na wzrost i metabolizm A. baumannii DSM-30008. (A) Termogramy przedstawiające przepływ ciepła (µW) w funkcji czasu (h) dla szczepu dzikiego (WT) A. baumannii DSM-30008, niepoddanego działaniu produktu naturalnego oraz eksponowanego na ten produkt. (B) Skumulowane ciepło (mJ) w funkcji czasu (h). (C) Czas do osiągnięcia piku (h) wraz z słupkami błędów (odchylenie standardowe). (D) Tempo metabolizmu (µW) wraz z słupkami błędów (odchylenie standardowe). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rycina dodatkowa 1: Wybór nowego eksperymentu w interfejsie oprogramowania. Czerwona ramka obrazuje krok wyboru nowego eksperymentu. Kliknij tutaj, aby pobrać tę rycinię.
Rycina uzupełniająca 2: Nadawanie nazwy nowemu eksperymentowi w interfejsie oprogramowania. W czerwonej ramce przedstawiono krok nadawania nazwy i zatwierdzania nowego eksperymentu. Kliknij tutaj, aby pobrać tę rycinię.
Rycina dodatkowa 3: Rozpoczynanie nowego eksperymentu w interfejsie oprogramowania. Czerwonym kwadratem zaznaczono krok pozwalający na rozpoczęcie nowego eksperymentu. Kliknij tutaj, aby pobrać tę rycinę.
Rysunek uzupełniający 4: Wybór studzienek i rozpoczęcie reakcji w interfejsie oprogramowania. Wszystkie studzienki reakcyjne są zaznaczone (studzienki w kolorze ciemnoniebieskim, przycisk Select all zaznaczony czerwonym kwadratem) oraz wybrano opcję rozpoczęcia reakcji (zaznaczoną czerwonym kwadratem). Kliknij tutaj, aby pobrać ten rysunek.
Rycina dodatkowa 5: Prawidłowe załadowanie uchwytu na kubki. Wybrano dołki referencyjne (kolor ciemnoniebieski, czerwony kwadrat), a termogramy wyświetlono w oknie pop-up. W przypadku prawidłowego załadowania obserwuje się gwałtowny spadek wykrywanego sygnału emisji ciepła, który musi osiągnąć fazę plateau i pozostać w niej przez około 2-3 min, po czym sygnał powraca do punktu wyjściowego. Jeśli taka obserwacja zostanie poczyniona, załadowanie uchwytu na kubki jest prawidłowe. Kliknij tutaj, aby pobrać tę rycinę.
Rycina uzupełniająca 6: Zakończenie eksperymentu. Na czerwono przedstawiono przycisk Stop w eksperymencie. Kliknij tutaj, aby pobrać tę rycinę.
Rysunek dodatkowy 7: Potwierdzenie zakończenia eksperymentu. Na czerwono przedstawiono przycisk Yes służący do potwierdzenia zakończenia prowadzonego eksperymentu. Kliknij tutaj, aby pobrać ten rysunek.
Rysunek dodatkowy 8: Zapisywanie pliku eksperymentu. Wyświetlone jest okno pop-up z opcjami zapisu pliku, a na czerwono zaznaczono przycisk Save. Kliknij tutaj, aby pobrać ten rysunek.
Rycina dodatkowa 9: Interfejs oprogramowania. Kliknij tutaj, aby pobrać tę rycinę.
Rysunek dodatkowy 10: Dostęp do zapisanych eksperymentów. Na czerwono zaznaczono przycisk Open experiment służący do dostępu do zapisanych eksperymentów. Kliknij tutaj, aby pobrać ten rysunek.
Rycina dodatkowa 11: Otwieranie wybranego pliku eksperymentu. Na czerwono zaznaczono przycisk Open. Kliknij tutaj, aby pobrać tę rycinię.
Rysunek dodatkowy 12: Domyślny widok studzienek. Widoczne są wszystkie studzienki eksperymentalne oraz odpowiadające im termogramy. Kliknij tutaj, aby pobrać ten rysunek.
Rycina uzupełniająca 13: Wybór studni do analizy. Na czerwono zaznaczono przycisk Wybierz wszystko. Kliknij tutaj, aby pobrać tę rycinę.
Rycina dodatkowa 14: Definiowanie linii bazowej. Na czerwono zaznaczono przycisk Define baseline. Kliknij tutaj, aby pobrać tę rycinię.
Rycina uzupełniająca 15: Wybór sygnału bazowego. Wybrano minimum 30 min sygnału w fazie lag (czerwona ramka). Kliknij tutaj, aby pobrać tę rycinę.
Rycina uzupełniająca 16: Zapisywanie zmian w pliku eksperymentalnym. Na czerwono zaznaczono przycisk Save. Kliknij tutaj, aby pobrać tę rycinię.
Rycina dodatkowa 17: Aplikacja internetowa do analizy kalorymetrycznej. Przedstawiono interfejs oprogramowania online oraz ścieżkę przesyłania plików. Kliknij tutaj, aby pobrać tę rycinię.
Rysunek dodatkowy 18: Przesyłanie wybranego pliku eksperymentalnego. Na czerwono zaznaczono przycisk Open. Kliknij tutaj, aby pobrać ten rysunek.
Rycina dodatkowa 19: Analiza termogramów. Parametry metaboliczne obliczone dla każdej studni eksperymentalnej przedstawiono na czerwono. Kliknij tutaj, aby pobrać tę rycinę.
Rycina uzupełniająca 20: Dopasowanie danych eksperymentalnych do teoretycznych modeli wzrostu. Dane przepływu ciepła są dopasowywane do modelu wzrostu Gompertza lub Richardsa. Kliknij tutaj, aby pobrać tę figurę.
Rysunek uzupełniający 21: Eksportowanie pomiarów. Na czerwono zaznaczono przyciski Download Measures oraz Save. Kliknij tutaj, aby pobrać ten rysunek.
Dyskusja
Mikrokalorymetria izotermiczna mierzy energię emitowaną z próbki w czasie, a to uwolnienie energii jest wynikiem wszystkich procesów biologicznych, fizycznych i (bio)chemicznych. Zmierzony przepływ ciepła może być wykorzystany do oceny lub określenia działania przeciwbakteryjnego substancji, ponieważ umożliwia ciągłe monitorowanie aktywności metabolicznej w czasie rzeczywistym.
Aby uzyskać wiarygodne dane do analizy, należy określić indywidualnie odpowiednie wyjściowe jednostki tworzące kolonie (CFU) dla każdego użytego gatunku lub szczepu. W przypadku, gdy liczba CFU jest zbyt niska, prowadzi to do przedłużonej fazy opóźnienia, ponieważ system potrzebuje więcej czasu, aby osiągnąć krytyczną ilość biomasy wytwarzającą wystarczającą ilość ciepła do wykrycia. W przypadku, gdy liczba CFU jest zbyt wysoka, faza opóźnienia będzie bardzo krótka, a ilość wytwarzanego ciepła może powodować transfer ciepła do sąsiednich komórek czujników (studni referencyjnych i eksperymentalnych) i powodować zniekształcenia termogramów. Duża liczba CFU doprowadzi również do szybszego wyczerpania tlenu i przejścia do warunków beztlenowych. Należy również wziąć pod uwagę, że w ciągu pierwszych 30 minut eksperymentu, kiedy system jest w stanie równowagi, zbieranie danych nie jest możliwe, a faktyczne rejestrowanie efektów jest opóźnione. Ponadto nieprawidłowe oznaczenie CFU prowadzi do fałszywego oznaczenia MIC, ostatecznie wpływając na eksperyment i obserwowane zmiany25. Kolejnym krytycznym punktem jest prawidłowe określenie linii bazowej. Zwykle sygnał linii bazowej jest wybierany w fazie opóźnienia, gdy sygnał przepływu ciepła wynosi zero, a w idealnym przypadku zakres czasu definiowania linii bazowej wynosi >30 min. Jednak nie zawsze jest to możliwe, ponieważ czas, w którym bakterie osiągają granicę wykrywania sygnału cieplnego, różni się w zależności od szczepu i gatunku. Niektóre gatunki lub szczepy potrzebują więcej niż 30 minut, aby osiągnąć granicę wykrywalności sygnału cieplnego, podczas gdy inne szczepy lub gatunki osiągają ją w ciągu pierwszych 30 minut. W takim przypadku możliwe jest wybranie sygnału bazowego na końcu eksperymentu, gdy wszystkie sygnały cieplne spadną z powrotem do zera i pozostają stabilne. Alternatywnie można zastosować wartości wyjściowe z innych eksperymentów z tym samym szczepem bakterii, co jednak nie jest zalecane.
System pozwala na pewną elastyczność w zakresie projektowania i optymalizacji eksperymentów oraz rozwiązywania problemów. Stosowane objętości mieszczą się w zakresie 100-300 μL w przypadku stosowania wkładek z tworzywa sztucznego i 100-600 μL w przypadku stosowania kubków tytanowych bez wkładek z tworzywa sztucznego. Zalecana przez producenta objętość robocza to 120 μL. Wykorzystanie różnych objętości przy tworzeniu nowej serii doświadczalnej i przy jednoczesnym znajdowaniu optymalnych warunków do pomiarów, ma wpływ głównie na dwa parametry. Stosując mniejsze objętości, można zmniejszyć ilość wymaganego badanego związku, co jest szczególnie ważne w przypadku związków, które są dostępne tylko w niewielkich ilościach. Ponadto zużyta objętość bezpośrednio wpływa na dostępność tlenu podczas pomiaru, przy czym mniejsze objętości zwiększają ilość dostępnego tlenu wymaganego do rozwoju bakterii. Niedobór tlenu jest jednym z głównych czynników przyczyniających się do maksymalnego możliwego czasu trwania eksperymentu. Co ważne, możliwe jest stosowanie mediów stałych, a nie tylko płynnych. Jest to szczególnie ważne w przypadku wolno rosnących mikroorganizmów, ponieważ wzrost na granicy faz między fazą stałą i gazową umożliwia lepszy dostęp tlenu9.
IMC jest użytecznym narzędziem analitycznym do odkrywania nieznanych procesów mających zastosowanie w fizyce, chemii i biologii. Metoda mierzy wymianę ciepła w układzie zamkniętym, a analiza zarejestrowanej wymiany ciepła dostarcza dodatkowych informacji, które nie zawsze można uzyskać standardowymi metodami. W badaniach mikrobiologicznych i antybiotykowych jedną z największych zalet IMC jest zdolność do rozróżniania komórek żywych, martwych i trwałych lub uśpionych, co nie jest możliwe przy użyciu standardowych metod zmętnienia11. Ponadto IMC jest bardzo czuły i może wykryć emisję ciepła już z 10 4-10 5 ogniw9. Kolejną zaletą jest to, że konfiguracja eksperymentalna jest szybka i łatwa oraz pozwala na ciągłe śledzenie w czasie rzeczywistym przy minimalnej lub zerowej ingerencji użytkownika. Ponadto IMC jest nieniszczący, co umożliwia dalszą analizę próbek. Analiza danych pozwala na rozdzielenie powstawania biomasy do późnej fazy wykładniczej lub wczesnej fazy stacjonarnej oraz aktywności metabolicznej w fazie stacjonarnej.
Oprócz nowatorskich i ekscytujących funkcji aplikacji, o których mowa powyżej, metoda ta ma również wady. Głównym ograniczeniem jest to, że instrumenty IMC mierzą całkowite ciepło wytwarzane i uwalniane w określonym systemie, które obejmuje również sygnały niespecyficzne. Podkreśla to znaczenie planowania eksperymentalnego z odpowiednimi kontrolami, aby móc ocenić zmiany sygnału cieplnego, które są mierzone poprzez rejestrację przepływu ciepła 9,20.
W naszych rękach IMC jest ważnym narzędziem do badania przeciwbakteryjnego działania nowych produktów naturalnych i określania efektywnych zakresów stężeń. Oprócz różnicowania działania bakteriostatycznego i bakteriobójczego, może być on w przyszłości wykorzystywany w ramach badań nad identyfikacją celów i oznaczaniem MoA. Można tego dokonać, porównując termogramy różnych klas antybiotyków z termogramami nowych związków aktywnych, jak pokazano tutaj. Trzeba jednak jeszcze zbadać, czy do takich porównań wystarczą pewne wymierne parametry, które można wyodrębnić z danych pomiarowych, czy też konieczne będzie opracowanie algorytmów dających odciski palców na podstawie pełnych termogramów. Innym możliwym zastosowaniem w dziedzinie badań nad antybiotykami jest porównanie klonów typu dzikiego z opornymi, w połączeniu z sekwencjonowaniem całego genomu, co może pomóc w wyjaśnieniu trybu oporności (MoR) nowych leków przeciwbakteryjnych. Ze względu na statyczny charakter metody, badanie skuteczności nowych czynników w tworzeniu biofilmu lub już istniejących biofilmów może prowadzić do lepszego zrozumienia procesu biologicznego i wpływu wybranych czynników na drobnoustroje w różnych stadiach spoczynku. IMC rejestruje całkowitą energię uwalnianą w postaci ciepła, co czyni ją odpowiednią metodą do badania również subhamujących efektów substancji czynnych, które mogą być sprzężone z transkryptomiką. Metoda ta może być również stosowana w warunkach klinicznych do wykrywania zanieczyszczeń próbek lub do oznaczania antybiogramów, co pomaga w szybkim podjęciu decyzji o ostatecznym leczeniupacjentów11.
Oświadczenia
Projekt został zrealizowany we współpracy z firmą Symcel, twórcą technologii calScreener. Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy chcieliby podziękować zespołowi Symcel za owocne dyskusje, a my chcielibyśmy podziękować za wielkie wsparcie ze strony Ganny Oliynyk i Wilhelma Paulandera. Chcielibyśmy również podziękować Danielowi Kohnhäuserowi za dostarczenie naturalnego produktu oraz Stefanie Schmidt za umiejętne wsparcie techniczne.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Acinetobacter baumannii | DSMZ | DSM-30008 | szczep referencyjny wykorzystany w tym badaniu |
| calPlate | Symcel | 1220093 | 48-dołkowa płytka do tytanowych bańek do włożenia |
| calScreener | Symcel | 1200001 | izotermiczny przyrząd do mikrokalorymetrii |
| calZobacz oprogramowanie do | zbierania i analizy | Symcel | |
| calWell | Symcel | 1901004 | 48-dołkowa płytka 48-dołkowa klasy mikro-bio (nieaktywna) z plastikowymi wkładkami, które są wkładane do tytanowych bańek |
| Agar CASO | Carl Roth | X937.1 | izolacja i hodowla mikroorganizmów |
| Chloroamfenikol | Antybiotyk Sigma-Aldrich | C0378 | |
| Antybiotyk | |||
| Ciprofloksacyna Sigma-Aldrich 17850Kuwety | marki | 759015 | Kuwety 1,5 ml |
| Jednorazowe pętle do zaszczepiania | Sarsted | 86.1562.050 | 10 µ Pętle inokulacyjne L |
| Dimetylosulfoksydek (DMSO) | Thermo Fisher Scientific | 85190 | |
| Probówki Eppendorf | Eppendorf | 30120086 | 1,5 ml probówki eppendorf safe-lock |
| Etanol | Thermo Fisher Scientific | 10428671 | |
| Falcon Probówki | Sarsted | 62.554.502 | 15 mL probówki sokoła |
| Chlorowodorek (HCL) | Thermo Fisher Scientific | 10316380 | |
| Metanol | Thermo Fisher Scientific | A412-500 | |
| Mueller Hinton Bulion | Sigma-Aldrich | 70192 | płynna pożywka do badań wrażliwości na antybiotyki |
| Mueller Hinton Bulion II dostosowana do kationów | Sigma-Aldrich | 90922 | Mueller Hinton Bulion kation dostosowany do 1,25 mM CaCl2, 0,8 mM MgCl2 |
| szalki Petriego | LABSOLUTE | 7696404 | |
| Pipeta 100 - 1000 &mikro; L | Marka | 705880 | |
| Pipeta 2 - 20 i mikro; Pipeta | marki L 705872 | ||
| 20 - 200 i mikro; | L Marka | 705878 | |
| Końcówki do pipet 100 - 1000 L | Marka | 732032 | |
| Końcówki do pipet 2 - 200 i mikro; L | Brand | 732028 | |
| Siarczan polimyksyny B | Sigma-Aldrich | P0972 | antybiotyk |
| Ryfampicyna | Antybiotyk Sigma-Aldrich | R3501 | |
| Pipeta serologiczna | Thermo Fisher Scientific | 170356N 10 | ml Pipeta serologiczna Nunc |
| Spektrofotometr | Eppendorf AG | 6135 000.017 | |
| Sterylne filtry | Minisart | 16534----------K | 0,2 &mikro; m Sterylne filtry o wielkości porów |
| Strzykawka 50 mL | NORM-JECT | 22778 | |
| Tetracyklina | Sigma-Aldrich | 87128 | antybiotyk |
| Kubki tytanowe | Symcel | 1220089 | wkładane do 48-dołkowej płytki tytanowej calPlate |
| Pokrywki tytanowe | Symcel | 1220091 | przykręcane i dokręcane do tytanowych miseczek |
| Trimethroprim | Sigma-Aldrich | T7883 | |
| Pęseta | Symcel | 1900602 |
Bibliografia
- World Health Organization (WHO). Antibiotic resistance. World Health Organization (WHO). , Available from: https://www.who.int/news-room/fact-sheets/detail/antibiotic-resistance (2018).
- Herrmann, J., Abou Fayad, A., Müller, R. Natural products from myxobacteria: novel metabolites and bioactivities. Natural Product Reports. 34 (2), 135-160 (2017).
- Cassar, S., et al. Use of Zebrafish in Drug Discovery Toxicology. Chemical Research in Toxicology. 33 (1), 95-118 (2020).
- Bhusnure, O. G., et al. Drug Target Screening and its Validation by Zebrafish as a Novel Tool. Pharmaceutica Analytica Acta. 6 (10), 426(2015).
- Kraus, J., Tobin, G., Development, Discovery, Deveopment, and Regulation of Natural Products. Using Old Solutions to New Problems - Natural Drug Discovery in the 21st Century. Kulka, M. , InTech. Rijeka, HR. 4-36 (2013).
- Tabassum, N., Tai, H., Jung, D., Williams, D. R. Fishing for Nature's Hits: Establishment of the Zebrafish as a Model for Screening Antidiabetic Natural Products. Evidence-Based Complementary and Alternative Medicine. 2015 (1), 287847(2015).
- Antimicrobial Development. Symcel. , Available from: https://symcel.com/applications/microbiology/antimicrobials-development (2019).
- Robador, A., LaRowe, D. E., Finkel, S. E., Amend, J. P., Nealson, K. H. Changes in Microbial Energy Metabolism Measured by Nanocalorimetry during Growth Phase Transitions. Frontiers in Microbiology. 2018 (9), 109(2018).
- Braissant, O., Wirz, D., Göpfert, B., Daniels, A. U. Use of isothermal microcalorimetry to monitor microbial activities. FEMS Microbiology Letter. 303 (1), 1-8 (2010).
- Braissant, O., et al. Isothermal microcalorimetry accurately detects bacteria, tumorous microtissues, and parasitic worms in a label-free well-plate assay. Biotechnology Journal. 10 (3), 460-468 (2015).
- Butini, M. E., Abbandonato, G., Di Rienzo, C., Trampuz, J., Di Luca, M. Isothermal microcalorimetry detects the presence of persister cells in a Staphylococcus aureus biofilm after vancomycin treatment. Frontiers in Microbiology. 25 (10), 332(2019).
- Tellapragda, C., et al. Isothermal microcalorimetry minimal inhibitory concentration testing in extensively drug resistant Gram-negative bacilli - A multicenter study. Clinical Microbiology and Infection. , (2020).
- Abdillahi, S., et al. Collagen VI Contains Multiple Host Defense Peptides with Potent In Vivo Activity. The Journal of Immunology. 201 (3), 1007-1020 (2018).
- Astasov-Frauenhoffer, M., et al. Exopolysaccharides regulate calcium flow in cariogenic biofilms. PLoS ONE. 12 (10), 1-14 (2017).
- Gros, S., et al. Personalized Treatment Response Assessment for Rare Childhood Tumors Using Microcalorimetry-Exemplified by Use of Carbonic Anhydrase IX and Aquaporin 1 Inhibitors. International Journal of Molecular Sciences. 20 (20), 4984(2019).
- Kriszt, R., et al. Optical visualisation of thermogenesis in stimulated single-cell brown adipocytes. Scientific Reports. 7 (1), 1-14 (2017).
- Wadsö, I., et al. A well-plate format isothermal multi-channel microcalorimeter for monitoring the activity of living cells and tissues. Thermochimica Acta. 652 (1), 141-149 (2017).
- von Ah, U., Wirz, D., Daniels, A. U. Isothermal micro calorimetry - a new method for MIC determinations: results for 12 antibiotics and reference strains of E. coli and S. aureus. BMC Microbiology. 9 (106), (2009).
- Howell, M., Wirz, D., Daniels, A. U., Braissant, O. Application of a Microcalorimetric Method for Determining Drug Susceptibility in Mycobacterium Species. Journal of Clinical Microbiology. 50 (1), (2012).
- Wadsö, I. Isothermal Microcalorimetry: Current problems and prospects. Journal of Thermal Analysis and Calorimetry. 64 (2001), 75-84 (2001).
- LeBel, M. Ciprofloxacin: chemistry, mechanism of action, resistance, antimicrobial spectrum, pharmacokinetics, clinical trials, and adverse reactions. Pharmacotherapy. 8 (1), 3-33 (1988).
- Chopra, I., Roberts, M. Tetracycline antibiotics: mode of action, applications, molecular biology, and epidemiology of bacterial resistance. Microbiology and Molecular Biology Reviews. 65 (2), 232-260 (2001).
- Allison, J. L., et al. Mode of action of chloramphenicol. VII. Growth and multiplication of Escherichia coli in the presence of chloramphenicol. Journal of Bacteriology. 83 (3), 609-615 (1962).
- Wehrli, W. Rifampin: mechanisms of action and resistance. Reviews of Infectious Diseases. 5, Suppl 3 407-411 (1983).
- Hancock, R. E. W., et al. Agar and broth methods to determine the minimal inhibitory concentration (MIC) of antimicrobial substances. Nature Protocols. 3 (2), 163-175 (2008).
Przedruki i uprawnienia
