Prezentujemy metodę specjalnie dostosowaną do obrazowania całego mózgu dorosłego Drosophila podczas zachowania i w odpowiedzi na bodźce. Głowa jest ustawiona tak, aby umożliwić optyczny dostęp do całego mózgu, podczas gdy mucha może poruszać nogami i czułkami, czubkiem trąbki, a oczy mogą odbierać bodźce czuciowe.
Artykuł metodologiczny
Przygotowanie dorosłego osobnika Drosophila melanogaster do obrazowania całego mózgu podczas reakcji na zachowanie i bodźce
W tym artykule
Podsumowanie
Streszczenie
Prezentujemy metodę opracowaną specjalnie do obrazowania całego mózgu Drosophila podczas ciągłego zachowania, takiego jak chodzenie. Mocowanie i rozwarstwianie głowy są zoptymalizowane, aby zminimalizować ich wpływ na zachowanie. Osiąga się to przede wszystkim za pomocą uchwytu, który minimalizuje przeszkody w ruchu. Tył głowy muchy jest przyklejony do tego uchwytu pod kątem, który umożliwia optyczny dostęp do całego mózgu, zachowując jednocześnie zdolność muchy do chodzenia, pielęgnacji, wąchania, smakowania i widzenia. Tył głowy jest preparowany w celu usunięcia tkanek w ścieżce optycznej i mięśni odpowiedzialnych za artefakty ruchu głowy. Mózg muchy może być następnie obrazowany w celu rejestrowania aktywności mózgu, na przykład za pomocą wskaźników wapnia lub napięcia, podczas określonych zachowań, takich jak chodzenie lub pielęgnacja, oraz w odpowiedzi na różne bodźce. Po opanowaniu trudnej sekcji, która wymaga znacznej praktyki, technika ta pozwala na zarejestrowanie bogatych zestawów danych dotyczących aktywności całego mózgu z zachowaniem i reakcjami na bodźce.
Wprowadzenie
Obrazowanie aktywności mózgu za pomocą różnych technik pogłębiło zrozumienie funkcji mózgu. U ludzi techniki obrazowania mózgu mają poważne ograniczenia: podczas gdy funkcjonalne obrazowanie metodą rezonansu magnetycznego (fMRI) oferuje rozdzielczość czasoprzestrzenną znacznie niższą niż rozdzielczość pojedynczego neuronu, szybkie techniki, takie jak elektroencefalografia (EEG), umożliwiają tylko pośredni i częściowy dostęp do mózgu1. W wystarczająco dużych modelach zwierzęcych, takich jak gryzonie, rejestracja czujników aktywności fluorescencyjnej (np. GCaMP) za pomocą mikroskopów zamontowanych na głowie pozwala obserwować aktywność mózgu, gdy zwierzę porusza się w swoim środowisku2. Niemniej jednak techniki te dają obecnie dostęp tylko do niewielkiej części mózgu. Zwierzęta z unieruchomioną głową mogą być obrazowane bardziej kompleksowo, ale pokrycie jest nadal częściowe (np. powierzchnia kory 3). Tylko u małych zwierząt, takich jak larwy danio pręgowanego, C. elegans i Drosophila, cały mózg może być obrazowany z rozdzielczością czasową i przestrzenną na poziomie lub blisko pojedynczych neuronów4.
D. melanogaster jest szczególnie obiecujący, ponieważ od dawna jest używany jako model genetyczny organizmu5 i opracowano potężne narzędzia genetyczne6. Uzupełniona o nową, wielkoskalową sieć anatomiczną wywodzącą się z mikroskopii elektronowej7, mucha może zapewnić unikalne możliwości badania złożonej dynamiki mózgu generowanej w sieci na dużą skalę8. Chociaż naskórek nie jest przezroczysty i dlatego musi zostać usunięty, aby zobrazować mózg, obrazowanie funkcjonalne in vivo staje się coraz bardziej powszechne od czasu pierwszego badania w 2002 roku9 i opublikowano już kilka protokołów. Jednak metody te polegają albo na oddzieleniu głowy muchy od ciała10, poważnie ograniczając ruchy muchy i/lub reakcje na bodźce11,12,13,14,15, albo zezwalając na obrazowanie tylko niewielkiej części mózgu9,16,25,26,27,17,18,19,20,21,22,23,24. Aby uzupełnić te niemniej jednak potężne podejścia, opracowaliśmy niedawno preparat do obrazowania całego mózgu podczas zachowania i reakcji na różne bodźce28.
Tutaj opieramy się na tym badaniu, aby przedstawić metodę specjalnie opracowaną do obrazowania całego mózgu, podczas gdy mucha zachowuje się częściowo naturalistycznie (np. chodzi i pielęgnuje) i reaguje na bodźce sensoryczne. Osiąga się to za pomocą uchwytu obserwacyjnego zaprojektowanego tak, aby zapewnić dostęp do całego mózgu od strony grzbietowo-tylnej, pozostawiając nienaruszone czułki i trąbkę oraz umożliwiając muchy poruszanie nogami w celu chodzenia (np. na piłce z poduszką powietrzną). Etapy preparowania tyłu głowy zostały udoskonalone pod kątem szybkości, powtarzalności i zminimalizowania ich wpływu na żywotność i mobilność muchy.
Protokół
Wszystkie kroki są wykonywane pod mikroskopem stereoskopowym.
1. Przygotowanie uchwytu
- Wydrukuj uchwyt "FlyholderVJove.stl" (patrz Materiały dodatkowe) za pomocą drukarki 3D lub zleć wydrukowanie go za pomocą usług online (Rysunek 1A). Odpowiednie są zarówno SLS (Nylon PA12), jak i multijet fusion (PA12).
- Utwórz szczelinę głowicy.
- Umieść kawałek taśmy klejącej prostokątnie na płaskiej powierzchni. Pokrój plasterek o wymiarach około 5 mm x 1 cm. Wytnij otwór na szyjkę (~400 x 400 μm) na środku dłuższego boku taśmy za pomocą nieruchomych równoległych ostrzy (dwa ostrza skalpela sklejone ze sobą), aby zapewnić tę samą szerokość w każdym uchwycie (Rysunek 1B).
- Umieść taśmę po bardziej płaskiej stronie otworu w uchwycie na spodzie (patrz Rysunek 1C i Rysunek 1D). Taśmę można odkształcić, dociskając ją kleszczami ~500 μm wokół otworu; To jeszcze bardziej zminimalizuje utrudnianie późniejszych ruchów muchy.
- Przykryj taśmę i uchwyt od góry czarnym lakierem do paznokci, aby zapobiec wyciekaniu bufora. lakier do paznokci ochroni również oczy muchy przed wzbudzającym światłem mikroskopu. Pozostaw lakier do paznokci do wyschnięcia co najmniej godzinę przed użyciem uchwytu.
- Gdy lakier do paznokci wyschnie, dodaj ~1 μl smaru do szczeliny na głowę za pomocą zwiniętej chusteczki, aby upewnić się, że klej nie zwilży tyłu głowy muchy (Rysunek 2A). Uważaj, aby nie wylać tłuszczu na zewnątrz szczeliny, co zapobiegłoby przywieraniu kleju.
- Utwórz miejsce na ciało (Rysunek 2B).
- Opcjonalnie należy wcześniej przygotować taśmę, która posłuży do ustawienia ciała muchy (patrz poniżej). Użyj wzoru pokazanego w Rysunek 2B (u góry), aby przeciąć kawałek taśmy o szerokości ~2 cm na dwie części i wyciąć plastry o szerokości 1,5 mm. Wytnij ramiona i otwór na korpus o głębokości 0,3 mm. Upewnij się, że pasuje do uchwytu.
UWAGA: Różnice między rozmiarami much (w szczególności w zależności od płci, wieku, genotypu lub gatunku) mogą spowodować konieczność dostosowania projektu taśmy. Jeśli głowa ma tendencję do złego wyśrodkowania, pomocne może być tymczasowe dodanie kawałka taśmy w kształcie litery V nad szczeliną szyi (Rysunek 3). Nałóż również kilka mikrolitrów smaru wewnątrz szczeliny na szyję i na taśmę w kształcie litery V.
- Opcjonalnie należy wcześniej przygotować taśmę, która posłuży do ustawienia ciała muchy (patrz poniżej). Użyj wzoru pokazanego w Rysunek 2B (u góry), aby przeciąć kawałek taśmy o szerokości ~2 cm na dwie części i wyciąć plastry o szerokości 1,5 mm. Wytnij ramiona i otwór na korpus o głębokości 0,3 mm. Upewnij się, że pasuje do uchwytu.
2. Umieszczanie muchy
UWAGA: Samice much w wieku od jednego do czterech dni są idealne, ponieważ głowa samicy jest większa, a więc łatwiejsza do rozcięcia niż głowa samca, a młodsze muchy mają bardziej miękkie naskórek. W przypadku eksperymentów chodzących aktywność muchy można zwiększyć poprzez dopasowanie doświadczeń do czasów wyższej aktywności okołodobowej (ZT0 lub ZT11), przy użyciu soli fizjologicznej zawierającej glukozę (takich jak 103 mM NaCl, 3 mM KCl, 5 mM TES, 8 mM trehaloza 2 H2O, 10 mM glukoza, 26 mM NaHCO3, 1 mM NaH2PO4, 2,5 mM CaCl2·2 H2O, 4 mM MgCl2·6 H2O), głodząc muchę do 24 godzin w środowisku tylko wodnym oraz ogrzewając środowisko do ~28 °C podczas eksperymentu. Podcinanie skrzydeł z co najmniej jednodniowym wyprzedzeniem pomaga również zmniejszyć liczbę prób latania, a tym samym zwiększyć częstotliwość walk chodu7,29,30.
- Napełnij pokrywkę szalki Petriego lub pojemnika na końcówki do pipet lodem, umieść chusteczkę laboratoryjną na lodzie i połóż na niej uchwyt do góry nogami.
- Przenieś muchę na lód, aby ją sparaliżować, zasysając ją z fiolki do rurki i wdmuchując na lód (upewnij się, że lód nie jest stopiony, co utopiłoby muchę).
- Kiedy mucha przestanie się poruszać, użyj kleszczyków, aby wsunąć ją do uchwytu z szyjką w szczelinie (mucha może być trzymana u podstawy skrzydła), jak w Rysunek 4 (po lewej). Oczy powinny znajdować się w równych pozycjach w stosunku do boków szczeliny (Rysunek 4, środek). W razie potrzeby dodaj 1 μl smaru na czubek głowy, aby zapobiec przedostawaniu się kleju (patrz następny krok) do tyłu głowy i usuń go później.
- Przykryj ciało chusteczką i odrobiną lodu, aby upewnić się, że mucha nie porusza się podczas tego kroku i następnego (Rysunek 4, po prawej). Inną opcją, aby zapobiec dosięganiu nóg do głowy, jest użycie kawałka taśmy tuż pod głową (patrz Rysunek 6).
3. Zabezpieczenie głowy
- Umieść głowę pod kątem ~20° od widoku całkowicie tylnego (wokół osi bocznej, patrz Rysunek 5A). Jest to kompromis pomiędzy zmniejszeniem głębokości obrazu, a z drugiej strony utrzymaniem swobody ruchów przedniej nogi i zminimalizowaniem rozciągnięcia szyi.
- Za pomocą zwiniętej chusteczki (Ryc. 5B) nałóż klej UV na głowę, unikając zabrudzenia obszaru zainteresowania sensorycznego (czułki, trąbka i/lub oczy). W celu eksperymentów smakowych wyciągnij trąbkę i dodaj klej u jej podstawy, aby zapobiec ruchom. Jeśli nie jest planowany eksperyment smakowy, trąbkę najlepiej wepchnąć do głowy i przymocować klejem, aby zminimalizować ruch (Ryc. 6).
- Utwardzaj klej światłem UV przez 5 sekund. Ostrożnie oczyść okolice głowy zwiniętą chusteczką, aby usunąć pozostały płynny klej, który mógłby przykleić się do nóg i/lub obszarów czuciowych gleby.
UWAGA: Taśmę można zgrubnie przeszlifować papierem ściernym, aby w razie potrzeby zwiększyć przyczepność kleju. - Użyj cienkiego paska taśmy lub zwiniętej chusteczki, aby przesunąć nogi do przodu (jeśli jeszcze tego nie robią), aby nie zostały uszkodzone w następnym kroku.
4. Ustawianie ciała
UWAGA: Ten krok musi być wykonany szybko; zanim mucha dojdzie do siebie po znieczuleniu.
- Wyjmij pojemnik na lód i odwróć uchwyt. Usuń wodę wokół muchy chusteczką.
- Umieść taśmę do mocowania ciała (utworzoną w kroku 1) nad otworem i delikatnie popchnij ciało muchy w dół (Rysunek 7). Uważaj, aby nie rozciągać zbyt mocno szyi.
5. Uszczelnianie otworu
- Zakryj pozostałe duże otwory taśmą.
- Dodaj ~1 μL smaru z tyłu głowy i w okolicy szyi, aby upewnić się, że klej nie zmoknie tam.
- Za pomocą zwiniętej chusteczki pomaluj klej UV wokół i na wierzchu taśmy oraz na klatce piersiowej (górna grzbietowa część mesonotum), aby ją zamocować. Utwardzać klej światłem UV przez ~5 s.
UWAGA: Ważne jest, aby zminimalizować użycie światła UV, ponieważ może ono silnie wpłynąć na zdrowie muchy. - Ostrożnie wyczyść tłuszcz i nieutwardzony klej chusteczką laboratoryjną.
- Umieść ~1 ml soli fizjologicznej na czubku głowy. Odepchnij pęcherzyki powietrza na bok kleszczami. Poszukaj wycieków, umieszczając szkiełko nakrywkowe na soli fizjologicznej i obracając uchwyt, aby sprawdzić, czy na przedniej stronie nie ma soli fizjologicznej. Jeśli są jakieś wycieki, usuń sól fizjologiczną i zamocuj otwór (dodając więcej kleju lub więcej smaru).
UWAGA: W razie potrzeby może to być dobry moment na przerwę. Muchy można podać mały kawałek chusteczki lub styropianową kulkę, po której będzie chodzić, aby zapobiec machaniu i uspokoić muchę.
6. Sekcja głowy
UWAGA: Użyj zaostrzonych kleszczy do następujących kroków. Bardzo cienkie kleszcze mają kluczowe znaczenie, ponieważ kleszcze utrudnią otwarcie naskórka głowy i mogą prowadzić do dodatkowych urazów głowy lub mózgu muchy. Mocne powiększenie może pomóc na tym etapie. W tym celu można zastąpić okulary mikroskopu lornetkowego okularami 30x.
- Wykonaj dwa nacięcia u podstawy środkowego ciemnego trójkąta kutykularnego po każdej stronie szyi (patrz krzyżyki w Rysunek 8A).
- Wytnij wokół ciemnego trójkąta i usuń tę część naskórka.
- Otwór w mózgu, przez który przechodzi mięsień 16 i przełyk, powinien być teraz widoczny i poruszać się rytmicznie (Wideo 1 przedstawia ten rytmiczny ruch u muchy z fluorescencyjnymi mięśniami). Ostrożnie ściśnij górną część tego obszaru, aby przeciąć mięsień 16 bez nakłuwania przełyku. Jeśli rytmiczny ruch mózgu ucichł, mięsień 16 prawdopodobnie został usunięty, jednak ruch czasami zatrzymuje się i wznawia później. Dlatego ważne jest, aby zwracać uwagę na rytmiczne ruchy i w razie potrzeby wykonać ten krok ponownie.
- Pokrój pozostały naskórek na małe kawałki i ostrożnie je usuń. Staraj się nie ciągnąć za naskórek zbyt mocno. Zamiast tego używaj kleszczy jak nożyczek, aby ciąć kawałki tkanki. Można zacząć od środkowych krawędzi, gdzie ciemny trójkąt został wcześniej usunięty, i przechodzić na boki.
UWAGA: Kawałki naskórka mogą być używane do delikatnego zeskrobywania tłustych ciał, jeśli są obecne. - Usuń worki powietrzne jeden kawałek po drugim, chwytając je kleszczami i ciągnąc powoli i stabilnie.
Wyniki
Opisane powyżej przygotowanie umożliwia obserwację całego mózgu pod mikroskopem w celu obrazowania 3D na dużą skalę, takiego jak klasyczna mikroskopia dwufotonowa lub konfokalna, ale także zastosowanie szybszych technik, takich jak mikroskopia arkusza świetlnego31 i inne techniki mikroskopii z ustrukturyzowanym oświetleniem (omówione w32) lub mikroskopia pola świetlnego28.
Dostęp do całego mózgu przy jednoczesnej obserwacji zachowania i zachowaniu funkcjonalnych organów sensorycznych pozwala na udzielenie odpowiedzi na kilka pytań.
Po pierwsze, jaka jest ogólna aktywność mózgu, gdy mucha spoczywa, podczas wykonywania określonych zachowań oraz w odpowiedzi na bodźce? Jako przykład przedstawiamy dane uzyskane za pomocą mikroskopu pola świetlnego, obrazujące aktywację mózgu podczas odpowiedzi na bodźce i zachowań. Na przykład w Wideo 2 sonda wapniowa była ekspresowana we wszystkich neuronach (nsyb-GAL4 i UAS-syt-GCaMP6s (lewa strona) lub UAS-GCaMP6M (prawa strona)), a następnie podano podmuch zapachu. Zwróć uwagę, jak przygotowany preparat pozwala na uzyskanie ogólnego obrazu aktywności mózgu podczas odpowiedzi na bodziec. Potężne narzędzia genetyczne u Drosophila mogą być wykorzystane do ograniczenia ekspresji tych sensorów do konkretnych podtypów neuronów. W Wideo 3 ograniczyliśmy ekspresję sensora wapniowego do neuronów dopaminergicznych i serotoninergicznych (TH-GAL4, DDC-GAL4 oraz UAS-GCaMP6M). Zwróć uwagę na silną synchroniczną aktywność w obrębie mózgu, ściśle skorelowaną z chodzeniem muchy, co stało się możliwe dzięki obserwacji całego mózgu podczas zachowania. Oprócz aktywności wapniowej można obrazować inne sygnały fizyczne lub chemiczne (korzystając na przykład z sensorów napięcia28,33, produktów metabolizmu34,35 lub specyficznych neuromodulatorów36).
Aby dokładniej zrozumieć rolę aktywności mózgu, można zbadać, jakie obszary biorą udział w określonych zachowaniach, reakcjach na bodźce lub spontanicznych wzorcach aktywności. Dane te mogą rzeczywiście służyć jako obiektywny screening do wyodrębniania obszarów funkcjonalnych przy użyciu technik takich jak analiza głównych składowych oraz analiza niezależnych składowych. Rysunek 9A przedstawia różne obszary funkcjonalne oznaczone różnymi kolorami. Kształt i lokalizacja obszarów funkcjonalnych pozwalają na ich przypisanie do szablonów anatomicznych w celu identyfikacji regionów mózgu, a w niektórych przypadkach także typów neuronów. Ponadto, po dopasowaniu do szablonu anatomicznego, wartości fluorescencji mogą zostać uśrednione w obszarach anatomicznych mózgu w celu przeprowadzenia analizy ilościowej (patrz Rysunek 9B). Na przykład, hierarchiczny model gaussowski zastosowany do danych na Rysunku 9B wykazuje, że regiony są bardziej aktywne podczas chodzenia (mediana ΔF/F = 0,029, 95% przedział wiarygodności=[0,017 0,041]), ale nie podczas pielęgnacji (mediana ΔF/F = -0,0049 przy 95% przedziale wiarygodności=[-0,016 0,0059]).
Aby pogłębić zrozumienie, jednoczesne rejestracje z różnych obszarów funkcjonalnych, możliwe dzięki zastosowanej preparatyce, mogą zostać wykorzystane do badania właściwości dynamicznych sieci funkcjonalnej. Jest to istotne, ponieważ obszary mózgu we wszystkich zbadanych dotąd mózgach są silnie połączone w sposób rekurencyjny, a coraz więcej badań wykazuje, że nawet obszary sensoryczne reagują na stan behawioralny zwierzęcia. Można przeanalizować kilka aspektów, takich jak właściwości grafu funkcjonalnego (np. moduły) oraz wzorce czasoprzestrzenne, które mogą zostać dopasowane do systemów dynamicznych (przykłady w 8).
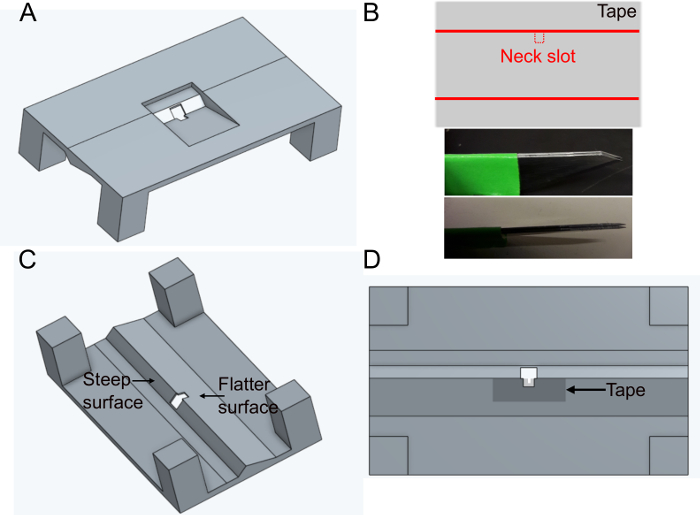
Rysunek 1: Przygotowanie uchwytu (krok 1). A) Projekt uchwytu (widok z góry). B) Przygotowanie szczeliny szyjnej. góra: projekt taśmy, dół: równoległe ostrza użyte do wycięcia szczeliny szyjnej. C) Widok uchwytu od dołu. D) Widok od dołu wskazujący miejsce naklejenia taśmy w szczelinie szyjnej. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
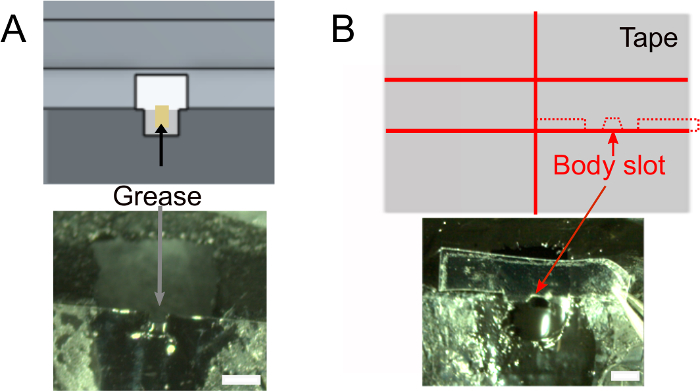
Rysunek 2: Dalsze przygotowania (krok 1). A) Nanieś smar do szczeliny w szyi, aby zapobiec zaklejeniu tylnej części głowy oraz wyciekom soli fizjologicznej. Paski skali: 1 mm. B) Góra: kształt kawałka taśmy, który posłuży do dociśnięcia korpusu. Dół: upewnij się, że taśma pasuje do uchwytu. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
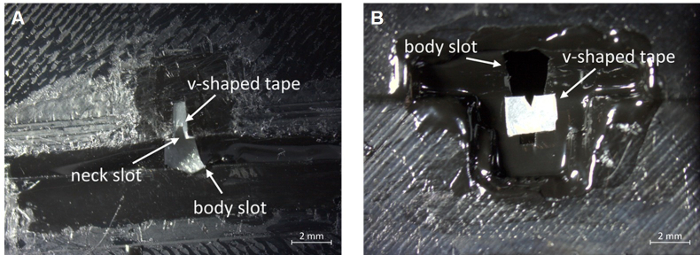
Rycina 3: Umieszczenie kawałka taśmy w kształcie litery V w celu ułatwienia centrowania.(A) Widok od dołu. (B) Widok od góry. Pasek skali, 2 mm. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
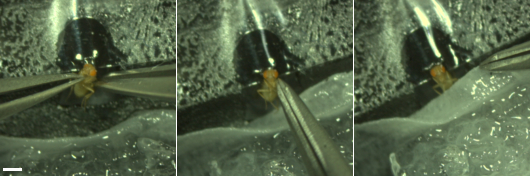
Rycina 4: Umieszczenie muchy (krok 2). Po lewej: użycie dwóch tępych pincet do umieszczenia ciała w taki sposób, aby szyja znajdowała się w szczelinie na szyję. Środek: ustawienie głowy. Oczy spoczywają po obu stronach krawędzi szczeliny. Głowa muchy jest skierowana prosto. Po prawej: przytrzymanie muchy za pomocą chusteczki przykrytej lodem, aby zapobiec jej poruszaniu się. Pasek skali, 1 mm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
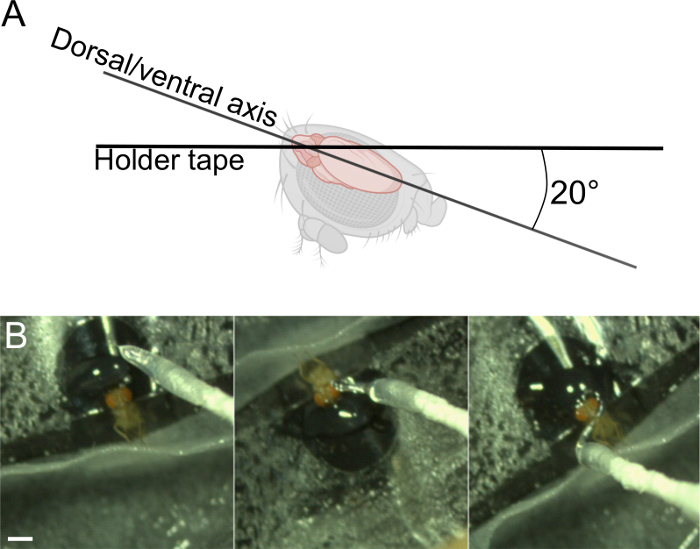
Rysunek 5: Unieruchomienie głowy (krok 3).A) Optymalny kąt ustawienia głowy. B) Nałożenie kleju UV wokół głowy, z pominięciem obszarów sensorycznych będących przedmiotem badań. Pasek skali, 1 mm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
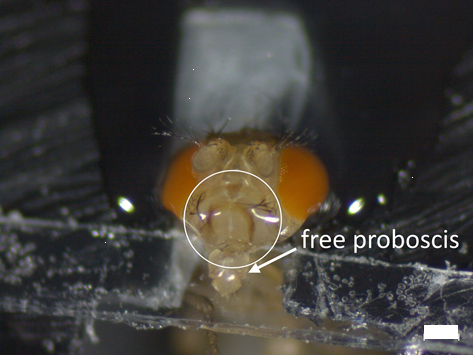
Rysunek 6: Końcówka aparatu gębowego oraz czułki mogą pozostać wolne od kleju (krok 3). Białe koło wskazuje obszar, w którym nałożono klej UV. Strzałka pokazuje części, które pozostają wolne od kleju na potrzeby eksperymentów węchowych i smakowych. Zwróć uwagę na opcjonalną taśmę, która zapobiega dotykaniu obszaru z klejem przez odnóża. Pasek skali, 200 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
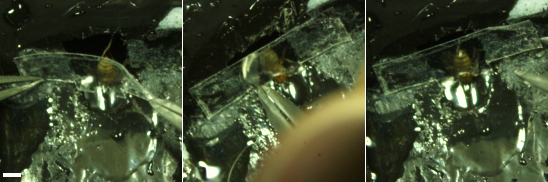
Rysunek 7: Umieszczenie tylnej taśmy (krok 4.2). Taśma przygotowana w kroku 1 (patrz Rysunek 2, lewa strona) służy do umieszczenia ciała i zakrycia dużego otworu w uchwycie. Pasek skali, 1 mm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 8: Etapy sekcji (krok 6). A-B) Przeciąć po obu stronach u podstawy ciemnego trójkąta (krzyżyki) i usunąć tę część kutykuli C). D) i E) usunąć mięsień 16. Następnie delikatnie usunąć resztę kutykuli F), worki powietrzne G) oraz mięśnie. H) Zdysekowana głowa. Pasek skali, 200 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
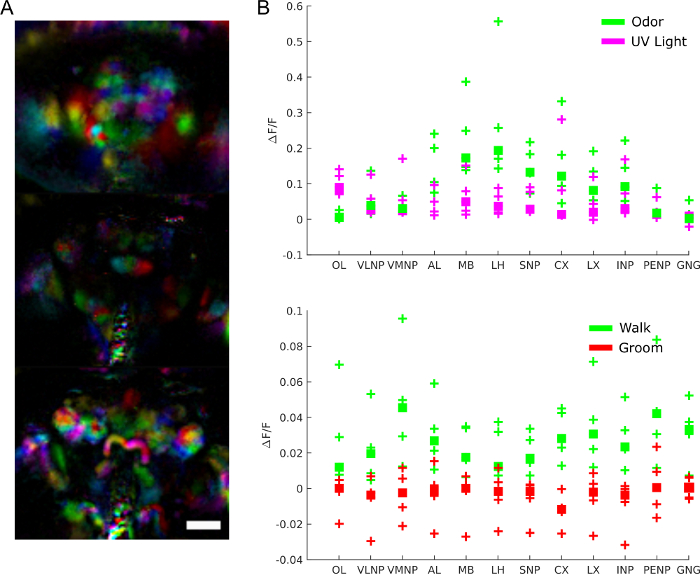
Rysunek 9: Reprezentatywne wyniki. A) Obszary funkcjonalne (wyodrębnione przy użyciu PCA i ICA zgodnie z28) muchy wykazującej ekspresję GCaMP6 pan-neuronalnie, obrazowanej za pomocą mikroskopu pola jasnego (25x, NA=0,95 z dopasowaną matrycą mikrosoczewek f/12). Pasek skali, 100 µm. B) Średnia aktywność wapniowa w dużych obszarach mózgu podczas odpowiedzi na bodźce i zachowania (reprodukowano z28). Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Wideo 1: 16 ruchów mięśni (krok 6.3). W mięśniach wykazano ekspresję GFP. Należy zwrócić uwagę na ruch pompowania pochodzący z otworu znajdującego się tuż nad tchawicą. Kliknij tutaj, aby pobrać to wideo.
Wideo 2: Pan-neuronalna aktywność wapniowa podczas reakcji na zapach dla dwóch różnych preparatów. Muszce podano podmuch octu balsamicznego. Pan-neuronalną aktywność wapniową (sterownik nsyb-GAL4, po lewej UAS-syt-GCaMP6s i po prawej UAS-GCaMP6M) obrazowano za pomocą mikroskopu pola świetlnego (25x, NA=0,95 z dopasowaną macierzą mikrosoczewek f/12). Obrazy pola świetlnego zrekonstruowano następnie zgodnie z opisem w ref.28,37. Kliknij tutaj, aby pobrać to wideo.
Wideo 3: Aktywność wapniowa w podzbiorze typów neuronów podczas zachowania. GCaMP6 wyekspresowano w neuronach dopaminergicznych i serotoninergicznych (przy użyciu TH-GAL4 i DDC-GAL4). W połączeniu z genetycznymi narzędziami dla muchy, preparat ten pozwala zaobserwować silny wzrost aktywności w wielu obszarach podczas chodzenia. Kliknij tutaj, aby pobrać to wideo.
Materiały uzupełniające. Prosimy kliknąć tutaj, aby pobrać ten plik.
Dyskusja
Drosophila jest jednym z nielicznych dorosłych zwierząt, u których można obrazować cały mózg podczas złożonych zachowań. W tym miejscu przedstawiamy metodę przygotowania muchy i wystawienia całego jej mózgu na obraz trwającej aktywności całego mózgu. Należy zwrócić uwagę na kilka ważnych punktów.
Sekcja małego zwierzęcia, takiego jak D. melanogaster, jest wyzwaniem. Metoda wymaga więc dużo praktyki i cierpliwości, aby ją opanować. Jednak po treningu zabieg trwa mniej niż 30 minut i daje powtarzalne rezultaty.
Przedstawiona przez nas metoda ma dodatkowe ograniczenia. Po pierwsze, przechylenie głowy muchy z jej naturalnej pozycji prowadzi do rozciągnięcia szyi, co może być szkodliwe dla tkanki łącznej, nerwów lub mięśni. Po drugie, chociaż brzuszna strefa podprzełykowa (SSE) jest optycznie dostępna, znajduje się poniżej półprzezroczystego przełyku, co zmniejsza intensywność i rozdzielczość w tym obszarze. W końcu, chociaż posiadacz jest poza zasięgiem w większości kierunków, mucha nadal czasami zdaje sobie sprawę z jego obecności i naciska na niego, próbując uciec.
Pomimo tych ograniczeń, kompleksowe dane uzyskane z obrazowania całego mózgu podczas zachowania i reakcji na bodźce umożliwią rozszyfrowanie funkcji mózgu na poziomie całej sieci, gdy zwierzę wchodzi w interakcję ze złożonymi, naturalistycznymi środowiskami i porusza się po nich.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy Heidi Miller-Mommerskamp za pomoc techniczną i Iveth Melissie Guatibonza Arevalo za pomocne komentarze do manuskryptu. Wstępne wersje protokołu zostały opracowane w laboratorium Ralpha Greenspana. Prace te były wspierane przez Niemiecką Fundację Badawczą (DFG), w szczególności poprzez grant FOR2705 (TP3) dla IGK, a także przez fundację Simonsa (Aimon – 414701) i Kavli Institute for Brain and Mind (numer grantu #2017-954) otrzymane przez SA.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| #5 kleszczyki | FST firmy DUMONT | 11252-30 | końcówka prosta 0,05 x 0,02 mm, Dumoxel, długość 11 cm |
| #55 Kleszczyki | FST firmy DUMONT | 11255-20 | końcówka prosta 0,05 x 0,02 mm, Inox, długość 11 cm |
| 30x lornetka | yegren | WF30-9-30-H | WF30X/9 Okular z wysokim punktem ocznym Soczewka optyczna o szerokim polu widzenia do mikroskopu stereoskopowego lub mikroskopu biologicznego 30X, 30mm bez siatki celowniczej |
| AHOME/UV latarka | Shenzhen Yijiawan Technology Co., Ltd | B07V2W9543 (ASIN) | 365 nm |
| Fotoplast Gel/UV Glue | Dreve Otoplastik GmbH | 44791 | GHS07, GHS08 |
| Błyszcząca przezroczysta taśma | 3M Scotch | ||
| KIMTECH Science/Precision chusteczki | Kimberly-Clark Professional | 7552 | 11 x 21 cm |
| KL 1500 LCD/Mikroskop | świetlny Schott | ||
| Mikroskop Leica MS5 | Leica | WF30X/9 | |
| Lakier do paznokci | Opi Products Inc., N. Hollywood | 6306585338 | |
| sól fizjologiczna: Hepes NaH2PO4 NaHCO3 MgCl2 CaCl2 NaCl KCl sacharoza, trealoza | Sigma Aldrich | ||
| Scalpel | Werner Dorsch GmbH | 78 621; B07SXCXWFS (ASIN) | miękka rączka |
| Smar próżniowy | Dow corning | 0020080 /100 gr | Moly Kote 111 Smar złożony Smar Zawór Stempel 100 g |
Bibliografia
- Papanicolaou, A. C. The Oxford Handbook of Functional Brain Imaging in Neuropsychology and Cognitive Neurosciences. , Oxford University Press. (2017).
- Zong, W., et al. Fast high-resolution miniature two-photon microscopy for brain imaging in freely behaving mice. Nature Methods. 14, 713-719 (2017).
- Musall, S., Kaufman, M. T., Juavinett, A. L., Gluf, S., Churchland, A. K. Single-trial neural dynamics are dominated by richly varied movements. Nature Neuroscience. 22, 1677-1686 (2019).
- Ahrens, M. B., Engert, F. Large-scale imaging in small brains. Current Opinion in Neurobiology. 32, 78-86 (2015).
- Sokolowski, M. B. Drosophila: Genetics meets behaviour. Nature Reviews Genetics. 2, 879-890 (2001).
- Venken, K. J. T., Bellen, H. J. Emerging technologies for gene manipulation in Drosophila melanogaster. Nature Reviews Genetics. 6, 167-178 (2005).
- Zheng, Z., et al. A Complete Electron Microscopy Volume of the Brain of Adult Drosophila melanogaster. Cell. 174, 730-743 (2018).
- Aimon, S., Grunwald Kadow, I. C. Studying complex brain dynamics using Drosophila. Journal of Neurogenetics. 34, 171-177 (2020).
- Fiala, A., et al. Genetically Expressed Cameleon in Drosophila melanogaster Is Used to Visualize Olfactory Information in Projection Neurons. Current Biology. 12, 1877-1884 (2002).
- Wang, J. W., Wong, A. M., Flores, J., Vosshall, L. B., Axel, R. Two-Photon Calcium Imaging Reveals an Odor-Evoked Map of Activity in the Fly Brain. Cell. 112, 271-282 (2003).
- Mann, K., Gallen, C. L., Clandinin, T. R. Whole-Brain Calcium Imaging Reveals an Intrinsic Functional Network in Drosophila. Current Biology. 27, 2389-2396 (2017).
- Liang, X., Holy, T. E., Taghert, P. H. Synchronous Drosophila circadian pacemakers display nonsynchronous Ca2+ rhythms in vivo. Science. 351, 976-981 (2016).
- Harris, D. T., Kallman, B. R., Mullaney, B. C., Scott, K. Representations of Taste Modality in the Drosophila Brain. Neuron. 86, 1449-1460 (2015).
- Yoshihara, M. Simultaneous recording of calcium signals from identified neurons and feeding behavior of Drosophila melanogaster. Journal of Visualized Experiments. , e1(2012).
- Strutz, A., Völler, T., Riemensperger, T., Fiala, A., Sachse, S. Calcium imaging of neural activity in the olfactory system of Drosophila. Neuromethods. 72, 43-70 (2012).
- Seelig, J. D., et al. Two-photon calcium imaging from head-fixed Drosophila during optomotor walking behavior. Nature Methods. 7, 535-540 (2010).
- Fisher, Y. E., Lu, J., D'Alessandro, I., Wilson, R. I. Sensorimotor experience remaps visual input to a heading-direction network. Nature. 576, 121-125 (2019).
- Green, J., Vijayan, V., Mussells Pires, P., Adachi, A., Maimon, G. A neural heading estimate is compared with an internal goal to guide oriented navigation. Nature Neuroscience. 22, 1460-1468 (2019).
- Shiozaki, H. M., Ohta, K., Kazama, H. A Multi-regional Network Encoding Heading and Steering Maneuvers in Drosophila. Neuron. 106, 126-141 (2020).
- Huang, C., et al. Long-term optical brain imaging in live adult fruit flies. Nature Communications. 9, 872(2018).
- Kohatsu, S., Koganezawa, M., Yamamoto, D. Female contact activates male-specific interneurons that trigger stereotypic courtship behavior in Drosophila. Neuron. 69, 498-508 (2011).
- Grover, D., Katsuki, T., Greenspan, R. J. Flyception: imaging brain activity in freely walking fruit flies. Nature Methods. 13, 569-572 (2016).
- Cohn, R., Morantte, I., Ruta, V. Coordinated and Compartmentalized Neuromodulation Shapes Sensory Processing in Drosophila. Cell. 163, 1742-1755 (2015).
- Fiala, A., Spall, T. In Vivo Calcium Imaging of Brain Activity in Drosophila by Transgenic Cameleon Expression. Science Signaling. 2003, (2003).
- Silbering, A. F., Bell, R., Galizia, C. G., Benton, R. Calcium imaging of odor-evoked responses in the Drosophila antennal lobe. Journal of Visualized Experiments. , (2012).
- Bilz, F., Geurten, B. R. H., Hancock, C. E., Widmann, A., Fiala, A. Visualization of a Distributed Synaptic Memory Code in the Drosophila Brain. Neuron. 106, 963-976 (2020).
- Berry, J. A., Cervantes-Sandoval, I., Chakraborty, M., Davis, R. L. Sleep Facilitates Memory by Blocking Dopamine Neuron-Mediated Forgetting. Cell. 161, 1656-1667 (2015).
- Aimon, S., et al. Fast near-whole-brain imaging in adult Drosophila during responses to stimuli and behavior. PLOS Biology. 17, 2006732(2019).
- Azevedo, A. W., et al. A size principle for recruitment of Drosophila leg motor neurons. Elife. 9, (2020).
- Haberkern, H., et al. Visually Guided Behavior and Optogenetically Induced Learning in Head-Fixed Flies Exploring a Virtual Landscape. Current Biology. 29, 1647-1659 (2019).
- Li, W., et al. SCAPE Microscopy for High Speed , 3D Whole-Brain Imaging in Drosophila Melanogaster. Biomed. Opt. Congr. 2016, 4-6 (2016).
- Wu, Y., Shroff, H. Faster, sharper, and deeper: structured illumination microscopy for biological imaging. Nature Methods. 15, 1011-1019 (2018).
- Bando, Y., Grimm, C., Cornejo, V. H., Yuste, R. Genetic voltage indicators. BMC Biology. 17, 71(2019).
- Plaçais, P. -Y., et al. Upregulated energy metabolism in the Drosophila mushroom body is the trigger for long-term memory. Nature Communications. 8, 15510(2017).
- Gándara, L., Durrieu, L., Behrensen, C., Wappner, P. A genetic toolkit for the analysis of metabolic changes in Drosophila provides new insights into metabolic responses to stress and malignant transformation. Scientific Reports. 9, 19945(2019).
- Andreoni, A., Davis, C. M. O., Tian, L. Measuring brain chemistry using genetically encoded fluorescent sensors. Current Opinion in Biomedical Engineering. 12, 59-67 (2019).
- Broxton, M., et al. Wave optics theory and 3-D deconvolution for the light field microscope. Optics Express. 21, 25418-25439 (2013).
Przedruki i uprawnienia
