Ten protokół opisuje podejście do etykietowania in toto i wielowymiarowego obrazowania wczesnego rozwoju oczu danio pręgowanego. Opisujemy znakowanie, osadzanie i obrazowanie czterowymiarowe (4D) za pomocą laserowej skaningowej mikroskopii konfokalnej oraz rozważania dotyczące optymalizacji pozyskiwania zestawów danych do analizy mechanizmów morfogenezy panewki wzrokowej.
Artykuł metodologiczny
4-wymiarowe obrazowanie morfogenezy kubka wzrokowego danio pręgowanego
W tym artykule
Podsumowanie
Streszczenie
Funkcja systemu wzrokowego wymaga precyzyjnego tworzenia struktur tkanek i narządów. W oku kręgowców wady strukturalne są częstą przyczyną zaburzeń widzenia, jednak mechanizmy morfogenezy oka są nadal słabo poznane. Podstawowa organizacja oka embrionalnego jest zachowana u kręgowców, dlatego obrazowanie na żywo zarodków danio pręgowanego stało się potężnym podejściem do bezpośredniej obserwacji rozwoju oka w czasie rzeczywistym w normalnych i patologicznych warunkach. W zarodku można uwidocznić dynamiczne procesy komórkowe, w tym ruchy, morfologie, interakcje, podział i śmierć. Opracowaliśmy metody jednolitego znakowania struktur subkomórkowych oraz poklatkowej mikroskopii konfokalnej wczesnego rozwoju oka u danio pręgowanego. Protokół ten przedstawia metodę generowania zamkniętego mRNA do wstrzyknięcia do 1-komórkowego zarodka danio pręgowanego, montowania zarodków w stadium pęcherzyka wzrokowego (~ 12 godzin po zapłodnieniu, hpf) i wykonywania wielowymiarowego obrazowania poklatkowego morfogenezy kubka wzrokowego na laserowym skaningowym mikroskopie konfokalnym, tak aby wiele zestawów danych jest pozyskiwanych sekwencyjnie w tej samej sesji obrazowania. Takie podejście daje dane, które można wykorzystać do różnych celów, w tym śledzenia komórek, pomiarów objętości, renderowania trójwymiarowego (3D) i wizualizacji. Nasze podejścia pozwalają nam wskazać mechanizmy komórkowe i molekularne napędzające rozwój kubka nerwu wzrokowego, zarówno w warunkach dzikich, jak i zmutowanych genetycznie. Metody te mogą być stosowane bezpośrednio przez inne grupy lub adaptowane do wizualizacji wielu dodatkowych aspektów rozwoju oka danio pręgowanego.
Wprowadzenie
Rozwój oka kręgowców zaczyna się od pojawienia się, czyli wytworzenia pęcherzyków wzrokowych z potencjalnego neuroepitelium mózgu. Pęcherzyki wzrokowe przechodzą następnie szereg zmian kształtu tkanki, wydłużając się, a następnie wnikając, aby wytworzyć miseczkę wzrokową. W miseczce optycznej siatkówka nerwowa i nabłonek barwnikowy siatkówki, oba pochodzące z nabłonka nerwowego, otaczają powstającą soczewkę, która pochodzi z powierzchni ektodermy. Cały proces wymaga złożonej serii ruchów komórek i tkanek oraz sygnalizacji molekularnej, skoordynowanych między populacjami komórek neuroepithelium, ektodermy i mezenchymalów. Te początkowe zdarzenia ustalają podstawową strukturę oka, a późniejsze etapy rozwoju oka, w tym tworzenie tęczówki i rogówki, są rozwinięciem wczesnej organizacji. Zakłócenia we wczesnym rozwoju i morfogenezie oka leżą u podstaw wielu stanów upośledzenia wzroku u ludzi, w tym anoftalmii, mikroftalmii i colobomy. Odblokowanie mechanizmów komórkowych i molekularnych rządzących morfogenezą kubka wzrokowego ma kluczowe znaczenie dla dalszego zrozumienia rozwoju układu wzrokowego i stanów patologicznych, które powstają, gdy procesy te przebiegają nieprawidłowo.
Nasze zrozumienie rozwoju i morfogenezy oka kręgowców wyłoniło się z ogromnej ilości pracy, obejmującej klasyczne badania histologiczne do embriologicznych i genetycznych podejść w różnych organizmach modelowych, w tym myszy, piskląt, żab i ryb1,2,3,4,5. Podczas gdy w ramach tych prac ustalono mechanizmy molekularne, które regulują wczesny rozwój oka, historycznie rzecz biorąc, istnieje słaba wiedza na temat morfogenezy oka: pojawienia się jego struktury 3D. Większość tych odkryć pochodzi z obrazowania pociętych zarodków w dyskretnych punktach czasowych. Chociaż jest to wystarczające, aby zapewnić wgląd w morfologię tkanek w 2 wymiarach, morfogeneza jest dynamicznym procesem 3D. Aby określić, jak kształt tkanki zmienia się w 3 wymiarach w czasie, jak zachowują się pojedyncze komórki i jak te zachowania przyczyniają się do zmian w kształcie tkanki 3D, konieczne są różne podejścia.
Jednym z rozwiązań, które pozwala wypełnić tę znaczącą lukę w wiedzy, jest obrazowanie na żywo, które umożliwia dynamiczną obserwację komórek i tkanek w czasie rzeczywistym, gdy narząd nabiera kształtu. Niestety, nie jest to łatwo wykonalne w wielu organizmach modelowych ze względu na ograniczenia rozwoju embrionalnego. Na przykład zarodki myszy i piskląt (rozwijające się w macicy lub w skorupce jaja) nie są łatwo dostępne, a wiele żywych zarodków nie jest optycznie przezroczystych, co powoduje znaczne rozproszenie światła i ogranicza głębokość, na jaką można uzyskać obrazy. Danio pręgowany, z zewnętrznym rozwojem i przezroczystymi zarodkami, daje wyjątkową okazję do przeprowadzenia na żywo obrazowania morfogenezy oka6,7,8,9,10,11,12,13,14,15,16,17,18,19. Dostępnych jest również wiele linii transgenicznych i zmutowanych, a także narzędzia do generowania nowych transgenicznych i mutantów20,21,22,23,24. Co więcej, morfogeneza kubka wzrokowego zachodzi szybko u danio pręgowanego, w ciągu 12 godzin (12-24 godziny po zapłodnieniu, hpf), co umożliwia obrazowanie całego procesu.
Wysiłki związane z obrazowaniem na żywo zostały przyspieszone dzięki rozszerzeniu i optymalizacji rodziny białek fluorescencyjnych, które umożliwiają genetycznie kodowane znakowanie struktur subkomórkowych, a także dzięki ulepszeniom i innowacjom w metodach mikroskopowych. Opisany tutaj protokół wykorzystuje laserową skaningową mikroskopię konfokalną, a nie inne obecne podejścia do obrazowania embriogenezy danio pręgowanego, w tym mikroskopię konfokalną z wirującym dyskiem, mikroskopię selektywnego oświetlenia płaszczyznowego (SPIM i jego warianty) oraz inne bardziej specjalistyczne metody mikroskopii. W przypadku rozwijającego się oka danio pręgowanego stwierdziliśmy, że mikroskopia konfokalna z wirującym dyskiem nie była wystarczająca do obrazowania głębiej w tkance. Chociaż SPIM może pochwalić się niezwykle szybkim czasem obrazowania i staje się coraz powszechniej stosowany, obsługa dużych zbiorów danych do wizualizacji i analizy pozostaje wyzwaniem. W przeciwieństwie do tego, laserowa skaningowa mikroskopia konfokalna jest łatwo dostępna, szczególnie dla osób bez doświadczenia w montażu sprzętu optycznego. Mamy nadzieję, że szeroka dostępność laserowej skaningowej mikroskopii konfokalnej sprawi, że nasz protokół będzie przydatny dla wielu laboratoriów.
Tutaj opisujemy naszą metodę przechwytywania zestawów danych 4D morfogenezy kubka wzrokowego, używając in toto znakowania zarodka pod kątem błon i chromatyny, oraz laserowego skaningowego mikroskopu konfokalnego do pozyskiwania obrazów (schemat w Rysunek 1). Zastosowane tu białka fluorescencyjne (EGFP-CAAX i H2A. F/Z-mCherry) zostały wybrane w celu zapewnienia znakowania tkanek z rozdzielczością pojedynczej komórki. Używamy zestawów danych wygenerowanych za pomocą tego protokołu do różnych funkcji analizy i wizualizacji obrazu. Protokół ten można łatwo dostosować, jeśli pożądane są inne struktury subkomórkowe. Znakowanie błony plazmatycznej zostało wybrane do wizualizacji kształtu komórki: używamy EGFP-CAAX, w którym ostatnie 21 aminokwasów H-ras, służących jako sekwencja sygnału prenylacji, jest połączonych z C-końcem EGFP13. Inne białka fluorescencyjne ukierunkowane na błonę plazmatyczną (np. fuzja transbłonowa lub mirystoylowane) prawdopodobnie będą działać równie dobrze. Do oznaczania jąder wybraliśmy H2A. F/Z-mCherry, w którym mCherry jest połączone z białkiem histonowym13. Zapewnia to łatwą wizualizację podziału komórek, w tym orientacji wrzeciona mitotycznego.
Przy każdym podejściu do obrazowania na żywo, należy rozważyć kompromisy między zwiększeniem prędkości obrazowania przy jednoczesnej maksymalizacji stosunku sygnału do szumu, rozdzielczości osiowej i zachowaniu próbki. Zoptymalizowaliśmy nasze metody, aby zmaksymalizować jakość obrazu i liczbę zarodków, które można zobrazować w jednym przebiegu. Często celem jest zobrazowanie morfogenezy miseczki nerwu wzrokowego w homozygotycznym zmutowanym zarodku, który może być fenotypowo nieodróżnialny od typu dzikiego na początku morfogenezy miseczki wzrokowej i potomstwa heterozygotycznego krzyżówki (25% zarodków to pożądany genotyp). Optymalizując, a następnie multipleksując akwizycję obrazu, zwiększa się prawdopodobieństwo uchwycenia zestawu danych homozygotycznego zmutowanego zarodka.
Rozdzielczość czasowa, czyli jak często dane objętościowe (stosy Z) są pozyskiwane, jest kluczowym aspektem obrazowania poklatkowego. W zależności od przeznaczenia takich zestawów danych istnieją różne wymagania dotyczące szybkości. Początkowo protokół ten został opracowany do ręcznego śledzenia komórek 4D. Śledzenie pojedynczych komórek w jednolicie znakowanej tkance wymaga wystarczająco wysokiej rozdzielczości czasowej, aby zapewnić pewność, że dowolna komórka jest śledzona w sposób ciągły w czasie. Odkryliśmy, że stosy Z morfogenezy kubka wzrokowego danio pręgowanego muszą być pozyskiwane co najmniej co 3,1 minuty przez 12 godzin; tutaj zoptymalizowaliśmy naszą akwizycję na laserowym skaningowym mikroskopie konfokalnym tak, że możemy uzyskać stosy Z zawierające 4-5 zarodków co 2,5 minuty.
Ustalenie rozmiaru kroku Z było kluczowym krokiem w optymalizacji protokołu: do renderowania i wizualizacji 3D idealne są dane izotropowe, w których rozmiar kroku Z jest równy wymiarowi piksela XY. W rzeczywistości niezwykle trudno jest uzyskać takie dane poklatkowe za pomocą żywych próbek, biorąc pod uwagę ograniczenia związane z czasem obrazowania i fotowybielaniem. W związku z tym określenie odpowiedniego rozmiaru kroku Z jest ważne dla potrzeb renderowania i wizualizacji eksperymentu, a w szczególności, jaki stosunek wokseli X:Y:Z jest potrzebny, aby zmaksymalizować informacje osiowe przy jednoczesnym zachowaniu prędkości i zapobieganiu fotowybielaniu. Dla tego protokołu ustalony stosunek wokseli wynosił 1:1:3,5 (0,6 μm x 0,6 μm x 2,1 μm rozmiar kroku Z przy użyciu 40-krotnie dużego odległości roboczej obiektywu zanurzenia w wodzie). Przy uzyskiwaniu głębokości Z 130-140 μm uzyskuje się dane objętościowe o odpowiedniej rozdzielczości czasowej i niewielkim fotowybielaniu.
Jak omówiono powyżej, ten protokół jest specyficzny dla obrazowania 4D morfogenezy kubka wzrokowego danio pręgowanego, przy użyciu embrionów in toto znakowanych dla błony plazmatycznej i chromatyny, oraz laserowego skaningowego mikroskopu konfokalnego. Poniższy protokół można łatwo dostosować do różnych eksperymentów i potrzeb. Po pierwsze, w odniesieniu do struktur subkomórkowych, można zobrazować każdą strukturę, dla której istnieje marker żywej komórki. Następnie, mimo że nacisk kładziony jest wyłącznie na morfogenezę gałki wzrokowej, obrazowanie poklatkowe można dostosować do innych etapów rozwoju oka, na przykład neurogenezy25,26,27,28,29,30,31,32,33. Do późniejszego obrazowania rozwoju może być konieczne uwzględnienie unieruchomienia zarodka (gdy spontaniczna aktywność mięśni zaczyna się około 24 hpf), pigmentacji (która zaczyna się pojawiać około 24 hpf), wielkości tkanki (oko znacznie zwiększa swoją objętość podczas neurogenezy) i prędkości obrazowania (która powinna być dostosowana w zależności od szybkości interesującego procesu). Wszystkie te kwestie można łatwo rozwiązać. Protokół jest dość elastyczny; Oprócz szczegółów konkretnego protokołu znajdują się tutaj ogólne zasady, które pomogą osobom zainteresowanym obrazowaniem na żywo w innych aspektach rozwoju oka.
Protokół
Wszystkie opisane tutaj metody z użyciem danio pręgowanego są objęte protokołem dla zwierząt dr Kristen Kwan, "Komórkowe i molekularne mechanizmy rozwoju systemu wzrokowego u danio pręgowanego" i zatwierdzone przez Institutional Animal Care and Use Committee (IACUC) Uniwersytetu w Utah.
1. Synteza RNA z czapeczką
- Wygeneruj matrycę DNA do transkrypcji in vitro.
- Linearyzować matrycę DNA, trawiąc 10 μg DNA w objętości 100 μl mieszaniny reakcyjnej. Typowa reakcja przebiega w następujący sposób: roztrawić 10 μg DNA za pomocą 3 μl enzymu i 10 μl buforu, doprowadzić objętość reakcji do 100 μl wodą.
UWAGA: Typowym szablonem do trawienia jest wektor pCS2, na przykład pCS2-EGFP-CAAX lub pCS2FA-H2A.F/Z-mCherry dla opisanego tutaj znakowania błony i chromatyny. W tym przypadku plazmidowe DNA są trawione przy użyciu enzymu NotI. Użytkownicy powinni uważać na aktywność gwiazd; W takim przypadku enzym o wysokiej wierności jest zalecany i dostępny na rynku. - Inkubować reakcję w temperaturze 37 °C przez noc, aby upewnić się, że DNA jest trawione do końca.
- Oczyść trawienie restrykcji za pomocą zestawu do oczyszczania PCR zgodnie z protokołem producenta. Eluować DNA za pomocą 30 μl ddH2O. Przechowywać zlinearyzowane DNA w temperaturze -20 °C i stosować w razie potrzeby.
UWAGA: Ilość strawionego DNA i objętość elucji dają około 0,3 μg/μL; jest to wystarczające na ~5 rund transkrypcji in vitro, przy czym każda runda wykorzystuje ~2 μg DNA jako matrycę.
- Linearyzować matrycę DNA, trawiąc 10 μg DNA w objętości 100 μl mieszaniny reakcyjnej. Typowa reakcja przebiega w następujący sposób: roztrawić 10 μg DNA za pomocą 3 μl enzymu i 10 μl buforu, doprowadzić objętość reakcji do 100 μl wodą.
- Transkrypcja RNA z czapeczką in vitro przy użyciu zestawu do transkrypcji in vitro. W przypadku szablonów pCS2 (zgodnie z opisem tutaj) należy użyć zestawu SP6.
- Złóż reakcję transkrypcji in vitro w następujący sposób: Strawić 2 μg matrycy DNA lub do 6 μl z 2 μl 10x buforu reakcyjnego, 10 μl 2x mieszanki rybonukleotydów i 2 μl 10x mieszanki enzymatycznej.
- Inkubować w temperaturze 37 °C przez 2-4 godziny lub dłużej (dłuższy czas prowadzi do większej wydajności). W razie potrzeby 1 μl mieszanki enzymatycznej można uzupełnić w połowie okresu inkubacji.
- Roztrawić matrycę DNA, dodając 1 μl DNazy wolnej od RNaz i inkubując przez 15 minut w temperaturze 37 °C.
- Oczyść zakryte RNA za pomocą zestawu do oczyszczania RNA zgodnie z protokołem producenta (patrz Tabela materiałów). Eluować za pomocą 100 μl H2O.
UWAGA: Dodanie β-merkaptoetanolu nie jest konieczne do tego zastosowania. Chociaż metoda opisana w tym protokole jest prosta, do oczyszczania RNA można również użyć alternatywnych odczynników. - Wytrącić RNA.
- Do eluowanego RNA dodać 10 μl 3 M NaOAc wolnego od RNaz i 2,5 objętości (~275 μL) lodowatego 100% EtOH wolnego od RNaz .
- Inkubować reakcję w temperaturze -20 °C przez 15-30 minut. Wirować przez 15 minut z dużą prędkością w temperaturze 4 °C, aby uzyskać osad RNA.
UWAGA: Pellet powinien być widoczny przy ściance tuby. Na tym etapie warto zwrócić uwagę na to, jak rurka jest ustawiona w wirówce, aby przewidzieć, gdzie powinna znajdować się osadka na końcu wirowania. - Ostrożnie usunąć EtOH za pomocą strzykawki, uważając, aby uniknąć podgrzania, nadmiernego wysuszenia lub usunięcia granulki. Zawiesić osad w 20 μl H2O wolnego od RNaz.
- Sprawdź RNA, aby upewnić się, że synteza się powiodła. Użyj 1 μl do oznaczenia stężenia na spektrofotometrze i uruchom 0,5 μl na 1% żelu agarozowym, aby sprawdzić, czy nie ma jednego lub dwóch dyskretnych pasm, a nie rozmazu o niskiej masie cząsteczkowej. Wydajność reakcji transkrypcji in vitro powinna wynosić ~1 μg/μL.
- Podwielokrotność porcji i przechowywać RNA w temperaturze -20 °C lub -80 °C. RNA nie jest rozcieńczany aż do momentu bezpośrednio przed wstrzyknięciem.
2. Mikroiniekcja 1-komórkowych zarodków danio pręgowanego
UWAGA: Wstrzyknij 200-300 pg na RNA, aby uzyskać wszechobecną ekspresję chromatyny i błon komórkowych podczas morfogenezy panewki wzrokowej. Przygotować 5-10 μl rozcieńczenia RNA i załadować 2,5-5 μl/igłę; Zaplanuj dodatkowe na wypadek, gdyby igła pękła.
- Zaawansowane przygotowania do wstrzyknięć.
- Przygotuj naczynie do formy wtryskowej, aby ułatwić wyrównanie i orientację zarodków 1-komórkowych do mikroiniekcji. Rozpuść 2% agarozy w E3 (standardowa pożywka dla zarodków) i przelej na szalkę Petriego. Ostrożnie umieść formę wtryskową (patrz Tabela materiałów) na wierzchu gorącej agarozy, aby wytworzyć odcisk koryt w agarozie podczas jej krzepnięcia. Gdy agaroza zastygnie, wyjmij formę wtryskową.
UWAGA: Naczynia do form wtryskowych mogą być używane przez kilka miesięcy; przykryć w E3 i przechowywać w temperaturze 4 °C, gdy nie jest używane. - Wyciągnąć igły do mikroiniekcji. Pociągnij szklane kapilary do długiego stożka, aby wykonać igły do mikroiniekcji za pomocą ściągacza igieł. Zaprogramuj maszynę w zależności od rodzaju używanych kapilarn. W przypadku kapilar borokrzemianowych 1,0 x 0,78 mm należy zastosować następujący program: ciepło = 546 °C, ciąg = 130, prędkość = 70, czas = 90 (Rysunek 2F). Przechowuj igły na szalce Petriego i zabezpiecz je plasteliną.
UWAGA: Przepis na ciągnięcie będzie się różnił w zależności od maszyny i filamentu, a nowe filamenty należy zawsze kalibrować. Każda runda ciągnięcia wytwarza dwie igły (Rysunek 2G); Zrób to kilka razy, aby wyprodukować wystarczającą ilość igieł w przypadku przypadkowych pęknięć i przyszłych eksperymentów. - Rozcieńczyć zakryte RNA do wstrzykiwań. Rozcieńczyć zarówno RNA EGFP-CAAX, jak i H2A-mCherry do stężenia 200-300 ng/μL za pomocą wolnego od RNazH2Oi 1 μL czerwieni fenolowej w całkowitej objętości 5 μL (końcowe stężenie czerwieni fenolowej wynosi 0,1%). Przesuń mieszaninę i krótko odwiruj, aby zebrać całkowitą objętość. Rozcieńczone RNA należy przechowywać na lodzie przed wstrzyknięciem.
- Przygotuj naczynie do formy wtryskowej, aby ułatwić wyrównanie i orientację zarodków 1-komórkowych do mikroiniekcji. Rozpuść 2% agarozy w E3 (standardowa pożywka dla zarodków) i przelej na szalkę Petriego. Ostrożnie umieść formę wtryskową (patrz Tabela materiałów) na wierzchu gorącej agarozy, aby wytworzyć odcisk koryt w agarozie podczas jej krzepnięcia. Gdy agaroza zastygnie, wyjmij formę wtryskową.
- Iniekcja zarodków 1-komórkowych
- Gdy ryby zaczną się rozmnażać, odczekaj ~15-20 minut, aby upewnić się, że jaja zostaną zapłodnione. W tym czasie należy ponownie obciążyć igłę 2,5-5 μl rozcieńczonego RNA za pomocą końcówek do mikroładowarek P10 i P10.
- Za pomocą iniektora pikowtryskiwacza skalibruj igłę za pomocą siatki okularowej (wystarczy również szkiełko kalibracyjne mikrometru), aby zmierzyć objętość kropli (objętość kuli = (4/3) * pi * promień^3). Dostosuj czas i ciśnienie wtrysku tak, aby objętość wstrzyknięcia wynosiła 1 nL (Rysunek 2I).
- Za pomocą pipety rolkowej/transferowej ostrożnie załaduj jaja do formy wtryskowej ( Rysunek 2J). Jeśli jest to pomocne, należy użyć kleszczy do zwijania zarodków w taki sposób, aby pojedyncza komórka była widoczna, zarówno przed wstrzyknięciem, jak i w jego trakcie. Użytkownik preferuje korzystanie z mikromanipulatora.
- Wstrzykuj zarodki w fazie 1-komórkowej, celując w komórkę, a nie w żółtko (Ryc. 2M). Zapewni to jednolite oznakowanie rozwijającego się zarodka.
- Wyhoduj zarodki do pożądanego stadium (przed 12 hpf, zgodnie ze standardową inscenizacją34). Zarodki, którym wstrzyknięto zarodki, będą miały opóźniony rozwój, dlatego należy je hodować w nieco wyższej temperaturze (29,0-29,5 °C), aby nadrobić czas. Po południu sprawdź zarodki i usuń te, które są martwe, aby zachować zdrowie sprzęgła.
3. Montaż zarodków danio pręgowanego w stadium pęcherzyka wzrokowego do obrazowania poklatkowego
- Przed montażem przygotuj 1,6% niskotopliwą agarozę w E3. Jeśli planujesz wiele eksperymentów obrazowych, przygotuj ~20 ml niskotopliwej agarozy i przechowuj w temperaturze pokojowej. W dniu montażu zarodka należy go rozpuścić, aby wytworzyć świeżą porcję (1-5 ml) w probówce, którą przed zamontowaniem można umieścić w bloku grzewczym o temperaturze 42 °C.
- Przed zamontowaniem należy przeprowadzić badania przesiewowe zarodków pod kątem udanego wstrzyknięcia i ogólnej jasności fluorescencji za pomocą mikroskopu fluorescencyjnego. Idealna próbka będzie miała silną fluorescencję EGFP i mCherry oraz będzie w prawidłowym stadium rozwoju (Rysunek 3B - B'').
- Badania przesiewowe zarodków za pomocą mikroskopu fluorescencyjnego. Wybierz zarodki, które silnie eksprymują zarówno EGFP, jak i fluorescencję mCherry do montowania.
- Wybierz zarodki, które mają 11 hpf. Policz somity, aby prawidłowo ustawić zarodki34; Przy 11 hpf powinny być 3 somity, a przy 12 hpf 6 somitów.
UWAGA: Montując zarodki przed 12 hpf (przy 11 hpf), próbki zostaną odpowiednio zainscenizowane w temperaturze 12 hpf, gdy rozpocznie się timelapse.
- Dekorionate zarodki przed montażem. Zrób to ręcznie za pomocą cienkich kleszczy lub chemicznie za pomocą pronazy (2 mg / ml). W przypadku tak młodych zarodków ważne jest, aby dechorionacja była przeprowadzana w naczyniu pokrytym agarem i aby zarodki nie stykały się z powierzchnią powietrzno-wodną.
- Za pomocą szklanej pipety rolkowej zassaj zarodek i wyrzuć jak najwięcej E3, tak aby zarodek znalazł się na końcu szklanej pipety Pasteura.
- Wrzuć zarodek do probówki z agarozą z bloku grzewczego. Pozwól mu zanurzyć się w agarozie na kilka sekund, a następnie zassaj najpierw trochę agarozy, a następnie zarodek, upewniając się, że zarodek pozostaje na końcu pipety (Rysunek 3C - C').
- Umieść naczynie ze szklanym dnem do obrazowania pod lunetą sekcyjną. Wyrzuć zarodek i agarozę do kropli agarozy w naczyniu ze szklanym dnem. Użyj kleszczy, aby bardzo szybko zorientować się, tak aby zarodek był grzbietowo skierowany w dół (czubek głowy na szklanym dnie). Pozwól, aby kropla agarozy stwardniała (Rysunek 3D - D'). Ten krok należy wykonać szybko, ale ostrożnie, ponieważ zarodki na tym etapie są delikatne. Uszkodzone zarodki nie przetrwają procesu obrazowania poklatkowego.
UWAGA: Ważne jest, aby w tym eksperymencie konsekwentnie orientować wszystkie zarodki. Podczas wykonywania timelapse zarodki muszą zmieścić się w przypisanym im polu widzenia, zachowując przy tym dodatkową przestrzeń, w której pęcherzyk wzrokowy może się zrosnąć. Optymalna orientacja polega na ustawieniu osi przednio-tylnej wszystkich zarodków "pionowo" lub wzdłuż godziny 12 i 6 na tarczy zegara (Ryc. 3G). - Zamontuj od 10 do 12 zarodków, czyli ponad dwa razy więcej niż to, co zostanie zobrazowane, tak aby najlepsze próbki można było wybrać po ocenie na konfokalnym (Rysunek 3E - E'). Próbki będą oceniane pod kątem wieku, jednorodności etykietowania fluorescencyjnego i precyzji orientacji montażu.
- Po zamontowaniu zarodków, odpipetuj więcej agarozy, aby całkowicie pokryć dno naczynia, zamykając w ten sposób wszystkie oddzielne kropelki agarozy w jednym dużym krążku agarozy (Rysunek 3F - F'). Wystarczająca ilość agarozy sprawi, że pojedyncze kropelki zarodka lub cały krążek nie uniosą się z dna naczynia i nie uniosą się poza pole widzenia.
- Po utwardzeniu agarozę należy pokryć E3, aby utrzymać próbki w stanie nawodnienia przez cały czas trwania eksperymentu z obrazowaniem poklatkowym (problem zależy od wilgotności budynku i środowiska).
UWAGA: Trikaina nie jest konieczna do tych konkretnych eksperymentów z obrazowaniem poklatkowym, ponieważ te zarodki są wystarczająco młode; Jednak w razie potrzeby i w przypadku pracy ze starszymi stadiami zarodków, trikainę można dodać do samej agarozy i nałożyć na pożywkę. - Na papierze narysuj mapę zarodków, aby mieć do niej łatwy wgląd podczas ustawiania filmu poklatkowego. Ma to kluczowe znaczenie dla późniejszego powiązania pozycji z genotypem każdej próbki.
4. Wielopozycyjny konfokalny timelapse z laserowym skaningowym mikroskopem konfokalnym
UWAGA: Ten protokół obrazowania poklatkowego został zaprojektowany do użytku z laserowym skaningowym mikroskopem konfokalnym wyposażonym w oprogramowanie producenta (patrz Tabela Materiałów). System ten jest wyposażony w urządzenie piezoelektryczne ze stopniem Z, które umożliwia szybkie pobieranie stosów Z. Linie laserowe używane w tym protokole to laser jonowy argonu o długości fali 488 nm oraz laser DPSS o długości fali 561 nm. Laser o długości fali 561 nm doskonale nadaje się do obrazowania fluoroforu mCherry: jest wystarczająco blisko szczytu wzbudzenia mCherry (587 nm) i ma dobrą moc.
- Skonfiguruj konfokal.
- Włącz konfokał i zaloguj się do komputera stacjonarnego.
- Zainstaluj wkładkę piezoelektrycznego stolika Z (Rysunek 4B), a następnie uruchom oprogramowanie do akwizycji.
- W oprogramowaniu w trybie akwizycji włącz lasery 488 i 561 za pomocą menu rozwijanego ( Rysunek 4F). Lasery nagrzewają się przez kilka minut, więc ten krok jest wykonywany wcześnie, aby zaoszczędzić czas.
UWAGA: Parametry akwizycji są następujące: Zaznacz pola Z-stack, Time Series i Position. Ustaw rozmiar klatki na 512 (X) x 384 (Y), szybkość skanowania na 9, tryb skanowania na dwukierunkowy, powiększenie na 0,7, otworek na 60,2 (1,63 jednostki przewiewne ~= sekcja 1,6 μm) i interwał Z na 2,1 μm. Daje to rozmiar obrazu 303,6 μm x 227,7 μm i rozmiar piksela 0,59 μm. Lasery 488 i 561 powinny być sprawdzone i przypisane do tego samego toru; zakres wykrywania EGFP wynosi 494-545 nm, a zakres wykrywania mCherry wynosi 598-679 (Rysunek 4F). - Obficie pokryj dno szklanego naczynia medium zanurzeniowym pasującym do współczynnika załamania światła wody, uważając, aby uniknąć pęcherzyków powietrza (Rysunek 4C). Wybierz obiektyw wodny 40x i nałóż niewielką kroplę medium zanurzeniowego na obiektyw (Rysunek 4D). Zabezpiecz naczynie ze szklanym dnem we wkładce scenicznej, nałóż E3, aby zarodki były wilgotne przez noc, a następnie użyj plasteliny, aby uszczelnić plastikową pokrywkę nad naczyniem (Rysunek 4E). Podnieś cel, aby nawiązać kontakt z naczyniem.
- Przejrzyj próbki i przygotuj się do timelapse.
- Przełącz się z zakładki Akwizycja na kartę Zlokalizuj i kliknij symbol żarówki, aby włączyć światło przechodzące. Przy świetle przechodzącym zlokalizuj pierwszą próbkę za pomocą joysticka: na oko najpierw przesuń próbkę w wiązkę światła, a następnie użyj okularów do środka i skup się na pęcherzyku wzrokowym.
- Wróć do karty Akwizycja. Upewnij się, że pola Z-stack, Time Series (szeregi czasowe) i Positions (Pozycje) są zaznaczone, a lasery są rozgrzane do użycia.
- Ustaw rozmiar klatki na 512 (x) x 384 (Y), szybkość skanowania na 9, tryb skanowania na dwukierunkowy i ustaw powiększenie na 0,7.
- Pod nagłówkiem Kanały zacznij od przypisania laserów 488 i 561 do Power 2.0 i Gain 550 (można to później dostosować). Ustaw otwór na 60,2 (1,63 jednostki Airy ~= sekcja 1,6 μm).
- Rozpocznij skanowanie za pomocą przycisku Ciągłe. Za pomocą pokrętła precyzyjnego ustawiania ostrości zlokalizuj próbkę w osi Z i ustaw oś XY w ramce. Zatrzymaj skanowanie.
- Pod nagłówkiem Positions (Pozycje) kliknij przycisk Add (Dodaj), aby zapisać informacje XYZ dotyczące pierwszej próbki (Rysunek 4F). Należy to zrobić tylko w przypadku próbek, które mają być poklatkowe. Wybieraj próbki ze względu na ich silną fluorescencję i optymalne mocowanie.
- Przełącz się na kartę Zlokalizuj, przejdź do następnej próbki i powtórz kroki 4.2.5-4.2.6, selektywnie wybierając próbki.
- Sfinalizuj pozycje próbki, przypisz zakres z, a następnie rozpocznij timelapse. Po wybraniu wszystkich próbek (możliwe jest zobrazowanie 4-5 próbek w ciągu 2,5-minutowego całkowitego przedziału czasu) i zapisaniu pozycji, przejdź przez każdą próbkę i dostosuj pozycję XYZ w ramce view.
- Zaznacz pierwszą pozycję i kliknij Przenieś do. Podczas ciągłego skanowania wyrównaj pęcherzyk wzrokowy w ramce. Pozostaw dużo miejsca w przednich i dystalnych obszarach w stosunku do pęcherzyka wzrokowego i mózgu.
- Następnie przypisz pierwszy i ostatni plasterek Z, wybierając opcję Ustaw pierwszy i Ustaw ostatni, przesuwając się w kierunku Z za pomocą pokrętła precyzyjnego ustawiania ostrości. Utrzymuj całkowitą liczbę plasterków wynoszącą ~63, ponieważ dostosuje się to do wzrostu miseczki optycznej. Zapewnij dodatkowe miejsce po brzusznej stronie pęcherzyka wzrokowego, aby zapewnić miejsce na wzrost.
- Po ustawieniu pierwszego i ostatniego plasterka Z kliknij przycisk C, aby przejść do środka stosu Z. Dostosuj moc i wzmocnienie lasera dla obu laserów; Jeśli to możliwe, utrzymuj moc lasera poniżej 5 i w razie potrzeby użyj większego wzmocnienia. Zatrzymaj skanowanie. Zaktualizuj informacje o pozycji, klikając przycisk Aktualizuj.
- Przejdź do następnej pozycji, klikając Pozycję 2. Powtórz kroki 4.3.1-4.3.3 dla każdej przypisanej pozycji. Moc i wzmocnienie lasera powinny być ustawione w taki sposób, aby wszystkie próbki były wystarczająco oświetlone.
- Po sfinalizowaniu zarówno informacji o położeniu, jak i ustawień lasera przypisz ustawienia szeregów czasowych. Pod nagłówkiem Szeregi czasowe przypisz interwał czasu do 2,5 minuty, a cykle do 300 (Rysunek 4F). Liczba cykli jest obliczana w taki sposób, aby timelapse przechodził przez etap 24 hpf, kiedy rozwój miseczki optycznej jest zakończony.
- Aby rozpocząć film poklatkowy, kliknij Start. Monitoruj pierwszy pełny cykl: użyj timera, aby upewnić się, że jeden pełny cykl (obrazowanie wszystkich pozycji) jest krótszy niż 2,5 minuty i sprawdź, czy każda pozycja wygląda poprawnie. Mikroskop działa niezależnie przez noc i nie musi być monitorowany.
UWAGA: Chociaż temperatura w pomieszczeniu konfokalnym jest kontrolowana, temperatura w pomieszczeniu wynosi 20-25 °C. Przy włączonym sprzęcie i skanowaniu laserowym temperatura na scenie wydaje się być bliższa 28,5 °C, ponieważ rozwój embrionalny przebiega w oczekiwanym tempie, co zostało wizualnie potwierdzone za pomocą morfologicznych punktów orientacyjnych. - Przy tych ustawieniach timelapse będzie trwał 12,5 h. Zapisz plik po zakończeniu timelapse. Będzie on duży (~40 GB) i po zapisaniu za pomocą oprogramowania do akwizycji można go podzielić na poszczególne pozycje.
Wyniki
Iniekcja fluorescencyjnych RNA umożliwia znakowanie wewnątrzkomórkowe
W celu uchwycenia indywidualnej morfologii i ruchów komórek leżących u podstaw morfogenezy pucharu optycznego, wstrzykuje się RNA znakujące błonę plazmatyczną komórek oraz histony. Rycina 2 przedstawia każdy etap procesu mikroiniekcji zarodków danio pręgowanego w stadium 1 komórki. W skrócie, danio pręgowane są kojone (Rycina 2E), a zarodki są zbierane i umieszczane w formie do iniekcji (Rycina 2J). Igła do mikroiniekcji jest napełniana od tyłu (Rycina 2H), a zarodki są iniektowane bezpośrednio do pojedynczej komórki (Rycina 2K-M), co jest niezbędne do uzyskania jednorodnego znakowania (Rycina 2M, Rycina 4I-I''', Film 1). Oprócz jednorodnego znakowania obserwuje się silną fluorescencję, a rozwój przebiega bez zakłóceń (Rycina 3B-B'').
Skuteczne montowanie jest niezbędne do obrazowania timelapse OCM od 12-24 hpf
Aby obrazować morfogenezę pucharka optycznego, która zachodzi w dłuższym okresie czasu, kluczowe jest zarówno wybranie idealnych embrionów, jak i prawidłowe ustawienie każdej próbki podczas zatapiania. Rycina 3 przedstawia szczegółowy opis pomyślnego montowania embrionów w 11 hpf. Wstrzyknięte embriony są najpierw przesiewane pod kątem wystarczającej fluorescencji (Rycina 3B',B'',F'',F'''). Pojedyncze embriony są zanurzane w agarozie (Rycina 3C,C') i montowane grzbietowo w pojedynczej kropli agarozy (Rycina 3D,D'). Wszystkie próbki są montowane w zbiorczym dysku agarozy (Rycina 3E-F'). Jeśli embriony są na właściwym stadium rozwoju, wykazują wystarczającą fluorescencję i są odpowiednio zamontowane (Rycina 3G), próbki pozostaną w polu obrazowania podczas timelapse, co pozwoli na obrazowanie całego narządu (Rycina 4G-G'', I-I''', Film 1). Niezastosowanie się do któregokolwiek z tych kroków spowoduje, że zamontowany embrion nie będzie optymalną próbką do obrazowania timelapse. Najmniejsza różnica w stopniu obrotu będzie miała drastyczny wpływ na kierunek wzrostu embrionu podczas timelapse. Suboptymalne obroty pokazano na Rycynie 3, w tym embrion zbyt mocno obrócony (Rycina 3I), co spowoduje przesunięcie timelapse w stronę tylną, oraz embrion niedostatecznie obrócony (Rycina 3J), w którym można zaobserwować jedynie najbardziej przednie tkanki. Oprócz prawidłowego obrotu podczas montowania, próbki zamontowane z uwzględnieniem orientacji ramki częściej dają pomyślny wynik timelapse (Rycina 4G-G'', I-I''', Film 1). Optymalne próbki to takie, które są zorientowane pionowo na szalce, z osią przednio-tylną zgodną z godziną 12 i 6 na tarczy zegara (Rycina 3G). Próbki suboptymalne to takie, które nie są zorientowane wzdłuż tej osi, np. te ustawione poziomo lub po przekątnej (Rycina 3H). Próbki te będą przerastać pole obrazowania w miarę postępu timelapse i nie mogą być wykorzystane do dalszych analiz (Rycina 4H-H'', J-J''').
Pozyskiwanie zestawu danych timelapse odpowiedniego do przyszłej analizy
Zarodki, które zostały precyzyjnie wstrzyknięte, wyhodowane i zamontowane, stanowią podstawę do uzyskania udanych obrazów konfokalnych. Rycina 4 przedstawia optymalną próbkę do timelapse: fluorescencja jest jednorodna, a próbka znajduje się w stadium 12 hpf. Zakres z-stack dla obrazowania jest wyznaczony tak, aby pierwszy przekrój znajdował się tuż powyżej strony grzbietowej pęcherzyka optycznego, natomiast ostatni przekrój obejmuje kilka warstw poza granicą brzuszną pęcherzyka optycznego w stadium 12 hpf (Rycina 4G-G''). Taki margines po stronie brzusznej zapewnia dodatkową przestrzeń na wzrost tkanki w kierunku brzusznym. Spełnienie tych czynników pozwala na uzyskanie optymalnego timelapse (Rycina 4I-I''', Film 1). Próbka suboptymalna charakteryzuje się mozaikową lub słabą fluorescencją, przekroczyła już stadium 12 hpf (kiedy zachodzi morfogeneza pucharka optycznego) lub jest źle ustawiona w z-stacku bądź w klatce XY (Rycina 4H-H''). Gdy kryteria te nie są spełnione, timelapse nie będzie już rejestrować całej objętości 3D tkanki podczas jej rozwoju i nie będzie mógł zostać wykorzystany do dalszych analiz (Rycina 4J-J''').

Rycina 1: Schemat obrazowania timelapse 4D morfogenezy pucharka optycznego u danio pręgowanego. (A) W celu fluorescencyjnego znakowania interesujących struktur subkomórkowych należy zsyntetyzować odpowiednie mRNA z czapeczką. (B) Mikroiniekcja mRNA do embrionów danio pręgowanego w stadium 1 komórki. (C) Embriony są montowane grzbietowo lub głową w dół dla odwróconego mikroskopu konfokalnego na etapie pęcherzyka optycznego, ok. 11 h po zapłodnieniu lub w stadium 3 somytów. (D) W ramach jednej sesji obrazowania timelapse można sekwencyjnie obrazować wiele embrionów. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 2: Przewodnik wizualny mikroiniekcji embrionów danio pręgowanego w stadium 1 komórki. (A) Elementy wchodzące w skład zestawu do iniekcji (zgodnie z ruchem wskazówek zegara): średniej wielkości pudełko, w którym można pomieścić cały zestaw wraz z jednorazowymi rękawiczkami nitrylowymi; szalka zawierająca igły do mikroiniekcji; pęseta; porcja oleju mineralnego i wycięte kwadraty parafilmu; końcówki do mikroładowania; rozcieńczone RNA w lodzie; agarowa forma do iniekcji; marker; pipeta rolkowa/transferowa oraz pipeta P10. (B) Konfiguracja mikroiniekcji: mikroskop stereoskopowy obok piko-injektora podłączonego do zewnętrznego źródła sprężonego gazu. Do piko-injektora przymocowane są pedał nożny i mikromanipulator. Mikromanipulator jest wyposażony w uchwyt igły i umieszczony nad stolikiem mikroskopu. (C) Agarowa forma do iniekcji zawierająca sześć rzędów rowków z kątem 90 stopni po jednej stronie i 4tem 45 stopni po drugiej stronie. (D) Panel przedni piko-injektora. Wyświetlacz ciśnienia wskazuje 7.8 PSI; można go regulować pokrętłem oznaczonym jako Pinject. Poniżej znajdują się przyciski do ręcznego wyzwalania ciśnienia w celu iniekcji, zmiany czasu iniekcji lub oczyszczania, napełniania bądź utrzymywania cieczy w igle. Czas iniekcji jest ustawiony na 08 (co odpowiada 8 x 10 msec). Wąż wyjściowy jest podłączony do Pout i przytwierdzony do igły iniekcyjnej. Przełącznik źródła manometru jest ustawiony na Pinject podczas ustawiania ciśnienia iniekcji, a następnie może zostać przełączony na Pbalance w celu dostrojenia ciśnienia bazowego przyłożonego do igły, gdy iniekcje nie są wykonywane. Regulator Pbalance znajduje się obok regulatora Pinject. Podświetlony przycisk zasilania wskazuje, że urządzenie jest włączone. (E) Dorosłe ryby danio pręgowane są łączone w małych zbiornikach hodowlanych, które zawierają wkładkę z dnem z siatki, co oddziela dorosłe ryby od zapłodnionych jaj i ułatwia ich zbieranie. Poziom wody jest obniżony, aby naśladować warunki płytkiej wody, a przegrody zbiornika są usuwane, aby zainicjować zachowania godowe. (F) Panel przedni wyciągarki mikropipet (igieł): zawiera wyświetlacz pokazujący konkretne warunki użyte do wyciągania igieł. Ustawienie ciśnienia to P = 500, po którym następuje data i godzina ostatniej edycji programu, numer programu, HEAT = 546, PULL = 130, VEL = 70 oraz TIME = 90. (G) Jedna kapilara szklana jest wkładana do wyciągarki mikropipet (igieł) i mocowana w odpowiednim miejscu. Każdy zaprogramowany cykl wyciągania skutkuje powstaniem dwóch długich, zwężających się igieł (czerwone groty strzałek). (H) Rozcieńczenie RNA jest ładowane od tyłu do igły; barwnik czerwień fenolowa pozwala na łatwą wizualizację roztworu. (I) Po odłamaniu końcówki igły, objętość bolusa RNA jest mierzona za pomocą siatki okularowej w mikroskopie stereoskopowym. W tym mikroskopie stereoskopowym, przy całkowitym powiększeniu 30x, 6 kresek odpowiada objętości 1 nL. (J) Zapłodnione jaja są umieszczane w agarowej formie do iniekcji i rozmieszczane wzdłuż koryt formy za pomocą pipety rolkowej. (K) Forma do iniekcji zawierająca embriony w stadium jednej komórki jest ustawiona pod mikroskopem, a embriony są iniektowane sekwencyjnie. (L) Igła iniekcyjna jest wprowadzana do każdego embrionu, celując w pojedynczą komórkę. (M) Po wprowadzeniu do komórki, pedał nożny służy do wyzwolenia regulowanej ilości ciśnienia i uwolnienia 1 nL RNA do komórki embrionu (wizualizowane za pomocą czerwieni fenolowej). Paski skali: I = 0.1 mm; L, M = 0.5 mm. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
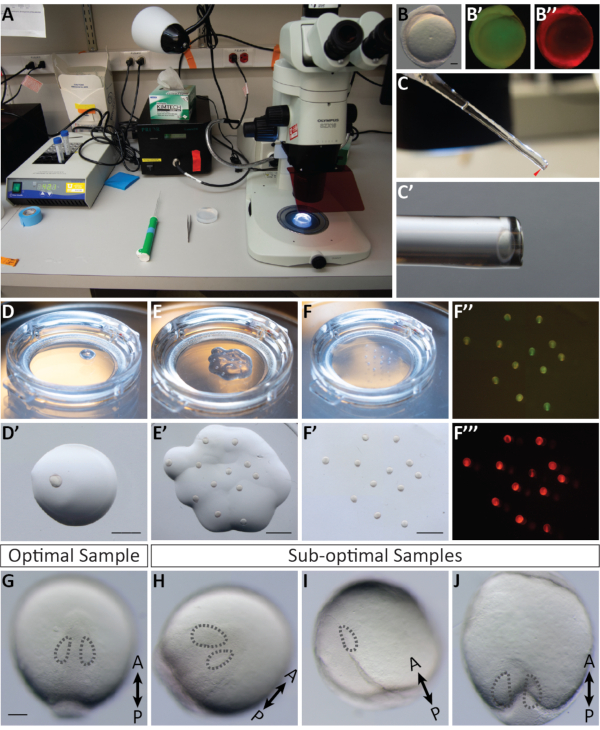
Rycina 3: Przewodnik wizualny dotyczący montowania zarodków do obrazowania. (A) Układ do montowania (od lewej do prawej): blok grzejny zaprogramowany na 42 °C, probówki z podgrzewaną agarozą o niskiej temperaturze topnienia; pipeta rolkowa; pęseta; szalka pokryta agarozą zawierająca zdechorionowane zarodki; oraz stereomikroskop sekcyjny podłączony do halogenowej lampy fluorescencyjnej. (B,B',B'') Zarodek w 11 hpf wstrzyknięty mRNA EGFP-CAAX oraz mRNA mCherry-H2A, przedstawiony odpowiednio w świetle przechodzącym, fluorescencji GFP i fluorescencji mCherry. (C,C') Szklana pipeta Pasteura zawierająca agarozę z zarodkiem umieszczonym w końcówce; C' to widok powiększony. (D,D') Pojedynczy zarodek zamontowany w kropli agarozy o niskiej temperaturze topnienia na szalce z przeszklonym dnem, widziany zarówno z poziomu stolika mikroskopu, jak i przez okulary mikroskopu. (E,E') 12 zarodków zamontowanych w oddzielnych kroplach agarozy o niskiej temperaturze topnienia na szalce z przeszklonym dnem, widzianych zarówno z poziomu stolika mikroskopu, jak i przez okulary mikroskopu. (F,F',F'',F''') Wszystkie zamontowane zarodki są przykryte pełną warstwą agarozy wypełniającą dno szalki, widziane zarówno z poziomu stolika mikroskopu, jak i przez okulary mikroskopu w świetle przechodzącym; F'' fluorescencja GFP; oraz F''' fluorescencja mCherry. (G) Optymalna próbka w 12 hpf jest zamontowana grzbietowo i zorientowana pionowo w linii godziny 12 i 6, z oboma pęcherzykami optycznymi w tej samej płaszczyźnie. (H) Próbka suboptymalna: mimo zamontowania grzbietowego i znalezienia się pęcherzyków optycznych w jednej płaszczyźnie, próbka ta jest zorientowana wzdłuż osi przekątnej i w miarę postępu rozwoju wyjdzie poza obszar kadru. (I) Próbka suboptymalna: próbka ta jest nadmiernie obrócona i nie jest zamontowana grzbietowo, w rezultacie przednia część pęcherzyka optycznego nie zostanie uchwycona w obrazowaniu timelapse. (J) Próbka suboptymalna: próbka ta jest niedostatecznie obrócona i nie jest zamontowana grzbietowo, w rezultacie tylna część pęcherzyka optycznego nie zostanie uchwycona w obrazowaniu timelapse. Linie przerywane wskazują każdy pęcherzyk optyczny. Paski skali: B = 0.1 mm; D' = 1.5 mm; E', F' = 2.5 mm; G = 0.1 mm. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.

Rysunek 4: Konfiguracja timelapse w wielu pozycjach oraz potencjalne wyniki. (A) Konfokalny mikroskop skaningowy. (B) Wkładka piezoelektrycznego stolika Z. (C) Dno szalki z dna szklanego zawierającej embriony zatopione w agarozie jest pokryte medium immersyjnym o współczynniku załamania światła dopasowanym do wody. (D) Kropla medium immersyjnego zostaje umieszczona na obiektywie 40x W (długa odległość robocza). (E) Szalka zostaje unieruchomiona za pomocą wkładki stolika, na warstwę agarozy nakłada się E3, a pokrywkę zabezpiecza plasteliną. (F) Ustawienia oprogramowania do akwizycji: z menu rozwijanego włączane są pożądane linie laserowe. Dla embrionów wstrzykniętych z RNA EGFP-CAAX i RNA H2A-mCherry włączane są lasery Argon oraz DPSS 561-10. Czerwone podświetlenie wskazuje, że laser Argon się rozgrzewa. Aby zlokalizować próbkę nad obiektywem, za pomocą panelu sterowania mikroskopem włącza się światło transmitowane. Zarówno EGFP, jak i mCherry są przypisane do Ścieżki 1 (do jednoczesnego obrazowania), a następnie ustawiany jest zakres każdego detektora. Tutaj zakres EGFP jest ustawiony na 494-545 nm, a zakres mCherry na 598-679 nm. W menu Channels można ustawić moc lasera. Po rozgrzaniu laserów moc może zostać zwiększona do 5.0, a następnie można dostosować wzmocnienie (master). Pinhole jest ustawiony na 60.2, co odpowiada 1.63 Jednostkom Airy’ego lub przekrojowi 1.6 µm. W menu Acquisition rozmiar klatki jest ustawiony na 512 x 384, prędkość skanowania wynosi 9.0, uśrednianie jest dwukierunkowe, a powiększenie zoom ustawione na 0.7. W menu Z-Stack ustawiane są pierwsza i ostatnia pozycja w osi Z podczas skanowania konfokalnego. Interwał (wielkość kroku) jest ustawiony na 2.1 µm. Podczas wyboru pierwszej i ostatniej pozycji Z zazwyczaj utrzymuje się standardową liczbę 63 przekrojów; pozwala to na uwzględnienie ogólnego wzrostu oka. Wybrano opcję „use piezo”. W menu Positions wymieniona jest każda wybrana pozycja, wraz z przypisanym numerem oraz pozycją X, Y i Z. Dostępne są dodatkowe przyciski do sterowania liczbą obrazowanych embrionów (osobne pozycje), w tym funkcje dodawania, aktualizacji lub usuwania. W menu Time Series cykl ustawiony jest na 300 (liczba akwizycji Z-stacks), a interwał (krok czasowy) na 2.5 min. Po sfinalizowaniu ustawień akwizycję timelapse rozpoczyna się, naciskając przycisk start. Oprogramowanie wyświetli przekrój Z-stack, cykl oraz aktualnie skanowaną pozycję. Po zakończeniu timelapse plik jest zapisywany poprzez kliknięcie ikony dyskietki w panelu Images and Documents. (G-J) Membrany komórkowe (zielone) są znakowane EGFP-CAAX, a jądra komórkowe (chromatyna, magenta) są znakowane RNA H2A-mCherry. (G,G',G'') Przykład ustawienia pierwszego i ostatniego przekroju Z dla optymalnie zamontowanej próbki. Pierwszy przekrój Z (po stronie grzbietowej) obejmuje ektodermę grzbietową, natomiast ostatni przekrój Z (po stronie brzusznej) znajduje się znacznie poniżej pęcherzyka optycznego, aby umożliwić jego wzrost w kierunku brzusznym. (H,H',H'') Przykład ustawienia pierwszego i ostatniego przekroju Z dla próbki suboptymalnej. Próbka wykazuje słabą fluorescencję mCherry i jest zamontowana ukośnie, przez co rozwijająca się czara optyczna prawdopodobnie nie pozostanie w kadrze przez cały czas trwania timelapse. (I,I',I'',I''') Przykład timelapse z optymalnej próbki. Pojedyncze obrazy przekrojów ze środka Z-stacku pobrano z całej objętości 63 przekrojów w 4 punktach czasowych (wartość T). Br, mózg; NR, siatkówka neuronowa; RPE, nabłonek pigmentowy siatkówki; Le, soczewka. (J,J',J'',J''') Przykład timelapse z próbki suboptymalnej. W tym przypadku próbka przesunęła się poza płaszczyznę Z i zarejestrowano jedynie ukośny fragment przedniej części czary optycznej. Paski skali: G, I = 50 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Film 1: Timelapse morfogenezy pucharka optycznego w optymalnym embrionie typu dzikiego. Widok grzbietowy embrionu typu dzikiego oznakowanego EGFP-CAAX (błony plazmatyczne, zielony) oraz H2A.F/Z-mCherry (chromatyna, magenta). Timelapse obejmuje okres od ok. 12-24 hpf i zawiera pojedynczy przekrój konfokalny z pełnego zestawu danych 4D. Odstęp czasu między stosami z-stack wynosi 2,5 min, a film jest wyświetlany z prędkością 22,5 klatek na sekundę. Kliknij tutaj, aby pobrać ten film.
Dyskusja
W tym miejscu opisujemy protokół znakowania in toto i obrazowania poklatkowego 4D morfogenezy kubka wzrokowego. Przechodzimy przez proces generowania ograniczonego RNA kodującego białka fluorescencyjne w celu oznaczenia różnych przedziałów subkomórkowych; wstrzykiwanie 1-komórkowych zarodków danio pręgowanego; osadzanie 11 zarodków HPF w agarozie w celu obrazowania multipleksowego; oraz pozyskiwanie zestawów danych 4D wielu zarodków na czas morfogenezy miseczki nerwu wzrokowego (12–24 hpf).
Dzięki tym bogatym w informacje zestawom danych można odpowiedzieć na niezliczone pytania. Dane 4D mogą być wizualizowane i analizowane ilościowo na różne sposoby. Chociaż wykracza to poza zakres tego protokołu, zamieszczamy tutaj niektóre z naszych celów i standardowych aplikacji jako przykład rodzajów rzeczy, które można osiągnąć. Oczywiście metody ilościowej analizy obrazu są stale rozwijane i można korzystać zarówno z narzędzi dostępnych na rynku, jak i niestandardowych. Jeśli ktoś wcześniej nie korzystał z takich metod, powinien być przygotowany na pracę nad optymalizacją, aby upewnić się, że pozyskane zestawy danych są odpowiednie dla wybranego podejścia do analizy ilościowej.
Wizualizacja i ilościowa ocena zestawów danych 4D może być trudna ze względu na rozmiar plików. Oprogramowanie do akwizycji może być używane do rozdzielania zestawów danych na poszczególne zarodki, a ImageJ/Fiji może być używane do konwersji plików konfokalnych z formatów komercyjnych na bardziej standardowe stosy tif, w których każdy punkt czasowy jest zapisywany jako osobny plik. Spowoduje to zmniejszenie rozmiarów plików i ujednolicenie formatów plików. Poszczególne sekcje optyczne z każdego punktu czasowego mogą być składane jako timelapse 2D (XY) za pomocą ImageJ/Fiji, co umożliwia szybką wizualizację 2D i ocenę danych. Film 1 jest dokładnie tego przykładem: pojedynczy przekrój optyczny w czasie złożony jako timelapse optymalnej próbki pokazanej na rysunku 4I-I'''. Stamtąd, do wizualizacji 3D i 4D, zwykle używamy FluoRender35,36, który jest dostępny bezpłatnie, ale ma określone wymagania dotyczące karty graficznej. Za pomocą FluoRender można obracać dane renderowane w 3D w dowolnej osi, wizualizować zestaw danych w 4D w czasie, generować przekroje w dowolnej płaszczyźnie oraz zapisywać obroty i wizualizacje jako film lub serię obrazów tif.
Jeśli chodzi o analizę ilościową, istnieje wiele pytań, na które należy odpowiedzieć. Opracowaliśmy oprogramowanie we własnym zakresie, aby pomóc nam w zrozumieniu zachowań komórek leżących u podstaw morfogenezy miseczki wzrokowej. Nasz program, LongTracker, wykorzystuje sygnał jądrowy jako proxy dla pozycji do śledzenia komórek13. Dzięki tym danym możemy określić, kiedy, gdzie i jak poruszają się komórki; jak szybko i jak daleko poruszają się komórki; i jak często dzielą się komórki. Oprócz naszego własnego oprogramowania istnieje wiele dostępnych na rynku i niestandardowych opcji śledzenia komórek 4D. Opracowaliśmy również program LongAxis do przeprowadzania segmentacji komórek oraz ilościowego określania kształtu i organizacji komórek w siatkówce nerwowej37. Zestawy danych wprowadzane do LongAxis są jednak pojedynczymi stosami Z, wykonanymi w wysokiej rozdzielczości. Nieustającym wyzwaniem było generowanie zestawów danych poklatkowych o wystarczająco wysokiej rozdzielczości, aby można było z pewnością segmentować komórki i ekstrapolować ich morfologię. Jedną z alternatyw jest mozaikowe (rzadkie) znakowanie przy użyciu fotokonwertowalnego fluoroforu, takiego jak Kaede, do bezpośredniej wizualizacji kształtu komórki, jak to przeprowadziliśmy i inni w rozwijającym się oku 8,11,13. Upraszcza to problem segmentacji komórek, a kształt i rozmiar komórki można łatwo określić ilościowo za pomocą renderowania 3D w FluoRender.
Każdy krok tego protokołu został zoptymalizowany specjalnie dla naszych celów. Specyfika tego protokołu skutkuje kilkoma ograniczeniami: protokół, tak jak został napisany, nie jest zoptymalizowany pod kątem obrazowania innych aspektów rozwoju oka danio pręgowanego (takich jak neurogeneza siatkówki), innych struktur oka, innych etapów rozwoju lub innych przedziałów subkomórkowych. Orientacja osadzania, szybkość obrazowania i etykiety są zaprojektowane tak, aby umożliwić nam odpowiedź na nasze biologiczne pytania. Na przykład, aby zobrazować neurogenezę siatkówki, opisana tutaj orientacja grzbietowa zarodka może nie pozwalać na wizualizację określonych cech zainteresowania, a szybkość obrazowania może nie być odpowiednia. Wiele aspektów protokołu można dostosować i zmodyfikować do różnych potrzeb, w zależności od konkretnych zainteresowań i celów. Po pierwsze, stosowanie zastrzyków RNA sprawia, że proces etykietowania jest bardzo elastyczny. Konstrukty fuzji białek fluorescencyjnych mogą być używane do oznaczania interesujących struktur subkomórkowych, a ilość wstrzykniętego RNA może być zmieniana w celu optymalizacji znakowania. Opierając się na naszej pracy z fotokonwertowalnym fluoroforem Kaede, wstrzyknięcia RNA wydają się wspierać wybuch translacji, który kończy się o 12 hpf11,13. Wysoki poziom ekspresji białek fluorescencyjnych po wstrzyknięciu RNA może zwalczać fotowybielanie, ale takie podejście nie wspiera trwałej ekspresji interesującej nas etykiety fluorescencyjnej. Jeśli konieczna jest trwała ekspresja, na przykład podczas obrazowania zarodków w późniejszych stadiach, linie transgeniczne są opcją, a skonstruowanie nowych linii u danio pręgowanego jest proste24.
Następnie protokół może zostać dostosowany do późniejszych etapów rozwoju. Ponieważ pigment może utrudniać obrazowanie na późniejszych etapach, zarodki mogą być leczone fenylotiomocznikiem (PTU) w celu zahamowania tworzenia pigmentu lub można zastosować mutanty genetyczne do syntezy pigmentu. Aby zapobiec drganiu zarodków, do roztworów agarozy i pożywek dla zarodków można dodać trikainę, a w razie potrzeby można dostosować zawartość procentową agarozy. W miarę wzrostu oka może być konieczna zmiana orientacji mocowania; W tym przypadku montujemy zarodki grzbietowo, ale w późniejszych stadiach bardziej sensowne może być montowanie boczne lub przednie, w zależności od interesującej nas struktury. Ponieważ różne procesy zachodzą w różnych skalach przestrzennych i czasowych, można również zoptymalizować krok Z i krok czasowy akwizycji obrazu. Cechy te można tak naprawdę określić tylko empirycznie dla potrzeb każdego laboratorium.
Wreszcie, protokół ten został opracowany specjalnie dla laserowego skaningowego mikroskopu konfokalnego, z zarodkami osadzonymi w stosunkowo wysokim procencie agarozy na wczesnym etapie rozwoju oka. Jeśli obrazowanie odbywa się w różnym czasie lub w różnych miejscach podczas rozwoju oka, protokół ten będzie musiał zostać dostosowany do interesującego go procesu. Obecnie możliwych jest wiele różnych podejść do obrazowania, a kolejne są opracowywane przez inżynierów optycznych. Każde podejście wiąże się z innym zestawem wyzwań, od różnych sposobów osadzania i montowania zarodków do obrazowania, po różne rozmiary i formaty plików. We wstępie przedstawiamy kwestie, które mają pokierować procesem optymalizacji, w którym maksymalna rozdzielczość przestrzenna i czasowa jest równoważona z fotowybielaniem, fototoksycznością i ogromnymi rozmiarami plików. Mamy nadzieję, że te ogólne zasady, wraz z praktycznymi informacjami opisanymi powyżej, pomogą innym w ustaleniu metod obrazowania poklatkowego w celu zbadania wielu otwartych pytań dotyczących rozwoju wzroku.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Jesteśmy wdzięczni byłym i obecnym członkom Kwan Lab za pracę nad podejściem timelapse i dyskusje na temat tego protokołu. Prace te były wspierane przez NIH (EY025378 R01 i EY025780 R01 do KMK; F31 EY030758 do SL; i T32 GM007464 do MAC).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Delta TPG Dish 0,17 mm przezroczysty | Bioptechs | 0420041500C | dno szkła osłonowego zapewniające kompatybilność optyczną |
| Jednorazowe pipety Pasteura | VWR | 14672-608 | długość całkowita 14,6 cm (53/4") |
| Dumont #5, #55 lub #5SF Kleszcze | Fine Science Tools | 11254-20 | Do stylu #5: prosta końcówka, końcówka 0,05 x 0,01 mm, inox, długość 11 cm |
| Flaming/Brown Ściągacz | do mikropipetSutter | P-97 | |
| Immersol W | Carl Zeiss Microscopy | 4449690000000 | płyn zanurzeniowy do celów z emisją wody, bezhalogenowy, niskofluorescencyjny |
| Adaptacyjne narzędzia naukowe | mikroiniekcji | TU-1 | Sześć ramp, jedna pod kątem 90 stopni i jedna pod kątem 45 stopni. |
| Końcówki do mikroładowarek | Eppendorf | 930001007 | Microloader, końcówka do napełniania mikrokapilar szklanych, 0,5 – 20 µ L |
| mMessage mMachine SP6 Zestaw do transkrypcji | Invitrogen | AM1340 | zawiera mieszankę enzymów SP6, 10-krotny bufor reakcyjny, 2XNTP i frasl; Roztwór CAP, roztwór GTP, pTRI-Xef, TURBO DNaza, roztwór zatrzymujący octan amonu, roztwór wytrącający chlorek litu i bufor do ładowania żelu i wszystkie są przechowywane w – 20°C. Woda wolna od nukleaz może być przechowywana w dowolnej temperaturze. |
| Mikroskop stereoskopowy Nikon SMZ645 | Nikon | SMZ645 | służy do wstrzykiwania zarodków (patrz rys. 2B) |
| Enzym NotI-HF | NEB | R3189S | jest dostarczany z barwnikiem ładującym żel, fioletowy (6X) |
| NuSieve GTG Agarose | Lonza | 50081 | drobna rozdzielczość, niskotopliwa agaroza |
| Obiektyw LD "C-Apochromat" 40x/1,1 W Korr M27 | Carl Zeiss Microscopy | 421867-9970-000 | |
| Mikroskop stereoskopowy Olympus SZX16 | Olympus | SZX2-ZB16 | służy do badań przesiewowych, osadzania zarodków (patrz rys. 3A) |
| Roztwór czerwieni fenolowej | Sigma-Aldrich | P0290 | 0,5% w DPBS, sterylnie filtrowany, testowany pod kątem endotoksyn, testowany na kulturach komórkowych |
| Mikroiniektor Pico-litr | Aparat Harvard | PLI-100 | Femtolitr do mikrolitrów zastrzyki; cyfrowe odczyty liczby, czasu i ciśnienia wtrysku; zawiera 5 ciśnień, w tym wstrzykiwanie, równoważenie, czyszczenie, napełnianie i przytrzymywanie |
| Pipeta z pompką do pipet | SP Bel-Art | F37898 | pasuje do jednorazowej pipety Pasteura, zawiera pokrętło z boku do zasysania lub dozowania oraz tłok do szybkiego opróżniania |
| Wysokiej jakości cienkościenne kapilary ze szkła borokrzemianowego | Warner Instruments | G100T-4 | 1,0 x 0,78 mm |
| Zestaw do oczyszczania QIAquick PCR | Qiagen | 28106 | zawiera QIAquick Spin Columns,, probówki zbiorcze (2 ml) |
| H2O | Invitrogen | AM9906 | bez RNaz, klasa biologii molekularnej, bez RNaz RNeasy |
| Mini Kit | Qiagen | 74104 | zawiera RNeasy Mini Spin Columns, probówki zbiorcze (1,5 ml i 2 ml), odczynniki i wolne od RNaz |
| Przystawka do stolika Z PIEZO WSB 500 | Carl Zeiss Microscopy | 432339-9000-000 | |
| Wkładka stolikowa Z PIEZO WSB Uniwersalna | mikroskopia Carl Zeiss | 432339-9030-000 | |
| Zeiss LSM 880 z Airyscan | Mikroskop Carl Zeiss Mikroskop | odwrócony Axio Observer | |
| Oprogramowanie Zen Black 2.3 SP1 | Zeiss Microscopy | N/A | Zeiss Efficient Navigation (ZEN) steruje wszystkimi systemami mikroskopów świetlnych firmy Zeiss |
Bibliografia
- Adler, R., Canto-Soler, M. V. Molecular mechanisms of optic vesicle development: complexities, ambiguities and controversies. Developmental Biology. 305 (1), 1-13 (2007).
- Chow, R. L., Lang, R. A. Early eye development in vertebrates. Annual Review of Cell and Developmental Biology. 17, 255-296 (2001).
- Fuhrmann, S. Eye morphogenesis and patterning of the optic vesicle. Current Topics in Developmental Biology. 93, 61-84 (2010).
- Martinez-Morales, J. R., Wittbrodt, J. Shaping the vertebrate eye. Current Opinion in Genetics and Development. 19 (5), 511-517 (2009).
- Yang, X. J. Roles of cell-extrinsic growth factors in vertebrate eye pattern formation and retinogenesis. Seminars in Cell & Developmental Biology. 15 (1), 91-103 (2004).
- Bogdanovic, O., et al. Numb/Numbl-Opo antagonism controls retinal epithelium morphogenesis by regulating integrin endocytosis. Developmental Cell. 23 (4), 782-795 (2012).
- Bryan, C. D., Casey, M. A., Pfeiffer, R. L., Jones, B. W., Kwan, K. M. Optic cup morphogenesis requires neural crest-mediated basement membrane assembly. Development. 147 (4), (2020).
- Bryan, C. D., Chien, C. B., Kwan, K. M. Loss of laminin alpha 1 results in multiple structural defects and divergent effects on adhesion during vertebrate optic cup morphogenesis. Developmental Biology. 416 (2), 324-337 (2016).
- Cavodeassi, F., Ivanovitch, K., Wilson, S. W. Eph/Ephrin signalling maintains eye field segregation from adjacent neural plate territories during forebrain morphogenesis. Development. 140 (20), 4193-4202 (2013).
- England, S. J., Blanchard, G. B., Mahadevan, L., Adams, R. J. A dynamic fate map of the forebrain shows how vertebrate eyes form and explains two causes of cyclopia. Development. 133 (23), 4613-4617 (2006).
- Gordon, H. B., et al. Hedgehog signaling regulates cell motility and optic fissure and stalk formation during vertebrate eye morphogenesis. Development. 145 (22), (2018).
- Ivanovitch, K., Cavodeassi, F., Wilson, S. W. Precocious acquisition of neuroepithelial character in the eye field underlies the onset of eye morphogenesis. Developmental Cell. 27 (3), 293-305 (2013).
- Kwan, K. M., et al. A complex choreography of cell movements shapes the vertebrate eye. Development. 139 (2), 359-372 (2012).
- Martinez-Morales, J. R., et al. Ojoplano-mediated basal constriction is essential for optic cup morphogenesis. Development. 136 (13), 2165-2175 (2009).
- Miesfeld, J. B., et al. Yap and Taz regulate retinal pigment epithelial cell fate. Development. 142 (17), 3021-3032 (2015).
- Nicolas-Perez, M., et al. Analysis of cellular behavior and cytoskeletal dynamics reveal a constriction mechanism driving optic cup morphogenesis. eLife. 5, (2016).
- Picker, A., et al. Dynamic coupling of pattern formation and morphogenesis in the developing vertebrate retina. PLoS Biology. 7 (10), e1000214(2009).
- Rembold, M., Loosli, F., Adams, R. J., Wittbrodt, J. Individual cell migration serves as the driving force for optic vesicle evagination. Science. 313 (5790), 1130-1134 (2006).
- Sidhaye, J., Norden, C. Concerted action of neuroepithelial basal shrinkage and active epithelial migration ensures efficient optic cup morphogenesis. eLife. 6, (2017).
- Driever, W., et al. A genetic screen for mutations affecting embryogenesis in zebrafish. Development. 123, 37-46 (1996).
- Haffter, P., et al. The identification of genes with unique and essential functions in the development of the zebrafish, Danio rerio. Development. 123, 1-36 (1996).
- Nusslein-Volhard, C. The zebrafish issue of Development. Development. 139 (22), 4099-4103 (2012).
- Hoshijima, K., et al. Highly efficient CRISPR-Cas9-based methods for generating deletion mutations and F0 embryos that lack gene function in zebrafish. Developmental Cell. 51 (5), 645-657 (2019).
- Kwan, K. M., et al. The Tol2kit: a multisite gateway-based construction kit for Tol2 transposon transgenesis constructs. Developmental Dynamics. 236 (11), 3088-3099 (2007).
- Almeida, A. D., et al. Spectrum of Fates: a new approach to the study of the developing zebrafish retina. Development. 141 (9), 1971-1980 (2014).
- Baye, L. M., Link, B. A. Interkinetic nuclear migration and the selection of neurogenic cell divisions during vertebrate retinogenesis. The Journal of Neuroscience. 27 (38), 10143-10152 (2007).
- Clark, B. S., et al. Loss of Llgl1 in retinal neuroepithelia reveals links between apical domain size, Notch activity and neurogenesis. Development. 139 (9), 1599-1610 (2012).
- Das, T., Payer, B., Cayouette, M., Harris, W. A. In vivo time-lapse imaging of cell divisions during neurogenesis in the developing zebrafish retina. Neuron. 37 (4), 597-609 (2003).
- Kay, J. N., et al. Transient requirement for ganglion cells during assembly of retinal synaptic layers. Development. 131 (6), 1331-1342 (2004).
- Norden, C., Young, S., Link, B. A., Harris, W. A. Actomyosin is the main driver of interkinetic nuclear migration in the retina. Cell. 138 (6), 1195-1208 (2009).
- Suzuki, S. C., et al. Cone photoreceptor types in zebrafish are generated by symmetric terminal divisions of dedicated precursors. Proceedings of the National Academy of Sciences of the United States of America. 110 (37), 15109-15114 (2013).
- Wan, Y., et al. The ciliary marginal zone of the zebrafish retina: clonal and time-lapse analysis of a continuously growing tissue. Development. 143 (7), 1099-1107 (2016).
- Yoshimatsu, T., et al. Presynaptic partner selection during retinal circuit reassembly varies with timing of neuronal regeneration in vivo. Nature Communications. 7, 10590(2016).
- Kimmel, C. B., Ballard, W. W., Kimmel, S. R., Ullmann, B., Schilling, T. F. Stages of embryonic development of the zebrafish. Developmental Dynamics. 203 (3), 253-310 (1995).
- Wan, Y., Otsuna, H., Chien, C. B., Hansen, C. An interactive visualization tool for multi-channel confocal microscopy data in neurobiology research. IEEE Transactions on Visualization and Computer Graphics. 15 (6), 1489-1496 (2009).
- Wan, Y., Otsuna, H., Chien, C. B., Hansen, C. FluoRender: an application of 2D image space methods for 3D and 4D confocal microscopy data visualization in neurobiology research. IEEE Pacific Visualization Symposium. , 201-208 (2012).
- Carney, K. R., Bryan, C. D., Gordon, H. B., Kwan, K. M. LongAxis: a MATLAB-based program for 3D quantitative analysis of epithelial cell shape and orientation. Developmental Biology. 458 (1), 1-11 (2020).
Przedruki i uprawnienia
