Te protokoły dostarczają metodologii używanej do oceny aktywności enzymatycznej poszczególnych członków rodziny białkowej metylotransferazy argininowej (PRMT) w komórkach. Opisano szczegółowe wytyczne dotyczące oceny aktywności PRMT z wykorzystaniem biomarkerów endogennych i egzogennych, przeciwciał rozpoznających metylo-argininę oraz związków narzędziowych inhibitorów.
Artykuł metodologiczny
Ilościowe metody badania aktywności metylotransferazy argininy 1-9 białek w komórkach
W tym artykule
Podsumowanie
Streszczenie
Metylotransferazy białkowe (PRMT) katalizują transfer grupy metylowej do reszt argininy białek substratowych. Rodzina PRMT składa się z dziewięciu członków, którzy mogą monometylować lub symetrycznie/asymetrycznie dimetylanować reszty argininy. Dostępnych jest kilka przeciwciał rozpoznających różne typy metylacji argininy różnych białek; dostarczając w ten sposób narzędzi do opracowywania testów biomarkerów aktywności PRMT. Testy oparte na przeciwciałach PRMT są trudne ze względu na nakładające się substraty i specyficzność przeciwciał opartych na motywach. Omówiono te zagadnienia oraz zestaw eksperymentalny do badania metylacji argininy wnoszonej przez poszczególne PRMT. Dzięki starannemu doborowi reprezentatywnych substratów, które są biomarkerami dla ośmiu z dziewięciu PRMT, zaprojektowano panel testów aktywności PRMT. W tym miejscu przedstawiono protokoły testów komórkowych ilościowo mierzących aktywność enzymatyczną poszczególnych członków rodziny PRMT w komórkach. Zaletą opisanych metod jest ich proste działanie w każdym laboratorium z możliwością hodowli komórkowej i fluorescencyjnego western blot. Specyficzność substratu i niezawodność wybranego przeciwciała zostały w pełni zwalidowane za pomocą podejść do knockdownu i nadekspresji. Oprócz szczegółowych wytycznych dotyczących oznaczania biomarkerów i przeciwciał przedstawiono również informacje na temat stosowania zbierania związków z narzędzi do wykrywania PRMT za pomocą inhibitora.
Wprowadzenie
Metylacja argininy jest ważną modyfikacją potranslacyjną, która reguluje interakcje białko-białko i białko-RNA, odgrywając tym samym ważną rolę w różnych procesach komórkowych, takich jak splicing pre-mRNA, uszkodzenie DNA, odpowiedź transkrypcyjna i transdukcja za pośrednictwem czynnika wzrostu1,2. Arginina jest metylowana przez białkowe metylotransferazy argininy (PRMT), w wyniku czego powstaje monometylo arginina (Rme1), asymetryczna dimetyloarginina (Rme2a) lub symetryczna dimetyloarginina (Rme2s)3. W zależności od typu metylacji, PRMT dzieli się na trzy grupy: Typ I (PRMT1, 2, 3, 4, 6 i 8), które katalizują dimetylację mono- i asymetryczną; typ II (PRMT5 i PRMT9), które katalizują dimetylację mono- i symetryczną; i Typ III (PRMT7), który może tylko monometylować argininę3.
Ze względu na rosnącą liczbę dostępnych na rynku przeciwciał specyficznych dla metylacji argininy, aktywność PRMT może być mierzona za pomocą western blot. Western blot oparty na fluorescencji jest techniką preferowaną w stosunku do detekcji chemiluminescencyjnej ze względu na większy zakres dynamiki i liniowość, wyższą czułość i możliwość multipleksowania4. Aby określić ilościowo poziomy metylacji białek, wymagana jest normalizacja sygnału metylacji do całkowitych poziomów białka. Wybierając przeciwciała dla białka całkowitego i metylowanego wyhodowanego u różnych gatunków gospodarzy (np. myszy i królika), można zastosować przeciwciała drugorzędowe znakowane różnymi fluoroforami i określić sygnał dla obu przeciwciał w tym samym paśmie próbki. Przeciwciała metylo-argininowe zostały opracowane w celu identyfikacji i scharakteryzowania monometylowanych, asymetrycznych lub symetrycznie dimetylowanych białek, w których metyloarginina występuje w określonym kontekście. Ponieważ większość motywów bogatych w glicynę i argininę metylanu PRMT w ich substratach5, wyniesiono kilka przeciwciał dla peptydów zawierających monometylowe lub asymetryczne, symetryczne powtórzenia dimetylo-argininy-glicyny, takie jak odpowiednio D5A12, ASYM24 lub ASYM25 i SYM11. Inne przeciwciała metylo-argininowe zostały wygenerowane przeciwko bibliotece peptydów zawierającej asymetryczną, symetryczną dimetylo- i monometyloargininę w powtarzalnym kontekście, ułatwiając wykrycie metylo-argininy w tych konkretnych kontekstach6. Rośnie również liczba przeciwciał, które rozpoznają specyficzny znacznik argininy na pojedynczym białku, co umożliwia selektywne wykrywanie metylacji, takich jak histon H4R3me2a lub BAF155-R1064me2a.
Istnieje kilka dostępnych na rynku inhibitorów PRMT, które mogą być używane jako narzędzia do testów komórkowych PRMT. Jednak, nie wszystkie z nich są dokładnie scharakteryzowane dla selektywności i efektów off-target, a niektóre powinny być stosowane z ostrożnością. Konsorcjum Structural Genomic Consortium, we współpracy z laboratoriami akademickimi i partnerami farmaceutycznymi, opracowało dobrze scharakteryzowane silne, selektywne i przepuszczalne dla komórek inhibitory PRMT (sondy chemiczne), które mogą być stosowane bez ograniczeń przez społeczność naukową. Informacje na temat tych inhibitorów można znaleźć na stronach https://www.thesgc.org/chemical-probes/epigenetics i https://www.chemicalprobes.org/. Sondy chemiczne to małocząsteczkowe inhibitory o IC in vitro 50 lub Kd < 100 nM, ponad 30-krotnej selektywności w stosunku do białek z tej samej rodziny i znaczącej aktywności komórkowej przy 1 μM. Dodatkowo, każda sonda chemiczna ma bliski analog chemiczny, który jest nieaktywny wobec zamierzonego celu7,8,9,10,11,12.
Celem tego protokołu jest pomiar aktywności komórkowej poszczególnych członków rodziny PRMT za pomocą metody fluorescencyjnej western blot. W tym miejscu przedstawiono szczegółowe informacje na temat zwalidowanych biomarkerów testowych, przeciwciał i silnych inhibitorów aktywnych komórek, a także cenne strategie skutecznego wdrożenia testu.
Protokół
1. Hodowla i posiewanie komórek
UWAGA: Hoduj komórki za pomocą zalecanej pożywki i rutynowo testuj pod kątem zanieczyszczenia mykoplazmą. Jako przykłady wybrano komórki HEK293T, MCF7 i C2C12, ponieważ te linie komórkowe zostały z powodzeniem wykorzystane w testach PRMT.
- Hodowla HEK293T, MCF7 i C2C12 w DMEM uzupełniona 10% płodową surowicą bydlęcą (FBS), penicyliną (100 U mL-1) i streptomycyną (100 μg mL−1) w 10-centymetrowych naczyniach poddanych działaniu hodowli tkankowej (TC).
- W przypadku testu PRMT8 hoduj indukowane przez PRMT1 komórki HEK293T knockdown w pożywce zawierającej doksycyklinę (2 μg/ml) przez 3 dni przed rozpoczęciem testu.
- Aby pokryć komórki, wyjmij i wyrzuć nośnik z płytki.
- Dodać 10 ml PBS (bez jonów Ca+2 i Mg+2) do przepłukania komórek i wyrzucić roztwór.
- Dodać 1 ml trypsyny-EDTA (0,25%), inkubować przez 1 minutę w temperaturze pokojowej (RT), a następnie wyrzucić roztwór. Inkubować, aż komórki staną się okrągłe i oderwać się od płytki. W razie potrzeby dotknij płytki, aby odłączyć komórki. W przypadku komórek trudnych do trypsynizacji, takich jak C2C12, inkubować płytkę przez 1-2 minuty w temperaturze 37 °C.
UWAGA: Unikaj ekspozycji komórek na roztwór trypsyny przez dłuższy czas (>10 min), ponieważ zmniejszy to żywotność komórek. - Dodaj 1 ml podgrzanej pożywki do płytki i delikatnie pipetuj komórki w górę i w dół, aby rozbić grudki komórek. Przenieś komórki do probówki o pojemności 15 ml i dodaj 3-5 ml pożywki.
- Aby zmierzyć liczbę komórek, zmieszaj 10 μl komórek z 10 μl błękitu trypanowego i przenieś 10 μl do hemocytometru lub użyj dowolnej innej metody liczenia komórek.
- Rozcieńczyć komórki do zalecanej gęstości komórek i umieścić 500 μl / basenik w 24-dołkowych płytkach TC (Tabela 1). W przypadku testów endogennych (PRMT1, PRMT4, PRMT5, PRMT7 i PRMT9) przejdź do kroku 3.1.
2. Transfekcja komórkowa
- W przypadku testów egzogennych (PRMT3, PRMT6, PRMT8) transfekować HEK293T komórki zalecaną ilością DNA (Tabela 2). HEK293T ogniwa są łatwe do transfekcji, więc można użyć dowolnego odczynnika do transfekcji, zgodnie z instrukcją producenta.
3. Leczenie złożone
UWAGA: Nie przekraczaj 0,1% końcowego stężenia dimetylosulfotlenku (DMSO) w pożywkach hodowlanych. Utrzymuj to samo stężenie DMSO w każdym dołku. Selektywne inhibitory PRMT (sondy chemiczne) i ich blisko spokrewnione nieaktywne analogi można znaleźć w tabeli 3.
- W przypadku testów endogennych (PRMT1, PRMT4, PRMT5, PRMT7 i PRMT9) usuń pożywkę z komórek i zastąp 500 μl pożywki ze związkiem lub samym DMSO (kontrola).
UWAGA: Zwykle potrzeba 2 dni, aby zaobserwować ponad 80% spadek poziomu metylacji R. - W przypadku testów egzogennych (PRMT3, PRMT6, PRMT8) usunąć pożywkę 4 godziny po transfekcji, dodać 500 μl pożywki ze związkiem lub samym DMSO (kontrola) i inkubować przez 20-24 godziny.
4. Przygotowanie lizatu komórkowego
- Usuń wszystkie pożywki ze studzienek, przemyj 100 μl PBS w celu usunięcia pozostałości pożywki i dodaj 60 μl buforu do lizy (20 mM Tris-HCl pH 8, 150 mM NaCl, 1 mM kwas etylenodiaminotetraoctowy (EDTA), 10 mM MgCl2, 0,5% Triton X-100, 12,5 U mL−1 benzonazy, kompletny koktajl inhibitorów proteazy wolny od EDTA) do każdej studzienki.
- Inkubować przez mniej niż 1 minutę w temperaturze pokojowej, kołysząc płytką w celu rozprowadzenia buforu do lizy na komórkach. Następnie dodać 3 μl 20% w/v dodecylosiarczanu sodu (SDS) do końcowego stężenia 1% i wymieszać, delikatnie wstrząsając. Przenieś lizat do probówek do mikrowirówek i trzymaj go na lodzie.
UWAGA: Przed użyciem dodaj świeżo benzonazę i koktajl inhibitorów białka. Dodatek benzonazy szybko hydrolizuje kwasy nukleinowe, co zmniejsza lepkość lizatu komórkowego.
- Inkubować przez mniej niż 1 minutę w temperaturze pokojowej, kołysząc płytką w celu rozprowadzenia buforu do lizy na komórkach. Następnie dodać 3 μl 20% w/v dodecylosiarczanu sodu (SDS) do końcowego stężenia 1% i wymieszać, delikatnie wstrząsając. Przenieś lizat do probówek do mikrowirówek i trzymaj go na lodzie.
- Oznaczyć stężenie białka w próbkach za pomocą zestawu do oznaczania białek BCA lub użyć innej metody, która toleruje 1% SDS w roztworze.
- Dodać 2 μl lizatu i wzorców białkowych (0, 1, 2, 4 i 8 μg/ml BSA w buforze do lizy) do studzienek 96-dołkowej przezroczystej płytki.
- Wymieszać odczynnik A z odczynnikiem B w stosunku 50:1 i dodać 200 μl do dołka. Inkubować przez 20 minut w temperaturze 37 °C i odczytać stopień absorpcji.
- Dostosuj stężenie białka za pomocą buforu do lizy, aby było równe we wszystkich próbkach.
- Dodać 20 μL 4x buforu ładującego do 60 μL lizatu komórkowego i podgrzewać w temperaturze 95 °C przez 5 min. Po denaturacji cieplnej lizaty mogą być przechowywane w temperaturze -20 °C.
5. Analiza Western blot
- Załaduj 5-20 μg całkowitego lizatu komórkowego do analizy białek histonowych i 20-100 μg dla innych białek do 4-12% żelu białkowego Bis-Tris.
- Uruchom żel w buforze MOPS SDS (50 mM MOPS, 50 mM Tris Base, 0,1% SDS w/v, 1 mM EDTA, pH 7,7) przez około 2 godziny przy 100 V lub do momentu, gdy czoło barwnika dotrze do dna żelu.
- W przypadku wykonywania transferu na mokro zmontuj kanapkę transferową w lodowatym buforze transferowym Tris-Glycine (25 mM Tris, 192 mM glicyny, 20% v/v metanolu i 0,05% w/v SDS).
- Umieść gąbki, bibułę filtracyjną, membranę PVDF i żel zgodnie z instrukcjami producenta. Aktywuj membranę PVDF poprzez nasączenie w metanolu i zrównoważenie żelu w buforze transferowym przez 30 s przed montażem.
UWAGA: Używaj zalecanej membrany Western Blotting PVDF, ponieważ ma ona niską autofluorescencję i nadaje się do białek o niskiej masie cząsteczkowej, takich jak histony (Tabela materiałów).
- Umieść gąbki, bibułę filtracyjną, membranę PVDF i żel zgodnie z instrukcjami producenta. Aktywuj membranę PVDF poprzez nasączenie w metanolu i zrównoważenie żelu w buforze transferowym przez 30 s przed montażem.
- Przenieś białka z żelu do membrany PVDF w buforze transferowym Tris-Glycine pod napięciem 70 V przez 1,5 godziny na lodzie.
- Zablokuj membranę na 30 minut w buforze blokującym (5% m/v mleka w soli fizjologicznej buforowanej fosforanami, PBS). Przepłukać buforem do przemywania (PBST: 0,1% v/v Tween-20 w PBS) i inkubować z pierwszorzędowymi przeciwciałami w roztworze albuminy surowicy bydlęcej (BSA) (5% BSA w PBST) przez noc w temperaturze 4 °C (Tabela 3).
UWAGA: W celu dłuższego przechowywania przefiltruj roztwór BSA, dodaj 0,02% w/v azydku sodu i utrzymuj w temperaturze 4 °C. - Umyć membranę 3 x 5 min za pomocą PBST. Następnie inkubować z kozimi przeciwciałami przeciwko królikom (IR800) i osłom (IR680) w zalecanym buforze blokującym (tabela materiałów, tabela 3) przez 30 minut w temperaturze pokojowej i przemywać 3 x 5 minut PBST.
- Odczyt sygnału na fluorescencyjnym obrazie western blot przy długości fali 800 i 700 nm. Najlepiej używać przyrządu, który umożliwia wyraźne obrazowanie silnych i słabych pasm na jednym obrazie z wysoką czułością i zakresem dynamiki, wysokim stosunkiem sygnału do szumu, ostrzeżeniem o osiągnięciu nasycenia obrazu, a także multipleksowaniem dwóch barw fluorescencyjnych w tym samym paśmie próbki.
- Określ intensywności pasma do analizy western blot za pomocą odpowiedniego oprogramowania do fluorescencyjnego obrazowania western.
Wyniki
Poniżej przedstawiono przykłady wyników western blot dla testów komórkowych poszczególnych PRMT. Szczegóły testów podsumowano również w Tabeli 4.
Analiza aktywności PRMT1
PRMT1 jest głównym enzymem odpowiedzialnym za asymetryczną dimetylację argininy 3 w histonie 4 (H4R3me2a) w komórkach13. W wyniku utraty aktywności PRMT1 poziomy globalne Rme1 oraz Rme2s znacznie wzrastają13. Jak pokazano na Rysunku 1A i 1B, do monitorowania globalnych zmian w poziomach Rme1, Rme2a i Rme2s, a także H4R3me2a, można wykorzystać kilka przeciwciał. Znaczący spadek globalnych poziomów Rme2a i H4R3me2a oraz wzrost poziomów Rme1 i Rme2s można zaobserwować po 3 dniach wyciszenia genu PRMT1 (Rysunek 1A, B). Linie komórkowe różnią się bazowym sygnałem H4R3me2a, dlatego w celu ułatwienia monitorowania utraty aktywności PRMT1 można zastosować linie komórkowe takie jak MCF7, charakteryzujące się wysokim bazowym poziomem metylacji (Rysunek 1C). Optymalny czas obserwacji efektu inhibicji PRMT1, np. po zastosowaniu inhibitora PRMT typu I MS0238, wynosi 2 dni (Rysunek 1D, 1E). Dłuższa inkubacja z inhibitorem prowadzi do zmniejszenia żywotności i wzrostu komórek.
Analiza PRMT3
W przypadku komórkowego badania PRMT3 nie zidentyfikowano selektywnych białek biomarkerów, których zmiany metylacji można by wykryć za pomocą western blot po wyciszeniu lub nadekspresji PRMT3. Wykazano, że PRMT3 asymetrycznie dimetyluje H4R3 in vitro14, jednak znacznik ten jest osadzany głównie przez PRMT1, dlatego zaprojektowano analizę egzogenną z nadekspresją PRMT3. Zgodnie z wynikami badań in vitro, nadekspresja typu dzikiego PRMT3, a nie jego mutantu katalitycznego (E338Q), doprowadziła do wzrostu poziomów H4R3me2a (Rysunek 2A). Wykorzystano komórki HEK293T, ponieważ charakteryzują się one niskim podstawowym poziomem metylacji tego znacznika (Rysunek 1C). Analizę dodatkowo zwalidowano przy użyciu selektywnego inhibitora PRMT3, SGC7077, który zahamował zależną od PRMT3 asymetryczną metylację H4R3 (Rysunek 2B).
Analiza PRMT4
PRMT4 asymetrycznie dimetyluje BAF155 w argininie 106415. Ponieważ przeciwciało wykrywające BAF165-R1064me2a jest dostępne w handlu, aktywność PRMT4 w komórkach można monitorować za pomocą westernu, wykrywając zmiany w poziomach znacznika R1064me2a. Utrata białka PRMT4 lub zahamowanie aktywności katalitycznej za pomocą selektywnego inhibitora PRMT4, TP-06410, prowadzi do spadku poziomów BAF165-R1064me2a (Rycina 3). Dwudniowa inkubacja z inhibitorem jest zazwyczaj wystarczająca do usunięcia większości sygnału metylacji.
Analiza PRMT5
PRMT5 odpowiada za większość symetrycznej dimetylacji argininy w białkach. Wcześniej wykazano, że różne białka kompleksu SMN, w tym SmBB', są substratami PRMT516. Aktywność PRMT5 można monitorować, obserwując zmiany w globalnych poziomach symetrycznej dimetylacji argininy lub symetryczną dimetylację białek SmBB'. Wyciszenie genu PRMT5, ale nie PRMT1, 3, 4, 6, oraz 7, prowadzi do spadku globalnych poziomów Rme2s (Rycina 4A). W większości linii komórkowych traktowanie komórek selektywnymi inhibitorami PRMT5 LLY-28311 i GSK591 przez 2-3 dni spowodowało zniesienie większości sygnału SmBB'Rme2s (Rycina 4B). Większość komórek jest wrażliwa na inhibicję PRMT5, co przy przedłużonej ekspozycji na inhibitor skutkuje zmniejszeniem proliferacji komórek oraz ich śmiercią.
Analiza PRMT6
Doniesiono, że PRMT6 jest głównym enzymem odpowiedzialnym za asymetryczną dimetylację argininy 2 w histonie H3 (H3R2me2a) w komórkach17. W komórkach HEK293T wyciszenie genu PRMT6 przez 3 dni nie było wystarczające, aby zaobserwować istotny spadek poziomów H3R2me2a. Jednak nadekspresja PRMT6 typu dzikiego, a nie jego mutantu katalitycznego (V86K/D88A), zwiększa poziomy H3R2me2a, a także H3R8me2a i H4R3me2a (Rycina 5A). Istnieje kilka inhibitorów hamujących aktywność PRMT6 o różnej sile i selektywności: selektywny allosteryczny inhibitor PRMT6 SGC687018, inhibitor PRMT typu I MS0238 oraz inhibitor PRMT4/6 MS0499. Wszystkie one hamowały zależną od PRMT6 asymetryczną dimetylację H3R2 (Rycina 5B), a także H4R3 i H3R8 (dane nie pokazano).
Analiza PRMT7
PRMT7 monometyluje argininę 469 zarówno w konstytutywnej, jak i indukowalnej formie HSP70 (odpowiednio HSPA8 oraz HSPA1/6)12. Chociaż nie istnieją komercyjnie dostępne przeciwciała wykrywające poziomy HSP70-R469me1, znacznik ten można wykryć za pomocą przeciwciał pan-monometylowych. Utrata białka PRMT7 lub zahamowanie aktywności katalitycznej za pomocą selektywnego inhibitora PRMT7, SGC302712, prowadzi do obniżenia poziomów HSP70-R469me1 (Rysunek 6A, B). SGC3027 jest przenikającym do komórek prolekiem, który w komórkach jest przekształcany przez reduktazy w selektywny inhibitor PRMT7 SGC8158, w związku z czym aktywność komórkowa może się różnić w zależności od linii komórkowej. Kilka linii komórkowych nowotworowych wykazuje wysoką ekspresję indukowalnych izoform HSP70, a metylację może być trudno wykryć ze względu na nakładający się niespecyficzny prążek pochodzenia jądrowego (Rysunek 6C). Dlatego w przypadku komórkowej analizy PRMT7 zaleca się stosowanie linii komórkowych wykazujących głównie ekspresję HSPA8, takich jak C2C12, lub – ponieważ HSP70 lokalizuje się głównie w cytoplazmie – oznaczenie poziomów HSP70-R469me1 we frakcji cytoplazmatycznej preferowanych linii komórkowych.
Analiza PRMT8
PRMT8 jest jedyną białkową argininową metylotransferazą (PRMT) o tkankowo ograniczonym wzorcu ekspresji – wykazuje ona wysoką ekspresję głównie w mózgu19. Wykazuje ona 80% podobieństwa sekwencji i podobne preferencje substratowe jak PRMT119. Różni się ona od PRMT1 przede wszystkim na N-końcu, gdzie mirystoilacja prowadzi do asocjacji PRMT8 z błoną plazmatyczną20. Doniesiono, że PRMT8 wraz z PRMT1 metyluje białko wiążące RNA EWS21. Ponieważ aktywność PRMT8 jest niska w liniach komórkowych nieneuronalnych, a EWS może być również metylowane przez PRMT1, opracowano analizę, w której PRMT8 jest współekspresyjne wraz z EWS w komórkach z wyciszeniem genu PRMT1. Ponieważ PRMT1 jest genem niezbędnym do życia i jego długotrwały brak prowadzi do śmierci komórek, wykorzystano system indukowalny, w którym PRMT1 jest wyciszane przez 3 dni przed użyciem w analizie PRMT8 (Rysunek 7A). Współekspresja PRMT8 typu dzikiego, ale nie mutanta nieaktywnego katalitycznie (E185Q), wraz z EWS doprowadziła do zwiększenia poziomu asymetrycznej dimetylacji EWS (Rysunek 7B). Przetestowano kilka przeciwciał przeciwko asymetrycznej dimetylargininie i metylację wykryto jedynie za pomocą przeciwciała Asym25. Analizę dodatkowo zwalidowano za pomocą selektywnej sondy chemicznej dla PRMT typu I, MS0238, która zmniejszyła zależną od PRMT8 asymetryczną dimetylację egzogennego EWS (Rysunek 7B). Chociaż MS023 jest bardzo skutecznym inhibitorem PRMT8 w analizach in vitro, w komórkach wymagane są wysokie stężenia MS023, aby zaobserwować zahamowanie metylacji21.
Analiza PRMT9
Wykazano, że PRMT9 symetrycznie dimetyluje SAP145 w argininie 50822. Niestety, nie ma dostępnych komercyjnie przeciwciał rozpoznających tę modyfikację. Do analizy PRMT9 wykorzystano przeciwciała przekazane przez dr. Yanzhong Yang (Beckman Research Institute of City of Hope). W przypadku nadekspresji, PRMT9 metyluje SAP145 typu dzikiego, ale nie mutant R508K (Rysunek 8A). Analizę zaprojektowano w celu monitorowania poziomów endogennego SAP145-R508me2s i zwalidowano za pomocą Związku X, prototypowego inhibitora PRMT9 (prace w toku, nieopublikowane), który silnie hamuje PRMT9 in vitro z nanomolarną aktywnością. Związek X obniżył poziomy SAP145-R508me2s w sposób zależny od dawki (Rysunek 8B).
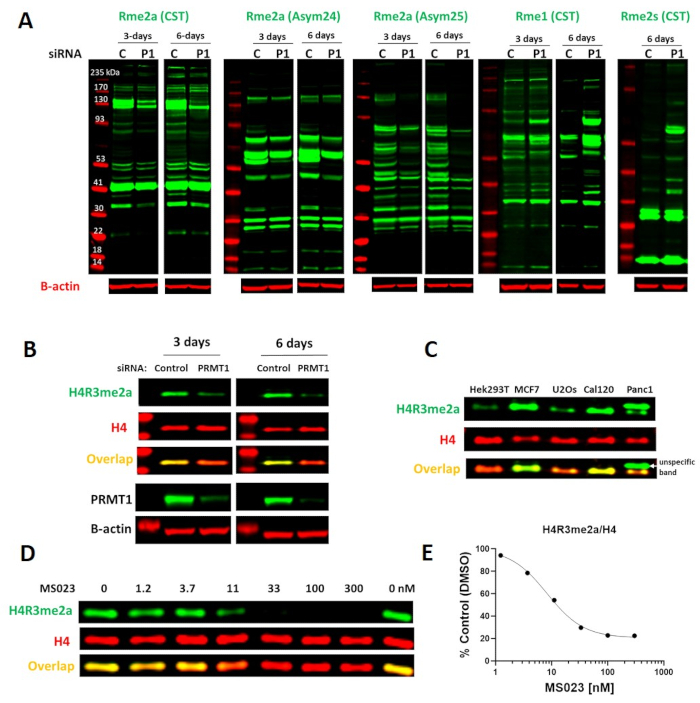
Rysunek 1. Analiza komórkowa PRMT1. (A) Wyciszenie genu PRMT1 skutkuje spadkiem globalnej asymetrycznej dimetylacji argininy (Rme2a) oraz wzrostem poziomów symetrycznej dimetylacji argininy (Rme2s) i monometylacji (Rme1). Wydajność wyciszenia PRMT1 przedstawiono na panelu B. (B) Wyciszenie PRMT1 zmniejsza asymetryczną dimetylację histony H4R3 (H4R3me2a). (C) Basalne poziomy H4R3me2a różnią się w zależności od linii komórkowej. (D) Inhibitor PRMT typu I, MS023, zmniejsza poziomy H4R3me2a w sposób zależny od dawki. Komórki MCF7 były traktowane MS023 przez 2 dni. (E) Wykres przedstawia nieliniowe dopasowanie intensywności sygnału H4R3me2a znormalizowane do całkowitej histony H4. IC50 MS023 = 8.3 nM (n=1). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
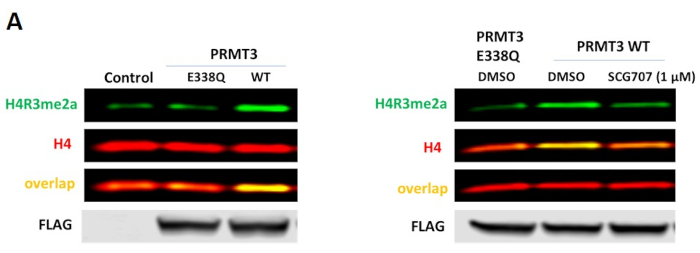
Rysunek 2. Analiza komórkowa PRMT3. (A) Nadmierna ekspresja typu dzikiego (WT), ale nie katalitycznego mutanta E338Q PRMT3, zwiększa poziom H4R3me2a w komórkach HEK293T. Komórki były transfektowane PRMT3 z tagiem FLAG przez 24 h. (B) Selektywny inhibitor PRMT3, SGC707, zmniejsza zależną od ektopowego PRMT3 asymetryczną demetylację H4R3 Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
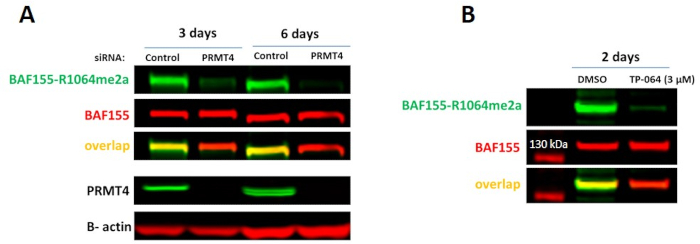
Rysunek 3. Analiza komórkowa PRMT4. (A) Wyciszenie PRMT4 skutkuje zmniejszeniem asymetrycznego dimetylowania argininy w BAF155-R1064 (komórki HEK293T). (B) Selektywny inhibitor PRMT4, TP-064, obniża poziomy BAF155-R1064Rme2a. Komórki HEK293T były traktowane związkiem przez 2 dni. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
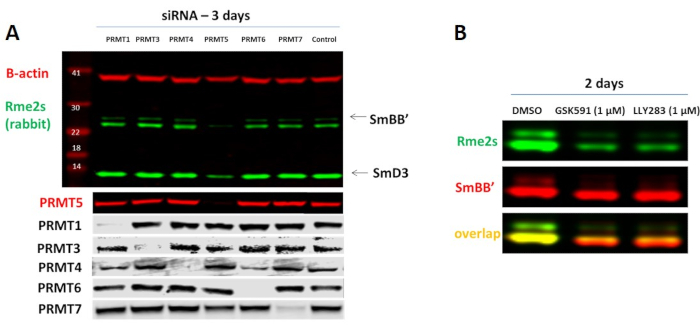
Rysunek 4. Analiza komórkowa PRMT5. (A) Wyciszenie PRMT5 prowadzi do spadku globalnych poziomów symetrycznej dimetylacji argininy (komórki MCF7). (B) Selektywne inhibitory PRMT5, GSK591 i LLY-283, zmniejszają symetryczną dimetylację argininy białka SmBB' (kolor zielony), podczas gdy całkowite poziomy SmBB' pozostają bez zmian (kolor czerwony). Komórki MCF7 były traktowane związkami przez 2 dni. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
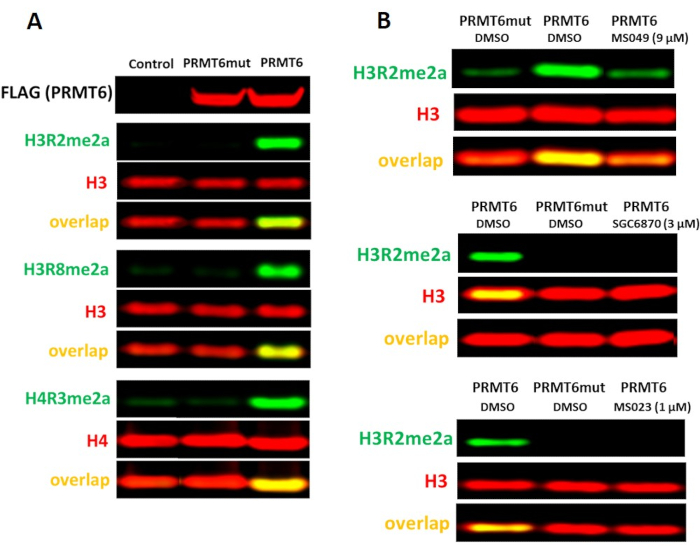
Rysunek 5. Analiza komórkowa PRMT6. (A) Nadprodukcja typu dzikiego (WT), ale nie mutanta katalitycznego V86K/D88A PRMT6, zwiększa poziomy H4R3me2a, H3R2me2a i H3R8me2a w komórkach HEK293T. Komórki transfekowano PRMT6 z tagiem FLAG przez 24 h. (B>) Selektywny inhibitor PRMT6 (SGC6870), inhibitor PRMT typu I (MS023) oraz inhibitor PRMT4/6 (MS049) obniżają zależne od PRMT6 poziomy H3R2me2a. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 6. Analiza komórkowa PRMT7. (A) Nokaut PRMT7 prowadzi do zmniejszenia monometylowania HSP70-R469 (komórki HCT116). (B) Selektywne inhibitory PRMT7, SGC3027, zmniejszają monometylowanie HSP70-R469 w komórkach C2C12. Komórki były traktowane związkiem przez 2 dni. (C) Detekcja metylowania HSP70-R469 indukowalnego HSP70 (HSPA1/6) za pomocą przeciwciał pan-monometyloargininowych (Rme1) może być trudna ze względu na nakładający się niespecyficzny prążek pochodzenia jądrowego. Zaleca się pomiar poziomów metylowania HSP70 we frakcji cytoplazmatycznej. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 7Analiza komórkowa PRMT8. (A) Metylację białka EWS przez PRMT8 można wykryć, gdy PRMT1 aktywność jest hamowana przez knockdown. Komórki HEK293T poddano transdukcji indukowalnym PRMT1 wektor knockdown. Po 3 dniach traktowania doksycykliną poziomy PRMT1 uległy drastycznemu obniżeniu. (B) Kiedy PRMT1 po wyciszeniu ekspresji, egzogenne EWS jest asymetrycznie dimetylowane przez nadekspresowane PRMT8 typu dzikiego, ale nie przez mutant katalityczny (E185Q) PRMT8. Metylacja jest zmniejszana przez wysoką koncentrację inhibitora PRMT typu I (MS023). HEK293T PRMT1Komórki KD poddano kotransfekcji dzikim typem PRMT8 z tagiem FLAG lub mutantem katalitycznym z tagiem FLAG oraz EWS z tagiem GFP, a następnie inkubowano z MS023 przez 20 h. Aby wyświetlić większą wersję tej figury, kliknij tutaj.
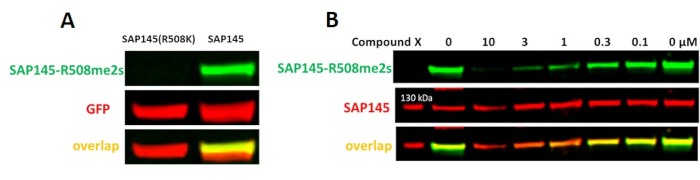
Rycina 8. Analiza komórkowa PRMT9. (A) Typ dziki, ale nie mutant R508K SAP145, ulega metylacji przez PRMT9. Komórki HEK293T zostały transfektowane SAP145 z tagiem GFP przez 1 dzień. (B) Prototypowy inhibitor PRMT9 (Związek X) zmniejsza zależną od PRMT9 symetryczną dimetylację R508 białka SAP145 w sposób zależny od dawki. Komórki HEK293T były traktowane związkiem przez 2 dni. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| PRMT | Komórki | Gęstość na ml |
| PRMT1 | MCF7 | 1 x 10⁵ |
| PRMT3 | HEK293T | 2 x 10⁵ |
| PRMT4 | HEK293T | 1 x 10⁵ |
| PRMT5 | MCF7 | 1 x 10⁵ |
| PRMT6 | HEK293T | 2 x 10⁵ |
| PRMT7 | C2C12 | 1 x 10⁵ |
| PRMT8 | HEK293T (KD PRMT1)* | 2 x 10⁵ |
| PRMT9 | HEK293T | 2 x 10⁵ |
| poddać komórki działaniu doksycykliny (2 µg/mL) 3 dni przed wysiewaniem do analizy PRMT8 | ||
Tabela 1. Typy i gęstości komórek zalecane dla analiz PRMT.
| PRMT | µg DNA/płyta 24-dołkowa | Addgene nr | Uwagi dodatkowe |
| PRMT3 | 0,5 FLAG-PRMT3 | 164695 | |
| lub 0,5 FLAG-PRMT3 (E338Q) | 164696 | ||
| PRMT6 | 0,5 FLAG-PRMT6 | 164697 | |
| lub 0,5 FLAG-PRMT6(V86K/D88A) | 164698 | ||
| PRMT8 | 0,05 EWS-GFP | 164701 | |
| 0,45 PRMT8-FLAG | 164699 | ||
| lub 0,45 PRMT8(E185Q)-FLAG | 164700 | ||
| PRMT9 | 0,05 SAP145-GFP | N/D | dar od dr. Yanzhong Yang, Beckman Research Institute of City of Hope |
| lub 0,05 SAP145-R508K-GFP | |||
| 0,45 pusty wektor |
Tabela 2. Zalecane stężenie DNA dla eksperymentu transfekcji.
| PRMT | Przeciwciało | Sonda chemiczna (IC50 aktywności komórkowej) | Kontrola negatywna |
| PRMT1 | H4R3me2a (1:2000) | MS023 - PRMT typu I | MS094 |
| Rme1 (1:1000) | (IC50 dla PRMT1, PRMT6, PRMT3, PRMT4 wynosi odpowiednio 9, 56, 1000, 5000 nM) | ||
| Rme2s (1:2000) | |||
| Rme2a (1:2000) | |||
| Rme2a (ASYM24, 1:3000) | |||
| Rme2a (ASYM25, 1:2000) | |||
| H4 (1:2000) | |||
| $\beta$-aktyna (1:500) | |||
| PRMT3 | H4 (1:2000) | SGC707 (IC50 = 91 nM) | XY-1 |
| H4R3me2a (1:2000) | |||
| FLAG (1:5000) | |||
| PRMT4 | BAF155 (1:200) | TP-064 (IC50 = 43 nM) | TP064N |
| BAF155-R1064me2a (1:3000) | SKI-73 (IC50 = 540 nM)* | SKI-73N* | |
| PRMT5 | anty-SmBB’ (1:100) | LLY-283 (IC50 = 30 nM) | LLY-284 |
| Rme2s (#13222, 1:2000) | GSK591 (IC50 = 56 nM) | SGC2096 | |
| PRMT6 | H4R3me2a (1:2000) | SGC6870 (IC50 = 0.9 µM) | SGC6870N |
| H4 (1:2000) | MS023 – PRMT typu I | MS094 | |
| H3R2me2a (1:2000) | (IC50 dla PRMT1, PRMT6, PRMT3, PRMT4 wynosi odpowiednio 9, 56, 1000, 5000 nM) | ||
| H3R8me2a (1:2000) | MS049 (IC50 dla PRMT 4 i 6 wynosi odpowiednio 970 i 1400 nM) | MS049N | |
| H3 (1:5000) | |||
| FLAG (1:5000) | |||
| PRMT7 | Rme1 (1:1000) | SGC3027 (IC50 = 1300 nM) * | SGC3027N* |
| Hsp/Hsc70 (1:2000)* | |||
| PRMT8 | GFP (1:3000) | MS023 (50 µM) | MS094 |
| Rme2a (ASYM25,1:2000) | |||
| FLAG (1:5000) | |||
| PRMT9 | SAP145 (1:1000) | ||
| SAP145-R508me2s – uprzejmy dar od dr. Yanzhong Yang, Beckman Research Institute of City of Hope (1:1000) (PMID: 25737013) | |||
| Przeciwciała wtórne | przeciwciało kozie przeciwko króliczem IgG-IR800 (1:5000) | ||
| przeciwciało osiołkowe przeciwko IgG mysie IR680 (1:5000) | |||
| *- przeciwciało rozpoznaje HSPA8, HSPA1 i HSPA6 (przebadzano z białkami z etykietą GFP wykazującymi nadekspresję), *prodruk – wartość IC50 może różnić się pomiędzy poszczególnymi liniami komórkowymi | |||
Tabela 3. Zalecane przeciwciała oraz sondy chemiczne i związki kontrolne negatywne dla PRMT.
| PRMT | Biomarker | Odczyt analizy | Walidacja metody analitycznej | Zalecana linia komórkowa | Ref. | ||||||||
| PRMT1 | H4R3me2a, Rme1, Rme2s, Rme2a | Poziomy H4R3me2a znormalizowane do całkowitego poziomu H4; globalne poziomy Rme1, Rme2a lub Rme2s znormalizowane do $\beta$-aktyny. | Wyciszenie genu PRMT1 spowodowało obniżenie podstawowych poziomów H4R3me2a oraz globalnych poziomów Rme2a, a także wzrost globalnych poziomów Rme1 i Rme2s w komórkach (Ryc. 1A, B). Chemiczna sonda MS023 przeciwko PRMT typu I obniżyła poziomy H4R3me2a w sposób zależny od dawki (Ryc. 1D). | Komórki różnią się podstawowymi poziomami H4R3me2a (Ryc. 1C). Komórki MCF7 charakteryzują się wysokimi podstawowymi poziomami H4R3me2a, co czyni je preferencyjnymi w analizach monitorujących spadek aktywności PRMT1. | 8 | ||||||||
| PRMT3 | H4R3me2a | Poziomy metylacji H4R3me2a wywołane przez egzogenną PRMT3 WT z znacznikiem FLAG lub mutant katalityczny E338Q (tło), znormalizowane do całkowitej ilości histony H4 | Nadekspresja PRMT3 typu dzikiego, ale nie jego mutantu katalitycznego (E338Q), zwiększyła poziom H4R3me2a (Rys. 2A). Selektywny inhibitor PRMT3, SGC707, zmniejszył zależny od PRMT3 wzrost poziomu H4R3me2a (Rys. 2B). | Komórki HEK293T wykazują niski bazowy poziom H4R3me2a (Ryc. 1C), co jest korzystne dla monitorowania egzogennej aktywności PRMT3 | 7 | ||||||||
| PRMT4 | BAF155-R1064me2a | Poziomy BAF155-R1064me2a znormalizowane do całkowitego poziomu BAF155 | Wyciszenie genu PRMT4 zmniejszyło asymetryczną dimetylację BAF155 (Rys. 3A). Dwudniowa inkubacja z selektywnym inhibitorem chemicznym PRMT4 (TP-064) zmniejszyła asymetryczną dimetylację BAF155 (Rys. 3B). | Dowolna linia komórkowa | 10 | ||||||||
| PRMT5 | SmBB’-Rme2s | Poziomy SmBB’-Rme2s wykryte za pomocą przeciwciał pan-Rme2s (CST) znormalizowane do całkowitej ilości SmBB’ | Wyciszenie genu PRMT5 doprowadziło do obniżenia poziomu symetrycznej dimetylacji SmBB’ (Ryc. 4A). Dwudniowa inkubacja z selektywnymi sondami chemicznymi PRMT5, GSK591 i LLY285, obniżyła poziom SmBB’-Rme2s (Ryc. 4B). | Dowolna linia komórkowa | 11 | ||||||||
| PRMT6 | H4R3me2a H3R2me2a H3R8me2a | Poziomy metylacji H4R3me2a, H3R2me2a lub H3R8me2a wzrastają po zastosowaniu egzogennego białka PRMT6 WT z tagiem FLAG, lecz nie po zastosowaniu mutanta katalitycznego V86K,D88A (tło), z normalizacją odpowiednio do całkowitej ilości histony H4 lub H3 | Nadekspresja PRMT6 typu dzikiego, ale nie jego mutantu katalitycznego (V86K,D88A), zwiększyła poziomy H3R2me2a, H3R8me2a oraz H4R3me2a (Ryc. 5A). Allosteryczny inhibitor PRMT6 (SGC6870), inhibitor PRMT typu I MS023 oraz inhibitor PRMT4/6 MS049 zmniejszyły zależny od PRMT6 wzrost poziomów H3R2me2a (Ryc. 5B). | Komórki HEK293T charakteryzują się niskim podstawowym poziomem H4R3me2a, H3R2me2a i H3R8me2a, co jest korzystne dla monitorowania egzogennej aktywności PRMT6. | 8,9 | ||||||||
| PRMT7 | HSP70-R469me1 | Poziomy metylacji HSP70-Rme1 znormalizowane do całkowitego poziomu HSP70 | Nokaut lub knockdown PRMT7 zmniejszył monometylację HSP70 (Ryc. 6A). Dwudniowe traktowanie selektywną sondą chemiczną PRMT7 SGC3027 zmniejszyło zależną od PRMT7 monometylację HSP70 w sposób zależny od dawki (Ryc. 6B). | C2C12, HT180 Kilka linii komórek nowotworowych wykazuje ekspresję indukowalnej formy HSP70, której sygnał metylacji nakłada się na sygnał niespecyficznego białka pochodzenia jądrowego (Rys. 6C). W takim przypadku zalecamy analizę poziomu metylacji HSP70 we frakcji cytoplazmatycznej. | 12 | ||||||||
| PRMT8 | EWS-Rme2a | Poziomy metylacji egzogennego EWS z tagiem GFP wywołane przez egzogenne PRMT8 WT z tagiem FLAG lub katalityczny mutant E185Q (tło), znormalizowane do całkowitego sygnału GFP w komórkach z knock-outem PRMT1. | Nadekspresja PRMT8 typu dzikiego, ale nie mutanta katalitycznego E185Q, spowodowała metylację egzogennego białka EWS wyłącznie w komórkach z wyciszeniem (KD) PRMT1 (Ryc. 7A). Chemiczna sonda MS023 przeciwko PRMT typu I zahamowała asymetryczną dimetylację egzogennego białka EWS przez PRMT8 (Ryc. 8B). | HEK293T PRMT1 KD (indukowalny). Wyciszenie genu PRMT1 prowadzi do śmierci komórek, dlatego zalecamy zastosowanie systemu indukowalnego. | 8 | ||||||||
| PRMT9 | SAP145-R508me2s | Zależna od PRMT9 symetryczna dimetylacja SAP145 w pozycji R508 znormalizowana do poziomu SAP145 | Utrata PRMT9, a nie PRMT5, prowadziła do zmniejszenia symetrycznej dimetylacji SAP145. SAP145 WT z tagiem GFP, ale nie SAP145mut (R508K), uległ metylacji przez PRMT9 (Ryc. 8A). Dwudniowa inkubacja z Związkiem X, prototypowym inhibitorem PRMT9, zmniejszyła poziomy SAP145-R508me2s w sposób zależny od dawki (Ryc. 8B). | Dowolna linia komórkowa | 21 | ||||||||
Tabela 4. Podsumowanie testów PRMT.
Dyskusja
W tym miejscu opisano szczegółowe protokoły testów komórkowych dla członków rodziny PRMT, które wykorzystują fluorescencyjne metody western blott. Wybrano unikalne substraty, dla których zmiany metylacji argininy mogą być łatwo wykryte po indywidualnej utracie PRMT lub hamowaniu katalitycznym i nie mogą być kompensowane przez innych członków rodziny. Niektóre białka są metylowane przez wiele PRMT21,23, co sugeruje nakładanie się specyficzności substratowej, gdzie niektóre PRMT wnoszą tylko niewielką ilość znacznika komórkowego w danym substracie białkowym 24,25,26,27, na przykład zarówno PRMT8, jak i PRMT1 przyczyniają się do metylacji EWS. W związku z tym każdy test wymagał dokładnej walidacji substratów i przeciwciał z eksperymentami z knockdownem i/lub nadekspresją oraz dalszej walidacji za pomocą dobrze scharakteryzowanych selektywnych inhibitorów. Zidentyfikowano substraty specyficzne dla PRMT, dla których zmiany znacznika metylacji można było wykryć w ciągu 2-3 dni po utracie/zahamowaniu PRMT, aby uniknąć narastających skutków zmniejszonej żywotności i proliferacji komórek, które mogą pośrednio wpływać na poziomy znacznika metyloargininy. Chociaż udało się znaleźć unikalne podłoża dla PRMT1, 4, 5, 7 i 9; W przypadku PRMT3, 6 i 8 konieczne było zastosowanie podejścia opartego na wzmocnieniu funkcji. Kilka przeciwciał specyficznych dla argininy methyl zostało przetestowanych pod kątem różnych celów komórkowych, ale żadne z nich nie było w stanie wykryć znaczących zmian w ciągu 3 dni od knockdownu PRMT3 i PRMT6; W związku z tym opracowano testy biomarkerów przy użyciu enzymów ulegających ekspresji ektopowej wraz z katalitycznie nieaktywnymi mutantami, które posłużyły jako kontrola podstawowej metylacji substratów. PRMT8 jest bliskim homologiem PRMT1 i ma podobne preferencje dotyczące substratów. Ponieważ nie można było zidentyfikować selektywnego biomarkera PRMT8, opracowano test w komórkach knockdown PRMT1, w którym PRMT8 ulegał jednoczesnej ekspresji wraz z EWS. PRMT1 jest również głównym enzymem odpowiedzialnym za asymetryczną metylację H4R3, dlatego aby użyć H4R3me2a jako biomarkera do testów komórkowych PRMT3 i PRMT6, wybrano komórki o niskim podstawowym poziomie H4R3me2a, a jako kontrolę tła zastosowano katalitycznie nieaktywne mutanty. Chociaż preferowane są testy endogenne, testy egzogenne okazują się nieocenione w testowaniu siły komórkowej kilku selektywnych inhibitorów PRMT 7,8,9. Wraz z rosnącą wiedzą na temat biologii PRMT spodziewamy się udoskonalić testy poprzez znalezienie bardziej specyficznych białek biomarkerowych dla PRMT3, PRMT6 i PRMT8.
Stosowanie zwalidowanych przeciwciał i odpowiednich kontroli ma kluczowe znaczenie dla wydajności testu PRMT. Wszystkie zalecane tutaj przeciwciała zostały dokładnie zwalidowane przez eksperymenty z knockdownem i nadekspresją, jednak różnice między partiami, zwłaszcza w przypadku przeciwciał poliklonalnych, mogą nadal wpływać na ich działanie. Dlatego tak ważne jest stosowanie metod genetycznych i sond chemicznych wraz z ich ściśle powiązanymi kontrolami ujemnymi w celu potwierdzenia wiarygodności testu. Dodatkowo, w przypadku testów PRMT, które wymagają nadekspresji białka, kluczowe znaczenie ma użycie katalitycznie nieaktywnych mutantów wraz z białkiem typu dzikiego w celu określenia podstawowych poziomów metylacji.
Ten zbiór testów ilościowych do profilowania aktywności PRMT w komórkach może być szeroko przydatny dla społeczności naukowej, ponieważ można go szybko i łatwo wdrożyć przy minimalnym sprzęcie i ograniczonej wiedzy technicznej, obejmując jedynie podstawowe techniki hodowli komórek i fluorescencyjnego western blotting. Zalecane przeciwciała i sondy chemiczne dla PRMT mogą być również wykorzystywane do testów profilowania białek opartych na aktywności (ABPP) w celu ustalenia przydatności danej sondy ABPP, monitorowania zaangażowania celu i oceny efektów poza celem przy użyciu konkurencyjnego formatu ABPP. Omówione tutaj podejścia do opracowywania testów można również ekstrapolować na inne rodziny enzymów, takie jak lizynotransferazy białkowe i acetylotransferazy.
Oświadczenia
Autorzy nie mają żadnych konkurencyjnych interesów finansowych ani innych sprzecznych interesów, które mogliby zadeklarować.
Podziękowania
Konsorcjum Genomiki Strukturalnej jest zarejestrowaną organizacją charytatywną (nr: 1097737), która otrzymuje fundusze od AbbVie, Bayer AG, Boehringer Ingelheim, Genentech, Genome Canada za pośrednictwem Ontario Genomics Institute [OGI-196], UE i EFPIA poprzez Wspólne Przedsięwzięcie Inicjatywy Leków Innowacyjnych 2 [grant EUbOPEN 875510], Janssen, Merck KGaA (aka EMD w Kanadzie i USA), Pfizer, Takeda i Wellcome Trust [106169/ZZ14/Z].
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Naczynia TC 10 cm | Greiner bio-one | 664160 | |
| 24-dołkowe płytki TC | Greiner bio-one | 662160 | |
| 4– 12% Bis-Tris Żele białkowe | ThermoFisher Scientiffic | NP0323BOX, NP0322BOX,NP0321BOX | |
| Membrana PVDF Amersham Hybond P | Millipore-Sigma | 10600021 | |
| anty-Asym 24 | Millipore-Sigma | 07-414 | |
| anty-Asym 25 | Millipore-Sigma | 09-814 | |
| anty-B-aktyna | Santa Cruz Biotechnologies | sc-47778 | |
| anty-BAF155 | Santa Cruz Biotechnologies | sc-32763 | |
| anty-BAF155-R1064me2a | Millipore-Sigma | ABE1339 | |
| anty-FLAG (#, 1:5000) | Millipore-Sigma | F4799 | |
| anty-GFP | Clontech | 632381 | |
| anty-H3 | Abcam | ab10799 | |
| anty-H3R2me2a | Millipore-Sigma | 04-848 | |
| anty-H3R8me2a | Rockland | 600-401-I67 | |
| anty-H4 | Abcam | ab174628 | |
| anty-H4R3me2a | Aktywny motyw | 39705 | |
| anty-HSP/HSC70 | Enzo | ADI-SPA-820 | |
| anty-PRMT1 | Millipore-Sigma | 07-404 | |
| anty-PRMT3 | Abcam | ab191562 | |
| anty-PRMT4 | Bethyl | #A300-421A | |
| anty-PRMT5 | Abcam | ab109451 | |
| anty-PRMT6 | Abcam | ab47244 | |
| anty-PRMT7 | Abcam | ab179822 | |
| anty-Rme1 | CST | 8015 | |
| anty-Rme2a | CST | 13522 | |
| anty-Rme2s | CST | 13222 | |
| anty-Rme2s (ASYM25), Millipore, , 1:2000) | 09-814 | ||
| anty-SAP145 (Abcam, #, 1:1000) | Abcam | ab56800 | |
| anty-SAP145-R508me2s uprzejmy | prezent od dr Yanzhong Yanga, Beckman Research Institute of City of Hope | ||
| anty-SmBB' | Santa Cruz Biotechnologies | sc-130670 | |
| benzonaza | WYPRODUKOWANO WE WŁASNYM | ||
| ZAKRESIE BSA | Millipore-Sigma | A7906 | |
| C2C12 | prezent od dr Stephane'a Richarda, McGill University | ||
| cOmkompletny, wolny od EDTA koktajl inhibitorów proteazy | Millipore-Sigma | 11873580001 | |
| DMEM Bisent | 319-005-CL | ||
| DMSO | Bioshop | DMS666.100 | |
| osł anty-mysz IgG-IR680 | Licor | 926-68072 | |
| doksycyklina | Millipore-Sigma | D9891 | |
| EDTA | Bioshop | EDT111.500 | |
| FBS | Żubel | 80150 | |
| glicyna | Bioshop | GLN002.5 | |
| kozioł-anty-królik IgG-IR800 | Licor | 926-32211 | |
| HEK293T | prezent od dr Sama Benchimola, York | ||
| University Image Studio Software ver 5.2 | Licor | ||
| Bufor ładowania: NuPAGE LDS Sample Buffer (4x) | ThermoFisher Scientiffic | NP0007 | |
| MCF7 | ATCC® HTB-22&handel; | ||
| bufora blokującego NaCl | Bioshop | SOD001.1 | |
| NuPAGE MOPS SDS ThermoFisher | Scientiffic | NP0001 | |
| Odyssey Blocking Buffer (rozcieńczony 4 x z PBST) | Licor | 927-40000 | Intercept (PBS) # 927-70001 |
| System obrazowania Odyssey CLX | Numer modelu Licor | 9140 | |
| PBS (hodowla tkankowa) | Żubr | 311-010-CL | |
| PBS (western blot) | Bioshop | PBS405.4 | |
| penstrep | Wisent | 450-201-EL | |
| Pierce™ Zestaw do oznaczania białek BCA | ThermoFisher Scientiffic | 23225 | |
| SDS | Bioshop | SDS001.1 | |
| odtłuszczone mleko w proszku | Bioshop | SKI400.500 | |
| TC20 automatyczny licznik komórek | Biorad | 1450102 | |
| Tripsin-EDTA (0,25%) | Żubr | 325-043-EL | |
| Tris | Bioshop | TRS003.5 | |
| Tritton X-100 | Bioshop | TRX506 | |
| trypan niebieski | GIBCO | 15250-061 | |
| Tween-20 | Bioshop | TWN510.500 |
Bibliografia
- Blanc, R. S., Richard, S. Arginine Methylation: The Coming of Age. Molecular Cell. 65 (1), 8-24 (2017).
- Yang, Y., Bedford, M. T. Protein arginine methyltransferases and cancer. Nature Reviews Cancer. 13 (1), 37-50 (2013).
- Bedford, M. T., Richard, S. Arginine methylation an emerging regulator of protein function. Molecular Cell. 18 (3), 263-272 (2005).
- Eaton, S. L., et al. A guide to modern quantitative fluorescent western blotting with troubleshooting strategies. The Journal of Visualized Experiments. (93), e52099(2014).
- Thandapani, P., O'Connor, T. R., Bailey, T. L., Richard, S. Defining the RGG/RG motif. Molecular Cell. 50 (5), 613-623 (2013).
- Dhar, S., et al. Loss of the major Type I arginine methyltransferase PRMT1 causes substrate scavenging by other PRMTs. Science Reports. 3, 1311(2013).
- Kaniskan, H. U., et al. A potent, selective and cell-active allosteric inhibitor of protein arginine methyltransferase 3 (PRMT3). Angewandte Chemie International Edition. 54 (17), 5166-5170 (2015).
- Eram, M. S., et al. A Potent, Selective, and Cell-Active Inhibitor of Human Type I Protein Arginine Methyltransferases. ACS Chemical Biology. 11 (3), 772-781 (2016).
- Shen, Y., et al. Discovery of a Potent, Selective, and Cell-Active Dual Inhibitor of Protein Arginine Methyltransferase 4 and Protein Arginine Methyltransferase 6. Journal of Medicinal Chemistry. 59 (19), 9124-9139 (2016).
- Nakayama, K., et al. TP-064, a potent and selective small molecule inhibitor of PRMT4 for multiple myeloma. Oncotarget. 9 (26), 18480-18493 (2018).
- Bonday, Z. Q., et al. LLY-283, a Potent and Selective Inhibitor of Arginine Methyltransferase 5, PRMT5, with Antitumor Activity. ACS Medicinal Chemistry Letters. 9 (7), 612-617 (2018).
- Szewczyk, M. M., et al. Pharmacological inhibition of PRMT7 links arginine monomethylation to the cellular stress response. Nature Communications. 11 (1), 2396(2020).
- Goulet, I., Gauvin, G., Boisvenue, S., Cote, J. Alternative splicing yields protein arginine methyltransferase 1 isoforms with distinct activity, substrate specificity, and subcellular localization. Journal of Biological Chemistry. 282 (45), 33009-33021 (2007).
- Siarheyeva, A., et al. An allosteric inhibitor of protein arginine methyltransferase 3. Structure. 20 (8), 1425-1435 (2012).
- Stefansson, O. A., Esteller, M. CARM1 and BAF155: an example of how chromatin remodeling factors can be relocalized and contribute to cancer. Breast Cancer Research. 16 (3), 307(2014).
- Pesiridis, G. S., Diamond, E., Van Duyne, G. D. Role of pICLn in methylation of Sm proteins by PRMT5. Journal of Biological Chemistry. 284 (32), 21347-21359 (2009).
- Guccione, E., et al. Methylation of histone H3R2 by PRMT6 and H3K4 by an mLL complex are mutually exclusive. Nature. 449 (7164), 933-937 (2007).
- Yudao Shen,, L, F., et al. A First-in-class, Highly Selective and Cell-active Allosteric Inhibitor of Protein Arginine Methyltransferase 6 (PRMT6). BioRxiv. , 1-21 (2020).
- Pahlich, S., Zakaryan, R. P., Gehring, H. Identification of proteins interacting with protein arginine methyltransferase 8: the Ewing sarcoma (EWS) protein binds independent of its methylation state. Proteins. 72 (4), 1125-1137 (2008).
- Lee, J., Sayegh, J., Daniel, J., Clarke, S., Bedford, M. T. PRMT8, a new membrane-bound tissue-specific member of the protein arginine methyltransferase family. Journal of Biological Chemistry. 280 (38), 32890-32896 (2005).
- Kim, J. D., Kako, K., Kakiuchi, M., Park, G. G., Fukamizu, A. EWS is a substrate of type I protein arginine methyltransferase, PRMT8. International Journal of Molecular Medicine. 22 (3), 309-315 (2008).
- Yang, Y., et al. PRMT9 is a type II methyltransferase that methylates the splicing factor SAP145. Nature Communications. 6, 6428(2015).
- Rakow, S., Pullamsetti, S. S., Bauer, U. M., Bouchard, C. Assaying epigenome functions of PRMTs and their substrates. Methods. 1175, 53-65 (2020).
- Musiani, D., et al. Proteomics profiling of arginine methylation defines PRMT5 substrate specificity. Science Signaling. 12 (575), (2019).
- Musiani, D., Massignani, E., Cuomo, A., Yadav, A., Bonaldi, T. Biochemical and Computational Approaches for the Large-Scale Analysis of Protein Arginine Methylation by Mass Spectrometry. Current Protein and Peptide Science. 21 (7), 725-739 (2020).
- Shishkova, E., et al. Global mapping of CARM1 substrates defines enzyme specificity and substrate recognition. Nature Communications. 8, 15571(2017).
- Pawlak, M. R., Banik-Maiti, S., Pietenpol, J. A., Ruley, H. E. Protein arginine methyltransferase I: substrate specificity and role in hnRNP assembly. Journal of Cellular Biochemistry. 87 (4), 394-407 (2002).
Przedruki i uprawnienia
