Ten protokół opisuje dwa czułe testy do rozróżniania między łagodnym, umiarkowanym i ciężkim upośledzeniem motorycznym w modelach stwardnienia zanikowego bocznego C. elegans, z ogólną użytecznością dla szczepów C. elegans, ze zmienioną ruchliwością.
Artykuł metodologiczny
Ocena upośledzenia motorycznego w modelach stwardnienia zanikowego bocznego C. elegans
W tym artykule
Podsumowanie
Streszczenie
Choroba neurodegeneracyjna, stwardnienie zanikowe boczne (ALS), charakteryzuje się postępującą utratą neuronów ruchowych, której towarzyszy osłabienie mięśni i upośledzenie motoryczne, które pogarsza się z czasem. Chociaż poczyniono znaczne postępy w określaniu genetycznych czynników ALS dla podgrupy pacjentów, większość przypadków ma nieznaną etiologię. Co więcej, mechanizmy leżące u podstaw dysfunkcji i zwyrodnienia neuronów ruchowych nie są dobrze poznane; W związku z tym istnieje ciągła potrzeba opracowania i scharakteryzowania reprezentatywnych modeli w celu zbadania tych procesów. Caenorhabditis elegans może dostosować swój ruch do fizycznych ograniczeń otoczenia, z dwoma podstawowymi paradygmatami ruchowymi badanymi w środowisku laboratoryjnym - pełzaniem po stałej powierzchni i pływaniem w cieczy. Reprezentują one złożoną interakcję między czuciem, neuronami ruchowymi i mięśniami. Modele ALS C. elegans mogą wykazywać upośledzenie w jednym lub obu tych paradygmatach ruchowych. Protokół ten opisuje dwa czułe testy do oceny ruchliwości u C. elegans: zoptymalizowany test lokomocji radialnej mierzący pełzanie po twardej powierzchni oraz zautomatyzowaną metodę śledzenia i analizy pływania w cieczy (młócenie). Oprócz scharakteryzowania wyjściowego upośledzenia motorycznego modeli ALS, testy te mogą wykrywać supresję lub wzmocnienie fenotypów w wyniku interwencji genetycznych lub małocząsteczkowych. W związku z tym metody te mają przydatność do badania modeli ALS i dowolnego szczepu C. elegans, który wykazuje zmienioną ruchliwość.
Wprowadzenie
Stwardnienie zanikowe boczne (ALS) jest wyniszczającą, związaną ze starzeniem się chorobą neurodegeneracyjną, która ma szczególny wpływ na neurony ruchowe. Choroba charakteryzuje się utratą neuronów ruchowych w mózgu i rdzeniu kręgowym oraz postępującym upośledzeniem motorycznym. Prowadzi to do poważnej niepełnosprawności funkcjonalnej i przedwczesnej śmierci, zwykle w ciągu 3-5 lat po diagnozie1. Mutacje w co najmniej 38 genach mogą powodować ALS; jednak większość pacjentów z ALS gromadzi wszechobecne inkluzje białka TDP-43 jako ich pierwotną patologię w neuronach i komórkach glejowych2,3,4. Opracowano szereg modeli zwierzęcych w celu zbadania mechanizmów leżących u podstaw powstawania lub przyczyniających się do ALS in vivo (recenzja w5). U C. elegans modele te obejmują genetyczne mutacje powodujące utratę funkcji w homologach genów powodujących ALS lub transgeniczną ekspresję ludzkich genów ALS. Modelowanie ALS u C. elegans ma wiele zalet. C. elegans to podatne, proste zwierzę o zróżnicowanym układzie nerwowym, dobrze scharakteryzowanych paradygmatach behawioralnych i znacznej homologii genetycznej do ludzi6,7. Istnieje wiele narzędzi do pracy z C. elegans, w tym solidne możliwości edycji genomu, fluorescencyjne reportery neurodegeneracji in vivo, paradygmaty badań przesiewowych RNAi, wykonalna genetyka oraz uznane testy behawioralne i fenotypowe. Modele ALS C. elegans podsumowują aspekty chorób ludzkich, w tym akumulację nierozpuszczalnego białka, neurodegenerację i wczesną śmierć8,9. Co więcej, dysfunkcja motoryczna charakteryzująca się zaburzeniami zarówno zachowań związanych z raczkowaniem, jak i pływaniem jest obecna w wielu modelach ALS C. elegans.
Ten protokół opisuje dwie metody charakteryzowania fenotypów motorycznych C. elegans: test lokomocji radialnej do oceny pełzania po twardej powierzchni oraz ocenę pływania w cieczy (młócenie) za pomocą automatycznego śledzenia i analizy WormLab. Te czułe metody charakteryzowania deficytów motorycznych pozwalają na porównania nasilenia i oferują narzędzia do pomiaru tłumienia i wzmacniania fenotypów motorycznych. Test lokomocji promieniowej określa ilościowo różnice w ruchliwości pełzania (sinusoidalny ruch na stałej powierzchni) między populacjami robaków. Test ten wykorzystuje naturalne, niestymulowane zachowanie eksploracyjne C. elegans, umieszczając robaki w jednym miejscu na talerzu i oznaczając ich ostateczną lokalizację po określonym czasie10. Alternatywnie, pływanie w płynie (młócenie) testy liczą zgięcia ciała poszczególnych robaków w określonym czasie. Ręczne liczenie zgięć ciała przez ludzkie oko jest czasochłonne i zazwyczaj wykazuje znaczną zmienność między eksperymentatorami. Zastosowanie wspomaganego komputerowo automatycznego śledzenia i analizy może wyeliminować znaczną część tej zmienności. Oprócz charakterystyki wyjściowego upośledzenia motorycznego w modelach ALS, zarówno testy lokomocji radialnej, jak i pływania mogą wykrywać modulację różnych fenotypów lokomotorycznych w wyniku interwencji genetycznych lub małocząsteczkowych. Metody te mają zastosowanie w badaniu modeli ALS i dowolnego szczepu C. elegans, który wykazuje zmienioną ruchliwość.
Protokół
1. Test lokomocji radialnej
- Przygotować szalki Petriego o średnicy 100 mm lub 150 mm, wypełnione mniej więcej w połowie pożywką dla nicieni (NGM) i obsiane jednolitym trawnikiem bakterii OP50, aby pokryły całą powierzchnię agaru.
- Odwróć płytki testowe NGM do góry nogami i oznacz spód identyfikatorem szczepów C. elegans do oznaczenia, 2 płytki na szczep (Rysunek 1A).
- Zrób małą kropkę ze znacznikiem na środku odwróconej płytki (Rysunek 1A).
- Podczas pracy z mikroskopem preparacyjnym przenieś 15-20 etapowych dopasowanych 11 robaków do środka płytki testowej bezpośrednio nad środkową kropką (widoczną przez NGM) za pomocą kilofa z drutu platynowego (Rysunek 1B).
UWAGA: Spróbuj przenieść wszystkie robaki w tym samym czasie lub tak szybko, jak to możliwe.- Ustaw minutnik na 30 minut po umieszczeniu robaków na środku płytki. Odłóż pokrywkę z powrotem na talerz i odłóż go na bok (Rysunek 1C).
- Kontynuuj przenoszenie robaków, aż wszystkie szczepy znajdą się na wyznaczonych płytkach testowych, notując w przybliżeniu, ile czasu zajmuje przeniesienie między płytkami (staraj się przez ~ 1 minutę między płytkami). Zachowaj wszystkie tablice w tej samej kolejności, w jakiej zostały ustawione.
- Po 30 minutach zacznij nacinać pierwszą płytkę.
- Zdejmij pokrywkę i umieść płytkę stroną zadrukowaną do dołu pod mikroskopem preparacyjnym, tak aby oznaczony tył płytki był skierowany do góry, a agar NGM znajdował się między linią wzroku a robakami. Płyta będzie odwrócona do góry nogami od normalnego użytkowania.
- Dostosuj ostrość mikroskopu, aż robaki będą widoczne przez agar.
- Używając pisaka w innym kolorze od środkowego punktu, umieść małą kropkę w miejscu każdego robaka - podążaj za śladami robaków przez trawnik bakteryjny, aby znaleźć najbardziej dystalne zwierzęta.
- Sprawdź krawędź płytki, ponieważ niektóre robaki mogą się tam znaleźć. Policz również i zapisz liczbę robaków w punkcie centralnym (Rysunek 1D).
- Kontynuuj oznaczanie wszystkich płytek testowych w kolejności, tak aby wszystkie płytki miały 30 minut czasu aktywności, uważając, aby uwzględnić czas potrzebny na ustawienie płytki. Następnie wykonaj pomiary ręczne lub cyfrowe zgodnie z opisem w krokach 1.8 lub 1.9.
- Wykonuj pomiary ręczne za pomocą linijki.
- Użyj linijki, aby zmierzyć w mm odległość od punktu środkowego do końcowych oznaczeń lokalizacji dla każdego robaka i zapisz odległość. Aby ułatwić śledzenie postępów podczas oceniania, oznacz pierwszy zdobyty punkt małą linią.
- Rejestruj dane dotyczące długości dla każdej kropki po kolei, obracając płytkę zgodnie z ruchem wskazówek zegara (Rysunek 1E).
- Wykonaj pomiar cyfrowy za pomocą skanera i ImageJ.
- Za pomocą skanera płaskiego zeskanuj tylną część płytki testowej (płytek) testowej obok linijki (cyfry skierowane w stronę powierzchni skanowania) (Rysunek 2A).
- Otwórz zeskanowany obraz płyty w ImageJ lub podobnym programie.
UWAGA: ImageJ to bezpłatne oprogramowanie do przetwarzania obrazów oparte na Javie hostowane przez NIH. - Kliknij narzędzie Linia prosta, a następnie narysuj linię łączącą punkty 1 cm i 2 cm na zeskanowanym obrazie linijki (Rysunek 2B).
UWAGA: Przytrzymanie Shift w komputerze wymusi ustawienie linii pod najbliższym kątem 45°. - Przejdź do menu Analizuj i użyj go, aby ustawić skalę (Analizuj | Ustaw skalę) (Rysunek 2C).
- Wprowadź znaną odległość (10) i jednostki długości (mm) w odpowiednich polach, nie dostosowuj odległości w liczbie pikseli. Zaznacz opcję Globalne, aby zastosować tę samą skalę do wszystkich obrazów analizowanych w każdej sesji ImageJ; w przeciwnym razie ustaw skalę dla każdego obrazu po otwarciu (Rysunek 2D). Kliknij przycisk Ok.
UWAGA: Kroki 1.9.2-1.9.5 są wykonywane w celu ustawienia skali pomiaru. Pomiary dla tego obrazu będą teraz automatycznie wiązać długość linii ze zdefiniowaną relacją piksel: długość. Obrazy zeskanowane w rozdzielczości 300 dpi będą miały przybliżoną zależność 11,8 piksela na mm. - Użyj narzędzia Pędzel, aby zaznaczyć tuż nad pierwszym punktem, który ma zostać zdobyty.
UWAGA: Jest to wizualny wskaźnik pierwszego wykrytego robaka. - Użyj narzędzia Linia prosta, aby narysować linię od punktu środkowego do pierwszego punktu danych robaka.
- Kliknij M na klawiaturze, aby zmierzyć odległość. Możesz też przejść do menu Analizuj i wybrać polecenie Zmierz (Analizuj | Środek). W obu przypadkach pomiar pojawi się w nowym oknie; W tym oknie zostaną zebrane wszystkie pomiary dla każdego obrazu.
- Utrzymując punkt środkowy na stałym poziomie, przesuń koniec linii dotykającej pierwszego punktu ślimaka do następnego punktu ślimaka, przesuwając się zgodnie z ruchem wskazówek zegara, a następnie kliknij M, aby zmierzyć.
- Kontynuuj mierzenie każdego punktu zgodnie z ruchem wskazówek zegara, aż wszystkie punkty zostaną zdobyte.
- Skopiuj i wklej dane pomiaru długości do arkusza kalkulacyjnego, aby je zapisać. Następnie powtórz ten proces dla każdego zeskanowanego obrazu płyty.
UWAGA: Kroki 1.9.6 - 1.9.11 mierzą wartości przemieszczenia robaka (Rysunek 2E-F).
- Przeprowadzanie analiz statystycznych.
- Połącz powtórzenia w jednym eksperymencie, tak aby łączna liczba zdobytych robaków wynosiła od 30 do 40 .
- Wykonuj niezależne repliki eksperymentalne w różnych dniach i z niezależnymi populacjami robaków, aby uzyskać 3 niezależne powtórzenia eksperymentalne.
- Analizuj dane za pomocą odpowiednich analiz statystycznych, takich jak test t Studenta dla 2 szczepów lub 1-czynnikowa ANOVA dla trzech lub więcej szczepów.
2. Test pływacki analizowany komputerowo
UWAGA: Ten protokół zawiera szczegółowe instrukcje dla dostępnego na rynku sprzętu i oprogramowania WormLab (zobacz Spis materiałów). Jednak przepływ pracy można zastosować do innych analizowanych komputerowo systemów testów pływackich.
- Ustawianie i nagrywanie filmów.
- Podnieś osłonę na sprzęcie do przetwarzania obrazu (Rysunek 3) i sprawdź, czy wysokość kamery jest ustawiona na oczekiwaną lokalizację.
UWAGA: Optymalna wysokość do wychwytywania robaków na płycie 35 mm jest taka, że trzeci od dołu gwintowany otwór jest widoczny poniżej regulowanego wspornika montażowego kamery, ale nie widać dodatkowego otworu montażowego nad otworem (około 30,5 cm nad stolikiem) (Rysunek 3C). Spowoduje to współczynnik przechwytywania 11,43 μm/piksel. Rozważ dodanie wskaźnika "prawidłowej wysokości", aby łatwiej było go potwierdzić przed rozpoczęciem testu. Patrz krok 2.18 protokołu, aby uwzględnić regulacje wysokości. - Otwórz powiązane oprogramowanie (Rysunek uzupełniający 1A).
- Kliknij ikonę Przechwytywanie wideo (film z trójkątem skierowanym w prawo pośrodku), aby otworzyć nowe okno Przechwytywanie wideo. Kamera będzie w trybie Live View, ale wyświetlacz będzie (Rysunek uzupełniający 1B).
- Naciśnij pokrętło ściemniacza i obróć je zgodnie z ruchem wskazówek zegara, aby wyregulować światło.
UWAGA: Pokrętło ściemniacza znajduje się na stage systemu obrazowania w pobliżu źródła światła jasnego pola. Ekran podglądu na żywo Video Capture zmieni kolor z czarnego na podświetlony. - Wróć do okna Przechwytywanie wideo, kliknij kartę Ustawienia, dostosuj w następujący sposób: Tryb wideo: 2456 x 2052_Mono8, Liczba klatek na sekundę: 14, Wyjście: monochromatyczny, Ekspozycja: 0,00300 s, Wzmocnienie: 1 dB, Gamma: 1, Obrót o 180 (sprawdź).
- Wróć do karty Przechwytywanie. Wybierz folder nagrań (Rysunek uzupełniający 1B).
UWAGA: W tym miejscu będą przechowywane wszystkie nagrania i pliki projektu. Twórz unikalne foldery dla poszczególnych eksperymentów, aby uporządkować dane. - Przypisz nazwę pliku, wprowadzając ją w polu tekstowym Prefiks pliku.
UWAGA: Oprogramowanie automatycznie dołączy liczbę progresywną na końcu prefiksu w formacie "0001". Wskazane jest posiadanie spójnego schematu nazewnictwa plików, takiego jak: "YYYYMMDD_treatmentName_rep#_". - Ustaw inne ustawienia przechwytywania w następujący sposób: Buzak: 128 klatek (domyślnie), Czas trwania (sprawdź): 00 h:01min:00 s. Zignoruj lub wyłącz inne ustawienia w tej karcie.
- Umieść płytkę testową pokrywką do góry na stoliku urządzenia i wyśrodkuj ją na ekranie przechwytywania wideo; zdejmij pokrywę.
UWAGA: Przygotuj płytki testowe z wyprzedzeniem. Każda płytka składa się z szalki Petriego o średnicy 35 mm, wypełnionej w przybliżeniu do połowy nieobsianym (bez bakteryjnego trawnika) NGM. - Użyj mikropipety, aby umyć etap synced11 robaków w 1 ml M9 na płytce testowej - celuj w około 50 robaków (Rysunek 3D). Delikatnie zakręć płytką, aby sprowadzić zwierzęta do środka lub użyj mikropipety, aby dodać kilka kropli M9, aby oddzielić zwierzęta (Rysunek 3E). Ustaw minutnik na 60 s, aby robaki mogły przyzwyczaić się do pływania.
UWAGA: Tabliczka nie będzie w 100% widoczna na ekranie. Zwierzęta nie są dokładnie śledzone, gdy się nakładają. - Podczas gdy timer odlicza czas, ręcznie wyreguluj ostrość aparatu, obracając pierścień ostrości na korpusie obiektywu aparatu podczas oglądania wyświetlacza (Rysunek 3F). Możliwe jest powiększanie robaków za pomocą myszy z kółkiem przewijania, co pozwala na bardziej precyzyjne ustawianie ostrości.
- Po ustawieniu ostrości wyreguluj pokrętło światła tak, aby wyświetlacz był jak najbardziej jasny bez prześwietlenia (pojawia się jako czerwone piksele na wyświetlaczu).
- Po 60 s naciśnij przycisk nagrywania.
UWAGA: Film przejdzie z trybu Live View do Nagrywanie, a licznik czasu będzie widoczny. Po zakończeniu przechwytywania obraz wideo powróci do trybu Live View (Rysunek uzupełniający 1B). - Wyjmij płytę po nagraniu i ustaw następną płytę. W razie potrzeby zmień nazwę prefiksu. Umyj robaki na płytce testowej, inkubuj przez 60 s i rejestruj każdy zabieg.
- Po zakończeniu wszystkich nagrań do eksperymentu zamknij wszystkie otwarte karty wideo i wyłącz źródło światła, naciskając pokrętło ściemniacza.
- Zamknij okno Video Capture, klikając czerwony przycisk x w prawym górnym rogu okna; alternatywnie zamknij cały pakiet oprogramowania i otwórz go ponownie.
- Przygotuj filmy do śledzenia.
- Z menu paska bocznego Przepływ pracy wybierz pierwszy przycisk w tym menu, Importuj sekwencję obrazów, a następnie znajdź i kliknij dwukrotnie wideo. Film otworzy się w środkowym oknie (Rysunek uzupełniający 2A).
UWAGA: Domyślnym sposobem wyświetlania oprogramowania jest menu paska bocznego przepływu pracy; dostęp do tego menu można również uzyskać za pośrednictwem górnego menu rozwijanego Widok w obszarze Widok | Przepływ pracy]. W menu Przepływ pracy znajduje się kilka opcji widoku; Widok ścieżki jest odpowiedni w tym momencie protokołu. Jeśli przycisk Ustaw informacje o sekwencji nie jest widoczny w menu, oznacza to, że nie jest to prawidłowy widok. Najpierw spójrz na dół menu i sprawdź, czy karta Przepływ pracy jest aktywna, a następnie sprawdź, czy widok Ścieżka jest aktywny, klikając ikonę Śledź. Miejsce pojawienia się menu w oknie zależy od rozmiaru monitora i lokalizacji innych otwartych menu. Menu można przenosić metodą "przeciągnij i upuść", zmieniać ich rozmiar i zamykać. Większość menu można również otworzyć za pomocą menu rozwijanego Widok. - Z menu Workflow (Przepływ pracy) wybierz opcję Set Sequence Info (Ustaw informacje o sekwencji) (Rysunek uzupełniający 2B). W nowym oknie menu sprawdź schemat nazewnictwa, dodaj notatki i zweryfikuj metadane.
- Sprawdź, czy skalowanie jest ustawione poprawnie; Skala: 11,43 μm/piksel, a pomiar wypełni się automatycznie, ponieważ 1000 μm to 87 pikseli. Jeśli wysokość kamery została wyregulowana inaczej niż zalecana tutaj, postępuj zgodnie z instrukcjami w tym menu, aby zaktualizować skalę. Kliknij przycisk Zapisz.
- W menu Workflow (Obieg pracy) wybierz opcję Adjust Image (Dostosuj obraz), a otworzy się nowe menu kontekstowe o nazwie Image Adjustment (Rysunek uzupełniający 2C). Wybierz Ciemne robaki na jasnym tle (jasne pole).
- Dostosuj dodatkowe ustawienia. Zalecane ustawienia przetwarzania obrazu są następujące: Wygładzanie tła: 10, Wygładzanie gaussowskie: 5, Wypełnianie otworów: 2, Filtr małych obiektów: 0 i pomijanie segmentacji pochodnych całkowych.
- Dostosuj poziom progu tak, aby zwierzęta były całkowicie wypełnione kolorem zielonym, ale nadal odróżniały się od tła. Kliknij przycisk Apply.
UWAGA: Dopuszczalne jest podnoszenie niektórych przedmiotów, które nie są robakami. - Z menu Workflow (Przepływ pracy) wybierz opcję Detect and Track (Rysunek uzupełniający 2D).
UWAGA: Z boku filmu pojawi się menu z 3 zakładkami: Wykrywanie, Śledzenie i Naprawa. Kursor będzie wyglądał jak palec wskazujący po najechaniu na ekran wideo. Możesz też kliknąć ikonę Wybierz (strzałka kursora) w menu ikon w lewym górnym rogu oprogramowania.- Użyj narzędzia wyboru palca, aby wybrać 3-7 robaków i kliknij przycisk Wykryj robaki w zakładce Wykrywanie.
UWAGA: Ten wybór pomaga oprogramowaniu dokładnie zidentyfikować robaki w danych warunkach i musi być wykonany dla każdego filmu. Po kilku sekundach większość robaków zostanie podświetlona na zielono i będzie miała liczbę na żółto. Robaki, które dotykają się lub zwijają, prawdopodobnie nie zostaną podświetlone; Jednak program najprawdopodobniej znajdzie je podczas śledzenia. Istnieje możliwość dostosowania parametrów wykrywania; Jednak ustawienia domyślne działają dobrze w większości warunków. W przypadku dokonywania korekt parametrów detekcji należy upewnić się, że próbki i kontrpróby są spójne.
- Użyj narzędzia wyboru palca, aby wybrać 3-7 robaków i kliknij przycisk Wykryj robaki w zakładce Wykrywanie.
- Pozostając w oknie Wykrywanie i śledzenie, przejdź do zakładki Śledzenie (rysunek uzupełniający 2E). W polu Parametry śledzenia zaznacz opcję Użyj wycofywania i odznacz opcję Śledź robaki na krawędzi obrazu.
- Ustaw hipotezę maksymalnej liczby śledzonych na 5. Ustaw tryb śledzenia na Pływanie.
UWAGA: Ustawienie hipotezy Max Tracked dostosowuje liczbę potencjalnych ścieżek robaka, które może mieć pojedynczy śledzony robak i daje programowi pewną swobodę w zakresie dokładności śledzenia pojedynczego robaka bez utraty jego orientacji. 5 to dobre ustawienie do pływania. - Przejdź do sekcji Ustawienia zaawansowane i ustaw następujące opcje: Robaki ramek mogą dotykać granicy: 50, Robaki ramek mogą się nakładać: 500, Tolerancja pozycji: 0,50, Tolerancja kształtu: 0,50. Zapisz te ustawienia i wdróż je dla wszystkich filmów w eksperymencie (i nie tylko), zapisując je jako konfigurację.
UWAGA: Filtrowanie ścieżek nie jest zalecane i można je łatwo wykonać po przetworzeniu, pominąć. - Przejdź do Configuration Manager (ikona koła zębatego) w menu ikon w lewym górnym rogu. Po kliknięciu otworzy się menu paska bocznego Configuration Manager. Następnie kliknij ikonę Zapisz (koło zębate +), nadaj tej konfiguracji nazwę i opis, a następnie kliknij przycisk OK.
- Aby uzyskać dostęp do tej konfiguracji w przyszłości, otwórz menu Konfiguracja, wybierz żądaną konfigurację i kliknij ikonę Załaduj (strzałka w górę). Następnie dodaj informacje o sekwencji, ewentualnie dostosuj poziom progowy i wybierz robaki do wykrycia. Wszystkie inne ustawienia będą takie same.
- W menu Workflow (Przepływ pracy) kliknij Save Project (Zapisz projekt), sprawdź lokalizację zapisu i dodaj nazwę pliku projektu (dopasowanie nazwy pliku projektu do nazwy filmu pomaga w zachowaniu ciągłości). Zamknij plik video.
UWAGA: Te projekty są zapisywane z typem pliku .wpr. - Powtórz dla wszystkich filmów: Importuj sekwencję obrazów (2.18), Załaduj zapisaną konfigurację (2.28.1), dostosuj próg (2.23), ustaw informacje o sekwencji (2.19), wykryj robaki (2.24.1), zapisz projekt (2.29), zamknij wideo.
- Śledzenie filmów
- Aby śledzić pliki projektu, przejdź do menu Workflow (Przepływ pracy) i kliknij ikonę Batch (folder zawierający strony robaków) (Rysunek uzupełniający 2F).
UWAGA: Zostanie wyświetlony panel Przetwarzanie wsadowe (Rysunek uzupełniający 2G). Czasami jest ukryty, ale można uzyskać do niego dostęp na samym dole menu Batch Workflow; Aby je zobaczyć, może być konieczne rozwinięcie okna. - Kliknij przycisk Dodaj w sekcji Wybór pliku tego menu Przetwarzanie wsadowe. Przejdź do i wybierz wszystkie pliki projektu (.wpr) do przetworzenia, kliknij przycisk Open.
UWAGA: Menu Przetwarzanie wsadowe wypełni się wybraną ścieżką do pliku, wskaźnikiem stanu i szarym paskiem postępu dla każdego pliku. - Kliknij przycisk Start (ikona przycisku odtwarzania). Zwróć uwagę na zielony wskaźnik postępu na pierwszym pliku. Zezwalaj na przetwarzanie wszystkich plików. Gdy wszystkie pliki zostaną odczytane jako gotowe (kolor zielony), oprogramowanie można zamknąć (rysunek uzupełniający 2G).
- Jeśli plik projektu utknie, rozważ uruchomienie samego zawieszonego pliku, zwykle rozwiązuje to problem. Jeśli to nie rozwiąże problemu, otwórz plik projektu, usuń wybrane robaki (menu Wykryj i śledź) i ponownie wybierz z nowego zestawu treningowego. Następnie ponownie przetwórz plik projektu.
- Aby śledzić pliki projektu, przejdź do menu Workflow (Przepływ pracy) i kliknij ikonę Batch (folder zawierający strony robaków) (Rysunek uzupełniający 2F).
- Naprawa gąsienic (zalecana)
UWAGA: Naprawa ścieżek może zwiększyć ich dokładność. Typowe poprawki polegają na łączeniu ścieżek, które wyraźnie należą do tego samego robaka, jak widzi go ludzkie oko, usuwaniu ścieżek, które nie są dokładne lub nie przechwytują prawdziwych danych robaków, oraz dzieleniu ścieżek, które są błędnie przedstawiane, ponieważ robaki się stykają (usuń złą sekcję i połącz ścieżki sprzed i po słabej sekcji, jeśli to możliwe).- Otwórz oprogramowanie i otwórz plik projektu [Plik | Open Project] zainteresowania. Kliknij przycisk Otwórz i kliknij przycisk Tak, aby użyć tego pliku. Poczekaj, aż filtr tymczasowy się załaduje. Przetworzone wideo pojawi się na ekranie; Robaki zostaną podświetlone na zielono i obrysowane na żółto. Użyj odtwarzacza wideo, aby przeszorować lub odtworzyć wideo.
- Z menu Workflow (Przepływ pracy) wybierz opcję Detect and Track (Wykryj i śledź) (Rysunek uzupełniający 2D). Przejdź do zakładki Naprawa. Aktywuj kursor Selektor, klikając ikonę narzędzia Selektor (strzałka kursora). Przejrzyj film, znajdując i wybierając ślad robaka, a następnie użyj menu naprawy, aby utworzyć żądaną zmianę.
UWAGA: Aby strategicznie rozwiązać większość problemów szybko, powiększ tak, aby widoczna była około 1/6 części płyty, zacznij od obszaru otaczającego tor #1. Szybko przejrzyj wideo, sprawdzając, czy nie ma robaków, które w tajemniczy sposób pojawiają się znikąd, ścieżek, na których zmieniają się liczby, lub robaków wpadających na siebie, edytując je w miarę pojawiania się problemów. Podążaj za robakami w kolejności numerycznej od pozycji początkowej. Szoruj w przód iw tył, aby podążać za każdym robakiem w razie potrzeby, aż cała płytka zostanie naprawiona. Zwróć szczególną uwagę na krawędzie talerza; Często fałszywe robaki pojawiają się w cieniach krawędzi płyty.
- analiza danych
- Z menu Workflow (Przepływ pracy) wybierz opcję Analizuj dane (rysunek uzupełniający 3A).
UWAGA: Pojawi się nowe okno o nazwie Analiza danych i wykres (Rysunek uzupełniający 3B). W tym oknie można na wiele sposobów oceniać i wyświetlać dane o ruchu populacji robaków w określonym pliku projektu. Większość z tych analiz pozwala na wybór konkretnych, wielu lub wszystkich robaków z danego filmu, co pozwala na wykreślenie informacji o śladzie na różne sposoby. - Aby przeanalizować liczbę zakrętów, przejdź do Podsumowanie trasy [Pozycja i prędkość | Podsumowanie utworu] (rysunek uzupełniający 3C). Użyj przycisku Eksportuj w prawym dolnym rogu, aby wyeksportować dane w formacie nadającym się do odczytu arkusza kalkulacyjnego (.csv), wybierz ścieżkę do żądanej lokalizacji arkusza kalkulacyjnego, w tym zmień jego nazwę na coś zapadającego w pamięć. Dobrym wyborem są ustawienia domyślne (Rysunek uzupełniający 3D).
- Wklej te dane, a także wszelkie inne istotne zestawy danych projektu do skonsolidowanego skoroszytu arkusza kalkulacyjnego (Rysunek uzupełniający 3E).
- Użyj liczby zakrętów i czasu trwania toru, aby obliczyć liczbę zakrętów na minutę dla każdej ścieżki za pomocą funkcji arkusza kalkulacyjnego (=zakręty/czas trwania ścieżki * 60) lub użyj innej metryki zgodnie z potrzebami (rysunek uzupełniający 3F).
UWAGA: Obroty na minutę przechwytują bardzo podobne informacje, jak ręczny test młócenia, który jest szeroko stosowaną miarą aktywności w cieczy, ale istnieje wiele opcji i jest całkiem możliwe, że inna metryka może zidentyfikować inne interesujące dane dla danego leczenia lub porównania. - W razie potrzeby sprawdź rozmiar robaka, czas trwania ścieżki i/lub inne wybrane wskaźniki za pomocą narzędzi do formatowania warunkowego, aby wyróżnić ścieżki do usunięcia, jeśli są potencjalnie mylące. Utrzymuj spójne przetwarzanie danych między zabiegami i replikacjami.
- Analizuj dane za pomocą odpowiednich analiz statystycznych, takich jak test t Studenta dla 2 szczepów lub 1-kierunkowa ANOVA dla 3 lub więcej szczepów. Przeprowadzić niezależne powtórzenia eksperymentalne w różnych dniach i z niezależnymi populacjami robaków dla co najmniej 3 niezależnych powtórzeń eksperymentalnych.
- Z menu Workflow (Przepływ pracy) wybierz opcję Analizuj dane (rysunek uzupełniający 3A).
Wyniki
Zarówno testy lokomocji radialnej, jak i testy pływania umożliwiają czułe wykrycie upośledzenia zdolności ruchowych (Rycina 4 i Rysunek 5). Aby zbadać mechanizmy leżące u podłoża patologicznego białka TDP-43 w ALS, C. elegans Opracowano modele wykazujące panneuronalną ekspresję ludzkiej białka TDP-43 typu dzikiego lub zmutowanego w przebiegu ALS. Zwierzęta te przejawiają cechy molekularne i komórkowe przypominające ALS, w tym dysfunkcję motoryczną.9Ważne jest to, że zwierzęta wykazują umiarkowane upośledzenie motoryki przy ekspresji ludzkiego białka TDP-43 typu dzikiego oraz silniejsze upośledzenie motoryki u zwierząt wykazujących ekspresję zmutowanego białka TDP-43 związanego z ALS, co wykazano zarówno w testach lokomocji radialnej, jak i testach pływania. U niektórych zwierząt mutantów lub transgenicznych stopień upośledzenia pełzania będzie większy niż pływania lub odwrotnie. Zastosowanie dwóch różnych testów motoryki pozwala na uzyskanie wyraźniejszego obrazu różnic fenotypowych między szczepami.
Ruch radialny
Po umieszczeniu na wysianej płytce agarowej, C. elegans badają otoczenie, w tym poszukują granic źródła pożywienia. Testy ruchu radialnego są jednym ze sposobów wykorzystania tego zachowania jako wskaźnika sprawności fizycznej. Dzięki analizie zachowania lokomotorycznego (pełzania po stałej powierzchni) w sposób kontrolowany i mierzalny, test ruchu radialnego stanowi proste i skuteczne narzędzie do oceny stopnia deficytów motorycznych oraz innych fenotypów związanych z motoryką. Testy ruchu radialnego wykazują różnice w ruchliwości u umiarkowanie lub silnie upośledzonych nicieni w modelach ALS i stanowią punkt odniesienia do porównywania modulacji fenotypów ruchliwości lub zmian ruchliwości wraz z wiekiem (Rycina 6). Strategię tę można zastosować do ilościowej oceny zachowania pełzania każdego szczepu, którego ruch odbiega od typu dzikiego (N2) lub nicieni kontrolnych. Jednak metoda ta może nie być odpowiednim wyborem do oceny zwierząt niezdolnych do normalnego pełzania, takich jak mutanty typu „roller” lub zwierzęta sparaliżowane. Zazwyczaj nicienie typu dzikiego wykazują średnie przemieszczenie w zakresie 200-300 µm/min, gdy są hodowane i badane w temperaturze 20 °C. Przykładowe dane przedstawione na Rycynie 4 ukazują oczekiwane wyniki porównujące N2, dwa różne szczepy transgeniczne wykazujące ludzkie TDP-43 typu dzikiego z łagodnym fenotypem [TDP-43(WT-mild), CK402 (bkIs402[Psnb-1::TDP-43; Pmyo-3::GFP])] lub silniejszym fenotypem [TDP-43(WT-moderate), CK410 (bkIs402[Psnb-1::TDP-43; Pmyo-2::GFP])], szczep transgeniczny wykazujący zmutowane ludzkie TDP-43 z ciężkim fenotypem [TDP-43(M337V), CK423 (bkIs423[Psnb-1::TDP-43; Pmyo-2::GFP])] oraz szczep transgeniczny wykazujący inne białko związane z chorobami neurodegeneracyjnymi, ludzkie białko tau typu dzikiego [tau(WT), CK144 (bkIs144[Paex-3::tau(4R1N); Pmyo-2::GFP])]. Dwa szczepy wykazujące TDP-43 typu dzikiego mają różny stopień upośledzenia wykryty za pomocą ruchu radialnego. TDP-43(WT-low) nie różni się znacząco od N2, podczas gdy TDP-43(WT-high) wykazuje wyraźne różnice w ruchliwości. Szczepy TDP-43(M337V) i tau (WT) mają cięższe upośledzenia ruchliwości.
Test pływalności
C. elegans wykonują stereotypowy ruch pływania (miotania), gdy zostaną zanurzone w cieczy. Natychmiast po zanurzeniu nicienie zaczynają charakterystycznie zginać głowę i ogon w kierunku siebie pod kątem około 45°, przy czym wierzchołek kąta znajduje się w połowie długości ciała nicienia. Nicienie naprzemiennie zginają się w kierunku brzusznym i grzbietowym. Jedno mignięcie (thrash), mierzone przez oprogramowanie, reprezentuje ruch przejścia z pozycji wyprostowanej do kąta zgięcia ciała wynoszącego 20° lub więcej, niezależnie od kierunku (próg kątowy można dostosować podczas przetwarzania w oknie Analysis i Plotting [Workflow | Analyze Data | Body Shape | Bending Angle | Mid-Point | Amplitude Threshold: # degrees]). Opisany tutaj test pływalności wykorzystuje zautomatyzowane komputerowe śledzenie i analizę, aby zapewnić obiektywną ocenę aktywności pływania. Przewiduje się, że nicienie typu dzikiego (N2) będą wykonywać średnio od 150 do 200 mignięć na min, gdy będą hodowane i rejestrowane w temperaturze 20 °C. Przykładowe dane przedstawione na Rysunku 5 pokazują oczekiwane wyniki porównania N2, dwóch różnych szczepów transgenicznych wykazujących ludzką białko TDP-43 typu dzikiego z łagodnym fenotypem [TDP-43(WT-mild), CK402 (bkIs402[Psnb-1::TDP-43; Pmyo-3::GFP])] lub silniejszym fenotypem [TDP-43(WT-moderate), CK410 (bkIs402[Psnb-1::TDP-43; Pmyo-2::GFP])] oraz szczepu transgenicznego wykazującego inne białko związane z chorobami neurodegeneracyjnymi, ludzkie białko tau typu dzikiego [tau(WT), CK144 (bkIs144[Paex-3::tau(4R1N); Pmyo-2::GFP])]. Szczep transgeniczny wykazujący zmutowane białko TDP-43 związane z ALS [TDP-43(M337V)] nie mignie w cieczy, dlatego na wykresie jest on oznaczony jako ND (brak danych). Niniejszy test pozwala rozróżnić inne fenotypy niż test lokomocji radialnej przedstawiony na Rysunku 4. Na przykład w teście lokomocji radialnej (Rysunek 4) TDP-43(WT-low) nie różniło się znacząco od N2. Jednak w teście pływalności (Rysunek 5) zarówno TDP-43(WT-low), jak i TDP-43(WT-high) różnią się znacząco od N2, a także znacząco od siebie nawzajem. Ponadto, mimo że zarówno TDP-43(M337V), jak i tau(WT) wykazują ciężkie zaburzenia pełzania w locomocji radialnej (Rysunek 4), tylko tau(WT) jest w stanie mignąć wystarczająco mocno, aby zostało to wykryte przez oprogramowanie (Rysunek 5). Zwierzęta TDP-43(M337V) nie są w stanie mignąć, a analiza oparta na oprogramowaniu nie wykrywa ani nie śledzi tych nicieni w sposób dokładny. W związku z tym dane dotyczące tych nicieni nie zostały zebrane (ND, brak danych).
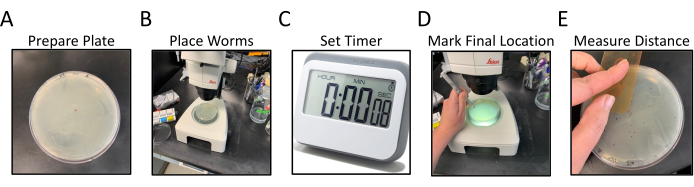
Rycina 1: Schemat badania lokomocji radialnej. Panele A-E przedstawiają ogólne etapy badania lokomocji radialnej. Kroki przebiegają następująco: (A) przygotowanie płytek NGM z posianym na krawędziach szczepem OP50 poprzez etykietowanie i zaznaczenie punktu centralnego, (B) umieszczenie nicieni w centrum agaru w miejscu zaznaczonym punktem centralnym, (C) pozostawienie nicieni do swobodnego poruszania się przez określony czas, (D) odwrócenie płytki do góry dnem i zaznaczenie końcowej lokalizacji każdego nicienia kolorem innym niż kolor punktu centralnego, (E) pomiar odległości od punktu centralnego do każdej końcowej lokalizacji nicienia, wykonany ręcznie lub cyfrowo. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 2: Cyfrowy pomiar końcowego położenia z użyciem programu ImageJ. Pomiary odległości od centrum można przeprowadzić ręcznie lub cyfrowo; aby zmierzyć je cyfrowo za pomocą ImageJ (A), należy zeskanować tył płytki z linijką w kadrze. (B) Za pomocą narzędzia linii narysować odcinek o znanej długości. (C) Wykorzystać narysowaną w punkcie (B) znaną długość do ustawienia skali [Analyze | Set Scale…]. (D) Za pomocą narzędzia linii narysować linię od punktu środkowego do znaku końcowego położenia; powtórzyć czynność dla każdego znaku. (E) Linia naniesiona pędzlem, oznaczająca pierwszy zmierzony punkt, ułatwia ocenę (pofalowana czarna linia w pobliżu znaku 1). Znaki końcowego położenia są ponumerowane na żółto, aby zilustrować kierunkowość oceny. (F) Pomiary są zapisywane w oknie Results. Wyniki należy zapisać w innym miejscu w celu przeprowadzenia analizy statystycznej. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
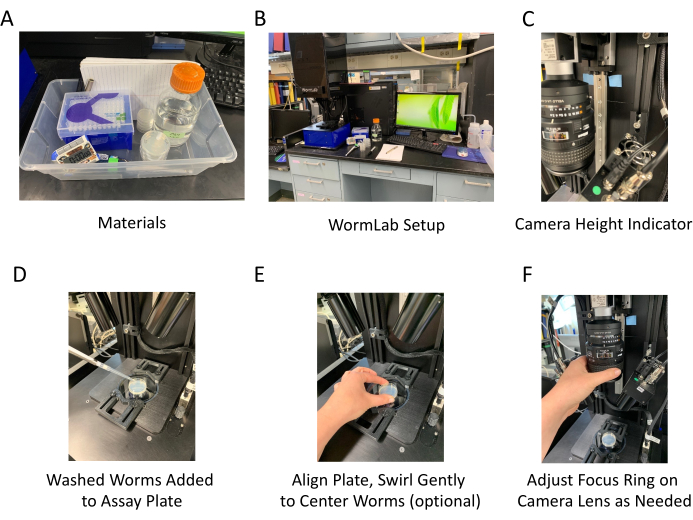
Rysunek 3: Materiały i regulacje sprzętowe niezbędne do korzystania z oprogramowania. (A) Materiały użyte do wspomaganego programowo testu pływania. (B) Ogólna konfiguracja oprogramowania i potrzebnych materiałów; należy zauważyć, że obudowa znajduje się w pozycji podniesionej. (C) Wysokość uchwytu mocującego obiektyw może być regulowana. Na zdjęciu widoczna jest regulowana prowadnica oraz znacznik z taśmy wyznaczający preferowaną wysokość do przeprowadzania testów pływania. Przed rozpoczęciem rejestracji konieczna jest regulacja oświetlenia w polu jasnym oraz ostrości kamery. (D) Na stole przedmiotowym umieszcza się płytkę testową o średnicy 35 mm, do płytki dodaje się zwierzęta w roztworze M9, a następnie uruchamia minutowy czasomierz. (E) Czasami korzystne jest delikatne zakręcenie płytką, aby przesunąć nicienie bliżej centrum – należy obserwować ich położenie na ekranie podglądu na żywo; alternatywnie można użyć kilku kropli M9 z pipety, aby rozdzielić nicienie. (F) Wyreguluj pierścień ostrości w obiektywie kamery, obserwując nicienie na ekranie w celu ustalenia optymalnego ostrzenia. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
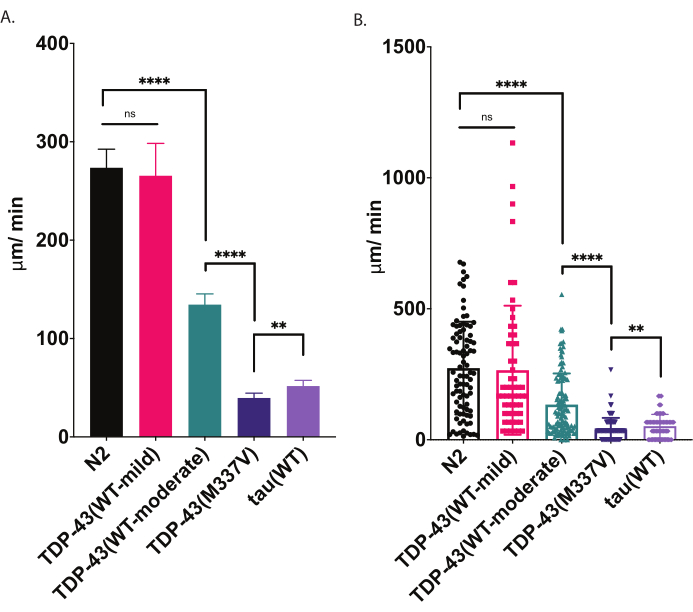
Rycina 4: Testy lokomocji radialnej wykrywają różnice w prędkości pełzania. Niepobudzony rozrzut larw L4 na odpowiednim etapie rozwoju był mierzony przy użyciu opisanego powyżej testu lokomocji radialnej i przedstawiony na wykresie jako przebyta droga w µm/min (A-B). Te same dane przedstawione w (A) i (B) demonstrują dwie różne możliwe formy prezentacji graficznej. W (A) dane przedstawiono na wykresie słupkowym, co czyni różnice względne między szczepami bardziej przejrzystymi. W (B) na wykresie zaznaczono końcowe przemieszczenie każdego nicienia, co pozwala na lepszą wizualizację zmienności w obrębie populacji. Aby ocenić istotność różnic między testowanymi szczepami, zastosowano jednoczynnikową analizę wariancji (ANOVA) z testem wielokrotnych porównań Tukeya. **p=0,0022, ****p<0,0001, ns=brak istotności. TDP-43(M337V) oraz tau(WT) różnią się również istotnie od N2, p<0,0001. Słupki błędów w (A) oznaczają błąd standardowy średniej (SEM), a w (B) odchylenie standardowe. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
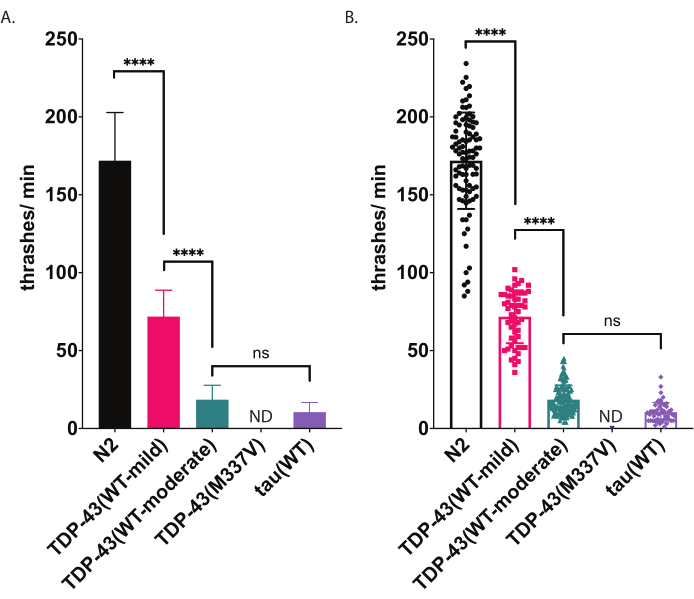
Rysunek 5: Testy pływania wykrywają różnice w miotaniu się w cieczy. Szybkość pływania (częstotliwość miotania lub ondulacji w cieczy) mierzono przy użyciu bezstronnej oceny i analizy wspomaganej komputerowo, opisanej powyżej, a wyniki przedstawiono jako liczba miotań/min (A-B). Te same dane przedstawiono na wykresach (A) i (B). Na wykresie (A) dane przedstawiono w formie słupkowej, co ułatwia dostrzeżenie wzglennych różnic między szczepami. Na wykresie (B) naniesiono dane z każdego pojedynczo ocenionego nicienia, co pozwala na lepszą wizualizację zmienności w obrębie populacji. Aby ocenić istotność różnic między badanymi szczepami, zastosowano jednoczynnikową analizę wariancji (ANOVA) z testem wielokrotnych porównań Tukeya. ****p<0.0001, ns=brak istotności. TDP-43(WT-moderate) oraz tau(WT) różnią się również istotnie od N2, p<0.0001. Słupki błędów na wykresie (A) oznaczają standardowy błąd średniej (SEM), a na wykresie (B) odchylenie standardowe. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
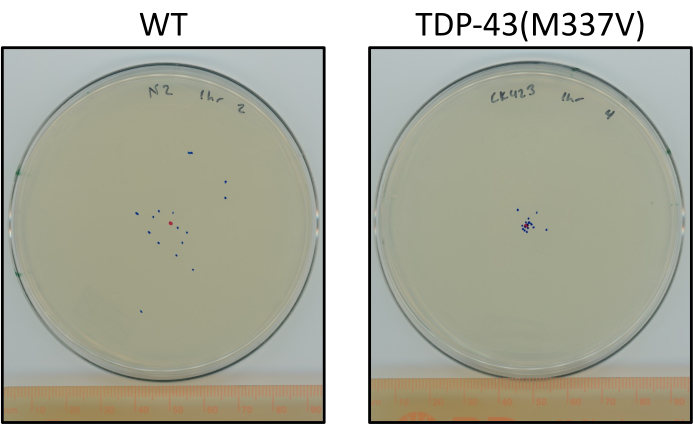
Rycina 6: Nicienie z mutantem TDP-43 przemieszczają się w mniejszym zakresie niż nicienie typu dzikiego. Płytki pokazujące reprezentatywną różnicę w końcowej lokalizacji stadiów L4 N2 (typ dziki) oraz TDP-43(M337V) (CK423 (bkIs423[Psnb-1::TDP-43; Pmyo-2::GFP]), szczepu wykazującego ekspresję mutantowej ludzkiej białka TDP-43 z poważnie upośledzoną funkcją motoryczną po 1 godzinie niesymulowanego pełzania w temperaturze pokojowej. Płytki są oznaczone czerwoną kropką wyznaczającą punkt centralny oraz niebieskimi kropkami wskazującymi końcową lokalizację zwierząt. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Rysunek uzupełniający 1: Rejestracja zachowań pływackich przy użyciu oprogramowania do obrazowania i śledzenia. (A) Przebieg procesu śledzenia oraz położenie ikony przechwytywania wideo. (B) Okno Video Capture wyświetlone w trybie Live View z zaznaczonymi najważniejszymi elementami. Zielony napis „Live view” zmieni się na czerwony napis „Recording” po aktywacji przycisku nagrywania. Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 2: Przygotowanie i śledzenie zachowań pływackich. Rycina ta przedstawia serię zrzutów ekranu ułatwiających konfigurację sekwencji obrazów wideo do śledzenia. Ogólny protokół przygotowania sekwencji wideo polega na otwieraniu kolejnych menu w następującej kolejności: Import Image Sequence | Set Sequence Info | Adjust Image | Detect and Track | Save Project. Okno Analyze Data może być użyte dopiero po prześledzeniu pliku projektu. (A) przedstawia otwarty plik .avi (wideo) po zaimportowaniu sekwencji do oprogramowania z poziomu przepływu pracy Track. (B) Okno Set Sequence Info służy do dodawania notatek, ustawiania/zmiany skali oraz sprawdzania metadanych sekwencji wideo. Instrukcje dotyczące zmiany skali znajdują się w tym oknie i powinny być stosowane w przypadku obniżenia lub podniesienia kamery (B). Obraz (C) pokazuje ustawienia okna Adjust Image. (D) Zrzut ekranu przedstawiający kartę detekcji w oknie Detect and Track. Detekcja nicieni służy do trenowania oprogramowania i musi być ustawiona dla każdej sekwencji wideo. W razie potrzeby można tutaj ustawić dodatkowe parametry detekcji. (E) Zrzut ekranu karty Tracking okna Detect and Track z zalecanymi ustawieniami do śledzenia zachowań pływackich. Jest to ostatni krok konfiguracji sekwencji wideo. Zapisz sekwencję jako projekt, korzystając z okna Save Project. Powtórz te kroki dla każdej sekwencji wideo. Ustawienia można zapisać jako konfigurację w celu zmniejszenia nakładu pracy i zapewnienia jednakowego traktowania wszystkich sekwencji (nie pokazano). Aby śledzić pliki projektów do analizy, przejdź do przepływu pracy Batch. (F) przedstawia ikonę służącą do przejścia do przepływu pracy Batch, a (G) pokazuje okno przetwarzania wsadowego, wyróżnia przyciski dodawania i uruchamiania oraz przedstawia spodziewany wygląd prześledzonego pliku projektu. Kliknij tutaj, aby pobrać ten plik.
Rycina uzupełniająca 3: Analiza zachowania pływackiego. Po śledzeniu pliku projektu można go otworzyć za pomocą [File | Open Project]. Nicienie będą wyświetlane na zielono, jak pokazano na (A). Przewijanie wideo pozwala na szybką weryfikację, czy wideo zostało przetworzone prawidłowo; podczas przewijania zielone wyróżnienie zniknie. Okno analizy danych i wykresów (Data Analysis and Plotting) otwiera się z elementu przepływu pracy Analyze Data. (B) przedstawia okno analizy danych i wykresów z otwartym widokiem pozycji (domyślny), gdzie wszystkie ścieżki są wyróżnione. Poniżej punktów danych znajduje się wykres przedstawiający zarejestrowaną ścieżkę dla każdego wyróżnionego nicienia. Analiza podsumowania ścieżek służy do obliczenia liczby obrotów na minutę. (C-D) przedstawiają raport podsumowujący ścieżki oraz szczegóły eksportu. (E-F) pokazują podsumowanie ścieżek w arkuszu kalkulacyjnym oraz sposób obliczania liczby obrotów na minutę, która jest parametrem mierzonym w tym teście. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Lokomocja radialna:
Rozdzielczość tego testu można łatwo kontrolować, zmieniając zmienną czasową. Wydłużenie czasu ułatwia obserwację różnic między zwierzętami o ciężkich fenotypach, identyfikując w ten sposób subtelne różnice. Ponieważ jednak ten test mierzy przemieszczenie, jeśli czas testu zostanie zbyt długi, zwierzęta o normalnej ruchliwości, takie jak N2, będą przemieszczać się do krawędzi płytki, a zachowania związane z żerowaniem doprowadzą do cofnięcia się. Spowoduje to sztuczne zmniejszenie pomiaru przebytej odległości. Zbyt długie okresy czasowe mogą powodować zanik różnic między szczepami, szczególnie między zwierzętami o mniej poważnych fenotypach motorycznych, ponieważ zwierzęta stają się równomiernie rozproszone na płytce. Skrócenie zmiennej czasowej zapobiegnie znajdowaniu krawędzi płytki przez bardziej aktywne robaki. Ta metoda nie śledzi całkowitej odległości przebytej dla każdego robaka, ale kompresuje odległość przebytą dla każdego robaka do odległości liniowej od środka płytki. W związku z tym jest z natury mniej niezawodna niż metoda, która rejestruje całkowitą długość ścieżek poszczególnych robaków. Jednak test lokomocji promieniowej wymaga bardzo niewielkiego przeszkolenia badaczy, wykorzystuje stosunkowo niedrogie odczynniki, które są powszechnie dostępne w większości laboratoriów zajmujących się robakami, i jest wystarczająco czuły, aby uzyskać znaczące i powtarzalne wyniki. Dla laboratoriów, które preferują automatyczne śledzenie wideo, wcześniej opracowano kilka metod śledzenia i analizowania ruchów pełzania12 lub parametry oprogramowania używane do testu pływania w tym artykule można zmienić, aby umożliwić wykrywanie i analizę pełzania.
Eksperyment ten jest zwykle przeprowadzany w trzech niezależnych powtórzeniach, z zestawem 30-40 robaków na replikę. Każda replika jest dzielona na dwie różne płytki o średnicy 100 mm lub 150 mm, z 15-20 ślimakami na płytkę. Używanie większej liczby robaków niż jest to zalecane na talerz może utrudnić skuteczne nacięcie. Całkowita liczba uzyskana w wieku 90+ jest wystarczająco silna, aby ustalić znaczenie dla łagodnego, umiarkowanego lub ciężkiego upośledzenia motoryki. Zachowanie spójności w czasie między ocenianymi szczepami ma zasadnicze znaczenie dla dokładności i odtwarzalności. 30 minut to na ogół wystarczająco długo, aby ustalić różnice między umiarkowanymi i ciężkimi fenotypami, takimi jak szczepy transgeniczne eksprymujące ludzkiego mutanta TDP-43 w porównaniu z robakami typu dzikiego (ryc. 4). Jeśli zmienna czasowa ma zostać wydłużona, wskazane jest również zwiększenie rozmiaru tabliczki ze 100 mm do 150 mm. Czynniki środowiskowe, takie jak temperatura i wilgotność, mogą wpływać na ten test, który jest zwykle przeprowadzany w temperaturze pokojowej otoczenia, dlatego ważne jest, aby zawsze używać kontroli typu dzikiego (N2) podczas porównywania między powtórzeniami. Ponadto test ten może mierzyć ruchliwość niektórych szczepów, które nie wykazują normalnego zachowania podczas pływania w cieczy (młócenie), co czyni go użytecznym uzupełnieniem testu pływania.
Test pływacki:
Wykorzystanie systemu obrazowania i akwizycji do automatyzacji śledzenia i analizy pływania robaków pozwala na uzyskanie rygorystycznych i bezstronnych danych. Jednak podczas początkowej konfiguracji eksperymentu istnieje kilka czynników, które muszą być kontrolowane między próbkami. Należą do nich czas przyzwyczajenia się do cieczy przed rozpoczęciem nagrywania, warunki otoczenia (tj. temperatura, wilgotność) oraz spójne ustawienia oświetlenia i nagrywania. Na etapie nagrywania dostępnych jest kilka funkcji, które pomagają zmniejszyć zmienność między płytami. Należą do nich zintegrowana kamera montowana na szynie i stolik z jasnym polem, który sprawia, że nagrywanie wideo jest spójne między płytami, osłona wokół stolika, która zapobiega odbiciom, odblaskom i ruchom powietrza podczas nagrywania, a także solidny pakiet oprogramowania, który niezawodnie wykrywa robaki i pozwala na ręczną korekcję ścieżek w post-processingu wideo. W tym protokole filmy z 35-milimetrową płytą z robakami są nagrywane przez 1 minutę, a następnie przetwarzane za pomocą pakietu oprogramowania. Po przetworzeniu ręczna korekta ścieżek zapewnia, że zachowania robaków są rejestrowane dokładnie bez mylących błędów śledzenia. Dane dotyczące liczby tur i czasu trwania toru są używane do określania zakrętów na minutę jako końcowego odczytu. Aby zapewnić odtwarzalność, dane są zbierane w co najmniej 3 niezależnych powtórzonych eksperymentach, z których każde obejmuje 40-50 zwierząt, aby uzyskać łączną końcową liczbę zwierząt 120-150. Liczba ta jest wystarczająca do odróżnienia niewielkich różnic w zachowaniu podczas pływania od robaków kontrolnych. Niektóre robaki mają deficyty motoryczne zbyt poważne, aby można je było uchwycić za pomocą testów pływackich. Na przykład, jeśli zwierzęta umieszczone w płynnym podłożu zwijają się zamiast wykonywać oczekiwaną reakcję młócenia, test ten nie zarejestruje dokładnie tych ruchów, a inny test ruchu, taki jak lokomocja promieniowa, może lepiej uchwycić te wady ruchliwości. Dostarczony protokół wykorzystuje dostępny na rynku system obrazowania (więcej informacji można znaleźć w Tabeli materiałów ), ale inne systemy śledzenia robaków mogą zapewniać podobne narzędzie, a niektóre z nich są open source12. Wcześniej opublikowane metody opisują ręczną ocenę młócenia robaków13. Podczas gdy zautomatyzowana analiza generuje szereg wskaźników dla każdego pojedynczego robaka, wykrywanie zgięć ciała, które jest mierzone w uderzeniach na minutę, zapewnia spójne wyniki między eksperymentami i dobrze śledzi konwencjonalną ocenę młócenia robaków na oko.
Oświadczenia
Autorzy oświadczają, że nie posiadają żadnych ujawnień.
Podziękowania
Dziękujemy recenzentom za pomocne komentarze i sugestie. Dziękujemy Aleen Saxton, Brandonowi Hendersonowi i Jade Stair za wyjątkową pomoc techniczną. Dziękujemy Brianowi Kraemerowi i Rebecce Kow za pomoc w opracowaniu tych testów. Materiał ten jest wynikiem pracy wspartej zasobami i wykorzystaniem obiektów w systemie opieki zdrowotnej VA Puget Sound. Prace te zostały wsparte grantem ze Stanów Zjednoczonych (USA) Departament ds. Weteranów (VA) Laboratorium Biomedyczne Dział Badawczo-Rozwojowy [Grant na przegląd zasług #I01BX004044 dla N.F.L.]
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| C. elegans | Caenorhabditis Genetics Center (CGC) | - | Kupuj swoje szczepy zgodnie z potrzebami, N2 jest użytecznym szczepem kontrolnym |
| Jednorazowe pipety Pasteura, szkło borokrzemianowe | VWR | 14673-010 | Szklana pipeta używana do tworzenia ślimaka - trzymaj szklaną pipetę w jednej ręce i ~1" drutu platynowego (trzymanego przez szczypce) w drugiej nad płomieniem, aby połączyć. |
| Jednorazowe szalki Petriego, 35x10mm | VWR | 10799-192 | Płytki testowe do systemu obrazowania WormLab |
| Jednorazowe szalki Petriego, 60x15mm | VWR | 25384-090 | Talerze do robaków |
| Jednorazowe szalki Petriego, 100x15mm | VWR | 25384-302 | Standardowa promieniowa płytka do badania lokomocji |
| Jednorazowe szalki Petriego, 150x15mm | VWR | 25384-326 | Dłuższe ramy czasowe promieniowe Płytka do badania lokomocji |
| Mikroskop preparacyjny | Leica | M80 | Zakres do konserwacji robaków i ustawiania promieniowych testów lokomocji |
| Markery z drobną końcówką | VWR | 52877-810 | Potrzebujesz co najmniej 2 kolorów do testów lokomocji promieniowej. Do dokładności wymagane są drobne końcówki. |
| Skaner płaski | Amazon | Epson Perfection V850 | Opcjonalny do badania lokomocji promieniowej. Protokół zakłada rozdzielczość 300 dpi, większość skanerów będzie działać dobrze |
| ImageJ | NIH-Opcjonalne | bezpłatne oprogramowanie dostarczane przez NIH - | |
| https://imagej.nih.gov/ij/ M9 buffer | VWR | IC113037012 | Medium używane do testu pływackiego. Można go wykonać od podstaw, patrz WormBook: Konserwacja C. elegans |
| NGM (Nematode Growth Medium) | VWR | 76347-412 | Podłoże używane do uprawy C. elegans. Może być wykonany od podstaw, patrz WormBook: Utrzymanie bakterii C. elegans |
| OP50 | Centrum Genetyki Caenorhabditis (CGC) | OP50 | Podstawowe źródło pożywienia dla C. elegans |
| p1000 pipettor | VWR | 76207-552 | Pipetor, używany w teście pływackim |
| Końcówki P1000 | VWR | 83007-384 | Końcówki do pipetatora, stosowane w testach pływackich |
| Drut platynowy, średnica 0,2032 mm | VWR | BT136585-5M | Drobny drut platynowy używany do tworzenia kilofa ślimakowego - trzymaj szklaną pipetę w jednej ręce i ~ 1 "drutu platynowego (trzymanego szczypcami) w drugiej nad płomieniem, aby połączyć. |
| Linijka | VWR | 56510-001 | Konieczność oceny testów lokomocji promieniowej |
| System obrazowania WormLab MBF | Bioscience | WormLab | System obrazowania obejmuje sprzęt WormLab (stolik jasnego pola, kamerę i obudowę) oraz oprogramowanie WormLab. https://www.mbfbioscience.com/wormlab-imaging-system |
Bibliografia
- Wijesekera, L. C., Leigh, P. N. Amyotrophic lateral sclerosis. Orphanet Journal of Rare Diseases. 4, 3(2009).
- Arai, T., et al. TDP-43 is a component of ubiquitin-positive tau-negative inclusions in frontotemporal lobar degeneration and amyotrophic lateral sclerosis. Biochemical and Biophysical Research Communication. 351 (3), 602-611 (2006).
- Neumann, M., et al. Ubiquitinated TDP-43 in frontotemporal lobar degeneration and amyotrophic lateral sclerosis. Science. 314 (5796), 130-133 (2006).
- Mejzini, R., et al. ALS genetics, mechanisms, and therapeutics: Where are we now. Frontiers in Neuroscience. 13, 1310(2019).
- Tan, R. H., Ke, Y. D., Ittner, L. M., Halliday, G. M. ALS/FTLD: Experimental models and reality. Acta Neuropathologica. 133 (2), 177-196 (2017).
- Kim, W., Underwood, R. S., Greenwald, I., Shaye, D. D. OrthoList 2: A new comparative genomic analysis of human and Caenorhabditis elegans genes. Genetics. 210 (2), 445-461 (2018).
- White, J. G., Southgate, E., Thomson, J. N., Brenner, S. The structure of the nervous system of the nematode Caenorhabditis elegans. Philosophical Transaction of the Royal Society of London B: Biological Sciences. 314 (1165), 1(1986).
- Caldwell, K. A., Willicott, C. W., Caldwell, G. A. Modeling neurodegeneration in Caenorhabditis elegans. Disease Models and Mechanisms. 13 (10), (2020).
- Liachko, N. F., Guthrie, C. R., Kraemer, B. C. Phosphorylation promotes neurotoxicity in a Caenorhabditis elegans model of TDP-43 proteinopathy. Journal of Neuroscience. 30 (48), 16208-16219 (2010).
- Robatzek, M., Thomas, J. H. Calcium/calmodulin-dependent protein kinase II regulates Caenorhabditis elegans locomotion in concert with a G(o)/G(q) signaling network. Genetics. 156 (3), 1069-1082 (2000).
- Porta-de-la-Riva, M., Fontrodona, L., Villanueva, A., Ceron, J. Basic Caenorhabditis elegans methods: synchronization and observation. Journal of Visualized Experiments. (64), e4019(2012).
- Husson, S. J., Costa, W. S., Schmitt, C., Gottschalk, A. Keeping track of worm trackers. WormBook. , 1-17 (2013).
- Ringstad, N., Horvitz, B., Koelle, M. WormBook. Hart, A. C. , 1551(2006).
Przedruki i uprawnienia
