Ten protokół opisuje kroki do wygenerowania modelu 3D rozkładu metabolitów podczas infekcji trypanosomatydem, w tym pobieranie próbek, ekstrakcję metabolitów, przegląd akwizycji danych z chromatografii cieczowej i spektrometrii mas tandemowej, generowanie modeli 3D i wreszcie wizualizację danych.
Artykuł metodologiczny
Podejścia kartografii chemicznej do badania zakażenia trypanosomatydem
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Tropizm patogenów i tropizm chorób odnoszą się do lokalizacji tkanek selektywnie skolonizowanych lub uszkodzonych przez patogeny, co prowadzi do miejscowych objawów choroby. Pasożyty trypanosomatydowe zakaźne dla ludzi obejmują Trypanosoma cruzi, czynnik wywołujący chorobę Chagasa; Trypanosoma brucei, czynnik wywołujący śpiączkę; i gatunki Leishmania, czynniki wywołujące leiszmaniozę. Łącznie dotykają one 20 milionów ludzi na całym świecie. Pasożyty te wykazują specyficzny tropizm: serce, przełyk, okrężnica dla T. cruzi, tkanka tłuszczowa, trzustka, skóra, układ krążenia i ośrodkowy układ nerwowy dla T. brucei, skóra dla dermotropowych szczepów Leishmania oraz wątroba, śledziona i szpik kostny dla trzewnych szczepów Leishmania. Perspektywa przestrzenna jest zatem niezbędna do zrozumienia patogenezy choroby trypanosomatidów. Kartografia chemiczna generuje wizualizacje 3D obfitości małych cząsteczek generowanych za pomocą chromatografii cieczowej ze spektrometrią mas, w porównaniu z parametrami mikrobiologicznymi i immunologicznymi. Protokół ten pokazuje, w jaki sposób kartografia chemiczna może być stosowana do badania procesów patogennych podczas infekcji trypanosomatydem, począwszy od systematycznego pobierania próbek tkanek i ekstrakcji metabolitów, następnie akwizycji danych za pomocą chromatografii cieczowej i tandemowej spektrometrii mas, a skończywszy na generowaniu map 3D rozmieszczenia metabolitów. Metoda ta może być stosowana do wielu pytań badawczych, takich jak zapotrzebowanie na składniki odżywcze do kolonizacji tkanek przez T. cruzi, T. brucei lub Leishmania, immunometabolizm w miejscach infekcji oraz związek między lokalnymi zaburzeniami metabolicznymi tkanek a klinicznymi objawami choroby, co prowadzi do kompleksowego wglądu w patogenezę choroby trypanosomatidów.
Wprowadzenie
Pasożyty trypanosomatidów składają się z gatunków Leishmania, trypanosomów afrykańskich (Trypanosoma brucei) i trypanosomów amerykańskich (Trypanosoma cruzi). Pierwotniaki Leishmania powodują leiszmaniozę, która obejmuje samoleczenie i samoograniczenie miejscowej leiszmaniozy skórnej, leiszmaniozę śluzówkowo-skórną, w której dochodzi do uszkodzenia tkanek błony śluzowej jamy ustnej, nosa i gardła, oraz leiszmaniozę trzewną z tropizmem pasożytniczym do narządów trzewnych powodującym gorączkę i powiększenie wątroby i śledziony1,2. T. brucei powoduje ludzką trypanosomatozę afrykańską (HAT), znaną również jako śpiączka, zgłaszaną głównie w krajach afrykańskich3. Objawy kliniczne obejmują powiększenie wątroby i śledziony, gorączkę, ból głowy, bóle mięśniowo-szkieletowe, powiększenie węzłów chłonnych i niedokrwistość w fazie hemo-limfatycznej, gdy pasożyty lokalizują się w krwiobiegu i naczyniach limfatycznych. Po tym następuje etap oponowo-mózgowy, w którym pasożyty lokalizują się w ośrodkowym układzie nerwowym i powodują zaburzenia snu, zmiany w zachowaniu i ostatecznie śmiertelną śpiączkę4. T. cruzi powoduje chorobę Chagasa, endemiczną dla obu Ameryk. Osoby zakażone doświadczają początkowego ostrego etapu, zwykle bezobjawowego, z szerokim tropizmem pasożytniczym. Około 10%-30% zakażonych osób doświadcza przewlekłych objawów stadium po dziesięcioleciach infekcji, charakteryzujących się megaprzełykiem, okrężnicą i powikłaniami sercowo-naczyniowymi5,6.
Metabolomika bada małe gatunki molekularne (50-1,500 Da), w tym związki biologiczne z pierwotnego lub wtórnego metabolizmu oraz związki pochodzące z zewnątrz, takie jak leki lub cząsteczki pochodzące z żywności. W kontekście interakcji gospodarz-patogen metabolomika może badać wpływ infekcji na środowisko metabolitów gospodarza, co ma kluczowe znaczenie dla uzyskania dostępu do wpływu patogenu na gospodarza. Może również oceniać adaptacje patogenów do środowiska żywieniowego i immunologicznego gospodarza7,8,9. Spektrometria mas (MS) i spektroskopia magnetycznego rezonansu jądrowego (NMR) są powszechnymi narzędziami metabolomicznymi stosowanymi do identyfikacji, kwantyfikacji i charakterystyki metabolitów. To "omiczne" podejście można również zastosować do odkrywania biomarkerów i opracowywania leków10,11.
Biorąc pod uwagę specyficzny tropizm tkankowy pasożytów trypanosomatidów, przestrzenne analizy metabolomiczne mogą umożliwić znaczący wgląd w patogenezę chorób, które powodują. Mapowanie przestrzennego rozmieszczenia metabolitów ujawniło metabolity lokalnie dotknięte przewlekłym zakażeniem Trypanosoma cruzi w tkance serca myszy oraz ostre i długotrwałe zakażenie Trypanosoma cruzi w przewodzie pokarmowym myszy6,12,13. W szczególności kartografia chemiczna 3D wykazała rozdźwięk między utrzymywaniem się pasożyta a zmianami metabolicznymi w tkance serca myszy przewlekle zakażonych Trypanosoma cruzi. Metabolizm był najbardziej zaburzony w dolnych i wierzchołkowych odcinkach serca, zgodnych z miejscami objawów choroby Chagasa (tętniaki wierzchołkowe serca). Rodziny metabolitów zaburzonych przez zakażenie w określonych miejscach pracy serca i skorelowane z ciężkością choroby obejmują acylokarnityny i glicerofosfocholiny12,13,14. W przewodzie pokarmowym utrzymujące się zmiany metaboliczne zbiegały się z miejscami objawów choroby Chagasa: przełykiem i okrężnicą. W przeciwieństwie do tego, metabolizm jest ponownie normalizowany w miejscach niezwiązanych z objawami choroby Chagasa, takich jak jelito cienkie. Metabolity miejscowo zaburzone przez zakażenie w przewodzie pokarmowym obejmują acylokarnityny, glicerofosfocholiny, kinureninę, tryptofan i kwas cholowy. Ponadto analizy te umożliwiły zidentyfikowanie nowego metabolicznego mechanizmu tolerancji na chorobę Chagasa6. Zastosowanie tych metod do badania leiszmaniozy skórnej ujawniło istotne zaburzenia metaboliczne w miejscu zmiany, ale także specyficzne zmiany metaboliczne w przylegającej do zmiany, makroskopowo zdrowej tkance. Na przykład glutamina była zubożona w miejscu zmiany, podczas gdy glicerofosfocholiny w m/z (stosunek masy do ładunku) 200-299, 400-499, 500-599 i 600-699 były znacznie zwiększone w miejscu zmiany. PC (O-34:1) był zwiększony tylko w miejscach sąsiadujących ze zmianami chorobowymi15.
Celem tego manuskryptu jest pokazanie kroków niezbędnych do wygenerowania modeli 3D rozkładu metabolitów ("kartografia chemiczna") w zastosowaniu do modeli infekcji pasożytami trypanosomatydów (Rysunek 1). Podejście to opiera się na kilku kluczowych osiągnięciach w kontekście metabolomiki i przetwarzania danych metabolomicznych, w szczególności na rozwoju oprogramowania 'ili do łatwego nanoszenia danych metabolomicznych na modele 3D16.
Protokół
Wszystkie opisane eksperymenty na zwierzętach zostały zatwierdzone przez Instytucjonalny Komitet Opieki i Wykorzystania Zwierząt Uniwersytetu Oklahomy lub Uniwersytetu Kalifornijskiego w San Diego. Wszystkie etapy obejmujące pracę z materiałem zakaźnym były przeprowadzane w komorze bezpieczeństwa biologicznego (klasa II, typ A2) zgodnie z lokalnymi przepisami.
1. Pobieranie tkanek
- Zainfekuj odpowiednie modele zwierzęce dla infekcji trypanosomatydami, zazwyczaj myszy lub chomiki.
UWAGA: Istnieje znaczna różnorodność modeli mysich dla infekcji trypanosomatydami, w zależności od pożądanych objawów, szybkości progresji choroby, jej ciężkości itp. Użytkownicy mogą wybrać model według uznania.- W przypadku modeli infekcji leiszmaniozą skórną, wykonaj iniekcję podskórnie w poduszkę stopy lub wewnątrzskórnie w ucho15.
- W przypadku modeli infekcji leiszmaniozą trzewną, wykonaj iniekcję dożylnie1,17.
- W przypadku modeli infekcji chorobą Chagasa i śpiączką afrykańską, wykonaj iniekcję dosytnnowo6,12,18,19. Określ dawkę pasożytów na podstawie szczepu pasożyta i zaplanowanych punktów czasowych.
- Zaplanuj miejsca pobierania wycinków.
- Zaplanuj pobranie wycinków o masie co najmniej 10 mg tkanki na wycinek. Najlepiej użyć 30-50 mg.
- W przypadku modeli infekcji chorobą Chagasa zaplanuj systematyczne pobieranie fragmentów serca i przewodu pokarmowego.
- W przypadku modeli infekcji leiszmaniozą skórną pobierz tkankę z miejsca zmiany oraz próbki z obszarów sąsiadujących ze zmianą.
- W przypadku modeli infekcji leiszmaniozą trzewną zaplanuj pobranie śledziony i wielu płatów wątroby. Interesujące może być również pobranie dodatkowych miejsc tkankowych, takich jak tkanka tłuszczowa.
OSTRZEŻENIE: Próbki od zainfekowanych zwierząt muszą być obsługiwane zgodnie z odpowiednim, zatwierdzonym przez instytucję protokołem bezpieczeństwa biologicznego. Będzie to zazwyczaj obejmować wymogi dotyczące środków ochrony osobistej (PPE) oraz otwieranie probówek i pobieranie próbek wyłącznie w komorze bezpieczeństwa biologicznego (klasa II, typ A2).
- Oznakuj i zważ probówki do homogenizacji.
- Użyj typu probówki odpowiedniego dla dostępnego systemu homogenizacji. Dla TissueLyser użyj probówek do mikrocentryfugi o pojemności 2 mL.
- Uśmierć myszy w pożądanych punktach czasowych infekcji poprzez przedawkowanie izofluranu, zgodnie z zatwierdzeniem instytucjonalnej komisji IACUC lub zgodnie z zatwierdzonym protokołem IACUC.
- Systematycznie pobierz wycinki tkanki zgodnie z planem, umieszczając jeden wycinek w jednej probówce.
- Pamiętaj o przemywaniu sprzętu do pobierania próbek pomiędzy próbkami rozpuszczalnikiem do ekstrakcji (w tym protokole jest to 50% metanol).
- Pozostawiając zakrętkę probówki otwartą, natychmiast zamroź próbki w ciekłym azocie (snap freeze).
OSTRZEŻENIE: Nie zamykaj probówek, dopóki cały ciekły azot, który dostał się do środka, całkowicie nie odparuje, aby zapobiec wybuchowi probówek podczas rozprężania się azotu. Podejmij odpowiednie kroki, aby skóra nie miała kontaktu z ciekłym azotem (używaj rękawic kriogenicznych i pęset do trzymania probówek). Noś ochronną przyłbicę. - Przechowuj probówki na suchem lodzie do momentu zebrania wszystkich pożądanych próbek.
- Punkt przerwania: przechowuj próbki w temperaturze -80 °C do czasu rozpoczęcia ekstrakcji.
- Zważ probówki, aby określić masę próbki tkanki. Zapisz dane w arkuszu kalkulacyjnym.
- Utrzymuj próbki w stanie zamrożonym podczas procesu ważenia: trzymaj probówki na suchym lodzie, waż szybko i niezwłocznie odstaw na suchy lód. Nie dopuść do rozmrożenia próbek podczas ważenia.
2. Ekstrakcja metabolitów
UWAGA: Przez cały czas należy stosować wyłącznie ciecze i odczynniki klasy LC-MS. Metoda ta została opracowana na podstawie publikacji20.
- Przygotuj wszystkie rozpuszczalniki do ekstrakcji (stopień czystości LC-MS H2metanol klasy LC-MS, wzbogacony o 4 µM sulfachlorpyridazyny, dichlorometanu klasy LC-MS: metanolu wzbogaconego o 2 µM (sulfachlorpirydyzyny) w 1-litrowych butelkach szklanych, przy użyciu dedykowanego szkła laboratoryjnego.
UWAGA: Objętość do przygotowania powinna zostać obliczona na podstawie masy próbek, biorąc pod uwagę 500 µL wody na 50 mg próbki, 500 µL metanolu wzbogaconego o 4 µM sulfachloropyrydyzyny na 50 mg próbki i 1,000 µL wychłodzonego dichlorometanu: metanolu z dodatkiem 2 µM sulfachlorpyridazine na 50 mg próbki, zwiększając obliczoną objętość o 10%, aby uwzględnić błędy pipetowania. Przechowywać rozpuszczalnik do ekstrakcji w 4 °C przez co najmniej noc w celu schłodzenia. - Przeprowadź homogenizację próbek tkanek w środowisku wodnym zgodnie z poniższymi krokami.
- Dodaj jedną kulkę ze stali nierdzewnej o średnicy 5 mm (patrz Tabela materiałów) do każdej z probówek do mikrocentryfugi o pojemności 2 ml zawierających próbki tkanek, używając dozownika kulek. Probówki należy przechowywać w lodzie.
- Przygotuj jedną pustą probówkę zawierającą wodę klasy LC-MS2O, która przejdzie przez wszystkie etapy i będzie służyć jako próbna ekstrakcja (blank). Należy użyć średniej H2Objętość z ekstraktów z próbek. Dodać schłodzoną wodę klasy LC-MS H2Do zamrożonych próbek tkanek.
- Znormalizuj objętość wody do masy tkanki, dodając 500 µL wody / 50 mg próbki, stosując wartości masy próbki obliczone w kroku 1.7.
UWAGA: W przypadku pracy z próbkami potencjalnie zakaźnymi należy nadal przestrzegać odpowiedniego, zatwierdzonego przez instytucję protokołu bezpieczeństwa biologicznego. Zazwyczaj wiąże się to z wymogami dotyczącymi środków ochrony indywidualnej (PPE) oraz otwierania probówek wyłącznie w komorze z laminarnym przepływem powietrza (klasa II, typ A2).
- Znormalizuj objętość wody do masy tkanki, dodając 500 µL wody / 50 mg próbki, stosując wartości masy próbki obliczone w kroku 1.7.
- Homogenizować próbki z prędkością 25 Hz przez 3 min za pomocą homogenizatora tkanek (patrz Tabela materiałów).
- Szczelnie zamknij probówki, aby uniknąć rozlania odczynników podczas przetwarzania.
- Pobrać około 1/10 objętości homogenatu do ekstrakcji DNA, qPCR, analiz białkowych lub innych analiz (opcjonalnie). Przechowywać w probówce do mikrocentryfugi lub płytce 96-dołkowej (w zależności od pobranej objętości) do 6 miesięcy w temperaturze -80 °C, jeżeli eksperymenty z ekstrakcji DNA mają zostać przeprowadzone innego dnia. Możliwe jest dłuższe przechowywanie, jednak nie zostało ono przetestowane.
- Przeprowadzić ekstrakcję DNA, używając dowolnego standardowego komercyjnego zestawu do ekstrakcji DNA ssaków (patrz Tabela materiałów) z tkanek, zgodnie z opisem w Literaturze13Oznacz ilość uzyskanego DNA i przechowuj wyekstrahowane DNA w temperaturze -20 °CWłaściwa ilość i jakość DNA do qPCR była obserwowana nawet do 3 lat później.
UWAGA: Ten etap można przeprowadzić na zamrożonym homogenacie w dniu następującym po ekstrakcji metabolitów. - Przeprowadzić qPCR zgodnie z opisem w materiale referencyjnym13przy użyciu 180 ng wyekstrahowanego DNA.
UWAGA: Procedurę tę można przeprowadzić na DNA pobranym w poprzednim dniu i zamrożonym w temperaturze -20 °C.- W przypadku badań nad T. cruzi infekcji należy użyć następujących starterów: ASTCGGCTGATCGTTTTCGA oraz AATTCCTCCAAGCAGCGGATA w celu ilościowego oznaczenia poziomu pasożytów21 oraz następujące startery do normalizacji do poziomów DNA gospodarza: TCCCTCTCATCAGTTCTATGGCCCA oraz CAGCAAGCATCTATGCACTTAGACCCC22 (patrz Tabela materiałów).
UWAGA: Zalecane cykle qPCR są następujące: denaturacja w 95 °C przez 10 min; przeprowadzić 40 cykli w 95 °C przez 30 s, a następnie 58 °C przez 60 s, a na koniec 72 °C przez 60 s. Przeprowadzić analizę krzywej topnienia zgodnie z możliwościami dostępnego termocyklera. Przetworzyć dane metodą ΔΔCt23 w celu uzyskania względnej ilości pasożytów pomiędzy miejscami pobrania próbek. Ilościowe oznaczenie bezwzględne można uzyskać poprzez porównanie wartości ΔΔCt uzyskanych z próbek z krzywą wzorcową wygenerowaną z znanych ilości pasożytów, wprowadzonych do niezinfekowanych próbek tkanek i wyekstrahowanych zgodnie z krokami od 2.2 do 2.2.4.1.
- W przypadku badań nad T. cruzi infekcji należy użyć następujących starterów: ASTCGGCTGATCGTTTTCGA oraz AATTCCTCCAAGCAGCGGATA w celu ilościowego oznaczenia poziomu pasożytów21 oraz następujące startery do normalizacji do poziomów DNA gospodarza: TCCCTCTCATCAGTTCTATGGCCCA oraz CAGCAAGCATCTATGCACTTAGACCCC22 (patrz Tabela materiałów).
- przeprowadzenie charakterystyki odpowiedzi immunologicznych na poziomie białek przy użyciu zestawów do multipleksowego oznaczania cytokin lub standardowych komercyjnych zestawów ELISA (patrz Tabela materiałów) zgodnie z opisem w Literaturze13 na przechowywanym homogenacie.
- Przeprowadzić ekstrakcję DNA, używając dowolnego standardowego komercyjnego zestawu do ekstrakcji DNA ssaków (patrz Tabela materiałów) z tkanek, zgodnie z opisem w Literaturze13Oznacz ilość uzyskanego DNA i przechowuj wyekstrahowane DNA w temperaturze -20 °CWłaściwa ilość i jakość DNA do qPCR była obserwowana nawet do 3 lat później.
- Zachować co najmniej połowę 500 µL objętości homogenizatu do ekstrakcji metabolitów.
- Przeprowadź wodną ekstrakcję metabolitów.
UWAGA: Dobór rozpuszczalnika może zostać dostosowany do właściwości chemicznych analizowanych metabolitów.- Dodać lodowaty metanol klasy LC-MS z dodatkiem 4 µM sulfachlorprydazyny do homogenatu, aby uzyskać końcowe stężenie 50% metanolu z 2 µM sulfachlorpirydyzyny w wodzie.
OSTRZEŻENIE: Metanol jest łatwopalny i niebezpieczny. Należy stosować odpowiednie procedury bezpieczeństwa, w tym pracę w dygestorium lub komorze bezpieczeństwa biologicznego. - Homogenizować próbki w homogenizatorze tkanek przy prędkości 25 Hz przez 3 min. Centryfugować próbki przy 16 000 x g w 4 °C przez 10 min.
- Należy zebrać taką samą objętość supernatantu do płytki 96-dołkowej. Wybraną objętość należy dostosować do najmniejszej łącznej objętości metanolu i wody spośród wszystkich próbek. Jest to frakcja wodna.
- Pozostały nadnadkład wodnego homogenizatu należy odstawić w temperaturze -80 °C jako kopia zapasowa.
- Przechowywać stałą pozostałość na lodzie podczas zbierania supernatantów.
- Odparowywać nadfiltr wodnego ekstraktu do suchości (~3 h lub przez noc). Stosować maksymalną prędkość bez ogrzewania.
- Zamrozić wysuszoną płytkę 96-dołkową w temperaturze -80 °C.
- Dodać lodowaty metanol klasy LC-MS z dodatkiem 4 µM sulfachlorprydazyny do homogenatu, aby uzyskać końcowe stężenie 50% metanolu z 2 µM sulfachlorpirydyzyny w wodzie.
- Przeprowadź ekstrakcję metabolitów organicznych.
UWAGA: Dobór rozpuszczalnika może zostać dostosowany do właściwości chemicznych analizowanych metabolitów.- Dodaj 1,000 µL na 50 mg schłodzonego wcześniej dichlorometanu: metanolu wzbogaconego o 2 µM sulfachlorpirydazyny do osadu stałego z etapu 2.3.4.
UWAGA: Podczas pracy z rozpuszczalnikami należy stosować odpowiednie procedury bezpieczeństwa, w tym prowadzić prace w dygestorium o prawidłowym przepływie powietrza. - Homogenizować próbki w homogenizatorze do tkanek przy prędkości 25 Hz przez 5 min. Odwirować próbki przy 16 000 x g w 4 °C przez 10 min.
- Przenieś równą objętość supernatantu do płytki 96-dołkowej. Wybierz objętość odpowiadającą najmniejszej objętości mieszaniny dichlorometanu i metanolu spośród wszystkich próbek. Jest to frakcja organiczna.
- Przechowywać osad w temperaturze -80 °C jako materiał zapasowy. Pozostałą część ekstraktu organicznego przechowywać w temperaturze -80 °C jako zapas. Pozostawić ekstrakt organiczny do wysuszenia na powietrzu w dygestorium przez noc.
- Zamrozić liofilizowaną płytkę 96-dołkową w temperaturze -80 °C.
- Dodaj 1,000 µL na 50 mg schłodzonego wcześniej dichlorometanu: metanolu wzbogaconego o 2 µM sulfachlorpirydazyny do osadu stałego z etapu 2.3.4.
3. Pozyskiwanie danych LC-MS
- Ekstrakty wodne i organiczne resuspender w 60 µL każdego z 50% metanolu + 2 µM sulfadymetoksyny, a następnie połączyć. Sonicować przez 10 min, następnie centryfugować przez 10 min i przenieść nadosad do czystej płytki 96-dołkowej. Uszczelnić płytkę za pomocą uszczelki do płytek typu zone-free i umieścić ją w autosamplerze LC.
OSTROŻNIE: Podczas pracy z rozpuszczalnikami należy stosować odpowiednie procedury bezpieczeństwa, w tym pracę w wyciągu z odpowiednią prędkością przepływu powietrza. - Podłączyć odpowiednie fazy ruchome do systemu LC (patrz Tabela materiałów).
UWAGA: Dla LC w trybie odwróconej fazy w trybie pozytywnym autorzy zalecają H2O klasy LC-MS + 0,1% kwasu mrówkowego jako fazę ruchomą A oraz acetonitryl klasy LC-MS + 0,1% kwasu mrówkowego jako fazę ruchomą B, przy prędkości przepływu 0,5 mL/min i 7,5-minutowym gradiencie LC. Zalecane stopnie gradientu są zgodne z opublikowanymi w referencji6: 0-1 min, 2% B; 1-2,5 min, liniowy wzrost do 98% B; 2,5-4,5 min, utrzymanie 98% B; 4,5-5,5 min, liniowy spadek do 2% B; 5,5-7,5 min, utrzymanie 2% B. - Upewnić się, że instrument jest czysty. Kalibrować MS w trybie pozytywnym i negatywnym.
- Przeprowadzić ocenę wydajności MS zgodnie z instrukcją dla danego instrumentu.
- Utworzyć sekwencję pomiarową MS.
- Zacząć od 2 próbek ślepych, 2 standardów (mieszanin 6 składników) i 5 połączonych kontroli jakości (QC) w serii rozcieńczeń, zaczynając od objętości wtrysku 2 µL i zwiększając ją stopniowo do 30 µL.
- Zrandomizować kolejność próbek.
- Po każdych 12 próbkach wykonać pomiar próbki ślepej, a następnie połączonej kontroli QC.
- Podłączyć kolumnę LC C8 (wielkość cząstek 1,7 µm, wielkość porów 100 Å, długość 50 x średnica wewnętrzna 2,1 mm) i monitorować pod kątem wycieków oraz nadmiernego ciśnienia wstecznego. Rozwiązać problemy zgodnie ze standardową procedurą operacyjną instrumentu.
- Uruchomić sekwencję pomiarową MS i zebrać dane LC-MS/MS zależne od danych (data-dependent).
UWAGA: Dla instrumentu Q-Exactive Plus MS należy zastosować jonizację przez podgrzewany rozpylacz elektrostatyczny (Heated Electrospray Ionization) i akwizycję MS2 zależną od danych (top 5) w trybie pozytywnym, rozdzielczość 70 000 dla MS1 i 17 500 dla MS2, docelową wartość AGC 1E6 dla MS1 i 2E5 dla MS2, maksymalny czas IT 100 ms dla obu MS1 i MS2, zakres skanowania 100-1500 m/z dla MS1 oraz okno izolacji MS2 wynoszące 1 m/z. Ustawić gaz osłonowy (sheath gas) na 35, gaz pomocniczy (aux gas) na 10 i gaz płuczący (sweep gas) na 0, napięcie rozpylania na 3,8 kV, temperaturę kapilarną na 320 °C, poziom RF S-lens na 50 oraz temperaturę gazu pomocniczego na 350 °C.- Zweryfikować jakość danych: sprawdzić początkowe próbki ślepe (potwierdzić brak głównych pików), standardy (potwierdzić obecność oczekiwanych pików i symetryczny kształt piku) oraz kontrole QC (potwierdzić obecność oczekiwanych pików, ich kształt i oczekiwaną intensywność).
- Okresowo monitorować przebieg pomiaru MS podczas realizacji sekwencji.
- Po zakończeniu pomiarów sprawdzić dane pod kątem pominiętych wtrysków lub innych błędów.
- Przechowywać kolumnę LC zgodnie z zaleceniami producenta. Próbki wyjąć i przechowywać w temperaturze -80 °C.
- Przesłać surowe dane do repozytorium danych.
UWAGA: Zaleca się korzystanie z MassIVE (massive.ucsd.edu), aby umożliwić późniejsze powiązanie z sieciami molekularnymi w celu adnotacji metabolitów24,25.
4. Przetwarzanie danych LC-MS
- Konwertuj pliki surowe do otwartego formatu (.mzXML lub .mzML) przy użyciu programu MSConvert26.
- Prześlij dane surowe oraz dane w formacie mzXML lub mzML do repozytorium danych.
- Wygeneruj tabelę cech. Do tego celu istnieje wiele narzędzi (MZmine, MS-DIAL, openMS, XCMS itp.27,28,29,30).
UWAGA: Zaleca się stosowanie programu MZmine, ponieważ jest on bezpłatny, posiada otwarte źródło i umożliwia bezpośredni import plików mzXML po konwersji przez MSconvert, oferuje graficzny interfejs użytkownika do przetwarzania danych i monitorowania wpływu doboru parametrów oraz umożliwia bezpośredni eksport do GNPS w celu tworzenia sieci molekularnych24.
UWAGA: Należy postępować zgodnie z dokumentacją narzędzia i stosować parametry odpowiednie dla dostępnego urządzenia. Dodatkowe szczegóły znajdują się w Literaturze31.- Wyeksportuj tabelę cech w formacie .csv.
5. Generowanie modelu 3D
- Wykonaj ręcznie model 3D de novo w odpowiedniej skali zgodnie z poniższymi krokami.
- Zrób zdjęcie analizowanego organu.
- Wykonaj następujące czynności w oprogramowaniu SketchUp (patrz Tabela materiałów) zgodnie z poniższym opisem.
- Usuń domyślny obrazek postaci mężczyzny, który pojawia się po otwarciu oprogramowania.
- Kliknij Plik > Importuj, aby zaimportować zdjęcie analizowanych organów.
- Kliknij narzędzie Linie i wybierz opcję Rysowanie odręczne. Użyj narzędzia ołówka, aby obrysować kontury analizowanych organów. Upewnij się, że linia została zamknięta poprzez powrót do punktu startowego. Po pomyślnym zamknięciu linii narysowany obszar zostanie automatycznie zacieniowany.
- Wybierz narzędzie Wypchnij/Pociągnij i pociągnij w górę zacieniowany obszar, aby przekonwertować rysunek z 2D na 3D.
- Usuń zdjęcie organu: wybierz przycisk Gumka, a następnie kliknij prawym przyciskiem myszy na zdjęciu i wybierz Usuń.
- Wyeksportuj plik w formacie .dae: Plik > Eksportuj > Model 3D.
- Zwiększ realizm modelu zgodnie z poniższymi krokami.
- Zaimportuj model do oprogramowania MeshLab (patrz Tabela materiałów): otwórz MeshLab i wybierz Plik > Importuj siatkę. Wybierz model .dae wygenerowany w poprzednim kroku. Pojawi się menu Opcje przed otwarciem. Wybierz OK.
- W menu górnym wybierz Siatka (Wireframe). Następnie wybierz: Filtry > Remeshing, Simplification oraz Reconstruction > Subdivision surfaces: Midpoint. Pozostaw wszystkie wartości domyślne i kliknij dwukrotnie Zastosuj. Sprawdź wizualnie widok siatki modelu, aby upewnić się, że jest on gęsto sfragmentaryzowany. Zamknij okno pop-up.
- Wyeksportuj model w formacie .stl: Plik > Eksportuj siatkę jako, a następnie wybierz STL File Format (*.stl) z rozwijanego menu Typ plików. Kliknij Zapisz. W następnym oknie pop-up wybierz OK.
- Otwórz oprogramowanie Meshmixer (patrz Tabela materiałów). Kliknij przycisk Importuj (+). Wybierz plik .stl wygenerowany w poprzednim kroku. Użyj narzędzi Sculpt > Brushes > Drag oraz Sculpt > Brushes > Inflate, aby wyciągnąć powierzchnie modelu, które wymagają zaokrąglenia.
- Gdy model uzyska pożądany wygląd, zapisz go w formacie .stl: Plik > Eksportuj. Nadaj plikowi dowolną nazwę i wybierz STL Binary Format (*.stl) z rozwijanego menu Zapisz jako typ. Kliknij Zapisz. Jeśli pojawi się okno pop-up, kliknij Kontynuuj.
6. Generowanie wykresu 'ili
- Uzyskaj współrzędne pozycji w modelu 3D, które odpowiadają punktom poboru próbek.
- Otwórz model 3D z kroku 5.1.3.5 w MeshLab oprogramowanie: Plik > Import siatkiWybierz model wygenerowany w kroku 5.1.3.5. Kliknij OK w Obróbka po otwarciu okno wyskakujące
- Aby uzyskać współrzędne x, y i z dla każdego punktu poboru próbek: wybierz Punkty Wyboru narzędzie, a następnie klikaj prawym przyciskiem myszy w regularnych odstępach na powierzchni modelu 3D. Po wybraniu wszystkich pożądanych współrzędnych kliknij najwyższy Zapisz przycisk w Formularz okno wyskakujące
UWAGA: Operacja ta wyeksportuje współrzędne w formacie pliku .pp. Plik ten można otworzyć w programie do arkuszy kalkulacyjnych. - W programie arkusza kalkulacyjnego: Otwórz plik .pp wygenerowany w kroku 6.1.2. Dostosuj wyświetlanie danych za pomocą Dane > Tekst do kolumn > WyodrębnionyKliknij w Daleja następnie wybrać Przestrzeńi kliknij w Zakończ.
- Przekształć dane tak, aby w komórkach arkusza pozostały jedynie wartości liczbowe, wybierając Strona główna > Znajdź & Wybierz > WymieńW polu Znajdź wpisz: y=". Pole Zamień na pozostaw puste. Kliknij Zamień wszystko, a następnie na Proszę podać tekst źródłowy do tłumaczenia.Powtórzyć dla x=" a dla z=" oraz dla " />Wartości są teraz gotowe do kroku 6.2.
- Przygotuj tabelę cech ili. Metoda ta została zaadaptowana z publikacji Reference16.
- W programie arkusza kalkulacyjnego przygotuj tabelę cech. Wiersze powinny odpowiadać poszczególnym pozycjom, a kolumny danym.
UWAGA: Pierwsza kolumna musi zawierać nazwę pozycji (nazwę próbki), a następnie współrzędne x, y i z miejsc pobierania próbek uzyskane w kroku 6.1.2 (z nagłówkami kolumn x, y, z). Piąta kolumna musi nosić tytuł „radius”. - Wklej odpowiednie metadane oraz wartości obfitości cech metabolitów w kolejnych kolumnach arkusza kalkulacyjnego.
- W kolumnie „radius” należy wprowadzić pożądaną wielkość punktów próbkowania, które mają zostać zwizualizowane na modelu. Wartości promienia należy wyznaczyć empirycznie: jako wartość domyślną wprowadź 1, a następnie w kroku 6.3 oceń, czy konieczna jest korekta promienia lub współrzędnych. Plik należy zapisać w formacie .csv (Plik > Zapisz jako), a następnie wybierz CSV (rozdzielane przecinkami) (*.csv) w menu rozwijanym. Nazwij plik według uznania. Kliknij w Zapisz.
- W programie arkusza kalkulacyjnego przygotuj tabelę cech. Wiersze powinny odpowiadać poszczególnym pozycjom, a kolumny danym.
- Otwórz dane w programie 'ili (oprogramowanie opracowane przez16).
- Otwórz stronę internetową 'ili (ili.embl.de). Wybierz PowierzchniaPrzeciągnij i upuść utworzony model 3D do okna przeglądarki. Przeciągnij i upuść utworzoną tabelę cech do tego samego okna przeglądarki.
- Użyj legendy w prawym dolnym rogu, aby rzutować wybraną kolumnę danych na model 3D. Upewnij się, że punkty i promienie wybrane w kroku 6.2.1 odpowiadają miejscom pobierania prób. W razie potrzeby skoryguj wartości w tabeli cech lub wybierz dodatkowe współrzędne w programie MeshLab (patrz krok 6.1.2).
UWAGA: Wizualizację można również poprawić, wybierając Plamy > Przezroczystość krawędzi oraz ustawienie suwaka na wartość maksymalną. - Kolejno wybieraj każdą kolumnę danych, aby ocenić rozkład tej cechy metabolitu na modelu 3D.
UWAGA: To podejście może być również wykorzystane do wizualizacji jedynie wybranych, interesujących cech metabolitów, na przykład tych z wartością p < 0,05 lub określona krotność zmiany (fold change) między próbkami zakażonymi a niezakażonymi, zgodnie z wynikami uzyskanymi w zewnętrznych narzędziach analizy statystycznej. Cechy do wizualizacji mogą być również wybrane spoza „ili” za pomocą metod uczenia maszynowego, takich jak lasy losowe (random forest).
- Wykonaj wizualizację danych w skali liniowej/logarytmicznej zgodnie z poniższymi krokami.
- Używając Mapowanie zakładka w prawym górnym rogu strony, wybierz Liniowy lub Logarytmiczny w Skala menu rozwijane
- W przypadku wizualizacji wielu cech należy ustawić taką samą skalę dla wszystkich wykresów.
UWAGA: Strona internetowa automatycznie wybiera wartości minimalną i maksymalną dla każdej kolumny danych w celu ich wyświetlenia. - Aby ustawić skalę ręcznie, odznacz opcję Auto Min/Max opcja i wprowadź żądane skalowanie. Wszystkie dane będą teraz wyświetlane w tej samej skali.
- Zmień skalę kolorów danych (skala szarości, niebiesko-biało-czerwona itp.).
- Zmień skalę kolorów na pożądany schemat kolorystyczny w Mapowanie menu za pomocą Mapa kolorów menu rozwijane. Upewnij się, że wybrany schemat kolorystyczny jest przyjazny dla osób z zaburzeniami rozpoznawania barw.
- Aby zmienić kolor modelu 3D lub kolor tła, należy użyć Kolor i Wstęp opcje w menu 3D.
- Ukryj osie 3D, odznaczając opcję Pokaż pochodzenie pole w menu 3D.
- Zapisz obraz, wykonując zrzut ekranu, korzystając z narzędzia Wycinanie lub używając skrótu klawiszowego Ctrl + S w systemie Windows lub Linux i
 + S w systemie OS X.
Wyniki
Liczba uzyskanych cech metabolitów zależy od analizowanego rodzaju tkanki oraz parametrów przetwarzania danych. Na przykład protokół ten został wykorzystany do analizy przestrzennego wpływu zakażenia T. cruzi na metabolom przewodu pokarmowego w mysim modelu zakażenia T. cruzi. Wcześniejszym pracach samce myszy C3H/HeJ otrzymały dootrzewnowo iniekcję 1 000 pasożytów T. cruzi szczepu CL + luc32,6. Zwierzęta uśmiercono 12 lub 89 dni po zakażeniu, a następnie przeprowadzono analizę kartografii chemicznej 13 sąsiednich segmentów przewodu pokarmowego zgodnie z opisem w niniejszym protokole. Analiza ta pozwoliła na stworzenie tabeli zawierającej 5 502 cechy, które następnie zwizualizowano w 3D, stosując kroki opisane w tym protokole. Podejście to umożliwia wizualizację cech metabolitów u poszczególnych zwierząt, które wykazują wysokie stężenie w miejscach dużego obciążenia pasożytami (kynurenina, Rycina 2B vs. obciążenie pasożytami, Rycina 2A), metabolitów o zróżnicowanym rozkładzie w obrębie regionów tkankowych (glutamina, Rycina 2C) oraz cech metabolitów występujących na porównywalnych poziomach w jelicie cienkim i grubym (LPE 16:0 Rycina 2D). Kynureninę wybrano do wizualizacji ze względu na jej znaną zależność od stanu zapalnego oraz wcześniejsze publikacje dotyczące zdolności metabolitów pochodnych kynureniny do regulowania obciążenia T. cruzi33. Modele uczenia maszynowego oparte na random forest wykazały wcześniej powiązanie między poziomami kynureniny a statusem zakażenia6. Glutaminę wybrano do wizualizacji na podstawie wcześniejszych publikacji wykazujących związek między dostępnością glutaminy in vitro a wrażliwością T. cruzi na leki34. Zróżnicowany rozkład potwierdzono za pomocą regresji logistycznej, p < 0.05. LPE 16:0 wybrano po wizualnej inspekcji danych w celu zidentyfikowania cech metabolitów występujących na porównywalnych poziomach w różnych miejscach tkankowych.
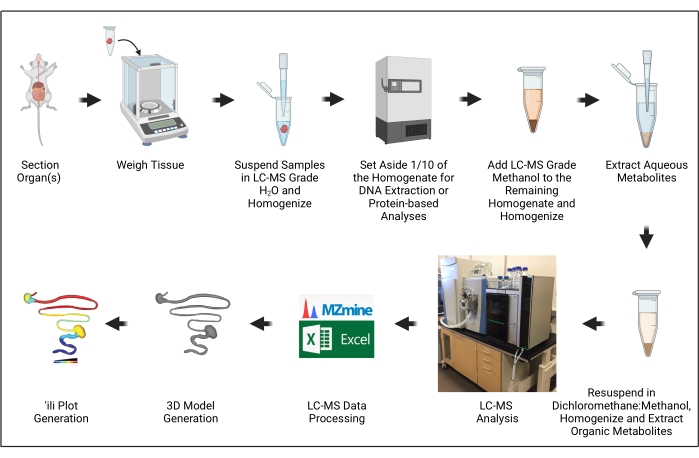
Rysunek 1: Przegląd protokołu. Ilustracja została stworzona za pomocą BioRender.com. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
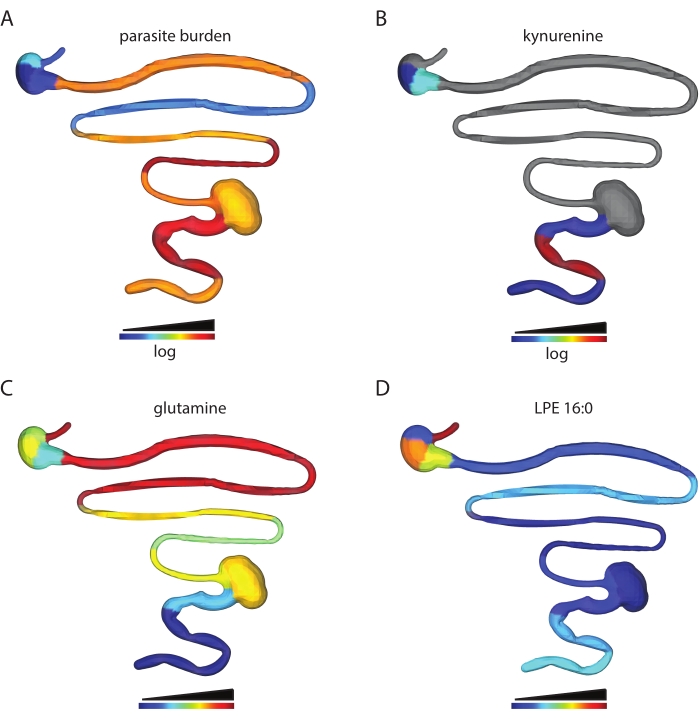
Rysunek 2: Analiza kartografii chemicznej. Samcom myszom C3H/HeJ wstrzyknięto domięśniowo 1 000 pasożytów T. cruzi CL+luc32. Zwierzęta uśmiercono 12 lub 89 dni po infekcji, a następnie pobrano i systematycznie podzielono trakt pokarmowy (krok 1)6. Metabolity wyekstrahowano zgodnie z krokiem 2 i przeanalizowano za pomocą LC-MS/MS. Generowanie modelu 3D wykonano przy użyciu oprogramowania SketchUp (krok 5), a dane naniesiono w 3D zgodnie z krokiem 6. (A) Rozkład pasożytów u konkretnej myszy, 12 dni po infekcji. (B) Rozkład metabolitu kynureniny u tej samej myszy, 12 dni po infekcji. (C) Średni rozkład glutaminy u zainfekowanych myszy, 89 dni po infekcji. (D) Porównywalne poziomy m/z 454,292, czas retencji 2,929 min, zidentyfikowany jako 2-heksadekanoylo-sn-glycero-3-fosfoetanolamina (LPE 16:0), u tej samej myszy co na rysunkach A i B, w jelicie cienkim i grubym. Próbki i dane wygenerowano w6. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Dyskusja
Zrozumienie zakażeń trypanosomatydem ma zasadnicze znaczenie dla opracowywania nowych leków i metod leczenia. Ta metoda kartografii chemicznej jest wyjątkowo gotowa do uzyskania praktycznych informacji na temat związku między metabolizmem a patogenezą choroby trypanosomatidów, odpowiadając w ten sposób na tę potrzebę translacyjną.
Podczas ekstrakcji metabolitów i analiz MS zaleca się stosowanie wyłącznie rozpuszczalników klasy LC-MS, aby zmniejszyć zanieczyszczenie tła. Tam, gdzie to możliwe, należy unikać zanieczyszczeń polimerowych35, powszechnie pochodzących z folii parafinowej i/lub innych tworzyw sztucznych 36,37,38. W szczególności nigdy nie wolno używać parafilmu. Aspekty te są kluczowe, ponieważ jakość danych LC-MS zależy od materiałów użytych podczas przygotowania próbki i ekstrakcji metabolitów. Jakość danych powinna być zapewniona przed wygenerowaniem wykresów. Ponadto generowanie tych kompleksowych przestrzennych map metabolomicznych wymaga pobrania wszystkich próbek przyległych tkanek i ekstrakcji metabolitów ze wszystkich pobranych próbek, aby uniknąć luk w tych mapach. W związku z tym należy wziąć pod uwagę i odpowiednio zaplanować procedury pobierania, logistykę ekstrakcji metabolitów i analizy LC-MS oraz koszty.
Protokół ten może być modyfikowany w celu zaspokojenia potrzeb użytkownika na wiele sposobów. Na przykład polarność i rozpuszczalność rozpuszczalników stosowanych podczas ekstrakcji metabolitów będzie miała wpływ na to, jakie metabolity zostaną wykryte39. Aby zmaksymalizować różnorodność wykrywanych cech metabolitów w nieukierunkowanych analizach kartografii chemicznej, zaleca się połączenie wielu etapów ekstrakcji i rozpuszczalników. Na przykład metoda ta wykorzystuje dichlorometan, metanol i wodę jako rozpuszczalniki ekstrakcyjne, ponieważ umożliwiają one dokładne wykrywanie cząsteczek niepolarnych i polarnych 20,40. Jednak rozpuszczalniki te nie są uniwersalnie odpowiednie dla każdego eksperymentu ze stwardnieniem rozsianym, a naukowcy powinni wybierać rozpuszczalniki ekstrakcyjne w oparciu o cele swojego projektu. Podobnie, można stosować różne warunki LC-MS/MS, takie jak zastąpienie chromatografii z odwróconymi fazami chromatografią z normalnymi fazami. Alternatywne kolumny mogą być również używane do zbierania danych w odwróconych fazach zamiast chromatografii C8, chociaż empirycznie chromatografia C8 jest bardziej odporna na lipidy tkankowe i ma niższą częstotliwość zatykania. Koncepcyjnie protokoły te mogą być również stosowane do innych metod spektrometrii mas, takich jak chromatografia gazowa-spektrometria mas itp.
Alternatywnym podejściem jest obrazowanie za pomocą spektrometrii mas. Rzeczywiście, w przeciwieństwie do metod obrazowania opartych na spektrometrii mas, chromatografia cieczowa ze spektrometrią mas z natury nie zachowuje informacji przestrzennej10. Podejścia oparte na kartografii chemicznej wypełniają tę lukę, uwzględniając lokalizację pobierania próbek w momencie konceptualizacji projektu, w metadanych próbki oraz na etapach przetwarzania danych. Mocną stroną tego podejścia do kartografii chemicznej, w przeciwieństwie do obrazowania spektrometrii mas, jest możliwość dostarczania pewnych adnotacji (pewność adnotacji poziomu 1 lub poziomu 2 Metabolomics Standards Initiative41), w przeciwieństwie do obrazowania spektrometrii mas, gdzie większość zastosowań opiera się na dokładnej masie tylko do adnotacji. Obrazowanie za pomocą spektrometrii mas umożliwi precyzyjne mapowanie przestrzenne, czasami aż do poziomu pojedynczej komórki, np. 42,43. W przeciwieństwie do tego, podejścia kartografii chemicznej umożliwiają mapowanie dystrybucji metabolitów między narządami na dużą skalę bez konieczności posiadania wysoce specjalistycznych umiejętności kriosekcji na całych zwierzętach. Kartografia chemiczna dostarcza dowodów uzupełniających dla wielu opracowywanych podejść transkryptomicznych przestrzennych, np.44, z tą zaletą, że skupia się na "warstwie omicznej najbliższej fenotypowi"45. Alternatywne metody kwantyfikacji obciążenia pasożytami obejmują pomiar bioluminescencji w czasie pobierania próbki6. Można również pobrać drobne segmenty, aby umożliwić mikroskopię konfokalną lub elektronową w celu oceny miejscowego obciążenia pasożytami i uszkodzeń tkanek. Homogenat wodny, który jest używany do ilościowego oznaczania cytokin w tym protokole i wcześniejszych publikacjach13, może być również wykorzystany do ilościowego określenia markerów uszkodzenia tkanek opartych na białkach.
Istnieje również wiele sposobów uzyskiwania modeli 3D odpowiednich do wykreślania wynikowych danych LC-MS. Oprócz sugerowanej tutaj metody, modele można kupić gotowe od różnych sprzedawców internetowych. Upewnij się, że warunki użytkowania są zgodne z zamierzonym użytkowaniem, zwłaszcza w odniesieniu do publikacji. Modele dużych narządów mogą być generowane de novo za pomocą skanerów 3D zgodnie z instrukcjami skanera. Istnieją alternatywy, takie jak MATLAB, do generowania i wizualizacji modeli 3D dla kartografii chemicznej46, ale zostały one przede wszystkim wdrożone przed opracowaniem 'ili16. MATLAB to pakiet narzędzi do analizy i programowania danych oferujący szeroką gamę aplikacji w wielu dziedzinach. Jednak MATLAB nie jest ani darmowy, ani open-source i wymaga znajomości interfejsów MATLAB, zwłaszcza biorąc pod uwagę, że MATLAB nie został opracowany do przetwarzania danych spektrometrii mas. Alternatywy tej proponowanej metody, a mianowicie SketchUp, Meshlab i 'ili, są swobodnie dostępne, przyjazne dla użytkownika i oferują podobne funkcje jak MATLAB do celów kartografii chemicznej.
Metoda ta jest skuteczna w odniesieniu do przygotowania próbki i ekstrakcji metabolitów. Rozwiązywanie problemów jest najczęściej konieczne na etapie akwizycji danych LC-MS. Wykracza to poza zakres tego artykułu. Czytelników kierujemy do znakomitych publikacji na temat rozwiązywania problemów z akwizycją danych LC-MS, w tym20,47. Podobnie, złożoność adnotacji metabolitów wykracza poza zakres skupienia się tej metody na generowaniu modeli 3D. Przydatne źródła na ten temat to 24,25,48,49.
Chociaż metoda ta skutecznie bada patogenezę choroby, istnieją ograniczenia tego podejścia, z których niektóre są powszechne w każdym eksperymencie metabolomicznym. Jednym z takich ograniczeń jest niski współczynnik adnotacji cech LC-MS50, który jest zależny od dostępności i jakości referencyjnych bibliotek spektralnych. Kolejnym ograniczeniem jest to, że protokół ten nie zachowuje mRNA ze względu na niekompatybilność odczynników do konserwacji RNA, takich jak RNAlater, z analizą LC-MS/MS. Jednak jakość białka jest odpowiednia do dalszych analiz, a zatem może zastąpić analizy oparte na mRNA.
Podejście kartografii chemicznej do patogenezy infekcji bezpośrednio odzwierciedla, w jaki sposób infekcje bakteryjne, wirusowe lub pasożytnicze rozwijają się w układach narządów i powodują miejscową chorobę. Analiza tych regionalnych podpróbek i generowanie modeli 3D ostatecznie pokazuje, w jaki sposób metabolity funkcjonują w przestrzeni trójwymiarowej, rzucając światło na te wcześniej nierozpoznane wymiary przestrzenne biologii molekularnej. Korzystając z tego protokołu, na przykład, lokalizacja metabolitów została porównana z obciążeniem pasożytem Trypanosoma cruzi. Wyniki wyjaśniły związek między patogenem a tkanką gospodarza, a także wykazały dynamikę metaboliczną progresji objawów choroby Chagasa6. Metody kartografii chemicznej zostały również zastosowane do różnych tematów, takich jak interakcja między człowiekiem a środowiskiem zbudowanym przez człowieka 51,52,53, skład chemiczny układów narządów, takich jak ludzka skóra 46 i płuca 54 oraz metabolizm roślin i interakcje środowiskowe55. Przyszłe zastosowania mogą obejmować ocenę miejscowej tolerancji i odporności na choroby lub związku między lokalnymi poziomami metabolitów, tropizmem patogenów i tropizmem chorobowym w modelach innych niż zakażenie trypanosomatidami. Podejście to powinno mieć również szerokie zastosowanie w celu rozszerzenia obecnych protokołów farmakokinetycznych, w celu oceny związku między lokalnymi poziomami leków w tkankach a metabolizmem leków w porównaniu z ogólnym kontekstem metabolicznym, uszkodzeniem tkanek i usuwaniem patogenów. Ogólnie rzecz biorąc, kartografia chemiczna pozwala na unikalną eksplorację rozkładu metabolitów w różnych typach próbek, z zastosowaniami obejmującymi patogenezę chorób, zdrowie ludzkie, interakcje człowiek-środowisko i dynamikę mikrobiologiczną.
Oświadczenia
Brak konfliktów interesów do zgłoszenia.
Podziękowania
Laura-Isobel McCall, PhD, posiada nagrodę Badaczy w dziedzinie Patogenezy Chorób Zakaźnych przyznaną przez Burroughs Wellcome Fund. Autorzy pragną ponadto podziękować za wsparcie ze strony nagrody NIH numer R21AI148886, pilotażowego grantu z Oklahoma Center for Respiratory and Infectious Diseases (OCRID) w ramach nagrody NIH numer P20GM103648 oraz funduszy na rozpoczęcie działalności z University of Oklahoma (dla LIM). Wyłączną odpowiedzialność za treść ponoszą autorzy i niekoniecznie reprezentują one oficjalne poglądy fundatorów. Autorzy pragną również podziękować twórcom narzędzi wykorzystywanych w tym protokole. W stosownych przypadkach cytowano wszystkie istotne publikacje.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Probówki Eppendorf 1,5 ml | NA | NA dowolnej marki, w miarę dostępności | |
| Butelka 1 L, pyrex | NA | NA dowolna marka, w miarę dostępności | |
| Butla z podziałką 1 L, pyrex | NA | NA dowolna marka, w miarę dostępności | |
| Probówki Eppendorf SafeLock 2 ml | VWR | 20901-540 | używać odpowiedniego modelu probówki dla dostępnego homogenizatora tkanek |
| Model 3D (generowany de-novo zgodnie z krokami protokołu lub zakupiony) | NA | NA | do badanego systemu |
| Koralik 5 mm ze stali nierdzewnej | Qiagen | 69989 | |
| 96-dołkowa | płytka Fisher | 3252449 | |
| AATTCCTCCAAGCAGCGGATA primer | NA | NA | dowolna marka, w miarę dostępności; opublikowane w Piron, M. i wsp. Opracowanie testu PCR w czasie rzeczywistym do wykrywania Trypanosoma cruzi w próbkach krwi. Acta tropica. art. 103 ust. 3, art. 195 ust. 195; 200 (2007). |
| waga analityczna | NA | dowolnej | marki, w miarę dostępności |
| Starter ASTCGGCTGATCGTTTTCGA | NA | NA | dowolnej marki, w miarę dostępności; opublikowane w Piron, M. et al. Opracowanie testu PCR w czasie rzeczywistym do wykrywania Trypanosoma cruzi w próbkach krwi. Acta tropica. art. 103 ust. 3, art. 195 ust. 195; 200 (2007). |
| wirówka stołowa z mikrowirówką, probówką sokoła i płytką 96-dołkową | NA | NA dowolnej marki, w miarę dostępności | |
| Komora bezpieczeństwa biologicznego | NA | NA | klasa II, typ A2; dowolna marka, w miarę dostępności |
| CAGCAAGCATCTATGCACTTAG Starter ACCCC | NA | NA | dowolna marka, w miarę dostępności; opublikowane w Cummings, K.L., Tarleton, R.L. Szybkie oznaczanie ilościowe Trypanosoma cruzi w tkance gospodarza przez PCR w czasie rzeczywistym. Parazytologia molekularna i biochemiczna. art. 129 ust. 1, art. 53 ust. 53; 59 (2003). |
| kamera | NA | NA | dowolnej marki, w miarę dostępności. Kamera w telefonie komórkowym jest odpowiednia dla tego protokołu |
| system obrazowania z funkcją chemiluminescencji | NA | NA | dowolny system, jako dostępny |
| waciki | NA | NA dowolna marka, jako dostępne | |
| rękawice kriogeniczne | VWR | 97008-208 | zastąp na dowolną markę, jako dostępne |
| nożyczki preparacyjne | NA | NA | dowolna marka, jako dostępne |
| suchy lód | NA | NA | dowolna marka, jako dostępne |
| kleszcze o ekstra długości | NA | NA | dowolna marka, jako dostępna |
| lodówka łatwopalna | NA | NA | dowolna marka, jako dostępne |
| pojemniki do przechowywania zamrażarek na probówki do mikrowirówek | NA | NA | dowolna marka, jako dostępna |
| dygestorium | NA | NA | dowolna marka, jako dostępna |
| masa o wysokiej rozdzielczości spektrometr | NA | NA | dowolnej marki, w miarę dostępności, np. ThermoFisher Q-Exactive Plus (numer katalogowy 0726030) |
| wiaderko na lód | NA | NA dowolnej marki, w miarę dostępności | |
| oprogramowanie NA | ili.embl.de | NA | |
| isoflurane | Covetrus | 29405 | |
| duże tupperware | NA | NA | dowolnej marki, w miarę dostępności; wystarczająco duże, aby wygodnie pomieścić mysz, wacik |
| acetonitryl klasy LC-MS | Fisher Optima | A955-4 | |
| Dicholoometan klasy LC-MS | Fisher Optima | D151-4 | |
| Kwas mrówkowy klasy LC-MS | Fisher Optima | A11750 | |
| Metanol klasy LC-MS | Fisher Optima | A456-4 | |
| Woda klasy LC-MS | Fisher Optima | W64 | |
| Kolumna do chromatografii cieczowej | Phenomenex | 00B-4499-AN | może zostać zmieniona na inne marki i modele, stosownie do metabolitów będących przedmiotem zainteresowania, |
| wkład ochronny kolumny do chromatografii cieczowej | Phenomenex | AJ0-8784 | może zostać zmieniony na inne marki i modele, zgodnie z potrzebami metabolitów |
| Uchwyt kolumny do chromatografii cieczowej | Phenomenex | AJ0-9000 | może zostać zmieniony na inne marki i modele, odpowiednio dla metabolitów będących przedmiotem zainteresowania: |
| ciekły azot | NA | , dowolna marka, w miarę dostępności, | |
| lucyferyna | Goldbio | LUCK-1G | |
| , oprogramowanie MeshLab | https://www.meshlab.net/ | NA | |
| oprogramowanie Meshmixer | https://www.meshmixer.com/ | NA | |
| MS calibrant | NA, | NA | odpowiedni dla dostępnego instrumentu |
| Oprogramowanie do przetwarzania danych MS | NA | NA | dostępnych jest wiele opcji; autorzy polecają oprogramowanie MZmine |
| MSConvert | http://proteowizard.sourceforge.net/ | NA | |
| Nanodrop | ThermoFisher | ND-ONE-W | inne modele nanodrop są również odpowiednie |
| końcówki do pipet p1000 | NA | NA NA | użyj odpowiedniej marki, aby pasowały do dostępnych pipet |
| P1000 Pipetor | NA | NA dowolna marka, w miarę dostępności | |
| P20 końcówki do pipet | NA | NA | Użyj odpowiedniej marki, aby pasował do dostępnych pipet |
| P20 Pipeta | NA | NA dowolna marka, w miarę dostępności | |
| P200 Końcówki do pipet | NA | NA | Użyj odpowiedniej marki, aby dopasować dostępne pipety |
| P200 pipettor | NA | NA dowolna marka, w miarę dostępności | |
| środki ochrony osobistej (rękawice, fartuch laboratoryjny, okulary/gogle ochronne; osłona twarzy) | NA | NA | dowolna marka, jako dostępna |
| Q-Plex Mouse Cytokine - Screen (16-Plex) | Quansys biosciences | 110949MS | może zastąpić innymi testami cytokin na bazie białek, takimi jak inne komercyjne zestawy cytokin ELISA |
| Quick-DNA Miniprep Plus Kit (200 preparatów) | Zymo | D4069 | zastąp dowolnym marką zestawu do ekstrakcji DNA ssaków, ponieważ jest dostępny |
| termocykler w czasie rzeczywistym | NA | NA dowolnej marki, jako dostępny | |
| solniczka lub zaparzacz do herbaty | NA | NA | dowolnej marki; aby zawierał wacik nasączony izofluranem i zapobiegał kontaktowi ze skórą myszy |
| Oprogramowanie SketchUp | https://www.sketchup.com/ | ||
| próbka kleszcze | NA | NA | dowolnej marki, jako dostępne |
| speedvac z probówką do mikrowirówek i płytką 96-dołkową | NA | NA dowolna marka, jako dostępne | |
| oprogramowanie do arkuszy kalkulacyjnych | https://www.microsoft.com/en-us/microsoft-365/excel | NA | można zastąpić innym oprogramowaniem do zarządzania arkuszami kalkulacyjnymi, w zależności od przypadku |
| sulfachloropirydazyna | Sigma | S9882-100G | |
| sulfadymitoksyna | Sigma | S7007-10G | |
| Sybr zielona mieszanina reakcyjna qPCR | Fisher | A25780 | może zastąpić innymi mieszankami reakcyjnymi Sybr green qPCR, zgodnie z potrzebami |
| TCCCTCTCATCAGTTCTAT starter GGCCCA | NA | NA dowolnej marce, zgodnie z dostępnością; opublikowane w Cummings, K.L., Tarleton, R.L. Szybka ocena ilościowa Trypanosoma cruzi w tkance gospodarza metodą PCR w czasie rzeczywistym. Parazytologia molekularna i biochemiczna. art. 129 ust. 1, art. 53 ust. 53; 59 (2003). | |
| homogenizator tkankowy | NA | NA | dowolnej marki, w zależności od dostępności, np. Qiagen TissueLyser II, numer katalogowy 85300, z zestawem adapterów TissueLyser (2 x 24), numer katalogowy 69982 |
| próbki tkanek | NA | NA z | odpowiedniego modelu infekcji |
| Dozownik jednokulkowy TissueLyser | Qiagen | 69965 | |
| UHPLC | NA | BRAK | dowolnej marki, w miarę dostępności, np. ThermoFisher Vanquish (numer katalogowy IQLAAAGABHFAPUMBHV) |
| zamrażarka ultraniskotemperaturowa (-80) | NA | NA | dowolna marka, w miarę dostępności |
| kąpiel ultradźwiękowa | NA | NA dowolny system, jako dostępny | |
| mokry lód | NA | dowolna marka, jako dostępna | |
| bezstrefowa folia uszczelniająca | VWR& | nbsp; Nr kat. 490007-390 |
Bibliografia
- McCall, L. -I., et al. Adaptation of Leishmania donovani to and visceral environments: in vivo selection and proteomic analysis. Journal of Proteome Research. 14 (2), 1033-1059 (2015).
- McCall, L. -I., Zhang, W. -W., Matlashewski, G. Determinants for the development of visceral leishmaniasis disease. PLoS Pathogens. 9 (1), 1003053(2013).
- de Castro Neto, A. L., da Silveira, J. F., Mortara, R. A. Comparative analysis of virulence mechanisms of trypanosomatids pathogenic to humans. Frontiers in Cellular and Infection Microbiology. 11, 669079(2021).
- Franco, J. R., Simarro, P. P., Diarra, A., Jannin, J. G. Epidemiology of human African trypanosomiasis. Clinical Epidemiology. 6, 257-275 (2014).
- Ottilie, S., et al. Rapid chagas disease drug target discovery using directed evolution in drug-sensitive yeast. ACS Chemical Biology. 12 (2), 422-434 (2017).
- Hossain, E., et al. Mapping of host-parasite-microbiome interactions reveals metabolic determinants of tropism and tolerance in Chagas disease. Science Advances. 6 (30), (2020).
- Parab, A. R., McCall, L. -I. Tryp-ing up metabolism: Role of metabolic adaptations in kinetoplastid disease pathogenesis. Infection and Immunity. 89 (4), (2021).
- Lewis, C. M., McCall, L. -I., Sharp, R. R., Spicer, P. G. Ethical priority of the most actionable system of biomolecules: the metabolome. American Journal of Physical Anthropology. 171 (2), 177-181 (2020).
- Liu, Z., Ulrich vonBargen, R., McCall, L. I. Central role of metabolism in Trypanosoma cruzi tropism and Chagas disease pathogenesis. Current Opinion in Microbiology. 63, 204-209 (2021).
- Newsom, S. N., McCall, L. -I. Metabolomics: Eavesdropping on silent conversations between hosts and their unwelcome guests. PLoS Pathogens. 14 (4), 1006926(2018).
- Wishart, D. S., et al. HMDB: the Human Metabolome Database. Nucleic Acids Research. 35, Database issue 521-526 (2007).
- Dean, D. A., et al. Spatial metabolomics identifies localized chemical changes in heart tissue during chronic cardiac Chagas disease. PLoS Neglected Tropical Diseases. 15 (10), 0009819(2021).
- McCall, L. -I., et al. Mass spectrometry-based chemical cartography of a cardiac parasitic infection. Analytical Chemistry. 89 (19), 10414-10421 (2017).
- Hoffman, K., et al. Alterations to the cardiac metabolome induced by chronic infection relate to the degree of cardiac pathology. ACS Infectious Diseases. 7 (6), 1638-1649 (2021).
- Parab, A. R., et al. Dysregulation of glycerophosphocholines in the cutaneous lesion caused by Leishmania major in experimental murine models. Pathogens. 10 (5), 593(2021).
- Protsyuk, I., et al. 3D molecular cartography using LC-MS facilitated by Optimus and 'ili software. Nature Protocols. 13 (1), 134-154 (2018).
- McCall, L. -I., et al. Targeting ergosterol biosynthesis in Leishmania donovani: Essentiality of Sterol 14alpha-demethylase. PLOS Neglected Tropical Diseases. 9 (3), 0003588(2015).
- Tear, W. F., et al. Selectivity and physicochemical optimization of repurposed Pyrazolo[1,5-]pyridazines for the treatment of human African trypanosomiasis. Journal of Medicinal Chemistry. 63 (2), 756-783 (2020).
- Klug, D. M., et al. Hit-to-lead optimization of benzoxazepinoindazoles as human African trypanosomiasis therapeutics. Journal of Medicinal Chemistry. 63 (5), 2527-2546 (2020).
- Want, E. J., et al. Global metabolic profiling of animal and human tissues via UPLC-MS. Nature Protocols. 8 (1), 17-32 (2013).
- Piron, M., et al. Development of a real-time PCR assay for Trypanosoma cruzi detection in blood samples. Acta Tropica. 103 (3), 195-200 (2007).
- Cummings, K. L., Tarleton, R. L. Rapid quantitation of Trypanosoma cruzi in host tissue by real-time PCR. Molecular and Biochemical Parasitology. 129 (1), 53-59 (2003).
- Livak, K. J., Schmittgen, T. D. Analysis of relative gene expression data using real-time quantitative PCR and the 2−ΔΔCT method. Methods. 25 (4), 402-408 (2001).
- Nothias, L. -F., et al. Feature-based molecular networking in the GNPS analysis environment. Nature Methods. 17 (9), 905-908 (2020).
- Wang, M., et al. Sharing and community curation of mass spectrometry data with global natural products social molecular networking. Nature Biotechnology. 34 (8), 828-837 (2016).
- Chambers, M. C., et al. A cross-platform toolkit for mass spectrometry and proteomics. Nature Biotechnology. 30 (10), 918-920 (2012).
- Tsugawa, H., et al. MS-DIAL: data-independent MS/MS deconvolution for comprehensive metabolome analysis. Nature Methods. 12 (6), 523-526 (2015).
- Sturm, M., et al. OpenMS - an open-source software framework for mass spectrometry. BMC Bioinformatics. 9, 163(2008).
- Pluskal, T., Castillo, S., Villar-Briones, A., Oresic, M. MZmine 2: modular framework for processing, visualizing, and analyzing mass spectrometry-based molecular profile data. BMC Bioinformatics. 11, 395(2010).
- Smith, C. A., Want, E. J., O'Maille, G., Abagyan, R., Siuzdak, G. XCMS: processing mass spectrometry data for metabolite profiling using nonlinear peak alignment, matching, and identification. Analytical Chemistry. 78 (3), 779-787 (2006).
- FBMN with MZmine. , Available from: https://ccms-ucsd.github.io/GNPSDocumentation/featurebasedmolecularnetworking-with-mzmine2/ (2021).
- Lewis, M. D., et al. Bioluminescence imaging of chronic Trypanosoma cruzi infections reveals tissue-specific parasite dynamics and heart disease in the absence of locally persistent infection. Cellular Microbiology. 16 (9), 1285-1300 (2014).
- Knubel, C. P., et al. 3-Hydroxy kynurenine treatment controls T. cruzi replication and the inflammatory pathology preventing the clinical symptoms of chronic Chagas disease. PloS One. 6 (10), 26550(2011).
- Dumoulin, P. C., Vollrath, J., Tomko, S. S., Wang, J. X., Burleigh, B. Glutamine metabolism modulates azole susceptibility in amastigotes. eLife. 9, (2020).
- Keller, B. O., Sui, J., Young, A. B., Whittal, R. M. Interferences and contaminants encountered in modern mass spectrometry. Analytica Chimica Acta. 627 (1), 71-81 (2008).
- Weaver, R., Riley, R. J. Identification and reduction of ion suppression effects on pharmacokinetic parameters by polyethylene glycol 400. Rapid Communications in Mass Spectrometry: RCM. 20 (17), 2559-2564 (2006).
- Larger, P. J., Breda, M., Fraier, D., Hughes, H., James, C. A. Ion-suppression effects in liquid chromatography-tandem mass spectrometry due to a formulation agent, a case study in drug discovery bioanalysis. Journal of Pharmaceutical and Biomedical Analysis. 39 (1-2), 206-216 (2005).
- Furey, A., Moriarty, M., Bane, V., Kinsella, B., Lehane, M. Ion suppression; a critical review on causes, evaluation, prevention and applications. Talanta. 115, 104-122 (2013).
- Lu, W., et al. Metabolite measurement: Pitfalls to avoid and practices to follow. Annual Review of Biochemistry. 86, 277-304 (2017).
- Masson, P., Alves, A. C., Ebbels, T. M. D., Nicholson, J. K., Want, E. J. Optimization and evaluation of metabolite extraction protocols for untargeted metabolic profiling of liver samples by UPLC-MS. Analytical Chemistry. 82 (18), 7779-7786 (2010).
- Sumner, L. W., et al. Proposed minimum reporting standards for chemical analysis. Metabolomics. 3 (3), 211-221 (2007).
- Rappez, L., et al. SpaceM reveals metabolic states of single cells. Nature Methods. 18 (7), 799-805 (2021).
- Yang, B., Tsui, T., Caprioli, R. M., Norris, J. L. Sample preparation and analysis of single cells using high performance MALDI FTICR mass spectrometry. Methods in Molecular Biology. 2064, 125-134 (2020).
- Longo, S. K., Guo, M. G., Ji, A. L., Khavari, P. A. Integrating single-cell and spatial transcriptomics to elucidate intercellular tissue dynamics. Nature Reviews. Genetics. 22 (10), 627-644 (2021).
- Patti, G. J., Yanes, O., Siuzdak, G. Innovation: Metabolomics: the apogee of the omics trilogy. Nature Reviews. Molecular Cell Biology. 13 (4), 263-269 (2012).
- Bouslimani, A., et al. Molecular cartography of the human skin surface in 3D. Proceedings of the National Academy of Sciences of the United States of America. 112 (17), 2120-2129 (2015).
- Dudzik, D., Barbas-Bernardos, C., García, A., Barbas, C. Quality assurance procedures for mass spectrometry untargeted metabolomics. A review. Journal of Pharmaceutical and Biomedical Analysis. 147, 149-173 (2018).
- Alseekh, S., et al. Mass spectrometry-based metabolomics: a guide for annotation, quantification and best reporting practices. Nature Methods. 18 (7), 747-756 (2021).
- Chaleckis, R., Meister, I., Zhang, P., Wheelock, C. E. Challenges, progress and promises of metabolite annotation for LC-MS-based metabolomics. Current Opinion in Biotechnology. 55, 44-50 (2019).
- Viant, M. R., Kurland, I. J., Jones, M. R., Dunn, W. B. How close are we to complete annotation of metabolomes. Current Opinion in Chemical Biology. 36, 64-69 (2017).
- Kapono, C. A., et al. Creating a 3D microbial and chemical snapshot of a human habitat. Scientific Reports. 8 (1), 3669(2018).
- Petras, D., et al. Mass spectrometry-based visualization of molecules associated with human habitats. Analytical Chemistry. 88 (22), 10775-10784 (2016).
- McCall, L. -I., et al. Analysis of university workplace building surfaces reveals usage-specific chemical signatures. Building and Environment. 162, 106289(2019).
- Garg, N., et al. Three-dimensional microbiome and metabolome cartography of a diseased human lung. Cell Host & Microbe. 22 (5), 705-716 (2017).
- Floros, D. J., et al. Mass spectrometry based molecular 3D-cartography of plant metabolites. Frontiers in Plant Science. 8, 429(2017).
Przedruki i uprawnienia
