Stripping Only Descemeta to eksperymentalna procedura, w której pacjenci z centralnym gutem rogówki wynikającym z dystrofii śródbłonka Fuchsa mają usuniętą błonę Descemeta na potrzeby komórek obwodowych w celu regeneracji warstwy śródbłonka. Przedstawiono nowatorską metodologię symulującą DSO w dystroficznych rogówkach ludzkich ex vivo z przyspieszonym gojeniem stymulowanym przez eFGF1 (NM141).
Artykuł metodologiczny
Model hodowli ludzkiego narządu rogówki z usuwaniem Descemeta tylko z przyspieszonym gojeniem stymulowanym przez zmodyfikowany czynnik wzrostu fibroblastów 1
W tym artykule
Podsumowanie
Streszczenie
Dystrofia śródbłonka rogówki Fuchsa (FECD) wynika z dysfunkcji komórek śródbłonka rogówki (CEC) i jest obecnie leczona poprzez przeszczep całej rogówki lub błony Descemeta. Ostatnie osiągnięcia w chirurgii oka doprowadziły do powstania techniki chirurgicznej Descemeta (DSO), w której usuwa się centralny krąg gęstej błony Descemeta, aby umożliwić migrację CEC na gładki zrąb, przywracając funkcję i widzenie rogówki. Chociaż ta potencjalna opcja leczenia cieszy się dużym zainteresowaniem w dziedzinie badań okulistycznych, nie stworzono żadnych udanych modeli DSO ex vivo, a dane kliniczne są ograniczone. W pracy przedstawiono nowatorski model gojenia się ran symulujący DSO w rogówkach ludzkich dawców. Stosując to podejście do oceny skuteczności zmodyfikowanego przez człowieka FGF1 (NM141), odkryliśmy, że leczenie przyspieszyło gojenie poprzez stymulację migracji i proliferacji CEC. Odkrycie to zostało potwierdzone w 11 parach ludzkich rogówek z objawami dystrofii zgłoszonymi przez banki oczu w celu sprawdzenia, czy wyniki te można powtórzyć u pacjentów z dystrofią Fuchsa, jako populacji docelowej procedury DSO.
Wprowadzenie
Dystrofia śródbłonka rogówki Fuchsa (FECD) jest chorobą charakteryzującą się utratą funkcji pompy w komórkach śródbłonka rogówki (CEC) oraz nadmiernym gromadzeniem kolagenu i innych białek macierzy zewnątrzkomórkowej na powierzchni błony Descemeta, tworząc guttae rogówki1. Jedynym znanym sposobem leczenia FECD jest keratoplastyka śródbłonka w różnych formach, z których wszystkie wiążą się z ryzykiem odrzucenia i utraty komórek śródbłonka2. Podczas gdy postępy w chirurgii okulistycznej sprawiły, że procedury te stały się z czasem mniej inwazyjne, każda forma przeszczepu wiąże się z ryzykiem odrzucenia i możliwością dożywotniego stosowania sterydów, leczenia z własnymi współistniejącymi zdarzeniami niepożądanymi. Co więcej, globalny niedobór tkanek dawców jest tak duży, że tylko jedna rogówka dawcy jest dostępna na każde 70 potrzebujących pacjentów3. Biorąc pod uwagę te wyzwania, naukowcy i klinicyści badają metody chirurgiczne, które całkowicie eliminują potrzebę stosowania tkanek od dawców. Jedną z tych eksperymentalnych technik jest Descemet's Stripping Only (DSO) lub Descemetorhexis without Endothelial Keratoplasty (DWEK), w której pacjenci z FECD z guttae zlokalizowanymi w środku rogówki mają środkowe 4-milimetrowe koło błony Descemeta pozbawione bez umieszczania przeszczepu. Usunięcie guttae zachęca zdrowe komórki obwodowe do migracji do wewnątrz i zreformowania monowarstwy śródbłonka, ostatecznie odwracając obrzęk zrębu i poprawiając widzenie. Koncepcja ta została pierwotnie opisana w serii studiów przypadków, w których pacjenci przeszli operację, która była powikłana przez odwarstwienie błony Descemeta, ale nadal następowało ponowne zasiedlenie CEC4,5,6,7. Chociaż metoda ta ma wiele zalet, proces gojenia jest długotrwały i niespójny, ponieważ niektórzy pacjenci wymagają przeszczepu ratunkowego, jeśli nie widać gojenia w ciągu kilku miesięcy po operacji8. Z tych powodów lek, który stymuluje szybszą migrację i proliferację CEC, może być korzystny w procesie rekonwalescencji pacjentów z FECD, którzy przeszli DSO.
Kilka ostatnich badań oceniło inhibitory ROCK jako leczenie uzupełniające dla pacjentów poddawanych DSO i stwierdziło, że leczoni pacjenci szybciej wracali do zdrowia i mieli wyższą gęstość komórek śródbłonka centralnego (ECD) niż ci w grupie tylko DSO9,10,11. Jednak ze względu na małe rozmiary próbek i różnice między schematami dawkowania, potrzeba więcej danych, aby lepiej zrozumieć skuteczność inhibitorów ROCK w tym ustawieniu.
Wykazano również, że czynniki wzrostu12,13. eFGF1 (NM141) to zmodyfikowana wersja FGF-1 zawierająca kilka podstawień aminokwasów w celu stabilizacji cząsteczki, w przeciwieństwie do natywnego FGF-1, który ma znacznie krótszy okres półtrwania14,15. Wcześniej wykazaliśmy zdolność eFGF1 (NM141) do stymulowania proliferacji CECs ex vivo w poćwiartowanych ludzkich rogówkach16. Badanie to miało na celu ulepszenie tej pracy poprzez ustanowienie pierwszego udanego modelu ex vivo DSO zarówno w normalnej, jak i dystroficznej rogówce, aby określić, czy leczenie wspomagające, takie jak eFGF1 (NM141), przyspiesza gojenie w tym zastosowaniu.
Protokół
W niniejszej pracy wykorzystano istniejące preparaty bez identyfikacji osób, co zgodnie z 45 CFR 46.101(b)(4) zwalnia badanie z konieczności uzyskania zgody IRB.
Rogówki ludzkie od dawców pozyskano z różnych banków tkanek oka w USA (patrz Tabela materiałów). Rogówki zostały indywidualnie ocenione przez banki tkanek jako dystroficzne na podstawie takich znalezisk jak guttae, pleomorfizm, polimegatyzm i/lub niska gęstość komórek śródbłonka (ECD) w badaniu specularnym. Rysunek 1 przedstawia barwienie błękitem trypanowym rogówki podczas tworzenia rany, bezpośrednio po strippingu oraz po 2 tygodniach hodowli.
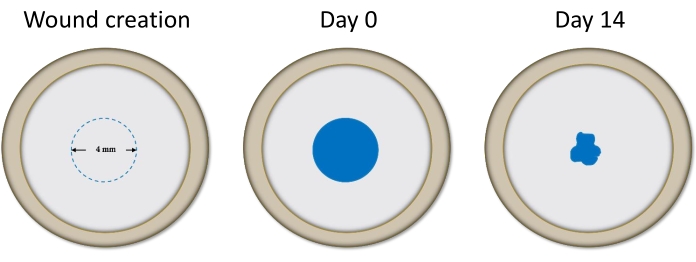
Rysunek 1: Schemat przedstawiający rogówkę podczas tworzenia rany, bezpośrednio po złuszczeniu oraz po 14 dniach hodowli, zwizualizowany za pomocą błękitu trypanu. Zmianę powierzchni barwionej pomiędzy tymi punktami czasowymi zmierzono w celu określenia stopnia gojenia. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
1. Tworzenie rany
- Za pomocą sterylnej pęsety wyjąć rogówkę z pożywki i przepłukać w 1x PBS, aby usunąć pozostałości pożywki oraz szczątki komórkowe. Po przepłukaniu umieścić rogówkę stroną śródbłonia do góry na pokrywce szalki Petriego.
- Pipetować 30 µL Trypan Blue do wgłębnego naczynia. Zanurzyć nowy 4 mm wycinak do biopsji w Trypan Blue i odprowadzić nadmiar barwnika.
- Obuoma rękami ustawić wycinak nad centrum rogówki i opuścić go pionowo na powierzchnię śródbłonia, wywierając minimalny nacisk.
- Bez zmiany pozycji lub nacisku na rogówkę, przenieść wycinak do jednej ręki i wolną ręką chwycić pęsetę. Użyć pęsety do unieruchomienia rogówki, jednocześnie delikatnie obracając wycinak do biopsji o około 90° w przód i w tył kilka razy.
- Podnieść wycinak pionowo z rogówki i odłożyć.
- Przepłukać ponownie w 1x PBS, aby usunąć nadmiar Trypan Blue.
2. Usuwanie błony Descemeta
- Przenieś rogówkę z pokrywki szalki Petriego pod mikroskop operacyjny.
UWAGA: Nie pozostawiaj rogówki w stanie suchym dłużej niż przez 5 min. Jeśli zakończenie procesu wymaga więcej czasu, ponownie wypłucz rogówkę w 1x PBS, aby nawodnić śródbłonek. - Trzymając rogówkę w miejscu za pomocą zakrzywionych pincek, nacinaj błonę Descemeta, lekko przesuwając końcówkę ostrej igły 30 G wzdłuż pierścienia Trypan Blue pozostawionego przez biopt.
- Za pomocą haczyka Sinskeya, wykonując delikatne ruchy wybierające, unieś i odwarstw błonę Descemeta wokół krawędzi rany, kierując się ku centrum zmiany.
UWAGA: Błona Descemeta powinna oddzielać się przy bardzo niewielkim oporze. W przypadku trudności prawdopodobnie odrywana jest stroma. Jeśli tak się stanie, rozpocznij czynność ponownie, podnosząc błonę z nowego punktu na krawędzi rany. - Po oddzieleniu większości błony Descemeta od stromy, użyj pincek Gorovoya, aby usunąć błonę i odłożyć ją na bok.
- Zbadaj oczyszczony obszar pod kątem pozostałych fragmentów błony i usuń je pincerkami Gorovoya.
3. Barwienie błękitem trypanowym
UWAGA: Po usunięciu błony Descemeta należy zabarwić rogówkę błękitem trypanowym w celu wizualizacji obszaru rany.
- Przenieś rogówkę na pokrywce szalki Petriego do komory z laminarnym przepływem powietrza i wypłucz w 1x PBS zawierającym 0,01% (w/v) CaCl2 i MgCl2, aby usunąć szczątki komórkowe i ułatwić ścisłe przyleganie pozostałych CEC do nienaruszonej błony Descemeta.
- Umieść rogówkę w naczyniu z wgłębnikami i nanieś pipetą 30 µL Trypan Blue na warstwę śródbłonka na 30 s.
- Używając pęsety, delikatnie kołysz rogówką, aby upewnić się, że cała powierzchnia śródbłonka jest pokryta barwnikiem.
- Wypłucz nadmiar Trypan Blue w 1x PBS z 0,01% (w/v) CaCl2 i MgCl2 i wykonaj obrazowanie zabarwionej rogówki pod mikroskopem stereoskopowym dla punktu czasowego Dzień 0.
- Upewnij się, że rogówka jest ustawiona tak, aby światło było równomiernie transmitowane w całej jej objętości, a pozycjonowanie było powtarzalne w kolejnych punktach czasowych.
UWAGA: Jeśli jest to konieczne, można użyć pęsety do utrzymania rogówki w miejscu podczas obrazowania.
- Upewnij się, że rogówka jest ustawiona tak, aby światło było równomiernie transmitowane w całej jej objętości, a pozycjonowanie było powtarzalne w kolejnych punktach czasowych.
4. Okres hodowli
- Hodować rogówki w płytce sześciodołkowej zawierającej pożywkę z niską zawartością surowicy, składającą się z OptiMEM; 1x insulin, transferrin, and selenium; 1x antibiotic/antimycotic; 0,02 mg/mL CaCl2; 0,2 mg/mL kwasu askorbinowego oraz 0,8% inaktywowanego ciepłem płodowej surowicy bydlęcej. Hodować lewą rogówkę w 8 mL samej pożywki z niską zawartością surowicy, a prawą rogówkę w 8 mL pożywki z niską zawartością surowicy uzupełnionej o 100 ng/mL eFGF1 (NM141).
- Inkubować w 37 °C przy 6% CO2 przez 14 dni, codziennie wymieniając pożywkę.
- Powtarzać procedurę barwienia błękitem trypanowym w dniach 3, 6, 9, 12 i 14 oraz obrazować każdą rogówkę niezwłocznie po barwieniu. Należy zapewnić spójność ustawień aparatu dla wszystkich punktów czasowych.
- W 12. dniu dodać 10 µM EdU zarówno do pożywki kontrolnej, jak i uzupełnionej o eFGF1 (NM141), a następnie inkubować przez 48 h w celu oznakowania proliferujących komórek. Ponowić wymianę pożywki z dodatkiem EdU w 13. dniu.
- W 14. dniu, 48 h po dodaniu EdU, przeprowadzić barwienie trypanowe i obrazowanie rogówek w zwykły sposób, z wyjątkiem tego, że zamiast 1x PBS z CaCl2 i MgCl2, do płukania należy użyć zwykłego 1x PBS, aby zapobiec oddziaływaniu wapnia z barwnikiem Alizarin Red.
5. Barwienie alizaryną czerwoną
- W 14. dniu przygotować 5% roztwór Alizariny Czerwonej w 0,9% soli fizjologicznej.
UWAGA: Alizaryna Czerwona nie rozpuści się całkowicie w soli fizjologicznej. Po połączeniu składników wymieszać roztwór w wirówce typu vortex i inkubować na wytrząsarce przez co najmniej 1 h. Ponownie wymieszać w vortexie i przefiltrować przed użyciem w celu usunięcia nierozpuszczonych cząstek. - Po zakończeniu barwienia Trypanem i obrazowania, przenieść rogówki do naczynia z wgłębieniami i nanieść 200 µL Alizariny Czerwonej na powierzchnię śródbłonową każdej rogówki.
- Barwić przez 2 min, a następnie opłukać każdą rogówkę w czarodzieju Petriego z 1x PBS, aby usunąć nadmiar Alizariny Czerwonej, przed umieszczeniem ich w płytce 6-dołkowej wypełnionej wcześniej 8 mL 1x PBS w celu przeprowadzenia dwóch 5-minutowych płukań.
- Po drugim płukaniu obrazować obszar oddzielonego nabłonka każdej rogówki pod mikroskopem stereoskopowym.
UWAGA: W przeciwieństwie do obrazowania z Trypanem, rogówki mogą pozostać w 1x PBS podczas obrazowania barwienia Alizaryną, aby zapobiec ich wyschnięciu w trakcie tego procesu.
6. Fixacja i permeabilizacja
- Po wykonaniu obrazowania Alizaryną, przenieść rogówki do płytki 12-dołkowej i płukać w 4 mL 1x PBS z dodatkiem 0,05% Tween-20 (PBS-T) przez 30 min, aby usunąć wszelkie cząstki z tkanki przed utrwaleniem.
- Utrawić rogówki w 4 mL 4% PFA przez 30 min w temperaturze pokojowej.
- Przeprowadzić permeabilizację komórek przez 5 min w 4 mL 1x PBS z dodatkiem 1% Triton X-100, a następnie płukać trzykrotnie w 4 mL zwykłego 1x PBS przez 30 min przy każdym płukaniu.
7. Immunohistochemia
- Blokować rogówki przez 1 h w 37°C w 4 mL 1x PBS zawierającego 2% albuminy surowicy wołowej i 2% surowicy koziej.
- Inkubować w 1 mL roztworu blokującego zawierającego 2,5 µg/mL przeciwciała pierwszorzędowego mysiego anty-ZO-1 przez 1 h w 37°C, a następnie przemyć trzykrotnie w 4 mL 1x PBS przez 30 min każdego mycia.
UWAGA: Podczas barwienia przeciwciałami płytkę można przechylić, aby zminimalizować objętość potrzebnych odczynników. Należy jedynie upewnić się, że cała rogówka jest całkowicie zanurzona w roztworze przeciwciał. - Przeprowadzić reakcję EdU Click-iT przy użyciu koktajlu zawierającego 0,88 mg/mL kwasu askorbinowego, 0,26 mg/mL CuSO4 oraz 2,5 µM azydku Alexa Fluor 488.
- Przygotować komponenty reakcji:
- Dodać 500 µL 1x PBS do 88 mg kwasu askorbinowego i mieszać w wirówce (vortex) do rozpuszczenia.
- Dodać 840 µL wody dejonizowanej do 44 mg CuSO4 i mieszać w wirówce (vortex) do rozpuszczenia.
- Przygotować koktajl, dodając następujące odczynniki do 6 mL 1x PBS w tej kolejności, odwracając probówkę w celu wymieszania po każdym dodaniu: 30 µL roztworu kwasu askorbinowego, 30 µL roztworu CuSO4, a następnie 15 µL Alexa Fluor 488
UWAGA: Po przygotowaniu roztwór ten jest światłoczuły. W pozostałej części protokołu rogówki powinny być w miarę możliwości chronione przed światłem. - Dodać 1 mL koktajlu reakcyjnego EdU do każdej rogówki i inkubować przez 1 h w temperaturze pokojowej.
- Przygotować komponenty reakcji:
- Dodać 4 mL 10 µg/mL Hoechst 33342 do każdej rogówki i inkubować przez 2 min w temperaturze pokojowej, a następnie przemyć trzykrotnie w 1x PBS-T przez 30 min każdego mycia.
- Inkubować w 1 mL roztworu blokującego zawierającego 2 µg/mL znakowanych Alexa Fluor 555 kozich przeciwciał anty-mysich IgG przez 1 h w 37°C, a następnie przemyć trzykrotnie w 1x PBS-T przez 30 min każdego mycia.
- Przechowywać rogówki w 4 °C w 4 mL 1x PBS z 1% anti/anti, 0,1% cyprofloksacyny i 0,1% amfoterycyny B, aby zapobiec wzrostowi drobnoustrojów.
- Podczas obrazowania konfokalnego zamontować całe rogówki w 200 µL medium montującego na szkiełkach przedmiotowych, przyciskając szkiełko nakrywowe taśmą w celu spłaszczenia preparatu.
8. Analiza obrazów trypanu
- Wszystkie analizy obrazów należy przeprowadzić przy użyciu otwartoźródłowego oprogramowania ImageJ opracowanego przez NIH. Otwórz obraz, wybierając File > Open, a następnie kliknij Image > Adjust > Color threshold.
- Użyj suwaków „Hue”, aby objąć tylko zakres koloru niebieskiego, i przesuń górny suwak „Brightness” maksymalnie w lewo, aby uwzględnić większą część obszaru zabarwionego.
UWAGA: Jeśli ta czynność spowoduje uwzględnienie fragmentów obrazu, które nie zostały zabarwione błękitem trypanu, suwak „Brightness” można przywrócić do pierwotnego poziomu. - Powoli reguluj górny suwak „Saturation”, aż progowanie dokładnie obrysuje obszar zabarwiony.
UWAGA: Pomocne może być otwarcie kopii oryginalnego obrazu w celu odniesienia podczas tego procesu. - Kliknij przycisk Select w menu progowania kolorów, a następnie użyj narzędzia pędzla do zaznaczania, aby odznaczyć obszary poza raną, które zostały błędnie wybrane.
- Kliknij Analyze > Measure, aby uzyskać wartość powierzchni zabarwionej w pikselach.
- Odznacz wszystko, wybierając Edit > Selection > Select None, i użyj owalnego narzędzia zaznaczania, aby jak najdokładniej obrysować limbus, a następnie kliknij Analyze > Measure, aby uzyskać powierzchnię rogówki w pikselach.
UWAGA: Jeśli ta część obrazu jest zbyt ciemna, można tymczasowo zwiększyć jasność, aby ułatwić wizualizację limbusa. - Zapisz wartości powierzchni i podziel powierzchnię zabarwioną przez powierzchnię całej rogówki, a następnie pomnóż wynik przez 100, aby obliczyć procentowy stopień zabarwienia.
- Powtórz ten proces jeszcze dwukrotnie dla każdego obrazu, a następnie oblicz średnią z trzech pomiarów.
9. Analiza statystyczna
- Po przeanalizowaniu wszystkich obrazów podziel średni procent zabarwienia w 14. dniu przez procent zabarwienia w dniu 0, aby określić pozostałą niezagojoną powierzchnię. Odejmij tę wartość od 100%, aby obliczyć procent zagojenia uszkodzonego obszaru w ciągu 14 dni.
- Użyj testu t-sparowanego, aby porównać wartości procentowe zagojenia między grupą kontrolną a grupą badaną.
Wyniki
Ten eksperyment przeprowadzono początkowo na 10 parach normalnych rogówek badawczych, ponieważ były one najłatwiej dostępne. Po potwierdzeniu skuteczności metody, badanie powtórzono na 11 parach rogówek dystroficznych – oznaczonych jako takie przez banki tkanek na podstawie oceny zwierciadłowej – aby zbadać działanie eFGF1 (NM141) w rogówkach reprezentatywnych dla populacji pacjentów z FECD. Dla zwiększenia istotności klinicznej, rysunki zamieszczone w niniejszej pracy przedstawiają dane zebrane z rogówek dystroficznych, chyba że zaznaczono inaczej.
Po zasymulowaniu efektu chirurgicznego DSO wykonano barwienie błękitem trypanowym, które powtarzano przez cały 14-dniowy okres hodowli, a następnie określono ilościowo redukcję dodatniego barwienia w celu oceny gojenia rany (Rysunek 2). W 14. dniu wykonano również barwienie Alizaryną Czerwoną w celu wyznaczenia granic komórek. Ciemnoczerwone obszary bez wyraźnego wzoru (zwane dalej barwieniem ujemnym) pojawiały się konsekwentnie w niezagojonej części zmiany oraz w innych obszarach rogówki, gdzie domniemano uszkodzenia lub braku komórek. Obszary, które w 14. dniu wykazały dodatnie barwienie błękitem trypanowym, dobrze odpowiadały ujemnemu barwieniu Alizaryną Czerwoną (Rysunek 2). Wszystkie dystroficzne rogówki leczone eFGF1 (NM141) wykazały większe gojenie w 14. dniu w porównaniu z nieleczonymi odpowiednikami. Średnio leczone rogówki wykazały 91% gojenia, w przeciwieństwie do 38% w rogówkach kontrolnych, a różnica ta była istotna statystycznie (p < 0,001) (Rysunek 3A). Jest to porównywalne z wynikami uzyskanymi z 20 normalnych rogówek, gdzie grupa kontrolna wykazała średnio 32% gojenia, a leczone rogówki osiągnęły 81%, co ponownie było istotne statystycznie (p < 0,001) (Rysunek dodatkowy 1). Procent zagojenia porównano między rogówkami normalnymi a dystroficznymi za pomocą testów t dla dwóch prób z założeniem równości wariancji; nie stwierdzono istotnych różnic ani w grupach kontrolnych, ani w grupach leczonych (dane nie zostały przedstawione).
Przeanalizowano informacje o dawcach przekazane przez banki tkanek oka (Tabela 1) zarówno dla rogówek prawidłowych, jak i dystroficznych, aby ustalić, czy cechy takie jak wiek, liczba dni przechowywania w Optisol, odstęp czasu od śmierci do pobrania, gęstość komórek oraz płeć korelują z gojeniem. Do zbadania wszystkich czynników, z wyjątkiem płci, wykorzystano współczynnik korelacji Pearsona (r), natomiast w przypadku płci zastosowano nieparowany test t, aby porównać gojenie u mężczyzn i kobiet. Wartość bezwzględna r była w każdym przypadku mniejsza niż 0,25, co wskazuje, że wszelkie korelacje między gojeniem a wiekiem, liczbą dni przechowywania w Optisol, odstępem czasu od śmierci do pobrania lub gęstością komórek uznano za nieistotne. Różnica w gojeniu między mężczyznami a kobietami nie była statystycznie istotna (p = 0,53).
Podobnie jak w przypadku zestawu danych dla rogówek prawidłowych, w 10 z 22 rogówek dystroficznych zaobserwowano wyraźne barwienie trypanem poza obszarem zeskrobanym, połączone z obszarem zabarwionym w obrębie zmiany w przynajmniej jednym punkcie czasowym (zazwyczaj w 3. dniu) – obserwację tę określono mianem barwienia obwodowego (Rysunek 4A). Z tych 10 przypadków tylko dwa dotyczyły rogówek kontrolnych, których odpowiedniki poddane leczeniu nie wykazywały tego samego efektu. Pozostałe osiem stanowiło pary dopasowane i wykazywało podobny stopień nasilenia zjawiska w rogówkach pochodzących od tego samego osobnika. Choć wzorce barwienia były porównywalne między rogówkami prawidłowymi a dystroficznymi, częstotliwość barwienia obwodowego była wyższa w zestawie danych dla rogówek dystroficznych (45% rogówek z wynikiem dodatnim) w porównaniu do grupy prawidłowej (25%). Na Rysunku 4A przedstawiono parę uznaną za dodatnią pod kątem barwienia obwodowego, ponieważ obszar zabarwiony poza zmianą stykał się z krawędzią rany na obrazach z 6. dnia, a następnie stopniowo się cofał. Na odpowiadających im obrazach z barwieniem Alizariną Czerwoną komórki w obszarach z obwodowym barwieniem trypanem wydawały się powiększone i miały nieprawidłowy kształt, podobnie jak komórki, które migrowały do obszaru zeskrobanego, a brak barwienia korelował z obszarami, w których w 14. dniu obecny był błękit trypanowy. Mimo że w trakcie okresu hodowli proces ten objął dużą część rogówki, we wszystkich 10 rogówkach nastąpiło częściowe lub całkowite ustąpienie zabarwienia obwodowego. Ponadto końcowy procent zagojenia w 14. dniu mieścił się w normalnym zakresie dla danej grupy terapeutycznej we wszystkich rogówkach z wyjątkiem jednej. W przypadku przypadku odstającego (0811L, przedstawionego na Rysunku 4A) otrzymano ujemną wartość procentu zagojenia ze względu na pozostałości barwienia obwodowego, które w 14. dniu nadal łączyły się z obszarem zmiany (Rysunek 3A i Rysunek 4A). Drugi wzorzec barwienia, określony jako dalekie barwienie obwodowe, utrwalono na obrazach z Alizariną Czerwoną na Rysunku 4B, lecz był on również widoczny na obrazach z błękitem trypanowym w wielu rogówkach przez cały okres hodowli (Rysunek 4B). Obserwacja ta charakteryzuje się pierścieniem ciemnego zabarwienia wokół limbusa, co wskazuje na uszkodzenie endotelium. Mimo nazwy, wzorzec ten występował tak często zarówno w rogówkach prawidłowych, jak i dystroficznych, że nie wliczano ich jako dodatnich pod kątem barwienia obwodowego. Na tych obrazach rogówka kontrolna wykazywała bardziej intensywne i rozległe barwienie w 14. dniu, mimo że obie rogówki miały podobny stopień nasilenia i wzorzec barwienia we wczesnym okresie hodowli. W rogówce leczonej zauważono również pozornie większą liczbę komórek, które wydawały się bardziej zwarte i sześciokątne w porównaniu z grupą kontrolną, choć obserwacje te nie były mierzone ilościowo. Ze względu na krzywiznę w części obwodowej, do analizy ilościowej włączono jedynie barwienie trypanem w obrębie i bezpośrednio wokół obszaru zeskrobanego. Po uśrednieniu wartości procentowych zabarwienia dla wszystkich rogówek dystroficznych, pojawienie się barwienia obwodowego spowodowało początkowy wzrost wartości w stosunku do dnia 0, w przeciwieństwie do stałego spadku obserwowanego w rogówkach prawidłowych, gdzie barwienie obwodowe występowało rzadziej (Rysunek 3B).
Immunohistochemia wizualizowana za pomocą obrazowania konfokalnego wykazuje półuporządkowaną ekspresję ZO-1, funkcjonalnego markera tight junctions (śródkomórkowych połączeń ścisłych) CEC, w obrębie i wokół krawędzi zmiany (Rycina 5); wzorzec ten był analogicznie widoczny w barwieniu Alizariną Czerwoną (Rycina 2 oraz Rycina 4). Pleomorfizm i polimegatyzm są widoczne w barwieniu ZO-1 w większości rogówek dystroficznych; jednak obserwację tę można przypisać ich stanowi chorobowemu, co odnotowano w banku tkanek oka podczas badania zwierciadłowego rogówek przed hodowlą. Zdezorganizowana ekspresja ZO-1 jest obserwowana w obszarze zmiany w rogówkach leczonych, w których komórki migrowały do wnętrza, co jest również zgodne ze wzorcami barwienia Alizariną Czerwoną. Komórki włączające EdU są widoczne wokół granicy zmiany oraz wewnątrz obszaru zmiany w rogówkach kontrolnych i leczonych (Rycina 5). Wzorzec migracji CEC odzwierciedla również wyniki barwienia Błękitem Trypanu, gdzie w rogówkach kontrolnych większość komórek znajdowała się w obrębie dwóch pól od krawędzi zmiany, podczas gdy w rogówkach leczonych komórki CEC są widoczne w całym obszarze usuniętego nabłonka (Rycina 2).
W niniejszym badaniu oznakowanie EdU wykonano jako miarę jakościową, aby potwierdzić, że proliferacja przyczyniła się do procesu gojenia. Jednakże systematyczna kwantyfikacja komórek włączających EdU nie była możliwa ze względu na obrzęk rogówki, który uniemożliwił uzyskanie spójnych i powtarzalnych obrazów w obrębie zmiany i wokół niej. Jako substytut, w celu wykazania wpływu eFGF-1 (NM141) na proliferację, włączono analizę ilościową przeprowadzoną w badaniu poprzedzającym opracowanie modelu DSO (Rycina 6). Pobrane od ludzkich dawców prawidłowe rogówki pocięto skalpelem na ćwiartki i hodowano w obecności EdU, z dodatkiem lub bez eFGF1 (NM141) przez 48 h, zgodnie z wcześniejszym opisem (Eveleth, 2020)16. Obrazowanie i późniejsza analiza komórek znakowanych Hoechst 33342 oraz EdU zostały przeprowadzone oddzielnie w nienaruszonej strefie środkowej ćwiartek oraz w strefie brzeżnej, w obrębie trzech pól od miejsca cięcia rogówki. W strefie środkowej odsetek komórek włączających EdU był niski i wysoce zmienny w analizowanych 10 rogówkach. Średnio ćwiartki traktowane eFGF1 (NM141) wykazywały wyższy poziom wbudowania EdU w strefie środkowej (4,1% ± 7,9%) w porównaniu do grupy kontrolnej (1,8% ± 2,9%), choć różnica ta nie była istotna statystycznie (p = 0,239). Na brzegu rany w ćwiartkach stymulowanych eFGF1 (NM141) odnotowano istotnie wyższe średnie wskaźniki wbudowania EdU (18,1% ± 11,5%) w porównaniu do ćwiartek kontrolnych (10% ± 9,6%, p = 0,012).
Tabela 1: Informacje o dawcach 22 rogówek dystroficznych i 20 rogówek prawidłowych wykorzystanych w niniejszym badaniu, a także 10 rogówkach prawidłowych wykorzystanych wcześniej do ilościowego oznaczenia EdU. Prosimy kliknąć tutaj, aby pobrać tę tabelę.
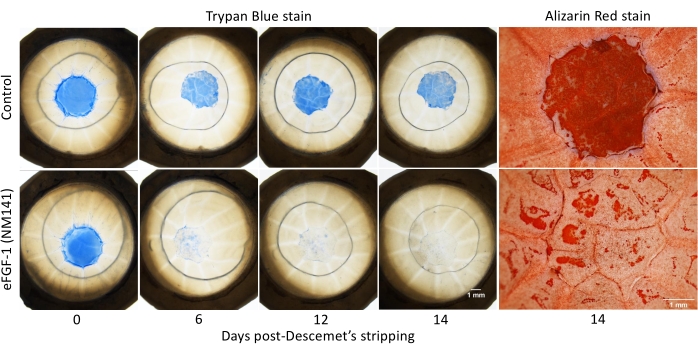
Rysunek 2: Barwienie rogówek barwnikami witalnymi po usunięciu błony Descemeta. Dystroficzne ludzkie rogówki poddano usunięciu centralnych 4 mm błony Descemeta, a następnie inkubowano z eFGF1 (NM141) (100 ng/mL) lub bez niego przez 14 dni. Zmiany wizualizowano za pomocą barwienia Trypan Blue w dniach 0, 3, 6, 9, 12 i 14. Granice CEC wizualizowano za pomocą barwienia Alizarin Red w dniu 14. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
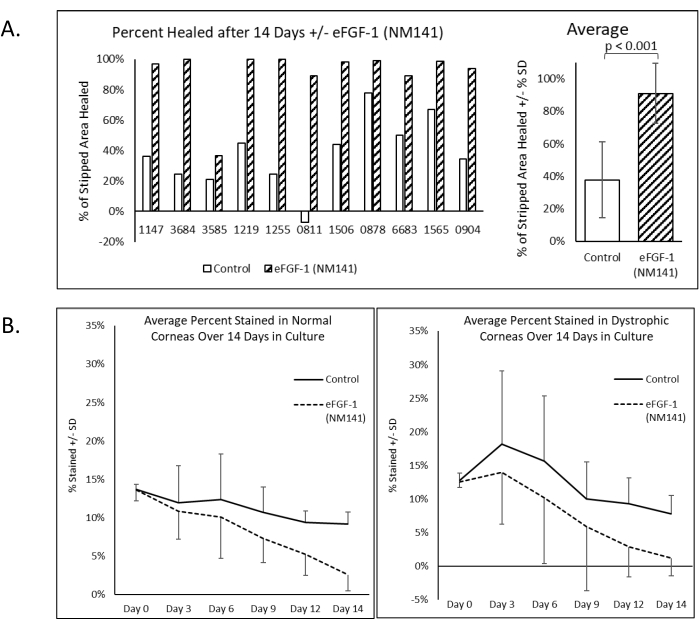
Rycina 3: Dystroficzne rogówki ludzkie wykazują znacznie większe gojenie po DSO podczas hodowli z eFGF1 (NM141). (A) Procent zagojenia określono poprzez pomiar powierzchni zabarwionej w 14. dniu za pomocą programu ImageJ i porównanie go z procentem zabarwienia w dniu 0. (B) Średni procent zabarwienia przedstawiony na wykresie w czasie wykazuje stały spadek w rogówkach prawidłowych, podczas gdy w rogówkach dystroficznych osiąga on szczyt w 3. dniu ze względu na większą częstotliwość barwienia obwodowego. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
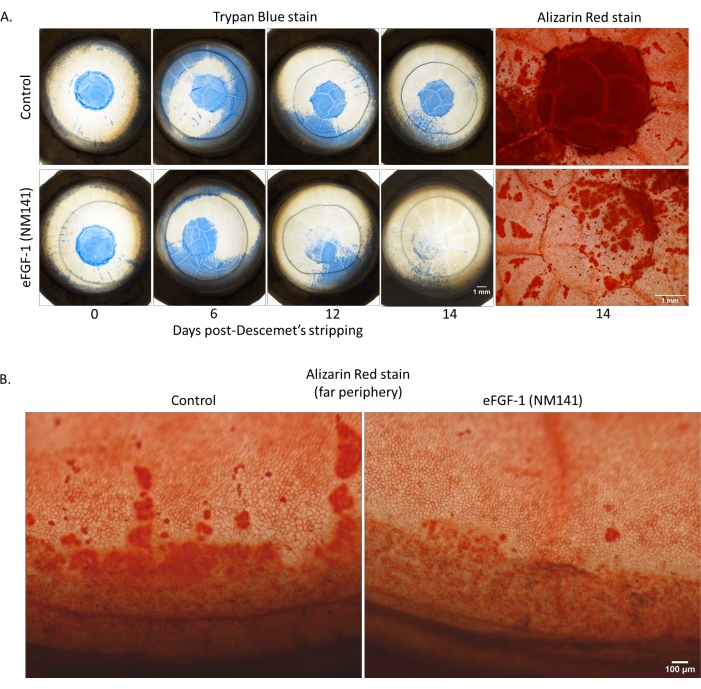
Rycina 4: Barwienie żywymi barwnikami rogówek dystroficznych z barwieniem obwodowym. (A) Barwienie błękitem trypanowym nienaruszonej błony Descemeta, które przesuwa się w kierunku centrum, a następnie z czasem zanika zarówno w rogówkach kontrolnych, jak i leczonych. (B) Wzory alizaryny wokół limbusa reprezentują typową obserwację uszkodzeń obwodowych i zdezorganizowanej regeneracji endotelium widocznej w wielu rogówkach dawców – w tym przypadku dystroficznych. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
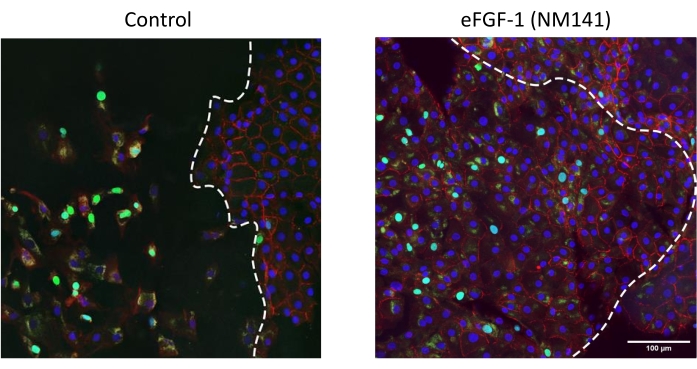
Rysunek 5: Stymulacja migracji i proliferacji CEC w rogówkach dystroficznych z usuniętą błoną Descemeta przez eFGF1 (NM141). Mikrografie konfokalne rogówek z usuniętą błoną Descemeta, barwione na ZO-1 (czerwony), EdU (zielony) oraz Hoechst 33342 (niebieski). Linia przerywana wyznacza krawędź uszkodzenia, gdzie obszar z usuniętą błoną znajduje się po lewej stronie obrazu, a nienaruszona błona Descemeta po prawej. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
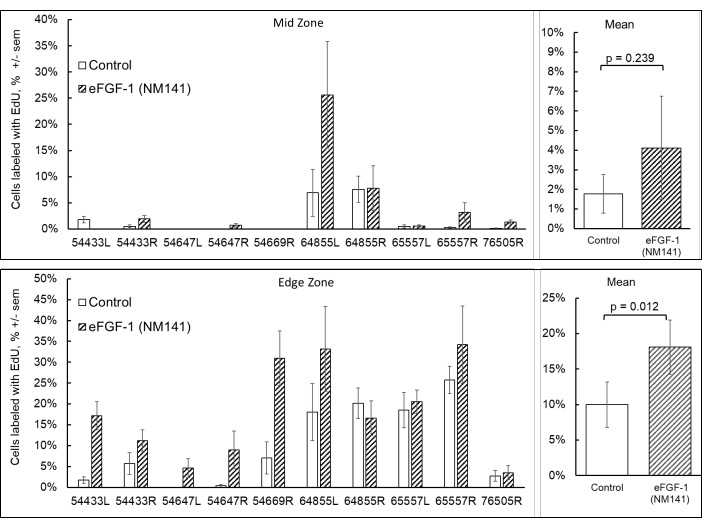
Rysunek 6: Ilościowe oznaczenie proliferujących komórek z prawidłowych rogówek, podzielonych na ćwiartki skalpelem i inkubowanych w pożywce zawierającej EdU z dodatkiem lub bez eFGF-1 (NM141) przez 48 h. Ćwiartki obrazowano w trzech powtórzeniach w nienaruszonej strefie środkowej oraz wzdłuż ciętej krawędzi, a następnie wyciągnięto średnie liczby, aby określić procent komórek włączających EdU w strefach środkowej i brzeżnej. Rysunek zmodyfikowany z Journal of Ocular Pharmacology and Therapeutics, użyty za zgodą16. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
Rycina uzupełniająca 1: Normalne ludzkie rogówki wykazują znacznie większe gojenie po DSO podczas hodowli z eFGF1 (NM141).Do pomiaru obszarów zabarwionych i wyznaczenia % gojenia wykorzystano program ImageJ. Prosimy kliknąć tutaj, aby pobrać ten plik.
Dyskusja
Wielu okulistów ma obawy przed zalecaniem DSO swoim pacjentom z dwóch głównych powodów: 1) długiego procesu gojenia oraz 2) braku danych (DSO to nowa koncepcja w dziedzinie chirurgii okulistycznej). Badania, które przedstawiliśmy, byłyby bardzo przydatne w łagodzeniu obu tych obaw. Na podstawie danych z tego i innych badań, FDA zatwierdziła badanie kliniczne fazy 2, w którym eFGF1 (NM141) będzie podawany w różnych schematach dawkowania pacjentom poddawanym DSO17.
Opisana powyżej metoda została wzorowana na badaniu przeprowadzonym przez Soh i wsp., w którym oceniano gojenie śródbłonka rogówki z inhibitorem ROCK Y-27632 i bez niego zarówno w ranach zadrapanych, jak i złuszczonych18. Podczas gdy Y-27632 przyspieszył regenerację śródbłonka przy nadal nienaruszonej błonie Descemeta, nie stwierdzono znacznego gojenia w pozbawionych ranach nawet po leczeniu. Stosując podobną technikę strippingu, a następnie leczenie eFGF1 (NM141) lub bez niego, obserwacje, które znaleźliśmy, nie były zgodne z obserwacjami Soh i współpracowników. Brak barwienia błękitem trypanowym w wielu leczonych rogówkach w dniu 14 oraz obecność ZO-1 dodatnich połączeń ścisłych w zreformowanej warstwie śródbłonka dowodzi, że nienaruszona bariera, część naturalnej funkcji CEC, została przywrócona zarówno w normalnej, jak i dystroficznej rogówce. Chociaż nie określono ilościowo w tym badaniu, obecność komórek EdU-dodatnich w i wokół usuniętego obszaru sugeruje również proliferację jako mechanizm gojenia, który, jak wcześniej ustaliliśmy, może być stymulowany przez eFGF1 (NM141) w uszkodzonej rogówce16. Analiza statystyczna wykazała, że leczenie eFGF1 (NM141) skutkowało znacznie szybszym wyleczeniem z DSO, średnio ponad dwukrotnie wyższym niż w przypadku rogówki kontrolnej w ciągu 14 dni. Chociaż tempo gojenia różni się umiarkowanie u poszczególnych osób – co jest typową cechą rogówek dawcy – powtarzalność wyników na dużych próbkach również dowodzi wysoce mierzalnej metody. O ile nam wiadomo, w literaturze nie ma innych przykładów modelu usuwania izolacji ex vivo Descemeta.
Kluczowymi elementami samego protokołu, które mogą być cenne dla innych badaczy badających DSO, są użycie błękitu trypanowego do wykrywania nagiego zrębu oraz technika przetwarzania obrazu używana do pomiaru zabarwionego obszaru. Błękit trypanowy jest powszechnie stosowany w chirurgii okulistycznej, szczególnie podczas pracy z błoną Descemeta w celu wykrycia niezdolnych do życia komórek i pomocy w widoczności tkanki. Punkty czasowe barwienia zawarte w tym protokole pozwoliły na skuteczne powtarzanie barwienia bez nadmiernego wystawiania rogówek na działanie błękitu trypanowego, ponieważ wykazano, że jest on toksyczny dla CEC w wysokich stężeniach19. Zmniejszenie przebarwionej powierzchni we wszystkich rogówkach w ciągu 14 dni, potwierdzone przez czerwień alizarynową i immunohistochemię, jako wynik migrowanych CEC, pokazuje prostą i powtarzalną metodę pomiaru gojenia. Korzystając z menu progów kolorów ImageJ, wielu analityków zebrało dane z odchyleniami standardowymi stale poniżej 1% (dane nie pokazane). Chociaż alternatywne programy mogą działać podobnie, ImageJ jest oprogramowaniem typu open source, które jest w stanie generować dokładne pomiary obszaru w celu śledzenia gojenia.
Jest jednak jeden aspekt protokołu usuwania powłok, który uznaliśmy za niezbędny do powstania rany, ale także utrudniający cały proces gojenia. Użycie ostrej igły o wadze 30 G do nacięcia błony Descemeta wzdłuż śladu pozostawionego przez stempel biopsyjny umożliwia utworzenie gładkiej, okrągłej rany, która jest zauważana przez klinicystów w celu szybszego gojenia10. Jednocześnie ten krok jest szkodliwy dla rogówki, ponieważ może powodować rozdarcia we włóknach zrębu, powodując śmierć komórek zrębu, utrudniając migrację komórek śródbłonka przez krawędź rany i indukując tworzenie się guzków, które powodują bardziej uporczywy obrzęk pooperacyjny20. Klinicyści wykonujący DSO zazwyczaj używają odwróconego haka Sinskey do zainicjowania rany, ale bez ciśnienia wewnątrzgałkowego utrzymującego napiętą rogówkę, narzędzie to jest mniej skuteczne w modelu ex vivo . Alternatywne narzędzie zdolne do rozerwania błony Descemeta bez uszkodzenia leżącego poniżej zrębu poprawiłoby protokół, na przykład rękojeść do irygacji i aspiracji zalecana przez Macsai i Shiloacha10. Konieczne będą dalsze eksperymenty, aby ustalić, czy technika ta jest zgodna z modelem ex vivo .
Wyzwaniem, które wydaje się nieodłącznym elementem modelu ex vivo, jest częste występowanie zgonu z powodu CEC w obszarze obwodowym rany, szczególnie w dystroficznej rogówce. Czasami zasłaniało to ilościowe określenie obszaru rany, ponieważ dokładność narzędzia do progowania koloru staje się bardziej ograniczona, gdy zabarwiony obszar wykracza poza środek rogówki, gdzie jego krzywizna powoduje nierównomierny rozkład światła. Jednak te zmienne pomiary miały miejsce przede wszystkim we wcześniejszych punktach czasowych, zanim barwienie obwodowe stopniowo ustępowało, gdy uszkodzone CEC zostały usunięte, a sąsiednie komórki rozciągały się, migrowały lub namnażały, aby je zastąpić. W ostatnim 14-dniowym okresie zabarwiony obszar zlokalizował się z powrotem do środka rogówki, a wszystkie obrazy były mierzalne. Podobna obserwacja została dokonana z podobną częstotliwością przez Soh i wsp., gdzie pięć z 14 normalnych rogówek prezentowało to, co nazwali "przedwczesnym niepowodzeniem posiewu" (PCF) na początku okresu hodowli18. O ile w naszych rogówkach uszkodzenie z czasem się odwróciło, a mimo to w ich przypadku było trwałe, o tyle można to przypisać temu, że ich metoda wymagała zranienia większej powierzchni rogówki. Obserwacja bardziej rozpowszechnionego obwodowego barwienia trypanem w dystroficznych rogówkach może wskazywać, że dystroficzne rogówki są bardziej podatne na śmierć komórek śródbłonka niż zdrowe rogówki. Chociaż dokładna przyczyna tej śmierci komórek nie została jeszcze wyjaśniona, uważamy, że jest mało prawdopodobne, aby ten problem dotyczył ludzkich rogówek in vivo. O ile nam wiadomo, uszkodzenie śródbłonka obwodowego nie zostało zgłoszone w żadnym klinicznym studium przypadku DSO, co sugeruje, że zjawisko to jest unikalne dla rogówek dawcy hodowanych ex vivo 6,8,10,11,21. Poza dwoma przypadkami, w których wybarwione były tylko rogówki kontrolne, wszystkie obserwacje barwienia obwodowego zostały sparowane, więc jest mało prawdopodobne, że przyczyną była ekspozycja na eFGF1 (NM141). Możliwe jest jednak, że w tych przypadkach leczenie mogło zapewnić efekt ochronny przed uszkodzeniem, które w przeciwnym razie spowodowałoby przebarwienia obwodowe w obu rogówkach. Potrzebne są dalsze badania nad tą hipotezą.
Kolejnym ograniczeniem tej metody jest pozyskiwanie rogówek dawcy reprezentatywnych dla fenotypu FECD, dla którego przeznaczony jest DSO. Rogówki dawców wszelkiego rodzaju są rzadkie, stąd potrzeba operacji, która pozwala uniknąć użycia tkanki dawcy. Dla naszych celów jedynymi dostępnymi rogówkami są te odrzucone z przeszczepu z różnych powodów. Banki oczu dalej klasyfikują te rogówki jako normalne lub dystroficzne na podstawie kryteriów, takich jak obecność guttae, niski lub niemierzalny ECD oraz nieregularna morfologia CEC. Potwierdzenie diagnozy dystroficznej przed przyjęciem tkanki z banku oka jest również prawie niemożliwe, ponieważ historia medyczna większości dawców nie obejmuje wcześniejszej historii ocznej, a jedynymi dostarczonymi informacjami są wartość ECD, notatki technika, a w niektórych przypadkach reprezentatywny obraz zwierciadlany. Dystroficzne rogówki uzyskane w tym badaniu nie wykazywały zlewających się centralnych guttae podczas mikroskopii konfokalnej wykonanej po zakończeniu okresu hodowli, co sugeruje, że mogą one reprezentować "wczesne" stadia FECD. Nie spodziewamy się, aby miało to znaczący wpływ na implikacje badania, ponieważ celem DSO jest usunięcie zlewających się obszarów guttae, umożliwiając zdrowym komórkom obwodowym migrację do wewnątrz.
Metoda ta zapewnia wysoce przydatną i powtarzalną technikę oceny czynników, które mogą mieć wpływ na proliferację i migrację CEC. Model ma kilka cech, które sprawiają, że jest on bardziej istotny fizjologicznie niż modele in vitro, które obejmują hodowane CEC, nawet po wysianiu na przeszczep ludzkiej tkanki rogówki 22,23,24. Po pierwsze, CEC, które mają być stymulowane, znajdują się w monowarstwie, dokładnie tak, jak istnieją w oku pacjenta i migrują przez zrąb rogówki, tak jak po klinicznym DSO. Zrąb, o którym mowa, pochodzi od tego samego pacjenta co CEC, co kontroluje potencjalne różnice zrębowe związane z FECD. Nie ma potrzeby eksplantacji, dysocjacji i rozszerzania kultur CEC z powiązanymi wyzwaniami i potencjałem przejścia śródbłonka do mezenchymalnego (EnMT) podczas procesu hodowli. Opisany protokół sam w sobie jest bardzo podobny do procedury klinicznej DSO. Chociaż omija etapy hodowli i ekspansji, metoda ta ma ograniczenie polegające na tym, że czas trwania badania jest ograniczony przez obrzęk rogówki, ponieważ warstwa nabłonkowa nie jest utrzymywana. To powstrzymuje nas przed badaniem morfologii CEC, które migrowały, aby pokryć ogołocony obszar, pozostawiając niejasne, czy ostatecznie przegrupują się w sześciokątną tablicę w tym modelu. Garcin i wsp. opracowali jedno potencjalne rozwiązanie za pomocą swojej maszyny do aktywnego przechowywania (ASM), urządzenia, które utrzymuje rogówkę w hodowli przez okres do 3 miesięcy przy znacznie mniejszym obrzęku niż rogówki utrzymywane wtradycyjnej hodowli narządów. Takie urządzenie może być pomocne w powielaniu i rozwijaniu tej pracy.
Model ten ma potencjalną przydatność w testowaniu innych terapii gojenia ran (np. inhibitorów ROCK), ocenie modyfikacji techniki chirurgicznej i porównywaniu gojenia w różnych populacjach dawców lub stadiach choroby. Mamy nadzieję, że to badanie, w połączeniu z danymi z badań klinicznych, zachęci klinicystów do rozważenia DSO jako wartościowej opcji leczenia dla kwalifikujących się pacjentów z FECD.
Oświadczenia
DDE, SP, GD i JW są pracownikami i posiadają udziały w Trefoil Therapeutics, Inc. DDE jest wynalazcą patentów obejmujących eFGF1 (NM141).
Podziękowania
Finansowanie tej pracy było wspierane przez Trefoil Therapeutics i NIH NCATS TRND CRADA #2016-04. Autorzy chcieliby podziękować Tony'emu Wongowi za porady i usługi histopatologiczne, Centrum Obrazowania Nikon na Uniwersytecie Kalifornijskim w San Diego za korzystanie z mikroskopu konfokalnego oraz dr Natalie Afshari i Marian Macsai za porady dotyczące techniki operacyjnej. Ponadto autorzy wyrażają wdzięczność darczyńcom oczu i bankom oczu za udostępnienie rogówek.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,2 i mikro; m sterylne jednostki filtrujące 1000 ml | VWR | 10040-440 | |
| 0,2µ m sterylne jednostki filtrujące 250 ml | VWR | 10040-464 | |
| 0,2 i mikro; m sterylne jednostki filtrujące 500 ml | VWR | 10040-436 | |
| Strzykawka 10 ml Luer-Lok Tip Becton | Dickinson | 302995 | |
| 12-dołkowa płytka poddana hodowli tkankowej | Rurki | 3513 | |
| 15 ml | VWR | 89039-668 | |
| 16% paraformaldehyd (PFA) | Mikroskopia elektronowa Science | 15710 | |
| Pipeta aspiracyjna 2 ml | VWR | 414004-265 | |
| 310 inkubator CO2 z bezpośrednim ogrzewaniem | Forma Scientific | 13-998-082 | Ustawiony na 37° C, 6% CO2 |
| >50 mL Probówki stożkowe | VWR | 89039-660 | |
| 5-etynylo-2'-deoksyurydyna (EdU) | Thermo Scientific | C10337 | |
| Pipety serologiczne 5 mL, 10 mL, 25 ml i 50 ml | VWR | 89130-896, -898, -900, -902 | |
| 6-dołkowa płytka do hodowli tkankowej | Corning | 3516 | |
| 70% etanolu | BDH | BDH1164-4LP | |
| Alexa Fluor 488 azydek | Thermo Scientific | A10266 | |
| Alizarin Red S | Sigma | A5533-25G | |
| Waga analityczna | Sartorious | R200D | |
| Antybiotyk i Przeciwgrzybicze 100x (anty-anty) | Thermo Scientific | 15240-062 | |
| Antymagnetyczne kleszcze ze stali nierdzewnej | Excelta | 7-SA | |
| Dozownik butelkowy | Ward's Science | 470134-946 | |
| Albumina surowicy bydlęcej (BSA) | Fisher Scientific | BP9700-100 | |
| Chlorek wapnia (CaCl) | Amresco | 1B1110-500G | |
| Woreczki do sterylizacji Chex-all II | Propperman | 24008 | |
| Chlorowodorek cirpofloksacyny | Alfa Aesar | J61970 | |
| Siarczan miedzi (II) pentahydrat (CuSO4) | Sigma | 469130-50g | |
| Mikroskop preparacyjny | Nikon | SMZ1270 | |
| Pompa próżniowa do suszu | Welch | 2019B-01 | |
| Płodowa surowica bydlęca (FBS) | Thermo Scientific | A31606-01 | |
| Matowe mikroszkiełka | VWR | 48311-703 | |
| Mikrowirówka Galaxy miniStar | VWR | C1413, | |
| Goat przeciwko mysim przeciwciałom IgG (H+L), Alexa Fluor Plus 555 | Thermo Scientific | A32727 | |
| Surowica kozia | Sigma | G9023 | |
| Detergent Haemo-Sol Haemo-Sol | International LLC | 026-050 | |
| Hoechst 33342, trichlorowodorek, trójwodzian | Thermo Scientific | H3570 | |
| Gorąca płyta/mieszadło | Corning | PC-320 | |
| Ludzkie rogówki | Lions Eye Institute for Transplant and Research, Advancing Sight Network, Eversight Eye Bank, Lions Vision Gift i Georgia Eye Bank | NA | |
| Kwas solny (HCl) | BDH | BDH7204 | |
| ImageJ | National Institute of Health | Wersja 1.52a Kamera | |
| mikroskopowa Infinity 3s | Lumenera | 1URCAP2 | |
| Oprogramowanie do analizy Infinity | Lumenera | Wersja 6.5.5 | |
| Transferyna insuliny selen (ITS) | Corning | 41400-045 | |
| Nożyczki do przysłony, 11 cm | World Precision Instruments | 501264-G | |
| Kwas L-askorbinowy | Sigma | A4544-25G | |
| Ręczna pipeta jednokanałowa | Rainin | 17014-392, -391, -382 | |
| Igła PrecisionGlide 30G | Becton Dickinson | 305106 | |
| N-Met141 TTHX1114 | Program Rozwoju Biofarmaceutyków | NA | |
| Opti-Mem I + GlutaMAX-1 (Opti-MEM) | Thermo Scientific | 51985-034 | |
| Miernik pH Orion Star A211 | Thermo Scientific | STARA211 | |
| szalki Petriego | VWR | 89107-632 | |
| Chlorek potasu (KCl) | BDH | BDH9258-500G | |
| Fosforan potasu jednozasadowy (KH2PO4) | VWR | 0781-500G | |
| Sterownik pipet Powerpette plus | VWR | 75856-456 | |
| Precyzyjna kąpiel wodna 188 | Precision Scientific Incorporated | WB05 | Zestaw na 37° C |
| Oczyszczacz Klasa II model Szafa bezpieczeństwa biologicznego | Labconco | 36213043726 | |
| probówki Safe-Lock, 1,5 ml | Eppendorf | 22363212 | |
| Skalpel rozmiar 22 stal nierdzewna | Sklar | 446479 | |
| Chlorek sodu (NaCl) | VWR | 2041-2.5K | |
| Hosphat sodu dwuzasadowy (Na2HPO4) | VWR | 0404-1KG | |
| Wytrząsarka standardowa | VWR | 89032-092 | |
| Standardowa lodówka na paliwo stałe | VWR | 10820-402 | Ustawiona na 4° C |
| Autoklaw Sterilmatic | Market Forge | STM-EL | |
| Filtry strzykawkowe | VWR | 28145-477 | |
| Wahacz do probówek | Thermo Scientific | M48725Q | |
| Tru-Punch jednorazowy dziurkacz do biopsji, 4 mm | Sklar | 96-1146 | |
| Trypan Blue | Thermo Scientific | 15250-061 | |
| Tween-20 | Sigma | P7949-100mL | |
| Vibrance antifade medium montażowe z DAPI | Vector Laboratories Inc. | Okulary okularowe H-1800 | |
| VistaVision, nr 1 | VWR | 16004-098 | |
| Vortex Genie 2 | Przeciwciało | G-560 | |
| ZO-1 (ZO1-1A12) | Thermo Scientific | 33-9100 |
Bibliografia
- Eghrari, A. O., Gottsch, J. D. Fuchs' corneal dystrophy. Expert Review of Ophthalmology. 5 (2), 147-159 (2010).
- Ku, B., et al. Endothelial cell loss in penetrating keratoplasty, endothelial keratoplasty, and deep anterior lamellar keratoplasty. Taiwan Journal of Ophthalmology. 7 (4), 199(2017).
- Gain, P., et al. Global survey of corneal transplantation and eye banking. JAMA Ophthalmology. 134 (2), 167-173 (2016).
- Braunstein, R. E., Airiani, S., Chang, M. A., Odrich, M. G. Corneal edema resolution after "descemetorhexis". Journal of Cataract and Refractive Surgery. 29 (7), 1436-1439 (2003).
- Pan, J. C., Eong, K. G. A. Spontaneous resolution of corneal oedema after inadvertent 'descemetorhexis' during cataract surgery. Clinical and Experimental Ophthalmology. 34 (9), 896-897 (2006).
- Shah, R. D., et al. Spontaneous corneal clearing after Descemet's stripping without endothelial replacement. Ophthalmology. 119 (2), 256-260 (2012).
- Ziaei, M., Barsam, A., Mearza, A. Spontaneous corneal clearance despite graft removal in Descemet stripping endothelial keratoplasty in Fuchs endothelial dystrophy. Cornea. 32 (7), 164-166 (2013).
- Huang, M. J., Kane, S., Dhaliwal, D. K. Descemetorhexis without endothelial keratoplasty versus DMEK for treatment of fuchs endothelial corneal dystrophy. Cornea. 37 (12), 1497(2018).
- Davies, E., Jurkunas, U., Pineda, R. Pilot study of corneal clearance with the use of a rho-kinase inhibitor after descemetorhexis without endothelial keratoplasty for Fuchs endothelial corneal dystrophy. Cornea. 40 (7), 899-902 (2021).
- Macsai, M. S., Shiloach, M. Use of topical rho kinase inhibitors in the treatment of Fuchs dystrophy after Descemet stripping only. Cornea. 38 (5), 529-534 (2019).
- Moloney, G., et al. Descemetorhexis without grafting for Fuchs endothelial dystrophy-supplementation with topical ripasudil. Cornea. 36 (6), 642-648 (2017).
- Thalmann-Goetsch, A., Engelmann, K., Bednarz, J. Comparative study on the effects of different growth factors on migration of bovine corneal endothelial cells during wound healing. Acta Ophthalmologica Scandinavica. 75 (5), 490-495 (1997).
- Landshman, N., et al. Regeneration of cat corneal endothelium induced in vivo by fibroblast growth factor. Experimental Eye Research. 45 (6), 805-811 (1987).
- Lee, J., Blaber, M. Increased functional half-life of fibroblast growth factor-1 by recovering a vestigial disulfide bond. Journal of Proteins & Proteomics. 1, 37-42 (2010).
- Xia, X., et al. Engineering a cysteine-free form of human fibroblast growth factor-1 for "second generation" therapeutic application. Journal of Pharmaceutical Sciences. 105 (4), 1444-1453 (2016).
- Eveleth, D., Pizzuto, S., Weant, J., Jenkins-Eveleth, J., Bradshaw, R. Proliferation of human corneal endothelia in organ culture stimulated by wounding and the engineered human fibroblast growth factor 1 derivative TTHX1114. Journal of Ocular Pharmacology and Therapeutics: the Official Journal of the. 36 (9), 686-696 (2020).
- Tremblay, T. M. TTHX1114(NM141) in Combination With DWEK/DSO. ClinicalTrials.gov. , Available from: https://clinicaltrials.gov/ct2/show/NCT04676737?term=TTHX1114&draw=2&rank=2 (2020).
- Soh, Y. Q., et al. Predicative factors for corneal endothelial cell migration). Investigative Ophthalmology & Visual Science. 57 (2), 338-348 (2016).
- van Dooren, B. T. H., Beekhuis, W. H., Pels, E. Biocompatibility of trypan blue with human corneal cells. Archives of Ophthalmology. 122, Chicago, Ill: 1960 (2004).
- Davies, E., Jurkunas, U., Pineda, R. Predictive Factors for Corneal Clearance After Descemetorhexis Without Endothelial Keratoplasty. Cornea. 37 (2), 736-742 (2018).
- Borkar, D. S., Veldman, P., Colby, K. A. Treatment of Fuchs endothelial dystrophy by Descemet stripping without endothelial keratoplasty. Cornea. 35 (10), 1267-1273 (2016).
- Amano, S., Mimura, T., Yamagami, S., Osakabe, Y., Miyata, K. Properties of corneas reconstructed with cultured human corneal endothelial cells and human corneal stroma. Japanese Journal of Ophthalmology. 49 (6), 448-452 (2005).
- Rolev, K., OʼDonovan, D. G., Coussons, P., King, L., Rajan, M. S. Feasibility study of human corneal endothelial cell transplantation using an in vitro human corneal model. Cornea. 37 (6), 778-784 (2018).
- Spinozzi, D., et al. In vitro evaluation and transplantation of human corneal endothelial cells cultured on biocompatible carriers. Cell Transplantation. 29, 1-11 (2020).
- Garcin, T., et al. Three-month storage of human corneas in an active storage machine. Transplantation. 104 (6), 1159-1165 (2020).
Przedruki i uprawnienia
